Астаксантин, мембраны и LPO: механизмы и исследования — NutriFit
Астаксантин в мембранах: перекисное окисление, фармакокинетика и клинические пределы
Химия и стереоизомерия астаксантина, модельная ориентация в бислое, цепная кинетика LPO, митохондрии, Nrf2/NF-κB и критическое чтение небольших исследований у людей.
Астаксантин удобен для проверки того, как правдоподобная молекулярная гипотеза превращается в слишком сильное лечебное обещание. Его концевые гидроксильные и кетогруппы взаимодействуют с полярной областью мембраны, сопряжённый полиен распределяется среди ацильных цепей, а разные модельные системы регистрируют изменение окисления липидов. Но ориентация в искусственном бислое зависит от состава и концентрации; изменение биомаркера у человека не равнозначно снижению риска заболевания. Поэтому ниже химия, мембранная биофизика, цепная кинетика, клеточные пути и клинические опыты разведены по уровню доказательности.
1. Молекула до мембраны: хромофор, стереоизомеры, геометрия
1.1. Полярные концы и сопряжённая цепь
Астаксантин — C₄₀-ксантофилл с формулой C₄₀H₅₂O₄ и молярной массой около 596,8 г/моль. Его каркас образуют полиеновая цепь и два β-иононовых кольца; каждое несёт OH при C3 либо C3′ и кетогруппу при C4 либо C4′. Систематическое название конкретного природного энантиомера — (3S,3′S)-3,3′-дигидрокси-β,β-каротин-4,4′-дион, тогда как «астаксантин» без стереохимического уточнения включает и другие конфигурации. Нередко упоминаемые «13 сопряжённых двойных связей» означают 11 связей C=C и две сопряжённые C=O: смешивать их с 13 связями C=C нельзя. Делокализация π-электронов определяет видимое поглощение и возможность передачи энергии возбуждения либо реакции с радикалами. Спектральный максимум зависит от растворителя, агрегации, цис/транс-состава и матрицы; одно число для любой мембраны не задано. Энергии HOMO/LUMO, рассчитанные для изолированной молекулы, сами по себе не ранжируют скорость защитных реакций в клетке: требуются конкретный окислитель, константы скоростей, конкуренты и локальная концентрация (Woodall и соавт., 1997).
1.2. Стереохимия и происхождение
C3 и C3′ — хиральные центры. Для симметричного скелета различают зеркальные (3S,3′S) и (3R,3′R) формы, а также мезо-конфигурацию (3R,3′S), эквивалентную (3S,3′R). У Haematococcus pluvialis обычно преобладает (3S,3′S), у Xanthophyllomyces dendrorhous (Phaffia rhodozyma) — противоположная конфигурация; химический синтез при соответствующем неселективном процессе даёт три стереоформы. Доли зависят от штамма, способа производства и анализа партии, поэтому жёсткую таблицу процентов для всех природных и синтетических продуктов переносить нельзя. В водорослевом сырье молекула часто этерифицирована жирными кислотами, а синтетический препарат может содержать свободную форму. Это различие влияет на извлечение и гидролиз, но сравнение биодоступности требует одинаковой лекарственной матрицы и дозы, а не ярлыка «натуральный» (Odeberg и соавт., 2003).
Биосинтез включает гидроксилирование β-иононовых колец β-каротингидроксилазой и кетолирование β-каротинкетолазой; порядок стадий и промежуточные ксантофиллы зависят от ферментов организма. Схематически β-каротин → гидрокси- и/или кетоинтермедиаты → астаксантин. Такая реакционная карта объясняет одновременно OH и C=O, но не доказывает, что один энантиомер связывается с рецептором энтероцита лучше другого: для этого нужны отдельные сравнительные исследования.
1.3. E/Z-изомерия и химическая стабильность
Полиен допускает all-E и Z-изомеры, в частности 9-Z и 13-Z. Фотооблучение, нагрев, кислород и матрица могут изменить изомерный состав или вызвать окислительное разложение. Z-связь изменяет проекцию молекулы, упаковку кристалла и растворение в липиде, однако это не универсальное «сокращение до 22–25 Å» и не автоматическая потеря антиоксидантной активности. Изомерия и стереохимия независимы: обозначение (3S,3′S) не сообщает, является ли цепь all-E. Эфирные формы, свободная молекула и продукты окисления также должны различаться аналитически при сопоставлении исследований. Для накопления в ткани важны исходный состав, превращения в кишечнике, транспорт липопротеинами и выведение, а не одна конформация на рисунке.
2. Положение в бислое: модельная топология без «молекулярного замка»
2.1. Размеры определяются мембраной, а не только молекулой
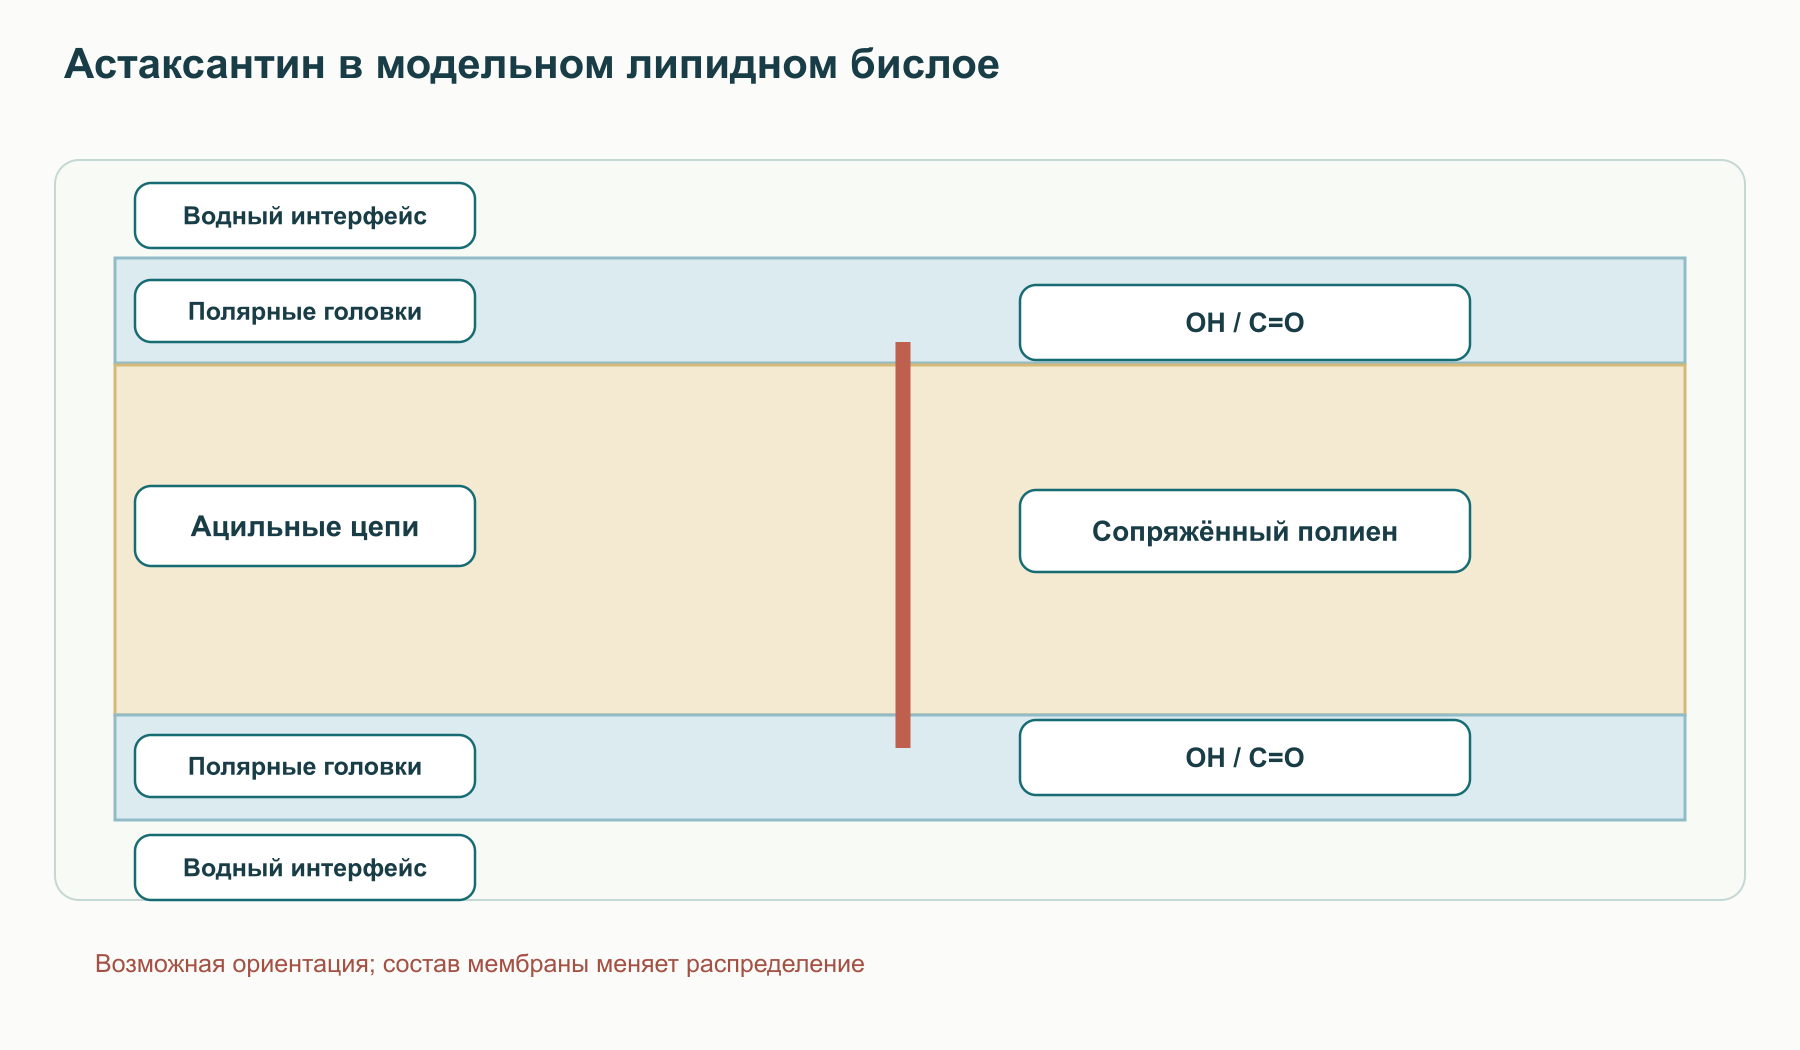
Фосфолипидный бислой содержит водные интерфейсы с гидратированными головками и менее полярную сердцевину из ацильных цепей. Для разных липидов, степени ненасыщенности, холестерина, температуры и фазы отличаются расстояние между интерфейсами, толщина гидрофобной области, гидратация и латеральный порядок. Поэтому сопоставление одной расчётной длины вытянутой молекулы с одной «толщиной живой мембраны до десятых Å» методологически неверно. DPPC в гелевой фазе, DOPC в жидкой фазе и митохондриальная мембрана с кардиолипином не имеют одинаковой геометрии. Определение глубины и наклона требует конкретной модели и метода — например, параметров спиновых меток, спектроскопии, рассеяния или молекулярной динамики с оговорёнными условиями (Goto и соавт., 2001) (McNulty и соавт., 2007).
2.2. Амфипатическое взаимодействие с обоими интерфейсами
Две кислородсодержащие концевые группы делают астаксантин амфипатическим: терминальные участки могут взаимодействовать с гидратированными головками, а полиен — с ацильной зоной. В некоторых искусственных бислоях энергетически возможна ориентация, при которой концы обращены к противоположным поверхностям, и это помогает объяснять изменение локального порядка липидов и доступности радикалов на разных глубинах (Goto и соавт., 2001) (McNulty и соавт., 2007). Это модельная гипотеза о распределении ориентаций, а не доказанная фиксированная поза каждой молекулы во всех клеточных мембранах. Угол наклона не является универсальной константой; мембранные белки, холестерин, микродомены и неодинаковая концентрация каротиноида меняют окружение. Термин «трансмембранное сшивание» следует понимать как образную модель возможного межлисткового расположения, а не ковалентную связь или механическое цементирование бислоя.
2.3. Каротины и другие ксантофиллы: корректное сравнение
β-Каротин и ликопин не несут таких полярных концевых групп и потому распределяются в бислое иначе; это не означает обязательную горизонтальную посадку каждой молекулы, разрыхление любой мембраны либо токсичность при любой концентрации. Лютеин и зеаксантин также содержат полярные концы и способны принимать ориентации, захватывающие толщу бислоя. У астаксантина кетогруппы расширяют спектр взаимодействий, но он не единственный каротиноид с потенциальной межлистковой ориентацией. Сравнение нужно проводить при одинаковом составе мембраны, молярной доле, температуре и измеряемой характеристике; отсутствие этих условий делает таблицу «абсолютного превосходства» некорректной. Различия в фотофизике и химии радикалов не равны автоматически разнице клинической эффективности.
2.4. Порядок ацильных цепей и фазовые переходы
Добавление каротиноида к модельной мембране может менять параметры порядка, микровязкость, проницаемость и тепловой профиль перехода Lβ → Lα. Направление эффекта зависит от того, находится ли исходный липид в гелевой либо жидкокристаллической фазе, какова доля астаксантина, есть ли холестерин и какой зонд используется. Уширение либо ослабление калориметрического пика означает изменение кооперативности фазового перехода в данном образце, а не универсальное предотвращение лихорадочного повреждения мембран. Наблюдения с липосомами и эритроцитами полезны для механизма, но по ним нельзя заключить, что пероральный приём предотвращает осмотический гемолиз, сосудистую утечку и потерю ионных градиентов у людей (McNulty и соавт., 2007). Практический вопрос — достигается ли в нужной мембране сопоставимая молярная доля после всасывания и транспорта; для большинства заявленных клинических сценариев она не установлена.
3. Перекисное окисление липидов: где могла бы действовать молекула
3.1. Инициация, распространение, разветвление и действительная терминация
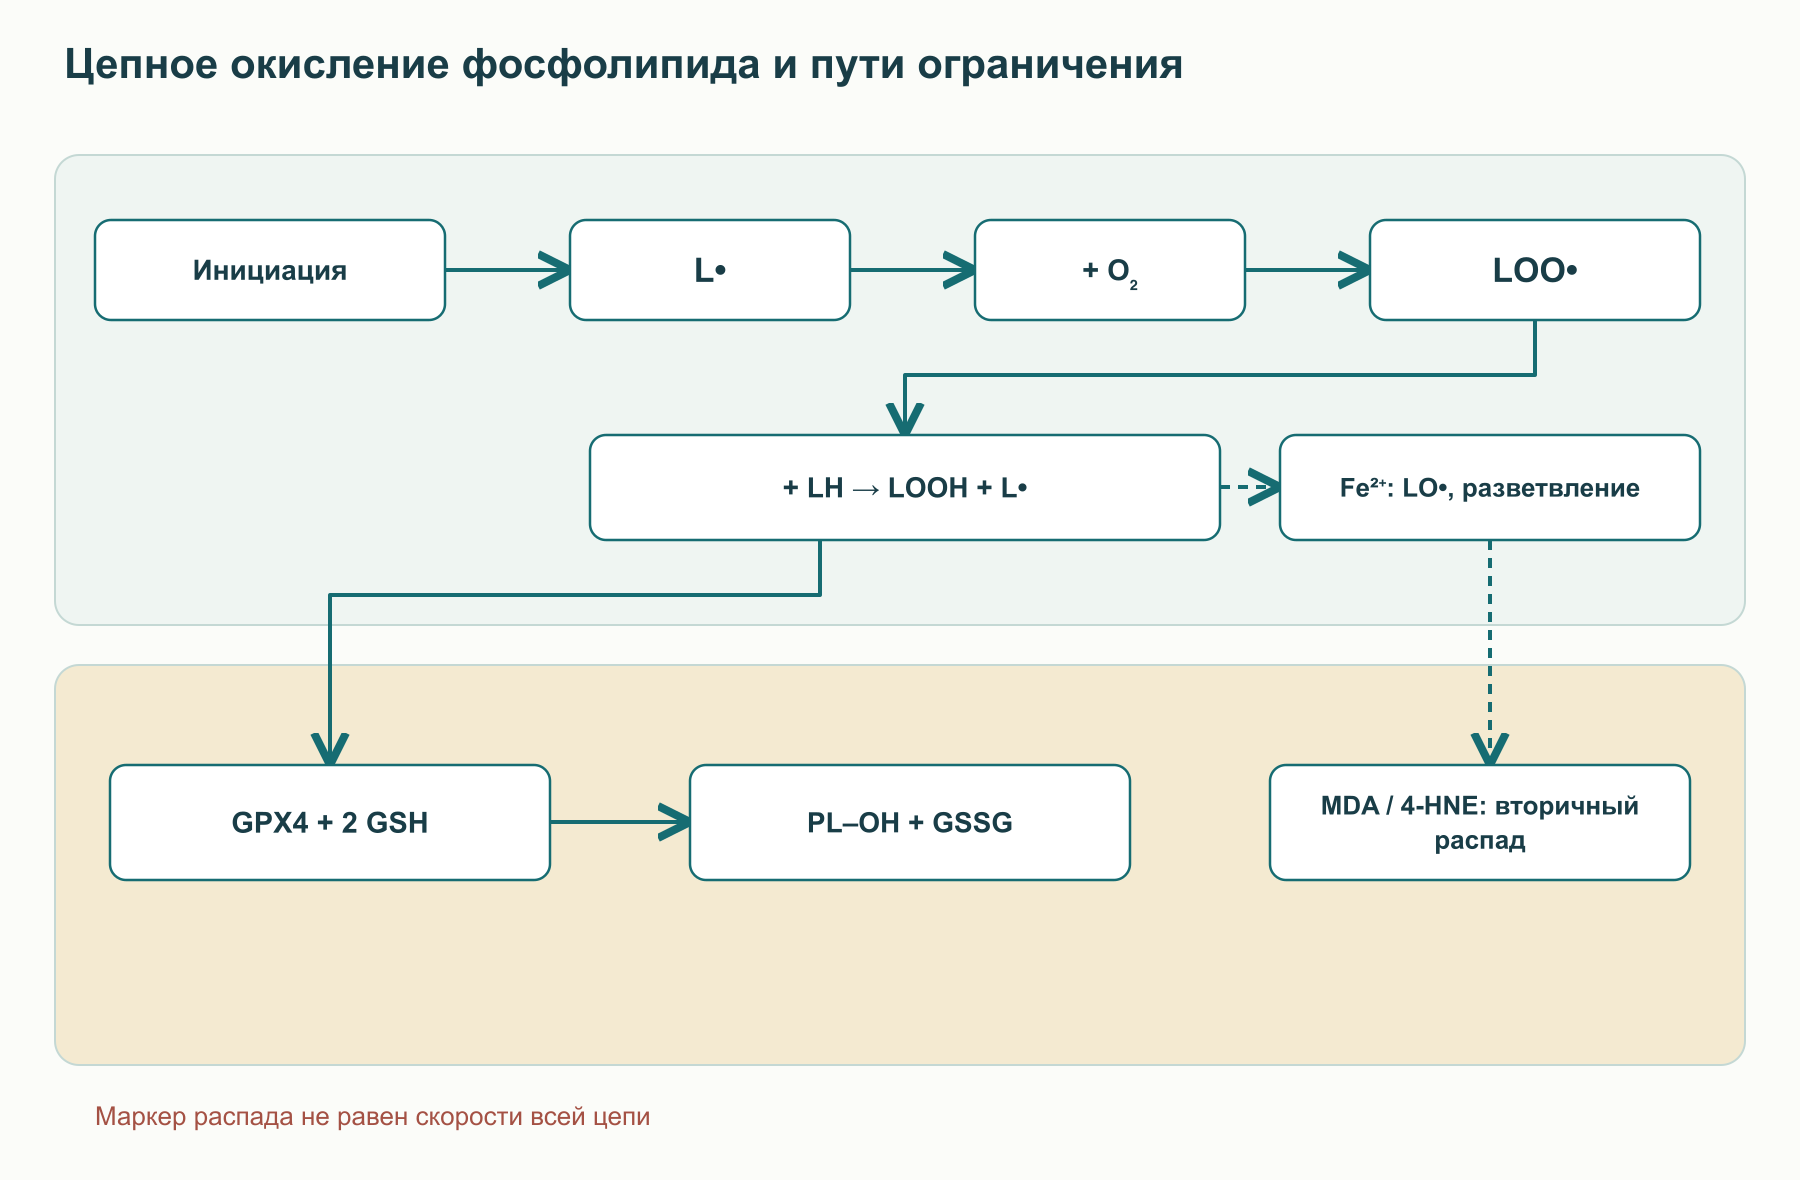
Бис-аллильный метиленовый водород в полиненасыщенном ацильном остатке фосфолипида уязвим для отрыва радикалом. Обозначим такой остаток LH. Первичная реакция может быть записана LH + X• → L• + XH; затем L• + O₂ → LOO• и LOO• + L′H → LOOH + L′•. Последний шаг восстанавливает радикал и позволяет цепи распространяться. Константы реакции меняются с субстратом, кислородом, фазой и температурой; приводить одно число как скорость во всех мембранах нельзя. Реакция LOOH + Fe²⁺ → LO• + OH⁻ + Fe³⁺ (при доступном металле) даёт алкоксильный радикал и способствует разветвлению. Ферментативное удаление гидропероксида конкурирует с этим путем: GPX4 катализирует PL–OOH + 2 GSH → PL–OH + GSSG + H₂O, если присутствуют селенопротеин и восстановленный глутатион.
Терминация — это реакция, после которой радикальная цепь не продолжает рождать новый L•, например LOO• + LOO• → стабильные продукты + O₂, либо достаточно быстрый перехват цепь-обрывающим донором. Малоновый диальдегид (MDA), 4-гидрокси-2-ноненаль (4-HNE) и другие реакционноспособные карбонилы возникают главным образом при вторичном распаде окисленных полиненасыщенных остатков: это продукты повреждения, не сам механизм терминации. Их концентрация определяется образованием, дальнейшей метаболизацией, связыванием с белками и методом анализа. Рост одного маркера не измеряет автоматически поток всей цепи. В контексте мембранной химии полезна отдельная статья о пищевых полифенолах и пределах интерпретации антиоксидантных маркеров: полифенолы пищи и безопасность.
3.2. Синглетный кислород: физическое тушение и химическая реакция
¹O₂ возникает при фотосенсибилизации и некоторых других реакциях; он может окислять ненасыщенную связь без начального углеродного радикала. Каротиноидный полиен способен принимать энергию возбуждения: ¹O₂ + AST(S₀) → ³O₂ + ³AST*; возврат ³AST* в исходное состояние рассеивает энергию. Физическое тушение не требует стехиометрического расхода каротиноида, тогда как химическое окисление астаксантина расходует его. Эти пути конкурируют, а их доли зависят от растворителя, концентрации кислорода, агрегации и соседних молекул. Относительные константы в растворах и липосомах нельзя переводить в «550/800/6000 раз лучше» как клиническую эффективность, сравнивая с аскорбатом, токоферолом либо коэнзимом Q10 без общего компартмента и одинакового аналитического теста (Woodall и соавт., 1997).
3.3. Радикальный перехват и предел гипотезы редокс-эстафеты
При взаимодействии AST с LOO• возможны перенос атома водорода, перенос электрона и присоединение к полиену; продукты и относительный вклад определяются средой. Упрощённая реакция LOO• + AST–H → LOOH + AST• предполагает, что возникший AST• окажется менее склонным продолжать цепь, но это следует устанавливать кинетически. Резонансная делокализация радикала не означает его полной химической инертности. Возврат окисленного AST восстановителем на водном интерфейсе, например аскорбатом, физически возможен; утверждение о доказанной обязательной «электронной эстафете» AST → аскорбат → глутатион в человеческой клетке было бы чрезмерным. Для неё нужны скорость каждого шага, встречаемость реагентов в одном компартменте и показанный баланс окисленных/восстановленных форм, а не только красивая топологическая схема. Пероксинитрит и липидные пероксильные радикалы — химически разные реагенты; общий ярлык «скавенджер» не делает реакции равноэффективными.
3.4. Почему прооксидантный потенциал нельзя объявить нулём
Данные крупных опытов с β-каротином в группах курильщиков и лиц с воздействием асбеста не разрешают механически приписать такой же риск астаксантину; столь же неверно выводить из различной структуры гарантию полной безопасности астаксантина при любых дозах и pO₂. Автоокисление полиена, образование эпоксидов, апокаротиноидов и радикальных аддуктов зависит от кислорода, света, матрицы и концентрации. Экспериментальная разница между каротиноидами может существовать, но заявление «присоединение O₂ термодинамически запрещено» нельзя вывести из понижения LUMO, не измерив соответствующую реакцию и продукты (Woodall и соавт., 1997). Даже положительный тест на ингибирование окисления в одной модели не доказывает отсутствия неблагоприятных эффектов у беременных, курильщиков или при длительном приёме. Клиническая оценка риска должна относиться к конкретной форме, популяции и режиму, как и при обсуждении коэнзима Q10 в пищевых сочетаниях.
3.5. Митохондриальный кардиолипин: мишень, а не доказанная избирательная доставка
Кардиолипин — фосфолипид с четырьмя ацильными цепями, обогащённый во внутренней мембране митохондрий и участвующий в организации крист, белков дыхательной цепи и взаимодействии с цитохромом c. Его ацильный состав тканеспецифичен; тетралинолеоил-кардиолипин особенно значим в сердце, но проценты нельзя переносить на мозг и все виды животных. Пероксидация кардиолипина может менять связывание цитохрома c и функцию белковых комплексов. Однако выход цитохрома c в цитозоль также требует проницаемости внешней мембраны, обычно управляемой BAX/BAK либо другими контекст-зависимыми механизмами. Нельзя сводить механизм mPTP к обязательной паре ANT–VDAC; состав и регуляция перехода проницаемости остаются предметом исследований.
В работах с изолированными сердечными митохондриями астаксантин изучали по окислению, кальций-зависимому набуханию и биоэнергетическим показателям (Belova и соавт., 2019) (Krestinina и соавт., 2023). Условия внесения соединения непосредственно в суспензию не эквивалентны его концентрации во внутренней мембране после приема капсулы человеком. Наблюдаемое снижение повреждения в определённой модели не доказывает «полной блокады» пероксидации кардиолипина, фиксированного ΔΨm или предотвращения инфаркта. Доля кислорода, превращённого в АФК, меняется с состоянием дыхательной цепи и субстратами; универсальное «0,2–2 %» не следует считать константой. Для связи каротиноидной мембранной химии с другой митохондриальной сигнальной системой см. мелатонин и митохондрии, где иной путь доставки и иные исходы.
4. Транскрипционные ответы: Nrf2 и NF-κB
4.1. Что измеряют при активации Nrf2
В базальном состоянии KEAP1 способствует связыванию Nrf2 с комплексом CUL3–RBX1, убиквитинированию и протеасомной деградации. При нарушении этого контроля новообразованный Nrf2 накапливается, входит в ядро, образует комплекс с малыми Maf и связывается с ARE-участками; вклад иных регуляторных путей тоже возможен. В клеточных и животных моделях после астаксантина описаны изменения Nrf2 и ряда подчинённых генов (Fakhri и соавт., 2022). Но прямое ковалентное связывание AST с Cys151/Cys273/Cys288 KEAP1 и избирательное разобщение KEAP1–CUL3 нельзя объявлять установленными без эксперимента на мишени: астаксантин не следует автоматически моделировать как классический электрофильный реагент для цистеинов.
Возможные выходы оси содержательно различаются. HMOX1 расщепляет гем с образованием биливердина, CO и высвобождением железа; ферритин не продукт этой реакции, а отдельная часть клеточного ответа на железо. NQO1 восстанавливает хиноны двухэлектронным путём с NAD(P)H; GCLC/GCLM обеспечивают первый ATP-зависимый шаг синтеза GSH из глутамата и цистеина, затем глутатионсинтетаза присоединяет глицин. GPX4 восстанавливает гидропероксиды фосфолипидов при расходовании GSH, но не является единственным ферментом, вообще способным обезвреживать все мембранные перекиси. SOD2 в матриксе дисмутирует O₂•⁻ в H₂O₂, которую надо далее удалять пероксидазами. Изменение транскрипта любого из этих ферментов — лишь один уровень: для функционального вывода нужны белок, активность, субстраты и поражение липидов в нужном компартменте.
4.2. NF-κB и развилка причины и корреляции
Каноническая передача сигнала TNF, IL-1 или TLR активирует IKK-комплекс, фосфорилирование IκBα по Ser32/Ser36 способствует его убиквитинированию и деградации; освобождённый RelA/p50 входит в ядро. В моделях с астаксантином сообщали меньшую ядерную активность NF-κB, изменения TNF, IL-1β, IL-6, NOS2/iNOS и PTGS2/COX-2 (Fakhri и соавт., 2022). Это совместимо с косвенным влиянием на окисление, рецепторные пути либо воспалительный стимул. Однозначно назвать AST прямым аллостерическим ингибитором IKKβ из этих наблюдений нельзя. Одновременное изменение Nrf2 и NF-κB тоже не доказывает, что одна ось причинно подавляет другую. Клеточная культура с определённой концентрацией и экспозицией служит механистической моделью, а не обещанием клинического противовоспалительного эффекта.
5. Человек: биомаркер, функциональный тест и клинический исход — разные ступени
Общие механизмы окисления LDL, кожи и миоцита не позволяют соединить разнотипные небольшие опыты в доказанную профилактику атеросклероза, фотостарения, синдрома сухого глаза и спортивного истощения. Важны рандомизация, контроль матрицы, исходное состояние участников, полнота данных и предзаданный исход. Ниже сохранены работы из исходной базы, но каждое наблюдение привязано к измеренному исходу.
5.1. Липопротеины и эндотелий
Частица LDL содержит ApoB-100 и окисляемые липиды. При глубокой модификации её распознавание классическим LDL-рецептором меняется, а рецепторы макрофагов, включая CD36 и SR-A, способны захватывать окисленные частицы; в ткани процесс связан с образованием пенистых клеток. Это патогенетический контекст, не доказательство действия перорального астаксантина на частоту бляшек или событий. В исследовании Iwamoto добровольцы принимали астаксантин, а затем выделенный LDL окисляли медью ex vivo и измеряли латентный период образования диенов (Iwamoto и соавт., 2000). Удлинение лаг-фазы в этой лабораторной системе следует называть устойчивостью выделенной частицы к заданному окислителю, а не уменьшением инфарктов или доказанным «восстановлением эндотелия». В опытах Choi у людей с избыточной массой тела либо в иной выбранной популяции измерялись MDA, изопростаны, активность SOD и суммарная антиоксидантная ёмкость (Choi и соавт., 2011) (Choi и соавт., 2011). Состав выборки, матрица и метод анализа ограничивают переносимость; исходные проценты без воспроизведения первичной таблицы здесь не объявляются универсальным эффектом.
Механистическая цепь O₂•⁻ + NO• → ONOO⁻ и окисление BH₄ важны для понимания разобщения eNOS: при дефиците функционального кофактора фермент может производить супероксид вместо NO. Но снижение маркера LPO само по себе не доказывает, что именно астаксантин восстановил BH₄, сопряжение eNOS и поток-опосредованную дилатацию (FMD) у данного участника. Для такого вывода нужны прямые измерения и контролируемое вмешательство. FMD и скорость пульсовой волны — функциональные суррогаты, а не доказанные здесь жёсткие сердечно-сосудистые исходы.
5.2. Yoshida: липиды и адипонектин в заданной группе
В небольшом рандомизированном исследовании Yoshida и коллег астаксантин изучали при лёгкой гипертриглицеридемии, сравнивая несколько дозовых групп с плацебо на протяжении двенадцати недель (Yoshida и соавт., 2010). Авторы обсуждали изменения триглицеридов, HDL-C и адипонектина. Их нельзя пересказать как установленное лечение «метаболического синдрома»: включение по липидам не обязательно означает наличие синдрома, а адипонектин является гормональным маркером, не самостоятельным клиническим исходом. Корреляция изменения адипонектина с HDL-C не устанавливает причинную последовательность через AdipoR1/R2, AMPK, PPARα и ABCA1; для неё потребовались бы вмешательства на этих звеньях и проверка в соответствующих тканях. Исходная таблица статьи приписывает точные групповые изменения и p-значения без сверенной первичной таблицы; здесь они намеренно не воспроизведены. Для клинического решения нужны независимые опыты с контролем питания, лекарств, множественных сравнений и заранее заданными конечными точками. Сопоставление с лекарственным снижением липидов особенно требует осторожности; ниацин, липиды и безопасность показывает, почему изменение HDL-C не гарантирует исхода.
5.3. Кожа: локальная УФ-провокация и смешанные вмешательства
Фотоокисление может запускать MAPK–AP-1 и повышать экспрессию матриксных металлопротеиназ; MMP-1 расщепляет фибриллярный коллаген, MMP-2/9 — отдельные компоненты матрикса. Исходный текст неверно называет MMP-13 «стромелизином»; это коллагеназа-3. В работе Tominaga женская когорта получала одновременно пероральное средство и наружную композицию, поэтому изменения эластичности, влажности либо морщин невозможно приписать именно проглоченному астаксантину; мужская группа была отдельным исследованием (Tominaga и соавт., 2012). В рандомизированном опыте Ito у 23 здоровых людей использовали пероральную добавку и контролируемое локальное УФ-облучение, измеряя минимальную эритемную дозу (MED), увлажнение и TEWL; клеточные эксперименты с MMP-1 являются другим уровнем данных (Ito и соавт., 2018). Положительная MED в эксперименте не заменяет солнцезащиту, не доказывает предотвращение рака кожи и не задаёт лечебную дозу при дерматологических заболеваниях.
5.4. Спорт: вывод существенно уже рекламного протокола
Интенсивная работа мышцы связана с митохондриальным окислительно-восстановительным потоком и, в некоторых условиях, NOX2-зависимыми сигналами. Однако повреждение мембраны нельзя свести к «разрушению CPT1», а изменение активности CPT1 не является автоматически причиной улучшения времени велогонки. В первичной работе Earnest 21 соревнующийся велосипедист был рандомизирован на 28 дней, но тест полностью закончили 14 человек: по 7 в каждой группе. После двухчасовой нагрузки авторы наблюдали улучшение времени 20-километрового заезда в группе астаксантина относительно плацебо и изменение мощности; эффекта на измеренное окисление жиров/углеводов и маркеры мобилизации топлива не обнаружили, механизм авторы назвали неясным (Earnest и соавт., 2011). Следовательно, исходная формула «21 элитный спортсмен, +15% мощности через сохранение CPT1» одновременно преувеличивает анализируемую выборку и подменяет отрицательный механизм. Работы Baralic и Brown по другим тренировочным протоколам необходимо оценивать как самостоятельные наборы данных; они не подтверждают универсальное ускорение восстановления, клиренса лактата или профилактику рабдомиолиза.
5.5. Глаз: скорость хориоидального кровотока не является лечением сетчатки
Исследование Saito включило 20 здоровых добровольцев и четыре недели приема астаксантина либо плацебо; laser speckle flowgraphy определяла относительный показатель скорости хориоидального кровотока (Saito и соавт., 2012). Даже если межгрупповое изменение показателя воспроизводимо, это гемодинамический суррогат у здоровых глаз, а не доказательство прохождения астаксантина через гематоретинальный барьер, улучшения остроты зрения либо терапии дегенерации сетчатки. Исследования компьютерной зрительной усталости и аккомодации имеют другие определения исходов и не должны сливаться с Saito в один результат. Изменение субъективной астенопии также не подтверждает конкретный механизм в цилиарной мышце без отдельной физиологии.
6. От источника к ткани: форма и фармакокинетика
6.1. Водорослевая, дрожжевая и синтетическая матрицы
H. pluvialis накапливает астаксантин преимущественно в виде эфиров с жирными кислотами, а извлечение, сушка и масло определяют содержание свободной формы, геометрических изомеров и сопутствующих липидов. Дрожжевые и синтетические продукты могут отличаться по стереосоставу. Источник следует описывать по проверяемым признакам: массовая доля молекулы, профиль стереоизомеров, степень этерификации, окислительные примеси, стабильность и формуляция. Ни «натуральное» происхождение, ни «нефтехимическое» сырьё сами не измеряют всасывание либо тканевую пользу. Утверждение, что (3S,3′S) доказанно имеет наивысшее сродство к рецепторам энтероцита и накопление у человека, требует прямого исследования одинаково приготовленных изомеров; исходная база его не даёт. Рыба и ракообразные получают пигмент с пищей, а не служат доказательством оптимальной добавки.
6.2. Гидролиз, мицеллы и транспорт липопротеинами
Этерифицированная форма нуждается в освобождении свободного астаксантина для эффективного всасывания; в кишечнике этому могут способствовать желчь и гидролазы, в том числе карбоксилэфирлипаза в соответствующих условиях. Пищевые липиды подвергаются эмульгированию и липолизу, смешанные мицеллы доставляют гидрофобные молекулы к щёточной кайме. Поглощение каротиноидов может включать переносчики SR-BI/SCARB1, CD36 и пассивные составляющие, но долю каждого пути именно для каждой формы астаксантина нельзя задать одной схемой. В энтероците молекула входит в липидные структуры и может выходить с ApoB-48-содержащими хиломикронами в лимфу; остатки хиломикронов доставляются печени, затем пигмент распределяется между липопротеинами. Возможны метаболические превращения и выведение. Фраза «лимфатический путь полностью исключает first pass» слишком сильна: речь о части абсорбированного материала и последующем печёночном обращении. Доли циркулирующего астаксантина в LDL, VLDL и HDL зависят от времени после дозы и липидного профиля; единые 70–80% для всех людей не подтверждены.
6.3. Липидные формуляции, Cmax и AUC
Липидная матрица может увеличить растворение и доставку к мицеллам. В человеческом фармакокинетическом исследовании Odeberg разные липидные формуляции давали различающиеся плазменные кривые астаксантина (Odeberg и соавт., 2003). Cmax отражает пик концентрации, AUC — интегральную экспозицию за период измерения; оба показателя зависят от пищи, состава продукта и времени отбора. Отношение AUC двух тестовых препаратов нельзя автоматически выдавать за универсальное «в четыре раза лучше» для всех SMEDDS, равно как за четырёхкратное улучшение функции органа. Для липосом, наноэмульсий и NLC характерны разные физические механизмы защиты и диспергирования; утверждение о всасывании целой наночастицы у человека требует отдельного доказательства. Классификацию BCS для пищевого каротиноида тоже нельзя назначить без формально определённой лекарственной формы и измерений растворимости/проницаемости.
7. Экспериментальные дозы, сочетания и границы безопасности
7.1. Доза в публикации — часть протокола, а не терапевтическая шкала
Исходная таблица превращает разрозненные режимы небольших исследований в диагноз-специфические назначения: «антиэйджинг», спорт, метаболический синдром, астенопия и эндотелиальная дисфункция. Такой переход не обоснован. Корректнее сопоставлять конкретную дозу с формой, длительностью, составом группы и измеренным исходом внутри каждой работы: Ito — локальная УФ-провокация здоровой кожи; Earnest — тест на велоэргометре у 14 завершивших; Yoshida — липиды и адипонектин; Saito — относительная скорость хориоидального кровотока. Ни один из этих опытов не устанавливает постоянный профилактический курс, лечебную дозу для болезни или лабораторный мониторинг «TAC для антиоксидантной защиты». Режим должен обосновываться качеством данных по соответствующей клинической цели, а не экстраполяцией молекулярной активности.
7.2. Пища, время дня и совместные липиды
Астаксантин липофилен, поэтому пища и жирная формуляция способны менять плазменную экспозицию; это совместимо с экспериментом Odeberg. Но вывод «натощак всасывание нулевое» неверен: желчь секретируется и без установленного порога 15–20 г пищевого жира, а препарат часто уже содержит масло. Не установлена необходимость утреннего приёма для энергии либо превосходство одного конкретного пищевого масла. Крилевый жир, рыбий жир и фосфатидилхолин могут изменять физическую матрицу, но сочетание не обязано давать синергизм биодоступности и тем более клинических исходов. Практическая интерпретация требует сравнивать готовые препараты при одинаковом приёме пищи и контроле состава.
7.3. Почему из химической совместимости не следует «стек»
Астаксантин, коэнзим Q10, PQQ, лютеин, зеаксантин, DHA, EPA и цитруллин имеют различные мишени. Например, CoQ10 переносит электроны в дыхательной цепи, тогда как астаксантин исследуется как мембранный каротиноид; это не доказывает, что фиксированная многокомпонентная схема повышает синтез ATP или защищает кардиолипин у человека. Лютеин/зеаксантин как макулярные пигменты отличаются от астаксантина и не делают сочетание лечением сетчатки. Цитруллин участвует в обеспечении аргинином для синтеза NO, но не исправляет автоматически eNOS-uncoupling и не превращает смесь в сосудистую терапию. Для оценки взаимодействия требуется факторный дизайн или прямое сравнение комбинации с каждым компонентом, фармакокинетика и нежелательные явления. Отдельную логику CoQ10 и других липофильных соединений следует читать в статье о коэнзиме Q10 и полифенолах, не выдавая механистическое соседство за доказанную синергию.
7.4. Токсикология, провитамин A и специальные популяции
Астаксантин не считается типичным провитамином A, поэтому переносить на него механизм гипервитаминоза A после превращения β-каротина в ретинол нельзя. Из этого не следует абсолютная безопасность при болезни печени, беременности и любых дозах: для этих состояний нужны соответствующие данные. Мышиное LD50 либо NOAEL нельзя линейно переводить в «сотни граммов безопасны человеку»; видовые различия, длительность, состав продукта и конечная точка существенны. Статус конкретного ингредиента в регуляторной юрисдикции и его пределы использования меняются и не равны клиническому доказательству лечения. Исходные абсолютные утверждения о невозможности каротинодермии, отсутствии генотоксичности во всех условиях и обязательном лабораторном мониторинге не подтверждаются приведёнными клиническими работами. В исследованиях с ограниченной продолжительностью не обнаружить определённое событие — не значит исключить редкие либо отсроченные эффекты. Оценка добавки у конкретного человека зависит от зарегистрированной формулы, лекарств, беременности/лактации и цели применения; здесь нет универсального курса.
Заключение
Химия астаксантина хорошо объясняет, почему исследователи помещают его в модельные бислои и изучают реакции с возбужденным кислородом и радикалами. Наиболее убедительные механистические вопросы сегодня — фактическая ориентация и концентрация молекулы в различных мембранах, скорости конкурирующих путей окисления и связь локальной химии с функцией клетки. Человеческие исследования дают ограниченные, разнородные сигналы по суррогатам кожи, липидов, кровотока и спортивного теста; они не устанавливают профилактику сердечно-сосудистых событий, лечение заболеваний глаза либо универсальную безопасность. Продвижение от молекулы к терапии потребует воспроизводимых сравнений конкретных форм с заранее заданными клиническими исходами и внимательной регистрацией нежелательных явлений.
Как подготовлен обзор
Это нарративный обзор астаксантина, мембранной среды и окисления липидов на основе подборки из 18 публикаций. В редакции от 4 октября 2026 года адресно сверены отдельные ключевые исследования физической нагрузки, УФ-провокации, микроциркуляции и фармакокинетики. Для части механистических работ повторный доступ к полным текстам отсутствовал: неподтверждённые точные углы, толщины мембраны и численные эффекты не утверждаются. Исчерпывающий поиск, метаанализ и формальная оценка риска смещения каждой работы не проводились.
Ориентация вещества в модельном бислое, лабораторный показатель перекисного окисления и клинический исход — разные уровни данных. Статистический результат оценивается по изученной популяции, формуляции, длительности и выбранной конечной точке. Результаты небольших испытаний не устанавливают универсального лечебного действия; улучшенная экспозиция одной формы не доказывает большую клиническую пользу.
Частые вопросы
Что означает «мембранное сшивание» астаксантином?
Это модель возможной ориентации молекулы с полярными концами у двух интерфейсов бислоя; ковалентного сшивания нет, а ориентация зависит от мембраны.
Доказано ли предотвращение перекисного окисления липидов у человека?
Модельные системы и некоторые исследования биомаркеров дают основания для изучения, но защита органов и предотвращение болезней не установлены.
Можно ли применять дозы из небольших исследований как курс лечения?
Нет. Дозы описывают конкретные протоколы и суррогатные исходы, но не образуют проверенную лечебную схему.
Отличается ли натуральный астаксантин от синтетического?
Они могут различаться по стереоизомерам, эфирификации и матрице; клиническое преимущество требует прямого сравнения конкретных форм.