Ксеногормезис: өсімдік, Nrf2 және дәлел шегі — NutriFit
Ксеногормезис: өсімдік стрессі, жасушалық бейімделу және ұзақ өмір туралы дәлелдердің шегі
Өсімдік қорғаныш химиясының Nrf2, AMPK, сиртуиндер және аутофагиямен байланысы. Биосинтез, агроэкология, метаболит, фармакокинетика және адам денсаулығы мен өміріне көшіру шегі.
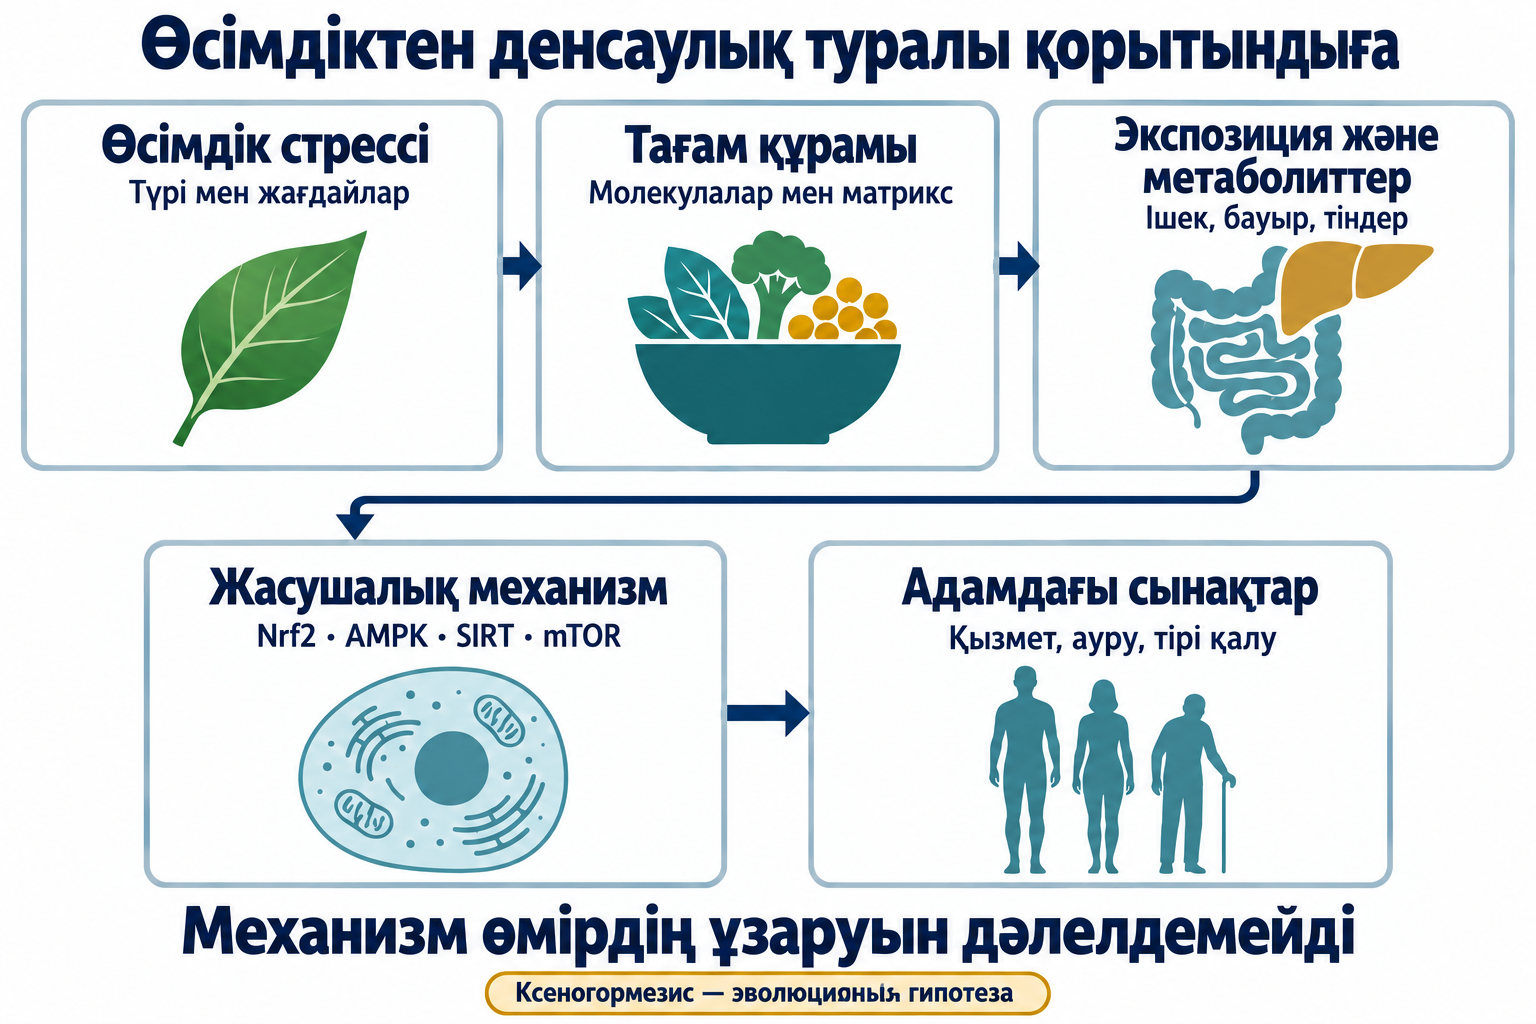
Құрғақшылық, ультракүлгін сәуле және патогендер өсімдіктің химиялық құрамын өзгертеді. Кейбір қорғаныш заттар жануар ағзасына түскенде ферменттермен, электрофильдік стресс сенсорларымен және энергия алмасу жолдарымен әрекеттеседі. Ксеногормезис осы байланысты эволюциялық тұрғыдан түсіндіреді: тұтынушы тағамдағы өзгерісті қолайсыз ортаның ерте белгісі ретінде пайдалануы мүмкін. Бұл тексеруге лайық гипотеза, бірақ стресс алған өсімдік немесе полифенол қоспасы адам өмірін ұзартады деген дәлел емес.
Өсімдікте не өзгергенін, қандай молекула мен метаболит тінге жеткенін, нысананың қалай жауап бергенін және нәтижесінің пайдалы болғанын бөлек анықтау қажет. Nrf2 белсенуі, AMPK фосфорлануы, ақуыз ацетилденуінің өзгеруі мен сенесценция маркерінің азаюы — әртүрлі оқиғалар. Олардың ешқайсысы жеке өзі сау өмір ұзақтығын өлшемейді.
1. Гипотеза нені түсіндіреді
1.1. Гормезис — жауап сипаттамасы
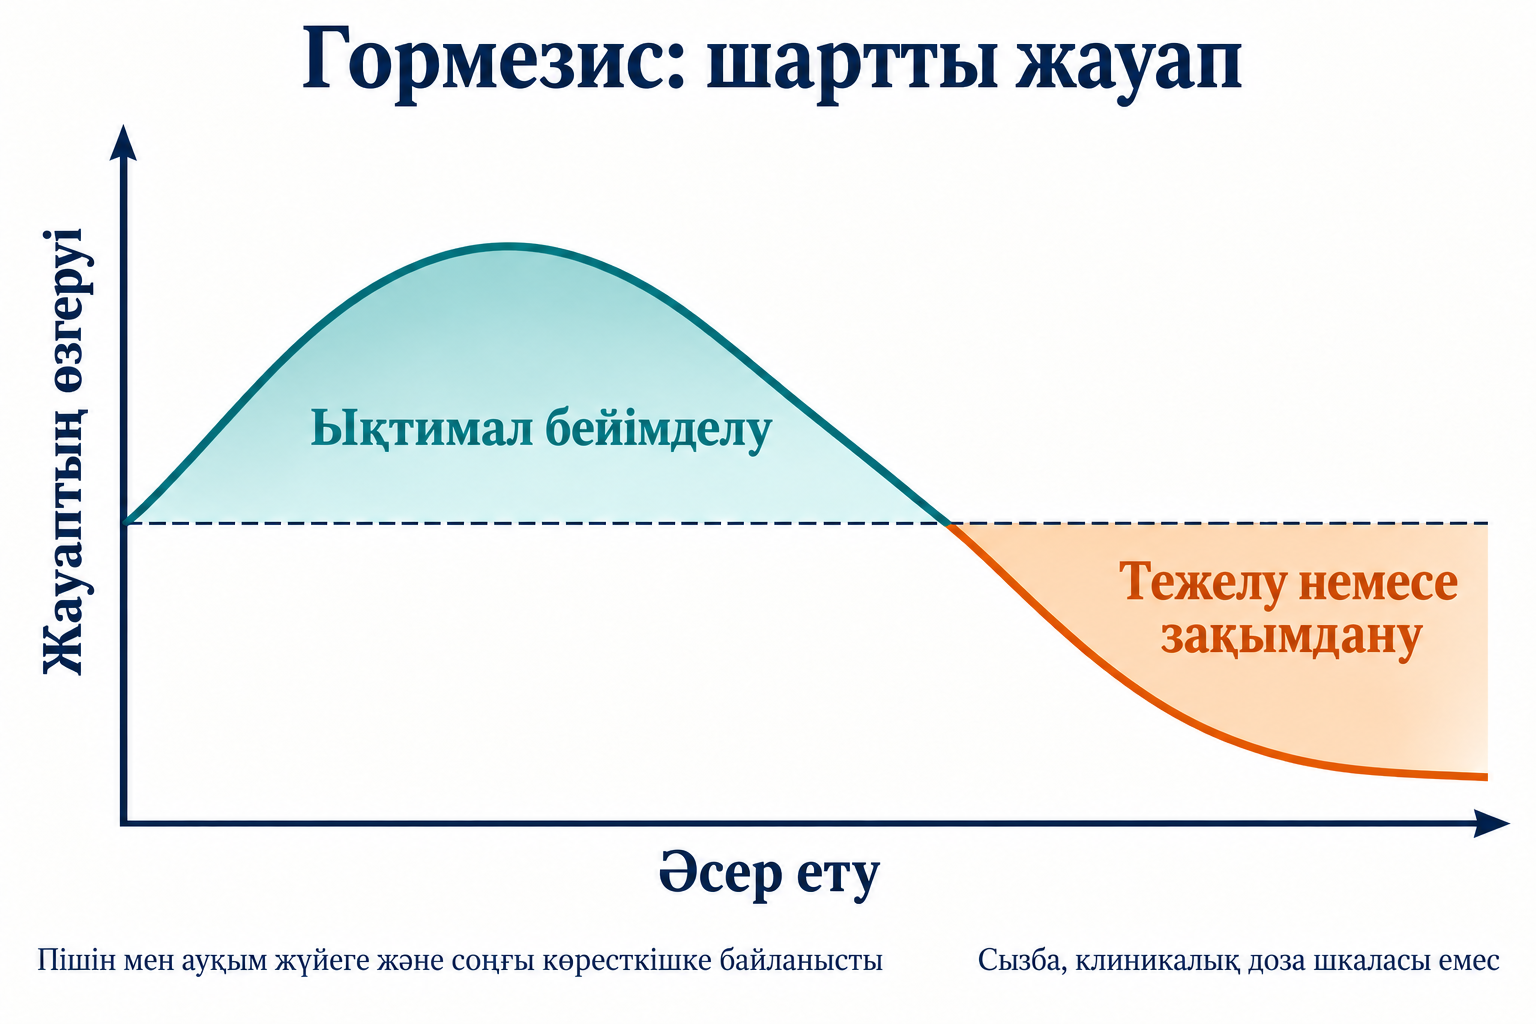
Гормезис дегеніміз таңдалған жауаптың әсерге екі фазалы тәуелділігі: әлсіз стимул бейімделуді қолдауы, күштірегі қызметті тежеуі немесе зақымдауы мүмкін. Соңғы көрсеткішке қарай қисық U немесе төңкерілген U түрінде болады. Бұл әр молекула, тін және ауру үшін әмбебап заң емес. Фармакология әртүрлі модельдерді қолданған; оның тарихын тек табалдырықсыз сызықтық тәуелділікке теңеу дұрыс емес.
Бейімделу қорғаныш ферменттерді, жөндеуді, ақуыз айналымын және энергия шығынын өзгерте алады. Сенсордың электрофильдік модификациясы немесе қысқа энергетикалық ығысу қайтымсыз зақымнан бұрын жауап туғызуы мүмкін. Міндетті бастапқы жарақат та, барлық қорғаныш жолдың бірдей бірнеше есе артуы да гормезистің шарты емес. Calabrese және Baldwin, 2003.
ΔR(D)=K+DaD−bDn,a,b,K>0,n>1
Бұл түсіндірмелік модельде бірінші мүше қанығатын бейімделуді, екіншісі өсетін шығынды көрсетеді. Ол зерттеуге сәйкестендірілген модель емес: параметрлер, әсер ауқымы және пайдалы бөлік бар-жоғы тәжірибемен анықталады. Ұзақтық, қайталау, ауру және өлшенетін көрсеткіш те маңызды. Бір көрсеткіштің жақсаруы басқа көрсеткіштің қауіпсіздігін дәлелдемейді.
1.2. Түраралық белгі және эволюциялық түсіндіру
Howitz пен Sinclair жануарлар өсімдік стрессінің химиялық белгісін «тыңдай» алады деп ұсынды. Қорғаныш метаболиттер азық тапшылығына дейін ресурстың нашарлауын білдіруі ықтимал. Қоректік тәуелділік пен сақталған жасушалық реттегіштер идеяны қисынды етеді, бірақ бейімделу құндылығы түрлерді және экологиялық жағдайды салыстыруды қажет етеді. Howitz және Sinclair, 2008.
Өсімдік молекуласының адам ақуызына байланысуы ақуыздың құрғақшылықты болжау үшін эволюцияланғанын көрсетпейді. Кең химиялық реактивтілік, ксенобиотиктен қорғану және құрылымдық үйлесімділік те түсіндіре алады. Ксеногорметин — ықтимал белгі атауы, фармакологиясы бірдей жеке химиялық класс емес.
Howitz және әріптестері шағын сиртуин белсендіргіштерін ашытқының репликативті өмірімен байланыстырды. Кейінгі жұмыстар ферменттік талдау мен субстратқа тәуелділікті нақтылады. Нәтиже барлық сиртуин мен адам тініне таралмайды; ресвератрол, птеростильбен және SIRT1 туралы мақала осы айырманы ашады.
1.3. Өсімдік қорғанысының бірнеше биосинтез жолы
Жасмонаттар, салицил және абсциз қышқылдары, этилен мен редокс-белгілер өсу мен қорғанысты реттейді. Фенилаланинаммиак-лиаза PAL фенилаланинді фенилпропаноид алмасуына енгізеді. CHS пен STS ацил-CoA субстраттарынан флавоноид және стильбен қаңқасын құрады; FLS флавонол түзілуіне қатысады.
L−phenylalaninePALtrans−cinnamate+NH3
Барлық қорғаныш зат бұл тармаққа жатпайды. Айқышгүлділердің глюкозинолаттары аминқышқылдардан түзіліп, күкірт қамтиды; глюкорафанин метионин алмасуымен байланысты. Тін зақымдануы изотиоцианат түзілуіне мүмкіндік береді. Зәйтүн секоиридоидтарын да PAL–CHS–STS өнімдерімен теңестіруге болмайды.
Пигмент сәулені тежейді, фитоалексин патогенді шектейді, жарақат өнімдері өсімдікқоректі жәндікті үркітеді. Бұлар алдымен өсімдікке пайдалы. Қорғаныш заттың көбеюі тұтынушыға кез келген мөлшерінің пайдалы екенін білдірмейді: кейбірі уытты немесе қорытылуды азайтады.
1.4. Гипотеза мен механизмді ажырату
Экстрактты бақылау сынауықпен салыстыру жеткіліксіз. Өсімдік стрессі, тағам химиясы, тұтынушы экспозициясы және ұсынылған нысанаға араласу өлшенуі керек. Сенсорды өшіру, қызметін қалпына келтіру және таза затты тағам матриксімен салыстыру себептік тізбектің бөліктерін анықтайды.
Эволюциялық мағына бөлек тексеріледі: жауап болжанған ортада тірі қалуды жақсарта ма, белгі арнайы таныла ма? Жақсы нәтиже бастапқы жасушалық стрессті міндетті түрде жоққа шығармайды. Ксеногормезис экстрактты барлық физиологиялық бейімделу жүктемесінің қауіпсіз алмастырушысы деп жарияламайды.
2. Ортақ жасушалық түйіндер
2.1. Keap1–Nrf2–ARE және электрофильдерді тану
NFE2L2 кодтайтын Nrf2 электрофильдер мен тотықтырғыштарға қарсы қорғанысты реттейді. Бастапқы жағдайда Keap1 димері Cul3–Rbx1 субстрат адаптері болып, Nrf2 убиквитинденуі мен протеасомалық ыдырауын қамтамасыз етеді. BTB домені димерлену мен Cul3 байланысына қатысады; аралық аймақта реактивті цистеиндер, Kelch доменінде ETGE және DLG тану орындары бар.
Мотивтердің әртүрлі аффиндігі субстрат бағдарын түсіндіреді, бірақ сандық тұрақтылар конструкция мен әдіске тәуелді. Cys151 немесе өзге цистеинді өзгерту тиімді убиквитинденуді бұзуы мүмкін. Dinkova-Kostova сульфгидрил топтардың маңызын көрсетті; барлық индуктор бір ғана цистеинді нысанаға алмайды.
Сульфорафан DLG «ілгегін» міндетті ашады деу тым қарапайым. Baird тәжірибесінде жабық кешен байланысқан Nrf2 босамай-ақ жиналды. Keap1 қайта айналымының бұзылуы жаңа синтезделген фактордың жиналуына мүмкіндік берді. Жалпы тұжырым — тиімді убиквитинденудің азаюы, әмбебап DLG ажырауы емес. Baird, 2013.
Ядрода Nrf2 шағын Maf ақуыздарымен ARE элементтеріне байланысады. Жауапқа NQO1, глутатион-S-трансферазалар, HMOX1, GCLC/GCLM, SLC7A11 арқылы цистин тасымалы және G6PD, PGD, ME1 арқылы NADPH түзілуі кіреді. NQO1 хинонды екі электронмен тотықсыздандырады; гемоксигеназа биливердин, темір және CO түзеді; GSSG қалпына келуі NADPH жұмсайды. Бір ген экспрессиясы бүкіл желінің қызметін көрсетпейді.
Ұзақ Nrf2 белсенуі ісік жасушасының тіршілігі мен емге төзімділігін де қолдай алады. Пайдасы тінге, уақытқа және ауруға тәуелді. Nrf2-ні барынша арттыру жалпы мақсат емес; өсімдік заттарының бәрі тікелей антиоксидант болмайды.
2.2. AMPK: энергия және белсену жолдары
AMPK құрамында катализдік α, реттеуші β және нуклеотид байланыстыратын γ суббірліктері бар. Thr172 фосфорлануы маңызды; LKB1 және кальцийге тәуелді CaMKK2 бөлек жолдарды қамтамасыз етеді. AMP аллостериясы мен дефосфорланудан қорғау бөлек оқиға; ADP те кешен күйіне әсер етеді.
2ADP⇌ATP+AMP
Аденилаткиназа тепе-теңдігі AMP-тің энергия тапшылығына сезімталдығын түсіндіреді. Кейбір зат белгілі концентрацияда тыныс алуды тежейді немесе ATP өзгертеді, басқалары сигнал ферменттеріне әсер етеді. I кешенін тежеу протон тасымалдаушы арқылы ажыратудан өзгеше; екеуі де барлық полифенолға тән емес. Жоғары жасушалық доза кезіндегі фосфо-AMPK уытты энергетикалық стресс болуы мүмкін.
AMPK ACC-ді тежеп, малонил-CoA мен CPT1 шектеуін азайта алады; HMGCR/SREBP арқылы липогенезге, Rab-GAP арқылы бұлшықет GLUT4 тасымалына ықпал етеді. PGC-1α фосфорлануы энергияны митохондриялық бағдарламамен байланыстырады. Қалдықтар мен белсену шамалары изоформаға және түрге тәуелді. Hardie, 2012.
2.3. Сиртуиндер: субстрат пен NAD орны
Сиртуиндік деацетилдену NAD⁺-ты косубстрат ретінде жұмсайды:
Protein−Lys−Ac+NAD+⟶Protein−Lys+NAM+OAcADPR
OAcADPR — O-ацетил-ADP-рибоза. SIRT1–SIRT7 орны мен деацилдену реакциялары бойынша ерекшеленеді; бір теңдеу барлық қызметін сипаттамайды. NAD⁺, NAM және ақуыз субстраты белсенділікті өзгертеді. NAD⁺/NADH қатынасы тиісті компартменттегі қолжетімді NAD⁺ өлшемін алмастырмайды.
Алғашқы STAC талдауларында флуоресцентті пептидтер қолданылып, тікелей белсену талқыланды. Hubbard табиғи субстраттың кейбір гидрофобты мотивтері аллостериялық жауапты қолдайтынын және Glu230 зерттелген активаторлар үшін маңызды екенін көрсетті. Бұл барлық субстратқа емес, тиісті жағдайға қатысты. PDB 4I5I — SIRT1 катализдік домені, NAD және EX527 тежегішінің аналогы; ресвератролы бар STAC құрылымы емес.
Cantó AMPK-ті NAD алмасуы мен SIRT1-ге байланыстырды. NAMPT NAM қайта пайдалануына қатысады, кофермент шығыны да желіні анықтайды. NR/NMN және NAD⁺ қалпына келу жолдары осыны ашады; бір полифенол SIRT1, митохондриялық SIRT3 және ядролық SIRT6-ны бірдей белсендірмейді.
SIRT1 PGC-1α, FOXO, RelA/p65 ацетилденуін өзгертеді; SIRT3 SOD2 және IDH2-ге, SIRT6 хроматин мен геном сақталуына қатысады. PGC-1α, ядролық тыныс алу факторлары мен TFAM бағдарламасы NFE2L2/Nrf2-ден бөлек. SOD2 реттелуі барлық mtROS-ты жоймайды, SIRT6 бір ғана ДНҚ үзілісін жөндеу түрімен шектелмейді.
2.4. mTORC1, аутофагия ағыны және митофагия
Raptor мен mLST8 бар mTORC1 S6K және 4E-BP1 арқылы өсу мен ақуыз синтезін реттейді. AMPK оны TSC2–Rheb және Raptor арқылы шектей алады. Екі жол ULK1-ге әсер етеді. Kim зерттелген жүйеде ULK1 тікелей фосфорлануын көрсетті; белгілі сайт әмбебап емдеу кестесін бермейді.
ULK1–ATG13–FIP200–ATG101, Beclin-1/VPS34 және PI3P фагофор түзуге қатысады. ATG12–ATG5–ATG16L1, ATG7/ATG3 мембрана дамуы мен LC3-тің фосфатидилэтаноламинмен липидтелуін қолдайды. p62 сияқты адаптерлер жүктің таңдалған бөлігін жою жүйесіне жалғайды. Аяқталу үшін лизосомамен қосылу және ыдырау қажет.
Көп LC3-II немесе аутофагосома түзілу артуын да, аяқталудың бөгелуін де білдіреді. Ағын динамикалық өлшенеді; бір маркер липофусцин мен агрегаттың толық жойылуын көрсетпейді. Деполяризацияда PINK1 сыртқы мембранада тұрақтанып, убиквитинді фосфорлайды және Parkin таңбалауын қосады; NDP52 мен optineurin жүктің ұсталуына қатысады. Өзге митофагия жолдары бар. Уролитин A және бұлшықет қызметі модельдерді ажыратады: күшейген митофагия мутантты мтДНҚ-ның таңдамалы жойылуын дәлелдемейді.
3. Химиялық алуантүрлілік пен нысаналар
3.1. Ресвератрол және птеростильбен
Стильбен қаңқасы этиленмен жалғасқан екі ароматты сақинадан тұрады. Транс-ресвератролдың 3, 5, 4′ гидроксилдері бар; птеростильбен екеуін метоксилге алмастырады. Жарық изомер қатынасын, метилдену липофильдік, конъюгация және таралуды өзгертеді. Құрылым бір түрдің мүлде белсенді емесін немесе адам миына артық өтуін дәлелдемейді.
Жүзім мен жапон таран өсімдігі ресвератрол көзі; птеростильбен кей жидектер мен Pterocarpus сүрегінде кездеседі. Тағам стандартталған экстракттан өзгеше. Жоғары биожетімділік сандары көбіне жануардың нақты жағдайына қатысты. Riche қысқа қауіпсіздік сынағы өмір ұзақтығын өлшеген жоқ.
3.2. Кверцетин және физетин
Флавонолда C₆–C₃–C₆ қаңқасы, 3-гидроксил мен 4-оксотоп бар. Кверцетинде бес гидроксил, соның ішінде 3′/4′ катехол жұбы; физетинде 5-гидроксил жоқ. Бұл сутектік байланыс пен алмасуды өзгертеді, бірақ жалғыз сақина бұрылысынан сенолитикалық таңдамалылық шығарылмайды.
Гидроксил және карбонил металды байланыстыру мен редоксқа қатысады. Кверцетин концентрацияға қарай киназалармен және басқа ақуыздармен әрекеттеседі. Хелаттау тотығуды міндетті тежемейді: кешен мен орта маңызды, оны Фентон реакциясы көрсетеді.
Fe2++H2O2⟶Fe3++OH−+∙OH
Каперс, пияз, қарақұмық кверцетин; бүлдірген және кей жеміс физетин береді. Сорт, мүше, үлгі дайындау мөлшерді өзгертеді. Тағамдық деңгей жасуша мәдениетіндегі сенолитикалық концентрацияға тең емес.
3.3. Тін бұзылғанда сульфорафан түзілуі
Сульфорафан — алифатты изотиоцианат, полифенол емес. Ұсақтау не шайнау глюкорафанин мен мирозиназа әрекетін мүмкін етеді. Тиогликозид гидролизі және қайта құрылу өнім береді; pH, спецификатор ақуыздар мен өңдеу қоспаны өзгертеді. Синигрин басқа тармаққа жатады, сульфорафан ізашары емес.
R−SH+R′−N=C=S⇌R′−NH−C(=S)−S−R
N=C=S тиолмен дитиокарбамат аддуктын түзеді, Keap1 модификациясы мен глутатион алмасуына қатысады. Қайтымдылық кез келген концентрацияны қауіпсіз етпейді және барлық реакцияны Cys151-мен шектемейді. Zhang фермент индукторын бөліп алды; Fahey ізашары мол өскіндерді зерттеді. Бұл барлық адам обырынан қорғану дәлелі емес.
3.4. Куркумин және талдау қиындығы
Куркумин — фенол топтары және конъюгацияланған дикетоны бар дифенилгептаноид. Кето–енол қатынасы еріткіш пен жағдайға тәуелді. Ерігіштік, ыдырау, ақуыз байланысы және тотығу қолжетімді затты өзгертеді; барлық суда бірдей таутомер болмайды.
Электрофиль аймақтар цистеин сияқты нуклеофильдермен әрекеттеседі. Nrf2, IKK/NF-κB, STAT3 өзгерісі ерекшелік, тұрақтылық және талдауға кедергі жағынан тексеріледі. Көп өзгерген белгі аса арнайы ақпараттық лигандты дәлелдемейді. Жеткізу пайдасы клиникалық нәтижемен анықталады.
3.5. EGCG: сусын мен экстракт айырмасы
Эпигаллокатехин-3-галлат — көк шайдың галлоилденген флаван-3-олы. Фенол топтары редоксты, стереохимия мен икемділік ақуыз байланысын анықтайды. 67-кДа ламинин рецепторы, сигнал ферменттері және эпигенетикалық нысаналар зерттеледі, бірақ бұл барлық жолға бір мезгілдегі клиникалық әсер емес.
Мәдениет ортасындағы тотығу H₂O₂ түзіп, талдауды өзгертеді. Бастапқы затты орта мен тотығу өнімінен ажырату керек. Концентрлі экстракт шайдан өзгеше; Dostal ALT жоғарылауын көрсетті, сондықтан табиғи электрофильдің әмбебап қауіпсіздігі жоқ.
3.6. Зәйтүн секоиридоидтары және гидрокситирозол
Олеуропеин — гидрокситирозол бөлігі бар гликозилденген секоиридоид. Глюкоза бөлінгенде агликон түзіледі; бос гидрокситирозол үшін қосымша гидролиз және басқа өзгеріс қажет. Бір β-глюкозидаза реакциясы бүкіл молекуладан оны бірден босатпайды.
Гидрокситирозол — катехолды фенилэтаноид. Сорт, пісу, өңдеу және сақтау май құрамын өзгертеді. Бос зат, туынды, матрикс пен таза препарат тең емес. ORAC химиялық тесті сипаттайды, тамыр қорғанысын не өмір жылын өлшемейді. Майлы рацион дерегі бір фенол әсерін бөлмейді.
Қосылыс
Формула
Молярлық масса, г/моль
Құрылым ерекшелігі
Ресвератрол
C₁₄H₁₂O₃
228,25
Тригидроксистильбен
Птеростильбен
C₁₆H₁₆O₃
256,30
Екі метоксил
Кверцетин
C₁₅H₁₀O₇
302,24
Пентагидроксифлавонол
Физетин
C₁₅H₁₀O₆
286,24
Тетрагидроксифлавонол
Сульфорафан
C₆H₁₁NOS₂
177,29
Изотиоцианат және сульфоксид
Куркумин
C₂₁H₂₀O₆
368,38
Конъюгацияланған дикетон
EGCG
C₂₂H₁₈O₁₁
458,37
Галлоилденген катехин
Олеуропеин
C₂₅H₃₂O₁₃
540,51
Секоиридоид гликозиді
Гидрокситирозол
C₈H₁₀O₃
154,16
Катехолды фенилэтаноид
Формула мен масса сәйкестікті көрсетеді, тиімді дозаны емес. Белсенділік үшін тазалық, изомер, бос концентрация және нақты жүйе қажет.
4. Агроэкология және тағам құрамы
4.1. Өсу мен қорғаныс қарапайым ауыстырғыш емес
Көміртек–нутриент теңгерімі және өсу–дифференциация модельдері өсімдік ресурсын сипаттайды. Азот, жарық, су метаболитке әсер етеді, бірақ түр, мүше, даму және стресс күші жауапты өзгертеді. Көміртек тек биомассаға не тек қорғанысқа жұмсалмайды. Bryant, 1983.
Пестицид барлық стресс белгісін жоймайды, әр фенилпропаноидты міндетті тежемейді. Barański метаталдауы өсіру жүйелерінің орташа айырмасын көрсетті, әр өнеркәсіптік өнімдегі бірнеше есе тапшылықты емес. Құрам тұтынушы денсаулығын өлшемейді және гипотезаны дәлелдемейді.
4.2. Су, UVR8 және элиситорлар
Шектеулі суару гормондар мен жемісті өзгерте алады; қатты құрғақшылық фотосинтез бен өнімді азайтады. Жаңа массаға шаққан концентрация су азайғандықтан өсуі мүмкін. Құрғақ масса, бір жемістегі мөлшер және жалпы өнім керек; жүздеген пайыз әмбебап ереже емес.
UV-B UVR8–COP1–HY5 арқылы қабылданып, қорғаныш пигментті арттыра алады. Қабырға компоненті тәрізді биологиялық элиситорлар иммундық желіге әсер етеді. Әр дақылда өнім, құрам және зақым тексеріледі; барлық тағамды жақсартатын ортақ қауіпсіз стресс жоқ.
4.3. Жабайы өсімдік пен қауіпсіздік
Жабайы жидек пен тау өсімдігінің құрамы қызықты болуы мүмкін. Бірақ салыстыру генетика, топырақ, пісу, мүше және әдісті араластырады. Әр жабайы өсімдіктің барлық ксеногорметин бойынша басымдығы анықталмаған.
Химиялық байлық түрді дұрыс анықтауды және ластануды бағалауды алмастырмайды. Өсімдік қорғанысы мен адам пайдасы бөлек сұрақ. Агроэкологиялық шығу тегі зерттеу айнымалысы, дербес клиникалық қасиет емес.
5. Тағамнан нысана тінге дейінгі экспозиция
5.1. Сіңу және алғашқы өту алмасуы
Таза молекула әсері қолжетімді экспозицияда ғана маңызды. Ресвератрол жақсы сіңеді, бірақ тез конъюгацияланады; бос бастапқы молекула туындылардың жалпы мөлшерінен аз. Walle, 2004. Төмен биожетімділік сіңудің жоқтығын, жоғары сіңу барлық тінге жетуді білдірмейді.
UGT глюкуронид, SULT сульфат түзеді, COMT кей катехолды метилдейді. Ерігіштік, тасымал, нысана өзгереді; конъюгат бірден белсенді емес қалдық та, міндетті пролекарство да болмайды.
ArOH+UDP-glucuronate⟶ArO-glucuronide+UDP.
Сызба реакция түрін көрсетеді. Фермент орны, изомер және шығарылу экспозицияны анықтайды. Капсула дозасы, плазма деңгейі және жасуша ішіндегі концентрация бөлек шамалар.
5.2. Микробиота субстратты өзгертеді
Сіңбеген зат тоқ ішекке жетеді. Микроб ферменті гликозид пен сақинаны бұзып, фенол қышқылы және басқа өнім түзеді. Эллагитаннин эллаг қышқылы арқылы уролитинге айналуы мүмкін; уролитин A — дибензо-α-пирон туындысы. Бұл метаботипке тәуелді, барлығында бірдей емес.
Дайдзеиннен эквол түзу де тиісті микроб қауымын қажет етеді. Бірдей тағам бірдей экспозиция бермейді; барлық метаболит гематоэнцефалдық тосқауылдан өтпейді. Уролитин A енгізу мен өсімдік ізашарын жеу бөлек салыстырылады. Ryu, 2016; Andreux, 2019.
5.3. Жергілікті деконъюгация мен мембрана
β-Глюкуронидаза кей глюкуронидтен агликонды белгілі жағдайда босатады. Ishisaka кверцетин туындысын макрофаг моделінде зерттеді. Бұл жергілікті алмасуды қолдайды, бірақ әр полифенолдың әр қабынған мүшеге емдік жеткізілуін дәлелдемейді.
Липофиль зат мембранада таралып, ақуызбен өзгеше әрекеттесе алады. Бұл белсенді концентрацияның әмбебап жүз есе артуы емес. Бос фракция, жасушалық таралу және нысанамен байланыс өлшенеді.
5.4. Жасуша мәдениеті мен адам арасындағы алшақтық
Жасушалық тәжірибеде микромолярлы деңгей жиі қолданылады, тағамнан кейін бос молекула аз болуы мүмкін. Көшіру үшін ұзақтық, ақуыз байланысы, метаболит пен уыттылық керек. Микробиота, мембрана және деконъюгация алшақтықты автоматты жаппайды.
Тексеру фармакокинетиканы нысана әсері және нәтижемен жалғайды. Nrf2 тек зақымдайтын концентрацияда өзгерсе, пайдалы тағамдық бейімделу дәлелденбейді. Тінге жеткен метаболит өз белсенділігімен тексеріледі, агликон қасиетін түгел мұраламайды.
6. Денсаулық және өмір ұзақтығы туралы деректер
6.1. Қарапайым ағза мен сүтқоректі
Ашытқы мен омыртқасыз ген және қоректенуді зерттеуге мүмкіндік береді. Тірі қалу штамм, тағам, еріткіш пен өлім талдауына тәуелді. Howitz, 2003; Wood, 2004. Сүтқоректіде жыныс, басталу жасы мен патология маңызды.
Baur, 2006, жоғары калориялы рационда денсаулық пен тірі қалуды жақсартты. Pearson, 2008, стандартты рационда кей қызметтің жақсарғанын, бірақ өмір ұзармағанын көрсетті. Диета патологиясын азайту қалыпты өмір ұзақтығын арттыруға немесе калория шектеуді әмбебап қайталауға тең емес.
6.2. Кардиометаболизм және рацион
PREDIMED жоғары қауіптегі 7447 адамда зәйтүн майы не жаңғақ қосылған Жерорта теңізі рационын зерттеді. 2018 қайта талдауы рандомизация рәсімінің ауытқуын ескерді. Ірі жүрек-қантамыр оқиғасының азаюы зерттелген рационды қолдайды, гидрокситирозолды бөлек немесе эволюциялық механизмді емес. Estruch, 2018.
Таза ресвератрол сынағы біркелкі емес. Poulsen, 2013, семіздігі бар 24 ер адамда төрт аптадан кейін клэмппен өлшенген инсулин сезімталдығы мен бірқатар көрсеткішті жақсартпады. AMPK, SIRT1 немесе FOXO пайдаға кепіл емес: бауыр FOXO1 глюконеогенезді қолдайды. Бағыт тін мен күйге тәуелді.
6.3. Жүйке жүйесі және клиникалық алшақтық
Тәжірибе кей фитохимиялық затты қабыну, митохондрия және CREB–BDNF-ке байланыстырады; FNDC5 пен APP-тің ADAM10 арқылы өңделуі де талқыланады. Нейрон мәдениеті деменция алдын алуын не адам жадының жақсаруын көрсетпейді. Ми экспозициясы мен тиісті клиникалық көрсеткіш қажет.
Микроглияны M1/M2-ге бөлу күйлердің алуантүрлілігін қарапайым етеді. Бір қабыну маркерінің азаюы нейрон желісін қалпына келтірмейді. Бастапқы зат, метаболит, иммун жасушасы мен таным нәтижесі ажыратылады.
6.4. Сенолитик, сеноморфик және таңдамалылық
Сенесцентті жасуша SASP-ті қолдайды, бірақ p16 әрқашан қайтымсыз сенесценция емес, SASP те барлық жағдайда зиянды емес. Сенолитик таңдалған жасушаларды азайтады; сеноморфик секрецияны өзгертеді. Кверцетин мен физетин әсері жасуша түрі және стресс моделіне тәуелді. Zhu, 2015; Yousefzadeh, 2018.
Hickson, 2019, диабеттік бүйрек ауруы бар тоғыз пациентте дазатиниб пен кверцетинді ашық зерттеп, қысқа курстан кейін тіндік маркерді өлшеді. Бұл адам өмірі не кверцетиннің жеке әсері емес. Физетин, SASP және сенолитикалық таңдамалылық айырманы ашады. Тышқан дозасы мен циклі өздігінен қолданатын адам кестесін бермейді.
6.5. Әртүрлі көрсеткіштің қорытындысы бөлек
Антиоксидант жауап, бұлшықет күші, инфаркт және жалпы өлім әртүрлі нәтиже. Бір жақсаруды барлық қартаю баяулауы деуге болмайды. Бақылау, іріктеме, ұзақтық, бастапқы қауіп пен жағымсыз құбылыс маңызды.
Зерттеу және модель
Өлшенген нәтиже
Шығарылмайтын қорытынды
Baur, 2006: жоғары калориялы тышқан
Тірі қалу және алмасу
Барлық рационда ұзақ өмір
Pearson, 2008: стандартты рацион
Кей қызмет, өмір ұзармаған
Қызмет жақсаруы ұзақ өмірге тең
Estruch, 2018: 7447 адам
Рационнан кейін жүрек-қантамыр оқиғасы
Таза фенол әсері немесе ксеногормезис дәлелі
Poulsen, 2013: 24 ер адам, төрт апта
Инсулин және өзге көрсеткіште анық пайда жоқ
Міндетті ресвератрол пайдасы
Hickson, 2019: тоғыз пациент, ашық
D+Q кейін тін маркерлері
Жеке кверцетин, өлім азаюы немесе дайын алдын алу
Andreux, 2019: ерте уролитин A
Қауіпсіздік, молекулалық көрсеткіштер
Адам өмірінің ұзаруы не эллагитаннинмен теңдік
7. Тағам, жеткізу және қолдану жағдайы
7.1. Рацион — көп құрамды араласу
Көкөніс, жидек, жаңғақ пен май бірге талшық, май қышқылы, микронутриент пен фитохимиялық зат береді. Әсер бір стресс белгісіне сыймайды. Алуантүрлі рацион әр полифенолдың міндетті тәуліктік дозасын анықтамайды.
Ұсақтау және қыздыру матрикс пен фермент өнімін өзгертеді, әсіресе брокколи мирозиназасын. Зәйтүн мен гликозид үшін гидролиз маңызды. Шикі не қою өнім әрдайым жақсы емес.
7.2. Формуляция экспозицияны өзгертеді
Липосома, мицелла, бөлшек және май кей заттың еруі мен сіңуін өзгертеді. Нақты түр, метаболит және нәтиже салыстырылады; технология атауы миға жеткізуді кепілдемейді. Жоғары экспозиция зиянды да арттыра алады.
Пиперин мен қоспа компоненті алмасу және тасымалды өзгертіп, дәрімен әрекеттеседі. «Биокүшейткіш» өзара әсер тексеруін алмастырмайды. Бір форма барлық куркумин не ресвератрол өнімін білдірмейді.
7.3. Тәулік уақыты мен қалпына келу
Энергия және стресс жолдары циркадтық реттелумен байланысады. Тәжірибеде енгізу уақыты тамақ пен белсенділікпен бірге тіркеледі. Бұл заттар үшін ортақ таңғы не кешкі клиникалық терезе анықталмаған.
Ұзақтық пен қалпына келу маңызды, бірақ еркін қоспа циклін дәлелдемейді. Физетин импульсі не түнгі уролитин жасуша сызбасынан шықпайды. Мақсатты топта режимдер тікелей салыстырылады.
7.4. Ортақ жол синергияны дәлелдемейді
Nrf2, AMPK, сиртуин, mTOR әсерлері комбинацияны зерттеуге себеп болады. Синергия, антагонизм немесе шамадан тыс стресс болуы мүмкін. Әртүрлі нысана біріктірілген пайдаға дәлел емес.
D+Q құрамында дәрі бар, ол бөлек зерттеу араласуы. Пияз бен жидек жеуге тең емес және кез келген «ұзақ өмір қоспасын» растамайды. Әр компонент, қоспа және бақылау салыстырылады.
7.5. Өнім мен адам қауіпсіздігі
Тағам мен қою экстракт экспозициясы бөлек. 1075 әйел қатысқан бір жылдық рандомизацияланған көк шай экстракты сынағында ALT жоғарылады. Dostal, 2015. Табиғи шығу бауыр зақымын, өзара әсерді немесе төзбеушілікті жоққа шығармайды.
Бауыр, бүйрек, жүктілік, дәрі және жоспарлы процедура қауіпке әсер етеді. Барлық полифенол үшін бір CYP механизмі немесе операция алдындағы бір тоқтату мерзімі жоқ. Бақылау клиникалық жағдайға тәуелді; мақала міндетті талдау не емдеу кестесін бермейді.
8. Күш рейтингісіз салыстыру
8.1. Химиялық класс және дәлел деңгейі
Реактивтілік, алмасу және нысана өзгеше. Кесте көшіру кедергілерін көрсетеді, уәде етілген өмір жылдарын емес. Байланысу тұрақтысы, жасушалық EC50 және клиникалық доза өзара алмастырылмайды.
Зат
Зерттелетін қасиет
Негізгі шек
Ресвератрол
Стильбен, контексттік SIRT1 және энергия
Субстрат пен төмен бос экспозиция
Птеростильбен
Метоксилденген стильбен
Жануар кинетикасы адам артықшылығын көрсетпейді
Кверцетин
Флавонол, метаболит, қабыну, сенолитикалық модель
Тін, конъюгация, D+Q-дан айырма
Физетин
Флавонол, сенотерапиялық тәжірибе
Жасуша мен модель, адам ұзақ өмірі дәлелсіз
Сульфорафан
Изотиоцианат, тиол, Nrf2
Ізашардың айналуы және электрофильдік стресс
Куркумин
Полифенолды диарилгептаноид
Ерігіштік, тұрақтылық, артефакт
EGCG
Галлоилденген катехин
Мәдениет тотығуы, экстракт қауіпсіздігі
Олеуропеин
Секоиридоид, гидролиз өнімдері
Матрикс, PREDIMED жеке әсерді бөлмейді
Гидрокситирозол
Катехолды фенол спирті
Химиялық антиоксидант клиникалық пайда емес
8.2. Жасушалық төзімділікке тоғысу
Редокс, энергия және зақымдалған компонент айналымы байланысты, бұл ғылыми қызығушылықты түсіндіреді. Бірақ мұндай тоғысу тағамнан тыс араласуда да бар. Өсімдік стрессін эволюциялық тануды көрсету үшін белгі, тұтынушыға жету және бейімделу нәтижесі қажет.
Төзімділіктің шегі бар. Ісік жасушасын қорғау, қажетті өсуді тежеу немесе аутофагияны артық өзгерту зиянды болуы мүмкін. Зерттеу барлық жолды барынша қосудан гөрі пайдалы жауаптың жағдайын, шығынын және ұзақтығын анықтайды.
9. Қорытынды және әдіс
Ксеногормезис өсімдік экологиясын тұтынушы бейімделуімен тексерілетін гипотеза арқылы жалғайды. Нақты зат Nrf2, AMPK, сиртуин, mTOR және аутофагияны зерттеуге мүмкіндік береді. Молекула, экспозиция, нысана және нәтиже өлшенгенде тұжырым күштірек, адам өміріне еркін көшіргенде әлсізірек.
Рацион пайдасы, таза зат әсері және эволюциялық тексеру бөлек зерттеуді қажет етеді. Бірінен екіншісі автоматты шықпайды. Оларды ажырату идеяның мәнін әмбебап уәде мен өздігінен емдеусіз сақтайды.
Мақала қалай дайындалды
Түпнұсқа толық оқылып, өсімдік биохимиясы, агроэкология, фармакокинетика, жасушалық жол, қызметтік нәтиже және қауіпсіздік сақталды. SIRT1 мен PDB 4I5I, Keap1–Nrf2, стандартты рациондағы өмір, макрофаг деконъюгациясы, теріс ресвератрол сынағы, ерте D+Q және шай экстракты қауіпсіздігі нысаналы бастапқы дерекпен тексерілді. Ishisaka авторлығы және Hubbard PMID түзетілді.
Кей дерек беті қолжетімділікке байланысты тек аннотация не индекстелген мәтін берді; барлық толық мәтін оқылды деп айтылмайды. Бұл жүйелі шолу емес, таңдамалы тексеру. Кесте модель мен нәтижені бөледі; сурет клиникалық дозасыз тұжырымдық сызба. Жебе дәлел қажет кезеңді көрсетеді, анықталған себептілік емес. Жаңа тәжірибе немесе жеке қоспа хаттамасы ұсынылмайды.
Жиі қойылатын сұрақтар
Nrf2 немесе AMPK белсенуі ұзақ өмірді дәлелдей ме?
Жоқ. Жасушалық жол — жеке көрсеткіш. Денсаулық пен тірі қалу туралы тұжырым тиісті нәтижені, экспозицияны және қауіпсіздікті қажет етеді.
Стресс алған өсімдік әрдайым пайдалырақ па?
Жоқ. Түр, жағдай және стресс күші маңызды; жаңа масса концентрациясы су азайғанда өсуі мүмкін. Қорғаныш химиясының көбеюі адам дозасының пайдасын кепілдемейді.
Жасуша тәжірибесі неге қоспа дозасын анықтамайды?
Мәдениет концентрациясы сіңу, конъюгация және шығарылудан кейінгі бос тіндік деңгейден өзгеше. Матрикс пен метаболит те әсер етеді; клиникалық режим бөлек сыналады.
Ортақ комбинация не қабылдау уақыты бар ма?
Ортақ жол синергияны дәлелдемейді. Қоспа, цикл және уақыт мақсатты топта тікелей салыстырылуы керек; мақала өздігінен емдеу хаттамасын бермейді.