Уролитин A: PINK1/Parkin және бұлшықет төзімділігі — NutriFit
Уролитин A: PINK1/Parkin митофагиясы, бұлшықет қызметі және дәлел шектері
Эллагитанниндердің микробтық каскадынан убиквитиндік митофагияға және адамдардағы сынақтарға дейін: бастапқы нәтижелер, қосымша сигналдар, фармакокинетика және уролитин A қауіпсіздігі.
Уролитин A-ны жиі бір ғана жебемен сипаттайды: тағамдық эллагитанниндер → митофагия → күшті бұлшықет. Осы буындардың арасында әртүрлі биологиялық жүйелер мен өлшеу тәсілдері бар. Бактериялық түрлену тоқ ішектің саңылауында, конъюгация энтероцит пен бауырда, зақымдалған митохондрияны тану жасушаның ішінде жүреді, ал бұлшықет күші мен жүру — адамдағы нәтижелер. Гипотезаның қисынды болуы оның әр буыны адам бұлшықетіне арналған пероральді препарат үшін расталды дегенді білдірмейді. Бұл шолуда молекулалық механизм егжей-тегжейлі қарастырылып, содан кейін өлшенген клиникалық нәтижелермен және оларды түсіндіру шектерімен салыстырылады.
1. Эллагитанниннен уролитин метаботипіне дейін
1.1. Бастапқы химиялық зат және оның тосқауылдары
Эллагитанниндер — гексагидроксидифен қышқылы мен қанттардың гидролизденетін эфирлері. Олар анарда, кейбір жаңғақтар мен жидектерде кездеседі; мөлшері мен құрамы түріне, сортына және өңдеу әдісіне байланысты. Анар пуникалагині (C₄₈H₂₈O₃₀; шамамен 1084,7 г/моль) ірі полярлы молекуланың шағын ішек метаболитіне тең емес екенін көрсетеді: бастапқы танниннің сіңуі шектеулі. Гидролиз бен лактонизация эллаг қышқылын (C₁₄H₆O₈; шамамен 302,2 г/моль) босатады. Молекуланың кішіреюі оның суда нашар еруін және құбылмалы сіңуін жоймайды. Сондықтан тамақ пен қоспаны салыстырғанда танниннің, эллаг қышқылының, бос уролитиннің және оның конъюгаттарының концентрацияларын бірінің орнына бірін қолдануға болмайды.
Уролитин A құрылымы — 3,8-дигидрокси-6H-бензо[c]хромен-6-он (C₁₃H₈O₄; шамамен 228,2 г/моль). Бұл — анар шырынының өзгермеген компоненті емес, бактериялық қауымдастық түзетін метаболит. Тағамда басқа фенолдық қосылыстар, талшық пен қоректік заттар да болады, сондықтан диета мен оқшауланған уролитин әсерлерінің айырмасын уролитин A өндіретін адамдардың үлесіне ғана телуге болмайды.
1.2. Ішектегі реакциялар тізбегі
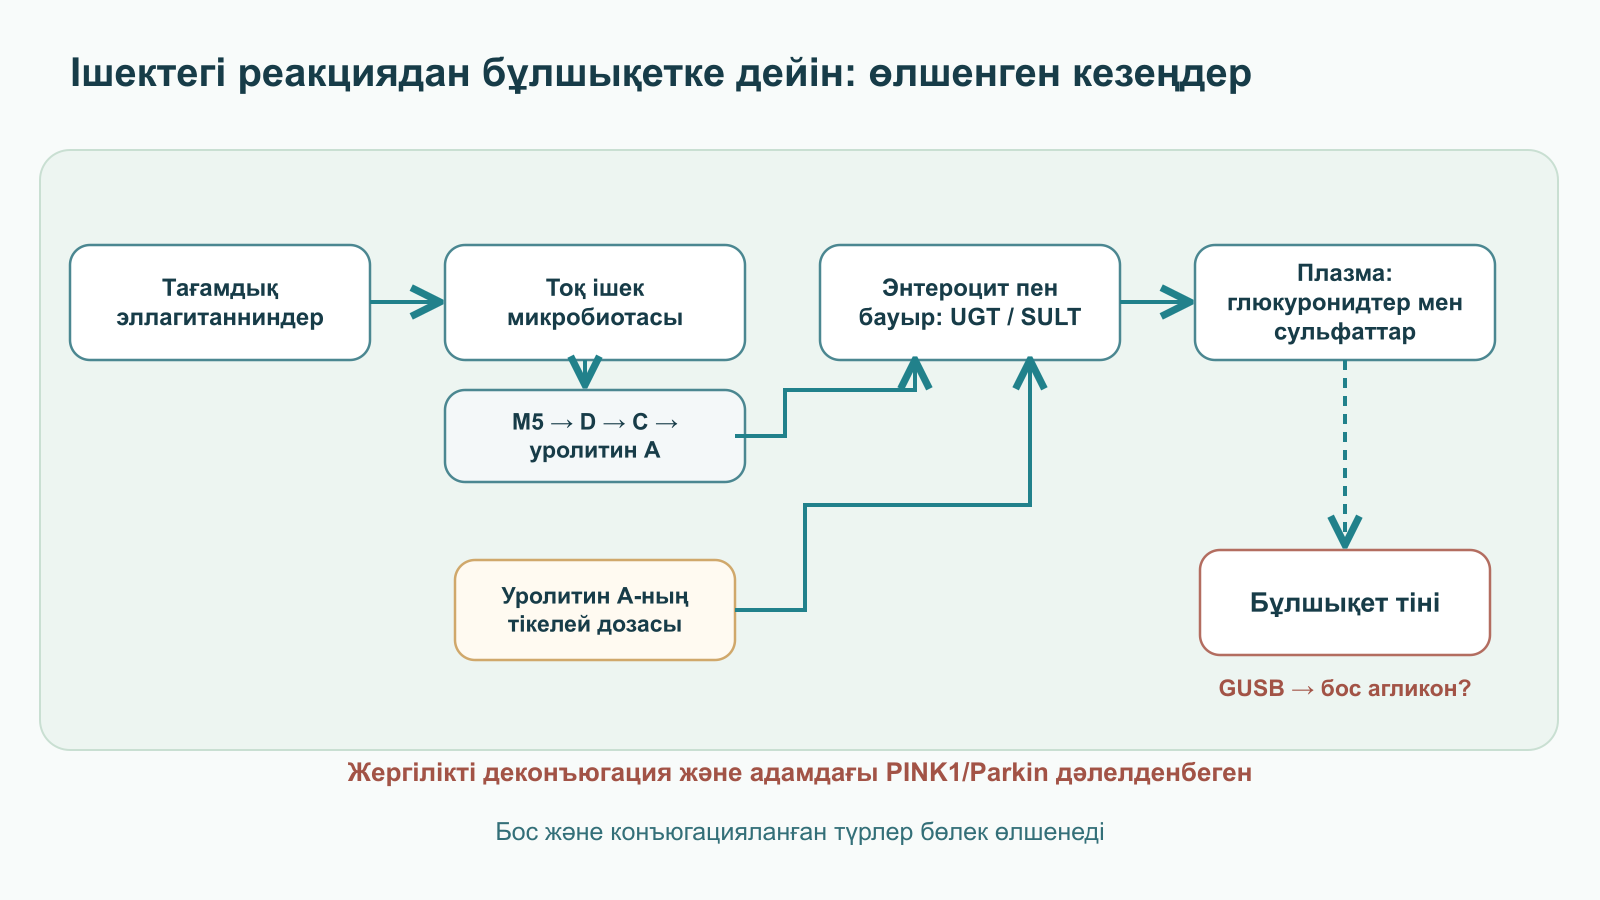
Эллагитанниндер гидролизденгеннен кейін эллаг қышқылы ішектің микробтық лактон сақинасын ашу, декарбоксилдеу және кезекпен дегидроксилдеу реакциялары жүретін бөлімдеріне жетіп, уролитиндер тобын түзеді. Түрлену картасын шартты түрде былай жазуға болады:
эллагитаннингидролизэллагқышқылымикробтықреакцияларуролитин M5→уролитин D→уролитин C→уролитин A.
Бұл жазба гидроксил топтарының азаю логикасын көрсетеді, бірақ әр штамм барлық сатыны орындайды немесе әр адамда аралық заттар үнемі осы ретпен пайда болады дегенді білдірмейді. M5 — бес гидроксилі бар аралық өнім; D мен C-де тиісінше төрт және үш гидроксил тобы бар; A мен изоуролитин A — орны бөлек дигидроксилденген изомерлер. Кейінгі тармақ уролитин B-ға апаруы мүмкін. Гидроксилдердің орны ферменттермен әрекеттесуге және өлшенген белсенділікке әсер етеді; барлық изомерді баламалы деуге болмайды.
Бөлініп алынған Gordonibacter urolithinfaciens пен Gordonibacter pamelaeae эллаг қышқылы түрленуінің ерте сатыларын атқара алады, ал Ellagibacter isourolithinifaciens изоуролитин A түзуші ретінде сипатталған. Осы таксондарды табу уролитин A толық синтезделетінін өздігінен дәлелдемейді: өнім қауымдастықтың функционалдық құрамына, өсіру жағдайына, субстратқа және транзит уақытына тәуелді. Адам ағзасындағы соңғы дегидроксилдеуді орындайтын нақты микроб бір сенімді анықталған «міндетті» түрге сыймайды. Синтрофия эксперименттік гипотеза ретінде пайдалы, бірақ бұл сатыны өсірілмейтін клостридиялар мен молибденді дегидроксилазаға дәлелденген әмбебап жол ретінде телу қолдағы деректен асып кетер еді.
1.3. A, B және 0 метаботиптері: фенотип, диагноз емес
Эллагитаннинмен стандартталған жүктемеден кейін зерттеушілер уролитин A басым түзілетін UM-A-ны, A-мен бірге изоуролитин A және/немесе уролитин B пайда болатын UM-B-ны, сондай-ақ қолданылған аналитикалық шекте уролитин анықталмаған UM-0-ді ажыратады. Метаботипті белгілеу тест алдындағы рационға, сынама алу уақытына, матрицаға (несеп не плазма), талдау сезімталдығына және популяцияға тәуелді. Оны геномның өзгермейтін қасиетіне, «дисбиоз» диагнозына немесе қоспаға көрсетілімге айналдыруға болмайды. Микробтық байланыстар, жас және метаболизмдік аурулар топтардың таралуына әсер етуі мүмкін, бірақ «өндірмейтіндердің» нақты үлесін бірдей тест қолданбай популяциялар арасында көшіруге болмайды.
Жүктемеден кейінгі метаботип
Аналитикалық сипаттамасы
Нені қорытындылауға болады және болмайды
UM-A
Уролитин A мен оның конъюгаттары басым
Тест жағдайында микробтық жол белсенді; бұл қабынудың аздығын не бұлшықет қызметінің жақсарғанын дәлелдемейді.
UM-B
Басқа метаболиттермен бірге изоуролитин A және/немесе уролитин B пайда болады
Бұл — дегидроксилденудің басқа бейіні; оны автоматты түрде «уытты» немесе A түзе алмайды деуге болмайды.
UM-0
Уролитин анықталмайды
Микробиом ерекшелігі, экспозиция не аналитикалық уақыт аралығы әсер етуі мүмкін; нөлдік нәтиже экзогендік A-ға клиникалық қажеттілікті дәлелдемейді.
Тазартылған уролитин A-ны тікелей қабылдау экспозицияның микробтық кезеңге тәуелділігін азайтады, бірақ оны барлық адамда бірдей етпейді: сіңу, конъюгация, тасымал, таралу және шығарылу құбылмалы болып қалады. Тағам мен қоспаның бірін таңдау метаботиптен шықпайды; ол үшін дәл осы жіктеуді функционалдық нәтижемен байланыстыратын сынақ қажет.
2. Жасуша жойылуы тиіс митохондрияны қалай таниды
2.1. Ішкі мембрана потенциалы және PINK1 импортының бақылауы
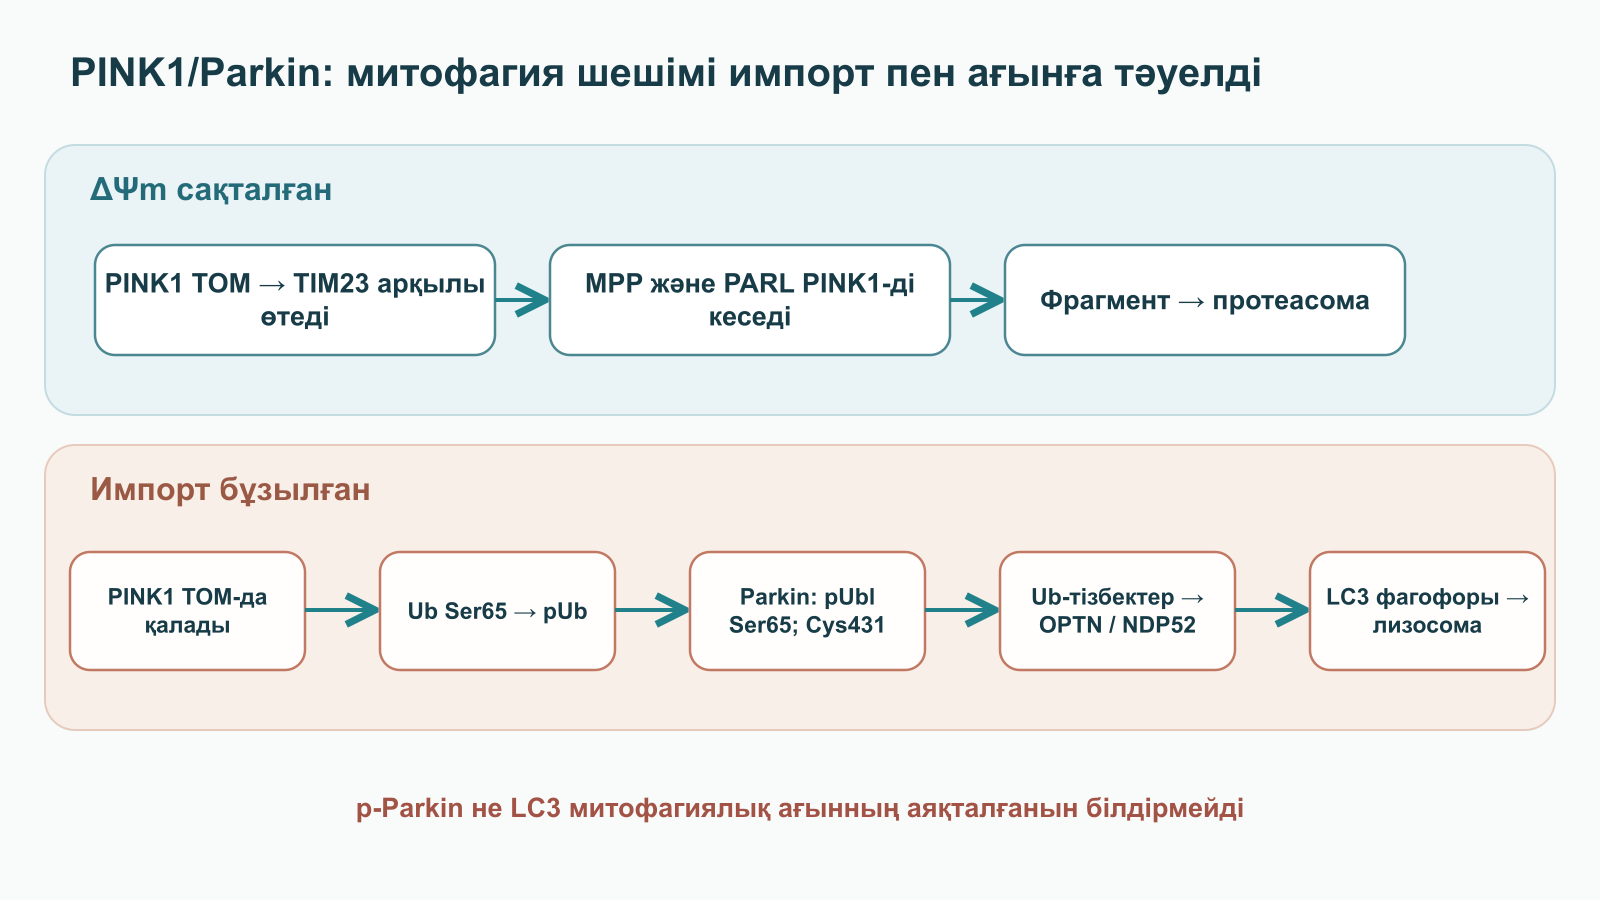
Митохондрия мембранасы протондардың электрохимиялық градиентін сақтайды. Оның электрлік құрамдасы, ΔΨm, N-ұшында оң зарядталған бағыттаушы тізбегі бар ақуыздарды импорттауға көмектеседі. Серин-треонин киназасы PINK1 сыртқы мембрана транслоказасы TOM арқылы өтеді және потенциал сақталған кезде ішкі мембрананың TIM23 жүйесімен әрекеттеседі. Митохондриялық процессинг-пептидаза (MPP) бағыттаушы бөлікті кеседі; PARL протеазасы PINK1-ді ішкі мембранада ыдыратады. Түзілген фрагмент цитозольге қайта оралып, N-ұшындағы фенилаланин танылғаннан кейін протеасомада деградациялануы мүмкін. Сондықтан қызмет атқарып тұрған поляризацияланған органелла бетінде толық ұзындықтағы PINK1 аз болады. «Аз» деген абсолют нөл емес, ал деполяризация митохондрия зақымдануының белгілі жалғыз түрі емес.
Потенциал жеткілікті төмендегенде TIM23 арқылы импорт пен PARL-ға қолжетімділік бұзылады. Толық ұзындықтағы PINK1 TOM-мен байланыста сыртқы мембранада ұсталып, цитозоль жағынан қолжетімді субстраттарды фосфорлай алады. Эксперименттік жүйелерде кешеннің тұрақтануы және киназаның транс-автофосфорлануы, соның ішінде Ser228 және Thr257 орындарында, сипатталған. Бірақ TOM суббірліктерінің нақты стехиометриясы, кешен массасы және ΔΨm үшін жалғыз табалдырық модельге тәуелді; оларды қартайған адам бұлшықетіне арналған әмбебап санға айналдыруға болмайды. Жеке митохондриялар потенциалы, пішіні, орналасуы және желімен алмасу дәрежесі жағынан ерекшеленеді.
2.2. Ser65 фосфоубиквитині жергілікті белгі ретінде
Митохондрияның сыртқы мембранасындағы ақуыздарда бастапқы убиквитин белгілері бұрыннан болады. PINK1 ATP-ден алынған фосфатты убиквитиннің Ser65 орнына ауыстырады:
Ub–Ser65+ATPPINK1Ub–pSer65+ADP.
Фосфоубиквитин (pUb) жергілікті байланысу бетін өзгертіп, Parkin-ді тартатын сигнал болады. Құрылымдық зерттеулер убиквитин мен оның байланысу домендерінің конформациялық ауысуын көрсетеді; бұл pUb барлық деубиквитиназаға төзімді дегенді білдірмейді. Фосфорланған және жалпы убиквитин арақатынасы PINK1 киназасының жылдамдығына, фосфатаза белсенділігіне, тізбектердің ұзаруы мен алынуына тәуелді. Оң кері байланыс үшін мембранадағы pUb жергілікті тығыздығы жалпы жасушалық убиквитиннің бір реттік өлшемінен маңыздырақ.
2.3. Ubl, REP, RING0–2: Parkin қалай босайды
Parkin (PRKN) RBR-лигазаларға жатады. Оның N-ұшындағы Ubl домені, RING0, RING1, IBR, RING2 және тежегіш REP элементі ферментті автоингибирленген конформацияда ұстайды. RING1 E2-мен байланысуға қатысады, RING2 каталитикалық Cys431-ді алып жүреді, ал Ubl/REP түйіспелері осы орындарға жолды шектейді. Мембранадағы pUb Parkin-мен байланысып, доменаралық интерфейстердің қайта құрылуына ықпал етеді; Ubl босап шыққаннан кейін PINK1 киназасы ондағы Ser65-ті фосфорлайды. Фосфорланған Ubl автоингибирленуді қосымша бәсеңдетіп, E2-ге убиквитинді алдымен Parkin Cys431-ге, содан соң субстрат лизинінің амин тобына өткізуге мүмкіндік береді. Осы тиоэфирлік аралық өнім RBR механизмін «E2 Ub-ты мембрана ақуызына тікелей береді» деген оңайлатылған сызбадан ажыратады.
Құрылымдық жұмыстар REP пен Ubl-дың орналасуын көрсетеді, бірақ доменнің бұрылу бұрыштары мен атомаралық қашықтықтар нақты конструкциялар мен кристалдану жағдайларын сипаттайды. Оларды тірі жасушаның динамикасына ескертусіз көшіруге болмайды. Parkin фосфорлануы мен pUb байланысуы бірін-бірі күшейтеді, бірақ экспериментте ажыратылатын кезеңдер. Биоптаттан p-Parkin табылуының өзі митофагиялық ағын лизосомада толық аяқталғанын дәлелдемейді.
2.4. Мембраналық субстраттар, тізбек байланыстарының түрлері және рецепторлар
Parkin сыртқы мембрананың көптеген ақуызын, оның ішінде MFN1/2 митофузиндерін, MIRO/RHOT тасымал GTPазаларын және VDAC-ты модификациялайды. MFN мен MIRO үшін p97/VCP арқылы экстракция және протеасомалық деградация маңызды: олар қайта қосылуды немесе зақымдалған органелланың қозғалысын шектеуі мүмкін. Бұл — функционалдық үрдістер, митохондриялық желінің әрдайым толық өшуі емес. Убиквитин тізбектерінде K6, K11, K48 және K63 байланыстары бар; олар сигналданудың әртүрлі кезеңіне қатысады, сондықтан «K48 = тек протеасома, K63 = тек аутофагия» деген ереже шамадан тыс бинарлы болар еді.
Жаңа мембраналық тізбектер PINK1-ге фосфорлауға арналған жаңа Ub молекулаларын береді. Күшейтуші кері байланыс ілмегі түзіледі: pUb Parkin-ді тартады, Parkin Ub қосады, PINK1 қосылған Ub-ты фосфорлайды. Деубиквитиназалар мен фосфатазалар ілмекті шектейді, сондықтан зақымдану міндетті түрде қайтымсыз жоюды бастамайды. Модификацияланған бетке OPTN, NDP52/CALCOCO2, TAX1BP1 рецепторлары және басқа ақуыздар жиналады; p62/SQSTM1 қатысуы мүмкін, бірақ әр модельде оның рөлі міндетті емес. OPTN және NDP52 тізбектерді убиквитинге байланысатын модульдерімен танып, аутофагия аппаратымен жалғайды. TBK1 киназасы OPTN-ді фосфорлап, жергілікті рекруттауды қолдайды, бірақ аффинділіктің нақты өсуі барлық субстрат пен тін үшін тұрақты деп саналмайды.
2.5. Фагофор, LC3 және лизосома: белгі емес, ағын маңызды
Рецептор убиквитинденген органелланы өсіп келе жатқан фагофор мембранасымен байланыстырады; бұл байланыс липидтелген LC3-ті қоса алғанда ATG8 ақуыздарымен әрекеттесу арқылы жүреді. LIR-мотивінің жалпы жазылуы [W/F/Y]−X1−X2−[L/I/V] бір байланыс класын сипаттайды; оны қоршаған аминқышқылдарының контексті мен фосфорлануы аффинділікті өзгертеді. Фагофордың басталуы мен кеңеюіне ULK1 кешені, PI3KC3, WIPI және ATG-конъюгация жүйелері керек; мембрананы бір ғана тұрақты көзден таратады деуге болмайды. Митофагосома жабылғаннан кейін оның лизосомамен қосылуына Rab7, STX17, SNAP29 және VAMP8 сияқты SNARE ақуыздары, сондай-ақ басқа орналастыру ақуыздары көмектеседі. V-АТФаза катепсиндер мен нуклеазалар ішіндегісін ыдырататын қышқыл орта қалыптастырады.
LC3-позитивті құрылымдар немесе p-Parkin саны — аралық күйдің бір сәттік көрінісі. Құрылымдар санының өсуі жеткізудің күшеюін де, олардың жойылуының бөгелуін де білдіруі мүмкін. Митофагиялық ағын туралы қорытынды жасау үшін лизосомалық кезеңді ескеретін өлшемдер қажет, мысалы динамикалық репортерлер немесе лайықты эксперименттік модельде деградация бөгелген жағдаймен салыстыру. PINK1/Parkin жолы жақсы сипатталған, бірақ Parkin-ге тәуелсіз рецепторлық митофагия механизмдері де бар. Уролитин A доклиникалық модельдерде байланысты маркерлерді өзгерте алады; бұл бүкіл аталған тізбек әр клиникалық әсердің міндетті әрі дәлелденген механизмі дегенді білдірмейді.
3. Органелла жойылғаннан кейін не болады
3.1. AMPK, SIRT1 және PGC-1α: үйлестіру, автоматты ауыстыру емес
Митохондрияларды жою энергия өндіретін масса мен желі құрылымын жеткілікті деңгейде сақтаумен қатар жүрсе ғана физиологиялық мәнге ие. Жасушаның энергетикалық кернеуі AMP/ATP және ADP/ATP қатынастарынан байқалады. AMP пен ADP AMPK-ның реттеуші γ-суббірлігімен байланысады; каталитикалық α-суббірліктегі Thr172 фосфорлануы, соның ішінде LKB1 киназасының әсерімен, кешен белсенділігін арттырады. AMPK субстрат пайдалануды өзгертіп, PGC-1α коактиваторын фосфорлай алады. Бұл — жалпы реттеуші физиология, «уролитин A әрдайым алдымен ATP-ты төмендетеді, содан соң барлық митохондрияны жаңартады» деген дәлелденген тізбек емес. ATP-тың бұлай кемуі зиянды да болуы мүмкін; AMPK белсенділігінің өзі тінге, тамақтануға, жүктемеге және бақылау уақытына тәуелді.
SIRT1 деацетилдеу субстраты ретінде NAD⁺ пайдаланады, оның ішінде PGC-1α үшін. NAMPT никотинамидті қайта пайдалануға қатысады; NAD⁺/NADH қатынасы, компартменттер және NAD⁺ шығыны цитозоль, ядро мен матриксте әртүрлі. AMPK–PGC-1α–SIRT1-ді бір міндетті сызықтық реакциядан гөрі өзара байланысқан желі ретінде қарастырған дұрыс. PGC-1α NRF1-ді, ERR және PPAR рецепторларын коактивациялайды; ядролық бағдарламалар тыныс алу компоненттерінің, ақуыз импорты аппаратының және TFAM-ның экспрессиясын арттырады. TFAM-ның матрикске импорты мтДНҚ-ның қапталуы мен транскрипциясын қолдайды. Биогенезге сондай-ақ липид синтезі, ақуыз импорты, кешендерді жинау, мтДНҚ репликациясы және желіні қайта құру кіреді: бір транскрипциялық сигнатураның өзгеруі жаңа функционалдық органеллалардың толық санын өлшемейді.
Бұлшықетте дене жаттығулары AMPK, PGC-1α, митохондриялық желі мен капиллярларды өздігінен өзгертеді. Қоспаның осы ось арқылы әсерін көрсету үшін екі маркердің қатар өзгеруінен бөлек араласу, уақыттық қатар және функционалдық бағалау қажет. Уролитин A сынақтарында жеке ақуыздық және транскриптомдық сигнатуралар өлшенді; оларды ықтимал тіндік жауап белгісі деп қарау керек, митофагия → биогенез → күштің қалпына келуі деген толық тізбектің тікелей бақылауы деп емес.
3.2. мтДНҚ cGAS–STING-ті қалай іске қосуы мүмкін
Мембраналар зақымданғанда немесе сапаны бақылау бұзылғанда мтДНҚ цитозольге түсуі мүмкін. Ішкі мембранадағы өткізгіштіктің өтпелі порасы (mPTP), сыртқы мембрананың бұзылуы, BAX/BAK-қа тәуелді макропоралар және басқа үдерістер әртүрлі жағдайда мтДНҚ-ның шығуына ықпал етуі мүмкін; жалғыз міндетті арна жоқ. Цитозольдік ДНҚ cGAS-пен байланысады, ал ол ATP пен GTP-ден 2′3′-cGAMP түзеді. Бұл циклдік динуклеотид эндоплазмалық тордағы STING-ті белсендіреді. STING-тің Гольджи аппаратына ауысуы және TBK1/IRF3 рекрутталуы интерферон гендерінің транскрипциясына әкеледі; NF-κB сигналдануы қабыну компоненттерін қосады. мтДНҚ-дағы бактерияға ұқсас CpG-мотивтер сенсорға қолжетімді компартментке ДНҚ жетуі керек деген негізгі шарттың орнын баспайды.
Жануарлар мен жасуша модельдері митохондриялық стресс кезінде PINK1/Parkin STING-ке тәуелді қабынуды шектей алатынын көрсетеді. Алайда қолдағы клиникалық CRP пен цитокин өлшемдері ауыз арқылы қабылданатын уролитин A қарт адамда осы осьті «бөгейді» деуге жеткіліксіз. CRP — жүйелік бейспецификалық маркер; ол мтДНҚ шығуын, cGAS белсенділігін немесе цитокиндердің көзін нақтыламайды. Себеп-салдар тізбегін тиісті модельде аралық оқиғаларды өлшеу арқылы және адам тінінде бөлек тексеру арқылы ғана нақтылауға болады.
3.3. NLRP3, пироптоз және inflammaging терминінің шектері
Ақаулы митохондрия мен қабынудың тағы бір ықтимал байланысы — NLRP3 инфламмасомасы. Оның іске қосылуын прайминг пен активацияға бөлген ыңғайлы. NF-κB-ке тәуелді прайминг NLRP3 пен pro-IL-1β экспрессиясын арттырады; кейінгі иондық, метаболизмдік және органеллалық сигналдар NLRP3-тің ASC адаптерімен және прокаспаза-1-мен жиналуын қолдайды. Белсенді каспаза-1 pro-IL-1β мен pro-IL-18-ді өңдейді, ал газдермин D-нің кесілуі пироптозбен байланысты пораларды түзеді. Тотыққан мтДНҚ мен митохондриялық ROS активацияға ықтимал қатысушылар ретінде қарастырылады, бірақ ox-mtDNA NLRP3-тің нақты доменімен әр тінде тікелей байланысады және міндетті гептамерлік қаңқа бар деп кесіп айтуға болмайды.
Қартайған жасушалардың секреторлық фенотипі (SASP) бір инфламмасомадан көбірек фактор мен контексті қамтиды. Бұлшықетте қабыну медиаторлары IGF-1/Akt/mTOR-ға, протеолизге, MuRF1 және atrogin-1 белсенділігіне, сондай-ақ дің жасушаларының ортасына әсер етуі мүмкін. Саркопенияның басқа себептері де бар: денервация, белсенділіктің азаюы, аурулар, жеткіліксіз тамақтану, гормондық және қантамырлық өзгерістер. Сондықтан жекелеген қабыну маркерлері азайса да, препарат «қабынулық қартаюды» жойды, миозинді қалпына келтірді немесе саркопенияның алдын алды деп қорытынды жасауға болмайды.
4. Бұлшықет жүйесі: әртүрлі компартменттер және әртүрлі нәтижелер
4.1. Миофибрилла жасушасының митохондриялары және көп факторлы саркопения
Субсарколеммалық митохондриялар сарколеммаға және оның бетіндегі сигналдануға жақын орналасады; интермиофибриллярлық митохондриялар жиырылғыш элементтердің арасында таралып, ATP пен кальцийдің жергілікті алмасуын қамтамасыз етеді. Митохондриядағы ATP өндірісі мен қысқа мерзімді фосфокреатин буферінің айырмасы төзімділік жауабын ең жоғары күш жауабымен алмастыруға болмайтынын түсіндіреді; буфер механизмі креатин мен бұлшықет өнімділігі туралы мақалада сипатталған. Бұлар — функциялық компартменттер, бірақ өзара байланысқан. Қосылу мен бөліну динамикасы, тыныс алу тізбегі, кристалар мөлшері, май қышқылдарының тасымалы және сапаны бақылау бұлшықеттің жүктемеге төзу қабілетіне әсер етеді. Толық емес β-тотығу және ацилкарнитиндер өзгерісі метаболизмнің қайта құрылуын білдіруі мүмкін; плазма ацилкарнитинінің концентрациясы миофибрилладағы ATP-ты тікелей өлшемейді. Диацилглицеролдар, церамидтер мен PKCθ инсулин сигналын липоуыттық жолмен бұзуға қатысады, алайда олардың әрқайсысының уролитин A-ның нақты дозасымен себеп-салдар байланысын жеке тексеру керек.
Саркопенияны ең алдымен бұлшықет күші, массасы және физикалық функция арқылы, нақты популяция критерийлерін қолдана отырып бағалайды. Митохондрия қызметінің бұзылуы оның дамуына үлес қосуы мүмкін, бірақ жалғыз диагностикалық механизм емес. Уролитин A сынақтарына бастапқы сипаттамалары әртүрлі адамдар қатысты; дені сау не қимылы аз еріктілердегі күш туралы деректерді диагнозы қойылған саркопениясы бар адамдарға автоматты түрде көшіруге болмайды. Алты минуттық жүру нәтижесіне жүрек, өкпе, буындар, уәж және қайталама тесттің жаттығу әсері де ықпал етеді.
4.2. Сателлиттік жасушалар және регенерация шарттары
Pax7⁺ сателлиттік жасушалар бұлшықет талшығының сарколеммасы мен базальді пластинкасының арасында жатады. Тыныштықта олар өзін-өзі жаңарту қабілетін сақтайды; зақымданғаннан кейін олардың бір бөлігі Myf5/MyoD-ны белсендіріп, пролиферацияланып, миогенин қатысуымен жіктеледі, ал бір бөлігі резервке оралады. Митохондриялық динамика, аутофагия және ROS осы күйлер арасындағы ауысуға қатысады. ROS-тың жоғарылауын әрдайым патологиялық деуге болмайды: қысқа сигнал регенерация үшін қажет, ал созылмалы зақым мен сапаны бақылаудың бұзылуы оны шектеуі мүмкін. p16INK4a және p21CIP1 — контекстке тәуелді қартаю және жасушалық циклді тоқтату бағдарламаларының маркерлері, бұлшықет күшінің тікелей өлшемі емес.
Доклиникалық модельдер Pax7⁺ жасушаларында митохондрия сапасын бақылауды жақсарту регенерациялық жауапты сақтауға көмектесуі мүмкін деген гипотезаны қолдайды. Бірақ уролитин A-ның клиникалық сынақтары адамдағы MuSC қорын қалпына келтіргенін немесе пациенттерде жаңа жетілген миотүтікшелер түзілгенін дәлелдемейді. Мұндай қорытынды үшін жасуша маркерлері бар биопсия, жасуша тағдырын қадағалау және регенерацияны функционалдық бағалау қажет; мүмкіндігінше стандартталған зақымнан кейін және жаттығуды бақылап жүргізген жөн.
4.3. I, IIa және IIx талшықтары, перфузия және төзімділік
I типті талшықтар орта есеппен тотығу мүмкіндігі мен шаршауға төзімділіктің жоғары болуымен сипатталады; IIa талшықтары жылдам жиырылуды едәуір аэробтық құрамдаспен ұштастырады; IIx гликолизге көбірек сүйенеді. Талшық типтерінің таралуы бұлшықетке, жасқа, иннервацияға және жаттығуға тәуелді. Адамдағы IIb талшықтарын бөлек әмбебап топ ретінде қарастыру дұрыс емес. Қартаю әсіресе жылдам моторлық бірліктерге әсер етеді, бірақ клиникалық фенотипті бір «тип ауысуынан» шығара алмаймыз.
PGC-1α-мен байланысты бағдарламалар CPT1B, CD36, тотығу ферменттері мен VEGF-A-ға әсер етуі мүмкін. Бұл митохондриялық метаболизм мен капиллярлануды гипотеза және эксперименттік модельдер деңгейінде байланыстырады. CPT1B ұзын тізбекті ацил топтарының карнитиндік шаттл арқылы кіруін, ал CD36 май қышқылдарының сіңуін реттейді; малонил-CoA-ның осы кезеңге қоятын шектеуі осы кезеңнің малонил-CoA әсерінен шектелуі CPT1 және β-тотығу туралы мақалада толығырақ түсіндірілген. Жүктемеден кейін лактаттың азаюы пируватдегидрогеназаға ғана емес, жұмыс қарқынына, тіндік метаболизмге және лактаттың шығарылуына да тәуелді. Уролитин A сынақтары капилляр/талшық қатынасының сенімді өсуін, IIx-тен I/IIa-ға міндетті ауысуды немесе лактат клиренсінің дәлелденген жылдамдауын көрсеткен жоқ. Төзімділікті ықтимал талшық сызбасына емес, алдын ала анықталған тест пен топаралық әсерге сүйеніп бағалау керек.
5. Адамдардағы араласулар нені көрсетті
Клиникалық сынақтар нақты доза мен мерзімдегі нақты өлшенген нәтижеге жауап береді. Ацилкарнитиндердің, митофагия ақуыздарының экспрессиясының немесе жаттығудан кейінгі көңіл күйдің өзгеруі алдын ала белгіленген функционалдық соңғы нүктені алмастырмайды. Бұл салада бірнеше рандомизацияланған зерттеу бар, бірақ іріктемелері шағын, ал диагнозы қойылған саркопениясы бар адамдарда ұзақ мерзімді сынақтар жеткіліксіз. Өнім мен кейбір зерттеулер коммерциялық демеушімен байланысты; бұл деректі автоматты түрде жоққа шығаруды емес, бастапқы және қосымша нәтижелерді айрықша анық ажыратуды талап етеді.
5.1. Andreux 2019: көтерімділік пен молекулалық сигнатуралар
Адамдардағы алғашқы зерттеуге дені сау, қимылы аз 60 егде ерікті қатысты. Бір реттік және қайталанатын дозалар протоколы қысқа экспозиция кезінде қауіпсіздікті, фармакокинетиканы және молекулалық көрсеткіштерді бағалады; қайталама қабылдау 28 күнге созылды. Қатысушылар уролитин A-ны 250, 500 және 1000 мг/тәулік кіретін зерттелген топтарда ауыз арқылы қабылдады. Плазма мен бұлшықет биоптаттарын талдау митохондриялық метаболизм мен ацилкарнитин бейінінің қайта құрылуымен үйлесетін өзгерістерді анықтады. Бұл адамдағы экспозиция мен биологиялық белсенділіктің маңызды дәлелі, бірақ саркопения қаупі төмендегенін, күш тұрақты артқанын немесе митохондриялар жылдар бойы қалпына келгенін дәлелдемейді. Биоптаттағы транскриптомдық сигнатура да өздігінен митофагиялық ағынды өлшемейді.
Бастапқы мәтінде жартылай шығарылу кезеңі 17–22 сағат, тепе-тең концентрацияға 3–4 күнде жету және 2000 мг/тәулікке дейін уыттылықтың болмауы әмбебап режим мен ұзақ мерзімдік шек сияқты берілген. Бұл сипаттамалар бос агликон мен конъюгаттарда, доза мен қабылдау режимінде өзгереді; қысқа бақылау өмір бойы қауіпсіз экспозицияны анықтамайды. Редакциялық қорытындыда тек тексерілетін шектер қалды: зерттелген дозалар шектеулі іріктемеде және мерзімде көтерімді болды, қабылдау айналымдағы өлшенетін метаболиттер мен молекулалық өзгерістер туғызды. Функционалдық клиникалық уәделер үшін бұл жеткіліксіз.
5.2. Liu 2022: бастапқы нәтижелер расталмады
Қос соқыр зерттеуде 65–90 жастағы 66 ересек адам төрт ай бойы 1000 мг/тәулік уролитин A немесе плацебо қабылдады. Екі бастапқы соңғы нүкте — алты минуттық жүру қашықтығының өзгеруі және қол бұлшықетіндегі ATP-тың ең жоғары өндірілуі — топтар арасында статистикалық мәнді артықшылық көрсетпеді. Белсенді араласу тобында қашықтық бастапқы деңгейден орта есеппен 60,8 м, плацебо тобында 42,5 м артты. Сондықтан топ ішіндегі оң айырма бақылаумен салыстырғандағы дәлелденген пайдаға тең емес. ATP көрсеткішіндегі айырмашылықтар да аз әрі статистикалық тұрғыдан нанымсыз болды.
Қосымша тесттер алдыңғы жіліншік бұлшықеті мен қолдың бірінші сыртқы сүйекаралық бұлшықетінде, әсіресе екі айдан кейін, төзімділіктің арту сигналы байқалғанын көрсетті. Плазмадағы кейбір ацилкарнитиндер, церамидтер мен CRP өзгерді. Бұл бұлшықет жауабы туралы гипотезамен үйлеседі, бірақ қосымша көрсеткіштердің көптігі мен шағын іріктеме нәтижені тәуелсіз қайталауды қажет етеді. Іріктемеде әйелдер мен ақ нәсілді қатысушылар басым болды; бастапқы орташа жүру қашықтығы функцияның салыстырмалы сақталғанын аңғартты. Жаңа тексерусіз деректерді ауыр кәрілік әлсіздігі бар пациенттерге, басқа этникалық құрамға немесе саркопенияны емдеу қорытындысына көшіруге болмайды. Бастапқы қолжазбадағы «+17,3%» әмбебап төзімділік өсімі нәтижені адал сипаттау үшін қажет емес: оның қай бұлшықет тестін, уақытты және салыстыруды көрсететіні маңызды.
5.3. Singh 2022: күш көрсеткіштерінің сигналы, бастапқы нүкте теріс
Артық салмағы бар, қимылы аз 40–64 жастағы 88 адамды қамтыған зерттеуде плацебо, 500 және 1000 мг/тәулік топтары төрт ай салыстырылды. Алдын ала белгіленген бастапқы нүкте — жүктеме кезіндегі ең жоғары қуат — статистикалық мәнді жақсармады. Сонымен қатар авторлар аяқ күшінің жекелеген көрсеткіштерінде шамамен 12% жақсаруды, аэробтық функция, жүру, ацилкарнитиндер және CRP өлшемдерінде сигналдарды хабарлады. Санның артқы бұлшықеттерінің күші үшін бастапқы мақала суретінде екі дозаға қатысты топаралық p = 0,027 және 0,029 берілген; бұл кез келген пациентте бүкіл «тізе күші» 12%-ға өсті дегеннен нақтырақ. VO₂ мен 6MWD үшін статистикалық мәнділіктің бір бөлігі плацебомен артықшылыққа емес, қатысушының өз бастапқы деңгейімен салыстыруға қатысты. Бастапқы қолжазба кей жерлерде осы айырманы жоғалтқан.
Биоптаттардан митохондриялармен байланысты протеомдық және транскриптомдық жолдар зерттелді; фосфо-Parkin кіретін жекелеген ақуыздарға иммуноблот шағын топта жасалды. Бұл бақылаулар механизмді зерттеуді қолдайды, бірақ барлық қатысушыда PINK1/Parkin толық белсеніп, органелла лизосомада ыдыраған ағын жүргенін дәлелдемейді. Зерттеуді өніммен байланысты компания демеушілік еткендіктен және авторлардың бір бөлігінде тиісті байланыстар болғандықтан, соңғы нүктелері алдын ала бекітілген тәуелсіз қайталау аса құнды. Қосымша нәтижелердің сигналын да, теріс бастапқы нүктені де елемеуге болмайды.
5.4. Whitfield 2025: қалпына келу — жүгіру нәтижесінің жақсаруы емес
Sports Medicine журналындағы түпнұсқа жарияланымның бірінші авторы «D’Amico et al.» емес, Whitfield пен әріптестері. Рандомизацияланған қос соқыр сынаққа жақсы жаттыққан 42 ер жүгіруші қатысып, биіктіктегі жаттығу жиыны кезінде төрт апта бойы 1000 мг/тәулік уролитин A немесе плацебо алды. Қатысушылардың шағын тобы 3000 м тестін орындады; нәтижесі салыстырумен қарағанда статистикалық мәнді жақсармады. Уролитин A қабылдағандарда сезілген күштің азаюы және жаттығудан кейінгі креатинкиназаның жинақталған белсенділігінің төмендеуі байқалды, ал бұлшықет протеомикасы қабыну жолдарының азаю белгілерін көрсетті. Бірақ өткізгіштігі арттырылған бұлшықет талшықтарының респирометриясы протокол жағдайында митохондрия қызметі жақсарғанын көрсетпеді. VO₂max үшін топаралық өзара әсер де мәнді болмады, белсенді топтың ішінде көрсеткіш өссе де.
Мұндай нәтижелер қалпына келуге әсер ету гипотезасына негіз береді, бірақ жарыста эргогендік әсер барын растамайды. Биіктегі жиын, 3000 м тестін орындаған шағын топ, тек ер адамдар және қысқа мерзім кең спорттық практикаға көшіруді шектейді. Осы зерттеу лактат клиренсінің жылдамдауын, миоглобиннің азаюын және спорттық өнімділіктің өсуін дәлелдеді деп жазуға болмайды: бастапқы қолжазба осы әртүрлі көрсеткіштерді тым күшті қорытындыға біріктірген.
5.5. Өлшеу деңгейі бойынша нәтижелерді салыстыру
Зерттеу және популяция
Доза мен мерзім
Негізгі клиникалық соңғы нүкте
Бақылаумен салыстырғаннан кейін қалатыны
Andreux, дені сау егде адамдар, n=60
Бір реттік дозалар және 28 күнге дейін қайталама қабылдау
Қысқа мерзімді көтерімділік пен биологиялық сигнатура; бұлшықет емі дәлелденбеген.
Liu, 65–90 жастағы ересектер, n=66
1000 мг/тәулік, 4 ай
6MWD және қол бұлшықетіндегі ATP-тың ең жоғары өндірілуі
Екі бастапқы нүктеде де мәнді артықшылық болмады; жергілікті бұлшықет төзімділігінде қосымша сигнал бар.
Singh, орта жастағы қимылы аз ересектер, n=88
500 не 1000 мг/тәулік, 4 ай
Ең жоғары қуат
Бастапқы нүктеге мәнді әсер жоқ; күш пен биомаркерлердің жекелеген қосымша өлшемдері оң.
Whitfield, жаттыққан ер жүгірушілер, n=42
1000 мг/тәулік, 4 апта
Биіктегі жиын кезіндегі жүгіру және қалпына келу өлшемдері
3000 м нәтижесі жақсармады; CK мен сезілген күш қалпына келудің шектеулі сигналын береді.
Деректер қартаюдың алдын алу немесе бұлшықет ауруын емдеу жөнінде жалпы «дәлелденген клиникалық консенсус» жасауға мүмкіндік бермейді. Олар келесі зерттеулерді нақты жоспарлауға көмектеседі: функционалдық соңғы нүктені алдын ала таңдау, бастапқы функцияны, жаттығу мен тамақтануды ескеру, бос қосылыс пен конъюгаттардың экспозициясын өлшеу, митофагиялық ағынды бөлек тексеру және ұзақ мерзімдік қауіпсіздікті бағалау.
6. Экспозиция, метаболизм және әзірше хаттама деуге келмейтін шешімдер
6.1. Тағамдық ізашар мен тікелей доза — екі бөлек араласу
Тағамнан алынған эллаг қышқылы микробтық кезеңнен өтуі керек; ауыз арқылы қабылданған уролитин A бұл кезеңді айналып өтеді. Осы айырмашылық тікелей дозада UM-A/UM-B/UM-0-ге тәуелділіктің азаюын түсіндіреді, бірақ математикалық «100% нәтиже» бермейді: қабылдағаннан кейін де сіңу, конъюгация және шығарылу өзгеріп отырады. Ең жоғары концентрация (Cmax), ең жоғары деңгейге жету уақыты (Tmax) және қисық астындағы аудан (AUC) бос агликон, глюкуронид, сульфат немесе үлгі гидролизінен кейінгі жалпы зат өлшенгеніне байланысты. Әртүрлі аналитикалық анықтамаларды бір концентрациядай салыстыру дұрыс емес.
Бастапқы мәтінде 500 мл анар шырыны 1000 мг қоспамен салыстырылып, AUC сегіз-он есе жоғары «емдік терезе» 1,5–3,5 мкМ деп жарияланған. Химиялық матрицалар, эллагитаннин дозалары, үлгіні дайындау және популяциялар бірдей болмайынша мұндай нақты шкала клиникалық таңдауға сенімді негіз емес. Тікелей қоспаны ізашардың микробтық түрленуіне тәуелсіз өлшенетін экспозиция алу тәсілі деп сипаттауға болады; ұзақ мерзімдік функционалдық нәтижелерде оның эллагитаннин бар рационнан артықшылығы жеке салыстырмалы сынақпен анықталмаған.
6.2. Энтероцит пен бауырдағы конъюгация; жергілікті деконъюгация гипотезасы
Сіңгеннен кейін уролитин A фенолдық топтары ішекте және бауырда UGT арқылы глюкурондануға, SULT арқылы сульфаттануға ұшырайды. Зерттеліп жүрген изоформаларға UGT1A3, UGT1A8, UGT1A9 және UGT1A10 жатады; әрқайсысының үлесі тін мен эксперименттік жүйеге тәуелді. Қан айналымында көбіне глюкуронид және сульфат түрлері басым. Уролитин A 3-O-глюкурониді мен 8-O-глюкуронидін аналитикалық тұрғыдан ажырату қажет. Алайда 80–85%, 10–15% және 5%-дан аз деген үлестерді әртүрлі дозалар мен адамдарда айналымдағы қордың тұрақты құрамы деп жариялауға болмайды.
β-глюкуронидаза GUSB глюкуронидтік байланысты гидролиздеп, белгілі тіндік жағдайда агликон босатуы мүмкін. Қабыну жасушаларының үлесі, жасушадан тыс фермент белсенділігі, жергілікті pH және мембрана арқылы тасымал ықтимал қатысады. Бұл биохимиялық тұрғыдан нанымды жол, бірақ адамдар стандартты қоспа қабылдағаннан кейін жұмыс істеп тұрған бұлшықеттегі GUSB PINK1/Parkin-ді белсендіретін жеткілікті жергілікті агликон концентрациясын түзетініне тікелей дәлел жоқ. Мұндай өлшемдерсіз глюкуронидті тек ауру тінінде іріктеп ашылатын кепілді «ізашар дәрі» деуге болмайды. Агликон липофил болғаны үшін міндетті түрде «митохондрияда жиналмайды». Жолды тексеру үшін кеңістіктік ажыратымдылығы бар тіндік фармакокинетика, бос және конъюгацияланған түрлерді салыстыру, сондай-ақ болжанған ферменттік кезеңге араласу керек.
6.3. Зерттеу дозасы және клиникалық тағайындау
Сипатталған араласуларда қатысушылар көбіне 500 немесе 1000 мг/тәулік қабылдады, ал бастапқы кезеңде басқа бір реттік дозалар да болды. Бұлар нақты популяциялар мен мерзімге арналған зерттеу режимдері, 35–50 жастағы немесе 60-тан асқан барлық адамға дәлелденген «алдын алу» және «емдік» дозалар емес. Метаботиптің өзі таңертең 500 мг қабылдауды ұсынатын валидтелген тест жоқ; аталған сынақтар саркопенияға ұзақ үздіксіз курсты, операциядан кейін қалпына келуді немесе кәсіби спорттың жақсаруын анықтаған жоқ.
Таңертең қабылдау, липиді бар таңғы астың міндеттілігі, дозаны бөлмеу және «Parkin импульсі үшін Cmax шыңы» қажет деген тұжырымдар — бастапқы жорамалдар, режимдерді салыстырумен сыналған ережелер емес. Аутофагиялық ырғақ тамақтануға, ұйқыға және жаттығуға тәуелді; циркадтық реттеу бар екені 08:00–10:00 уақытын оңтайлы клиникалық терезе етпейді. Уролитин A қоспасы қарастырылса да, дене белсенділігі, ақуыз және әлсіздік себептерін түзету жөніндегі дәлелі бар ұсыныстар басым болып қалады. Шағын зерттеулер нәтижесі үдемелі бұлшықет әлсіздігін анықтауды кешіктірмеуі керек.
6.4. Спермидин, PQQ және NAD⁺ ізашарлары: дәлелденген синергиясыз бөлек механизмдер
Бастапқы қолжазба үш комбинация ұсынған: уролитин A-ны 3–6 мг спермидинмен, 20 мг PQQ-мен және 300–600 мг NR не 500 мг NMN-мен біріктіру. Олардың механизмдік гипотезалары әртүрлі. Спермидин аутофагия мен трансляцияны, оның ішінде EP300 және eIF5A гипусинденуін реттеумен байланысты; PQQ жасушалық сигналдану мен митохондриялық маркерлер тұрғысынан зерттеледі; NR мен NMN NAD⁺ жолдарының ізашарлары. Апигенин туралы шолудағы CD38 бен жасушалық NAD⁺ қорлары жайлы талқылау мұнда кофактор механизмін қоспалардың дәлелденген синергиясынан ажырату үшін пайдалы. Бұл механизмдер бірігіп қабылдау барлық ақуыз агрегаттарын тазалайды, кристаларды жаңартады немесе дәл адам бұлшықетіндегі сиртуиндерді қанықтырады дегенді білдірмейді. NAD⁺ қызметін «I кешенін қоректендіруге» де теңеуге болмайды: электрон тасымалы үшін жергілікті NAD⁺/NADH пен тыныс алу тізбегінің күйі маңызды.
Ұсынылған комбинация
Биологиялық сұрақ
Клиникалық олқылық
Уролитин A + спермидин
Органелла және жалпы протеостаз жолдары бірін-бірі толықтыра ма?
Көрсетілген жұптың дозасы, функционалдық тиімділігі мен ұзақ мерзімдік қауіпсіздігі дәлелденбеген.
Уролитин A + PQQ
Клиренс пен биогенез қажетті тіндер мен мерзімде қатар жүре ме?
Митохондрияның жылдам ауысуы не саркопенияның емі көрсетілмеген.
Уролитин A + NR/NMN
NAD⁺ қолжетімділігі тін жауабын өзгерте ме?
Ізашар қосу уролитин A-ны жеке қолданғаннан артық клиникалық нәтиже беретіні дәлелденбеген.
Оқшау және біріктірілген топтары бар факторлық дизайн өзара әсерді сынауға мүмкіндік берер еді. Әртүрлі жарияланымдардағы механизмдерді жай қосу синергияны өлшемейді, сондықтан мұндай стектерді дайын хаттама ретінде ұсынбау керек.
6.5. Көтерімділік, токсикология шектері және мәнді мониторинг
Қысқа мерзімді сынақтар зерттелген дозалар мен іріктемелерде көтере алмаудың ірі сигналын байқамады, бірақ сирек оқиғаларды және жылдар бойы үздіксіз қолдануды бағалай алмайды. Доклиникалық NOAEL нақты түр, жыныс және протокол үшін мг/кг түрінде беріледі. Жануардағы мәнді 70 кг-ға көбейтіп, алынған «тәулігіне 200 г-нан астам» мөлшерді адам үшін қауіпсіз доза деп жариялауға болмайды: түрлер арасындағы айырмашылық пен белгісіздік коэффициенттері мұндай арифметиканы мағынасыз етеді. Жеке ингредиенттің GRAS мәртебесі тағам ретінде пайдаланудың нақты шарттарына қатысты; ол саркопенияны емдеуге, спорттық тиімділікке немесе өнімнің кез келген дозасына рұқсат емес.
CYP және UGT-пен өзара әсерлер туралы дерек шектеулі; қолда бар модельдерде әсер табылмағаны полипрагмазия мен басқа экспозиция жағдайында өзара әсер болмайды дегенді білдірмейді. Созылмалы ауру, жүктілік, терапиялық терезесі тар дәрілермен емделу немесе бұлшықет әлсіздігі симптомдары болса, шешім жеке клиникалық бағалауды талап етеді. АЛТ, АСТ, креатинин, eGFR, CK, глюкоза мен липид бейіні клиникалық міндетке сай тағайындалуы мүмкін, бірақ расталған «уролитиндік» зертханалық табалдырықтар жиынтығы немесе 12–16 аптада hs-CRP 20–25% төмендейді деген күтілім жоқ. Жаттығудан кейінгі CK қарқын мен қан алу уақытына тәуелді; CRP, IL-6 және HOMA-IR бейспецификалық. Динамометрия, бұлшықет массасы, физикалық функция және әлсіздік себептері тиісті клиникалық критериймен бағаланады, қоспаның міндетті әсерін растау үшін емес.
7. Механизмді практикалық қорытындымен қалай байланыстыру керек
Уролитин A тарихының маңызы — тағамның микробиом арқылы химиялық түрленуін, митохондрия сапасын бақылау сигналдарын және адамдардағы бұлшықет функциясының алғашқы өлшемдерін біріктіруінде. PINK1/Parkin молекулалық тілі сенімдірек анықталған: PINK1 импорты мен протеолизі органелла күйіне тәуелді, pSer65-Ub пен фосфо-Ubl Parkin-ді босатады, убиквитин тізбектері рецепторларды жинайды, фагофор лизосомалық ыдырауға дейін жетуі керек. Уролитин A-ның осы жүйеге әсері туралы доклиникалық және адамдардағы экспозиция мен бөлек биомаркерлерге қатысты деректер бар. Бірақ қабылданған капсуладан нақты адам бұлшықетіндегі лизосомалық ағынға және саркопенияның алдын алуға апаратын толық себеп-салдар тізбегі әлі көрсетілмеген.
Клиникалық көрініс біркелкі емес: егде және орта жастағы адамдардың зерттеулерінде бастапқы функционалдық соңғы нүктелер бейтарап қалды, ал күш не жергілікті төзімділіктің жекелеген қосымша тесттері оң сигнал берді. Жаттыққан жүгірушілерде қалпына келудің кейбір маркерлері жақсарғанымен, 3000 м нәтижесінде сенімді жақсару байқалмады. Мұндай әркелкілік зерттеуге пайдалы: әрі қарай қандай фенотипті, дозаны, мерзімді және механизмді тексеру керегін нақтылайды. Дәрігер мен зерттеуші үшін дұрыс қорытынды — болашағы бар, бірақ әзірше шектеулі дәлел базасы; бұлшықетті жасарту, саркопенияны емдеу не спорт нәтижесін арттыруға арналған мойындалған хаттама емес.
Шолу әдісі мен шектері
Бұл — бастапқы қолжазба мен оның библиографиялық базасын нарративтік редакциялық өңдеу. Дайындау кезінде, 2026 жылғы 4 қазанда, мәлімделген клиникалық пайда мен зерттеу дизайны немесе негізгі нәтижелер арасындағы қайшылықтарға байланысты Liu, Singh және Whitfield мақалаларының түпнұсқалары мекенжайлы түрде салыстырылды; Andreux мақаласының сәйкестігі де нақтыланды. Әдебиетті толық жүйелі іздеу, алдын ала жарияланған іріктеу хаттамасы, барлық жұмыстың ығысу қаупін формалды бағалау немесе GRADE жүргізілген жоқ. Сондықтан дереккөздер тізімі толық қамтуды кепілдемейді, ал механизм бөлшектері адам тініндегі әр реакция тәуелсіз тексерілді деген сөз емес. Негізгі клиникалық қорытындыларды бастапқы соңғы нүктелер, популяция, мерзім және ықтимал мүдделер қақтығысын ескере отырып оқу керек.
Шолу қалай дайындалды
Бұл — уролитин A, митофагия және бұлшықет қызметі туралы нарративтік шолу. Әдебиеттер жинағына 30 жарияланым кіреді. 2026 жылғы 4 қазандағы редакцияда клиникалық негізгі нәтижелер, соның ішінде бастапқы және қосымша соңғы нүктелердің, топ ішіндегі және топтар арасындағы өзгерістердің айырмасы нақты тексерілді. Алдын ала бекітілген хаттама бойынша жүйелі іздеу, мета-талдау және барлық енгізілген еңбектің ығысу қаупін формалды бағалау жүргізілген жоқ; жинақ толық емес.
Ферменттік реакциялар мен жасушалық модельдер зерттеу гипотезасын түсіндіреді, бірақ төзімділіктің клиникалық жақсарғанын растамайды. Адамдардағы сынақтар қатысушылардың жасын, жағдайын, араласу ұзақтығын және таңдалған нәтижені ескере отырып қарастырылады. Молекулалық маркердің өзгеруі, функционалдық тест пен спорт жарысының нәтижесі — деректің әртүрлі деңгейлері. Қосымша оң бақылау бастапқы соңғы нүктенің нәтижесін алмастырмайды.
Жиі қойылатын сұрақтар
Уролитин A саркопенияны емдеуге тиімді екенін дәлелдей ме?
Жоқ. Орта және егде жастағы ересектердің сынақтарында кейбір қосымша оң сигналдар байқалды, бірақ Liu және Singh зерттеулерінің бастапқы функционалдық нүктелері расталмады. Диагнозы қойылған саркопениясы бар адамдар мен ұзақ мерзімді нәтижелерге арнайы зерттеу керек.
PINK1 пен Parkin зақымдалған митохондрияны қалай таниды?
Импорт азайғанда PINK1 сыртқы мембранада ұсталып, убиквитинді фосфорлайды. Бұл Parkin-ді тартып белсендіреді; Parkin мембранадағы убиквитин тізбектерінің жиналуын және фагофор рецепторларының рекрутталуын бастайды, ал процестің аяқталуы үшін лизосома қажет.
Уролитин A қабылдау анар мен эллагитанниннің басқа көздерін алмастыра ма?
Тікелей доза уролитин түзетін микробтық кезеңді айналып өтеді, бірақ тағам мен қоспа — бөлек араласулар. Ұзақ мерзімдік бұлшықет қызметі бойынша біреуінің артықшылығы салыстырмалы зерттеумен анықталмаған.
Жаттыққан жүгірушілердегі төрт апталық сынақта 3000 м уақыты мәнді жақсармады. Қалпына келудің жекелеген өлшемдері сигнал берді, оны қайта зерттеу қажет.
Таңертең 500–1000 мг қабылдаудың дәлелденген сызбасы немесе спермидинмен комбинация бар ма?
Жоқ. 500 және 1000 мг — зерттелген дозалар; оңтайлы қабылдау уақыты, ұзақ мерзімдік ем және комбинациялардың клиникалық синергиясы анықталмаған.