
Уролитин A: митофагия PINK1/Parkin, мышечная функция и пределы данных
От микробного каскада эллагитаннинов до убиквитиновой митофагии и испытаний у людей: первичные исходы, вторичные сигналы, фармакокинетика и безопасность уролитина A.
От микробного каскада эллагитаннинов до убиквитиновой митофагии и испытаний у людей: первичные исходы, вторичные сигналы, фармакокинетика и безопасность уролитина A.
Уролитин A часто описывают одной стрелкой: эллагитаннины пищи → митофагия → сильная мышца. Между этими звеньями находятся разные биологические системы и разные способы измерения. Бактериальная трансформация происходит в просвете толстой кишки, конъюгация — в энтероците и печени, распознавание повреждённой митохондрии — внутри клетки, а мышечная сила и ходьба — исходы человека. Связность гипотезы не означает, что каждое звено уже подтверждено для перорального препарата в мышце человека. Этот обзор рассматривает молекулярный механизм подробно, затем сопоставляет его с измеренными клиническими результатами и пределами их интерпретации.
Эллагитаннины — гидролизуемые эфиры гексагидроксидифеновой кислоты и сахаров. Они содержатся в гранате, некоторых орехах и ягодах, причём количество и состав зависят от вида, сорта и обработки. Пуникалагин граната (C₄₈H₂₈O₃₀; приблизительно 1084,7 г/моль) иллюстрирует, почему крупная полярная молекула не равнозначна малому кишечному метаболиту: всасывание исходного таннина ограничено. Гидролиз и лактонизация высвобождают эллаговую кислоту (C₁₄H₆O₈; приблизительно 302,2 г/моль). Её меньший размер не устраняет низкую водную растворимость и вариабельную абсорбцию. Поэтому концентрацию самого таннина, эллаговой кислоты, свободного уролитина и его конъюгатов нельзя подставлять друг вместо друга при сравнении питания и добавки.
Структура уролитина A — 3,8-дигидрокси-6H-бензо[c]хромен-6-он (C₁₃H₈O₄; приблизительно 228,2 г/моль). Это метаболит бактериального сообщества, а не неизменённый компонент гранатового сока. Пища одновременно несёт другие фенольные соединения, клетчатку и питательные вещества, так что различие результатов между диетой и изолированным уролитином нельзя целиком приписать только доле людей, производящих уролитин A.
После гидролиза эллагитаннинов эллаговая кислота достигает отделов кишечника, где микробные реакции раскрытия лактонного кольца, декарбоксилирования и последовательного дегидроксилирования создают семейство уролитинов. Условную карту превращений удобно записать так:
Эта запись показывает химическую логику потери гидроксильных групп, но не утверждает, что каждый штамм выполняет все стадии или что промежуточные вещества всегда появляются в этой последовательности у каждого человека. M5 — пентагидроксилированный интермедиат; D и C имеют соответственно четыре и три гидроксильные группы; A и изоуролитин A — позиционные дигидроксилированные изомеры. Дальнейшая ветвь может вести к уролитину B. Положение гидроксилов влияет на взаимодействие с ферментами и измеряемую активность; объявлять все изомеры эквивалентными нельзя.
Выделенные Gordonibacter urolithinfaciens и Gordonibacter pamelaeae способны проводить ранние стадии преобразования эллаговой кислоты, тогда как Ellagibacter isourolithinifaciens описана как продуцент изоуролитина A. Обнаружение этих таксонов само по себе не доказывает полный синтез уролитина A: продукт зависит от функционального состава сообщества, условий культивирования, субстрата и времени транзита. Конкретный исполнитель позднего дегидроксилирования в организме человека не сводится к одному надёжно установленному «обязательному» виду. Предположение о синтрофии полезно для эксперимента, но приписывание этапа некультивируемым клостридиям и молибденовой дегидроксилазе как доказанному универсальному пути было бы сильнее имеющихся данных.
После стандартизированной нагрузки эллагитаннинами исследователи различают UM-A с преимущественным образованием уролитина A, UM-B с изоуролитином A и/или уролитином B наряду с A, а также UM-0 без обнаруживаемых уролитинов при использованном аналитическом пороге. Обозначение метаботипа зависит от рациона перед исследованием, времени отбора пробы, матрицы (моча или плазма), чувствительности анализа и популяции. Его нельзя превращать в неизменное свойство генома, диагноз «дисбиоза» или показание к добавке. Микробные ассоциации, возраст и метаболические заболевания могут влиять на распределение групп, но точные доли «непродуцентов» нельзя переносить между популяциями без одинакового теста.
| Метаботип после нагрузки | Аналитическое описание | Что можно и нельзя заключить |
|---|---|---|
| UM-A | Преобладает уролитин A и его конъюгаты | Микробный путь активен в условиях теста; это не доказательство более низкого воспаления или лучшей мышечной функции. |
| UM-B | Появляются изоуролитин A и/или уролитин B вместе с иными метаболитами | Иной профиль дегидроксилирования; нельзя автоматически назвать его «токсическим» либо неспособным образовать A. |
| UM-0 | Уролитины не определяются | Возможны особенности микробиома, экспозиции и аналитического окна; нулевой результат не является доказанной клинической потребностью в экзогенном A. |
Прямой приём очищенного уролитина A уменьшает зависимость экспозиции от микробного этапа, но не делает её одинаковой у всех людей: абсорбция, конъюгация, транспорт, распределение и выведение остаются вариабельными. Выбор между продуктом питания и добавкой не выводится из метаботипа без испытания, связывающего именно эту классификацию с функциональным исходом.
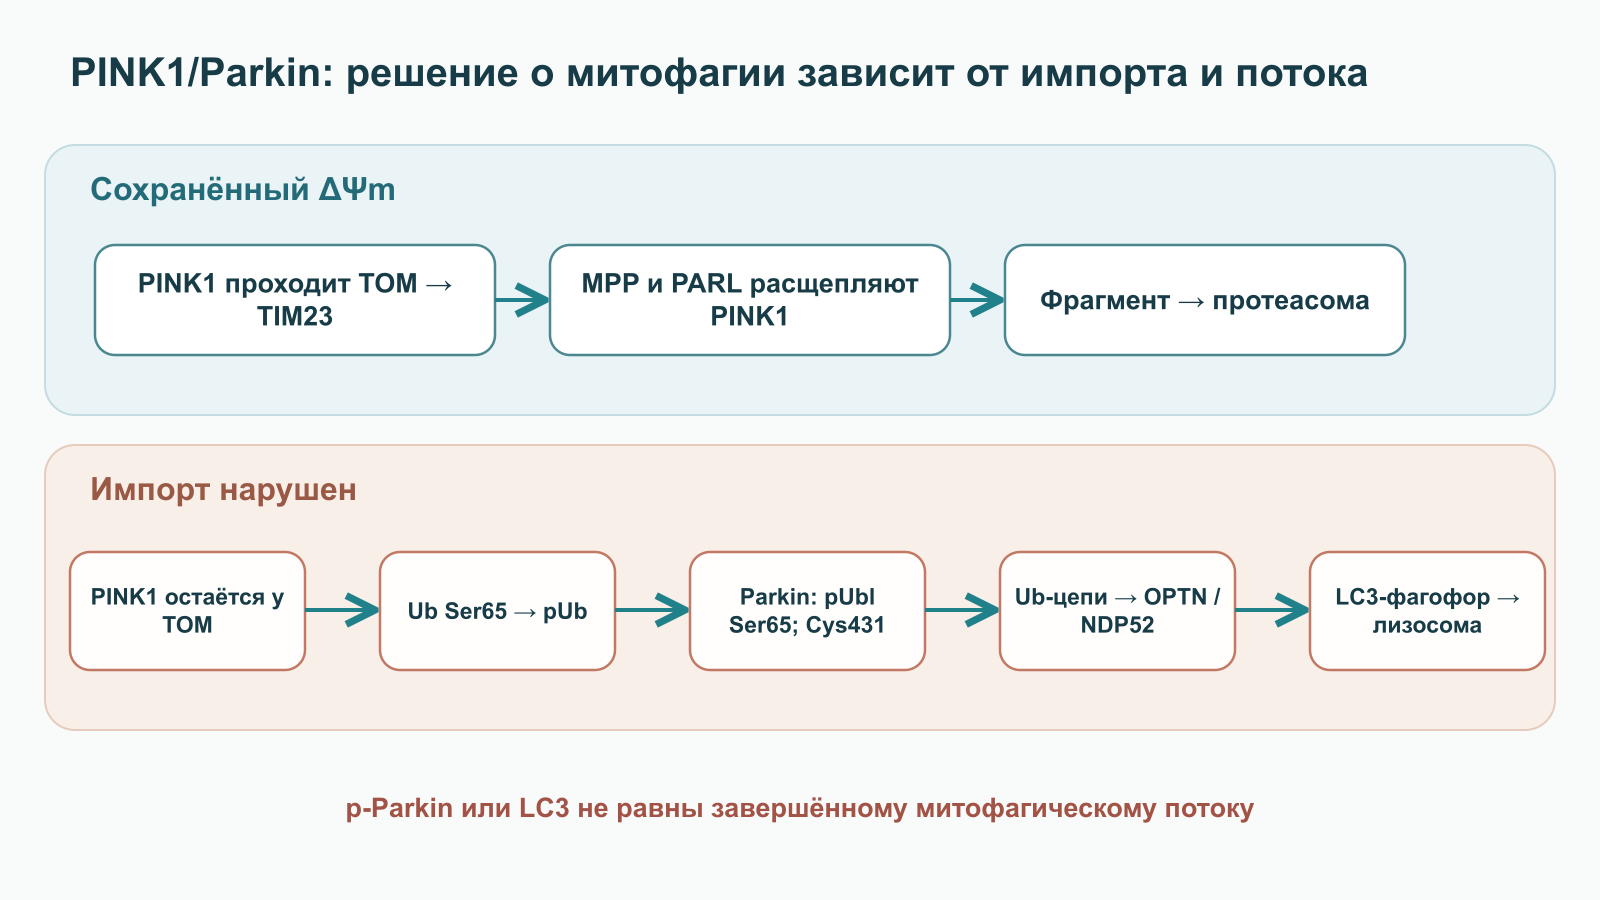
Митохондриальная мембрана поддерживает электрохимический градиент протонов. Его электрическая составляющая, , помогает импортировать белки с положительно заряженной N-концевой адресной последовательностью. PINK1, серин-треониновая киназа, проходит через транслоказу внешней мембраны TOM и при сохранном потенциале взаимодействует с системой TIM23 внутренней мембраны. Митохондриальная процессинг-пептидаза (MPP) отщепляет адресный участок; протеаза PARL расщепляет PINK1 во внутренней мембране. Образующийся фрагмент может вернуться в цитозоль и подвергнуться протеасомной деградации через распознавание N-концевого фенилаланина. Поэтому на поверхности функционирующей поляризованной органеллы мало полноразмерного PINK1. «Мало» не означает абсолютный ноль, а деполяризация — не единственная известная форма митохондриального повреждения.
При достаточной потере потенциала импорт через TIM23 и доступ к PARL нарушаются. Полноразмерный PINK1 удерживается на внешней мембране в ассоциации с TOM и получает возможность фосфорилировать доступные субстраты со стороны цитозоля. В экспериментальных системах описаны стабилизация комплекса и транс-аутофосфорилирование киназы, включая Ser228 и Thr257. Но конкретная стехиометрия TOM-субъединиц, масса комплекса и единственный порог зависят от модели; их не стоит превращать в универсальные числа для стареющей человеческой мышцы. Отдельные митохондрии различаются по потенциалу, форме, локализации и степени обмена с сетью.
На белках внешней митохондриальной мембраны уже присутствуют базальные убиквитиновые метки. PINK1 переносит фосфат АТФ на Ser65 убиквитина:
Фосфоубиквитин, или pUb, меняет локальную поверхность связывания и служит сигналом для рекрутирования Parkin. Структурные работы показывают конформационные сдвиги убиквитина и связывающих доменов; это не даёт основания считать pUb устойчивым ко всем деубиквитиназам. Отношение фосфорилированного к общему убиквитину зависит от скорости киназы PINK1, активности фосфатаз, удлинения и снятия цепей. Локальная плотность pUb на мембране имеет большее значение для положительной обратной связи, чем одно измерение общего клеточного убиквитина.
Parkin (PRKN) относится к RBR-лигазам. Его N-концевой Ubl-домен, RING0, RING1, IBR, RING2 и ингибиторный элемент REP удерживают фермент в аутоингибированной конформации. RING1 участвует в связывании E2, RING2 несёт каталитический Cys431, а контакты Ubl/REP ограничивают доступ к этим узлам. pUb на мембране связывает Parkin и способствует перестройке интерфейсов; после высвобождения Ubl киназа PINK1 фосфорилирует в нём Ser65. Фосфорилированный Ubl дополнительно снимает аутоингибирование, позволяя E2 передать убиквитин сначала на Cys431 Parkin, затем на аминогруппу лизина субстрата. Промежуточный тиоэфир отличает RBR-механизм от упрощённой схемы «E2 сразу передаёт Ub белку мембраны».
Работы по структуре раскрывают положение REP и Ubl, но углы поворота домена и расстояния между атомами описывают конкретные конструкции и условия кристаллизации. Их нельзя без оговорок переносить на динамику живой клетки. Фосфорилирование Parkin и связывание pUb — взаимно усиливающиеся, но экспериментально различимые стадии. Даже обнаружение p-Parkin в биоптате не доказывает завершённый лизосомальный поток митофагии.
Parkin модифицирует множество белков внешней мембраны, в том числе митофузины MFN1/2, транспортные GTPазы MIRO/RHOT и VDAC. Для MFN и MIRO важны экстракция p97/VCP и протеасомная деградация: они могут ограничить повторное слияние либо движение повреждённой органеллы. Это функциональные тенденции, а не всегда полное выключение митохондриальной сети. Убиквитиновые цепи включают связи K6, K11, K48 и K63; они участвуют в разных этапах сигнализации, и «K48 = только протеасома, K63 = только аутофагия» было бы излишним бинарным правилом.
Новые мембранные цепи дают PINK1 новые молекулы Ub для фосфорилирования. Возникает петля усиления: pUb привлекает Parkin, Parkin добавляет Ub, PINK1 фосфорилирует добавленный Ub. Деубиквитиназы и фосфатазы ограничивают петлю, поэтому повреждение не обязано запускать необратимое удаление. На модифицированной поверхности собираются рецепторы OPTN, NDP52/CALCOCO2, TAX1BP1 и другие белки; p62/SQSTM1 может участвовать, но его вклад не равен обязательному в каждой модели. OPTN и NDP52 распознают цепи через убиквитин-связывающие модули и связывают аппаратуру автофагии. Киназа TBK1 фосфорилирует OPTN и поддерживает локальное рекрутирование, однако точный выигрыш сродства нельзя объявить фиксированным для всех субстратов и тканей.
Рецептор соединяет убиквитинированную органеллу с растущей мембраной фагофора, взаимодействуя с ATG8-белками, включая липидированную LC3. Общая запись LIR-мотива описывает один класс контактов; контекст фланкирующих аминокислот и их фосфорилирование меняют аффинность. Инициация и расширение фагофора требуют комплекса ULK1, PI3KC3, WIPI и ATG-конъюгационных систем; мембрану нельзя вывести из одного неизменного источника. После замыкания митофагосомы её слиянию с лизосомой содействуют Rab7, SNARE-белки, включая STX17, SNAP29 и VAMP8, а также другие белки позиционирования. V-АТФаза создаёт кислую среду, где катепсины и нуклеазы расщепляют содержимое.
Количество LC3-положительных структур или p-Parkin — снимок промежуточного состояния. Рост числа структур может означать как усиленную доставку, так и блок их утилизации. Для вывода о митофагическом потоке нужны измерения с учётом лизосомной стадии, например динамические репортёры или сравнение при блокаде деградации в подходящей экспериментальной модели. Путь PINK1/Parkin подробно охарактеризован, но существуют и Parkin-независимые рецепторные механизмы митофагии. Уролитин A способен менять связанные маркеры в доклинических моделях; из этого пока не следует, что именно вся указанная последовательность является обязательным и доказанным механизмом каждого клинического эффекта.
Удаление митохондрий имеет физиологический смысл только вместе с поддержанием достаточной энергопроизводящей массы и структуры сети. Энергетическое напряжение клетки отражается в соотношениях AMP/ATP и ADP/ATP. AMP и ADP связываются с регуляторной γ-субъединицей AMPK; фосфорилирование Thr172 в каталитической α-субъединице, в том числе киназой LKB1, усиливает активность комплекса. AMPK меняет использование субстратов и может фосфорилировать коактиватор PGC-1α. Это общая регуляторная физиология, а не установленная последовательность «уролитин A всегда сначала снижает ATP, затем обновляет все митохондрии». Подобное снижение ATP может быть и вредным; сама активность AMPK зависит от ткани, питания, нагрузки и времени наблюдения.
SIRT1 использует NAD⁺ как субстрат деацетилирования, в том числе PGC-1α. NAMPT участвует в реутилизации никотинамида; отношение NAD⁺/NADH, компартменты и расход NAD⁺ различны в цитозоле, ядре и матриксе. AMPK–PGC-1α–SIRT1 удобно рассматривать как связанную сеть, а не как одну обязательную линейную реакцию. PGC-1α коактивирует NRF1, рецепторы ERR и PPAR; ядерные программы повышают экспрессию компонентов дыхания, импорта белков и TFAM. Импорт TFAM в матрикс поддерживает упаковку и транскрипцию мтДНК. При этом биогенез включает также синтез липидов, импорт белков, сборку комплексов, репликацию мтДНК и ремоделирование сети: изменение одной сигнатуры транскрипции не измеряет целиком число новых функциональных органелл.
В мышце физическая нагрузка сама меняет AMPK, PGC-1α, митохондриальную сеть и капилляры. Чтобы приписать этой оси эффект добавки, нужны вмешательства, временной ряд и функциональная оценка, а не только совпадение двух маркеров после курса. В испытаниях уролитина A измеряли отдельные белковые и транскриптомные сигнатуры; их следует читать как признаки возможного ответа ткани, не как прямое наблюдение полной последовательности митофагия → биогенез → восстановление силы.
При повреждении мембран или дефектном контроле качества мтДНК может оказаться в цитозоле. Пора переходной проницаемости внутренней мембраны (mPTP), нарушение наружной мембраны, BAX/BAK-зависимые макропоры и другие процессы могут в разных условиях способствовать выходу мтДНК; единого обязательного канала нет. Цитозольная ДНК связывает cGAS, которая из ATP и GTP образует 2′3′-cGAMP. Этот циклический динуклеотид активирует STING на эндоплазматическом ретикулуме. Перемещение STING к аппарату Гольджи и рекрутирование TBK1/IRF3 ведут к транскрипции интерфероновых генов; сигнализация NF-κB добавляет воспалительные компоненты. Наличие бактериоподобных CpG-мотивов в мтДНК не заменяет ключевое условие: ДНК должна попасть в доступный сенсору компартмент.
Работы на животных и клеточных моделях показывают, что PINK1/Parkin могут ограничивать STING-зависимое воспаление при митохондриальном стрессе. Однако сказать, что пероральный уролитин A «блокирует» эту ось у пожилого человека, по имеющимся клиническим CRP и цитокинам нельзя. CRP — системный неспецифический показатель; он не локализует ни выход мтДНК, ни активность cGAS, ни источник цитокинов. Уточнять причинную цепь можно лишь при измерении соответствующих промежуточных событий в подходящей модели и, отдельно, в человеческой ткани.
Вторая возможная связь дефектных митохондрий с воспалением — NLRP3-инфламмасома. Её запуск удобно делить на прайминг и активацию. NF-κB-зависимый прайминг повышает экспрессию NLRP3 и про-IL-1β; последующие ионные, метаболические и органеллярные сигналы поддерживают сборку NLRP3 с адаптером ASC и прокаспазой-1. Активная каспаза-1 процессирует про-IL-1β и про-IL-18, а расщепление газдермина D создаёт поры, связанные с пироптозом. Окисленная мтДНК и митохондриальные ROS рассматриваются как возможные участники активации, но универсальное прямое связывание ox-mtDNA с определённым доменом NLRP3 и обязательный гептамерный остов не следует утверждать для всякой ткани.
Секреторный фенотип стареющих клеток, SASP, включает больше факторов и контекстов, чем одна инфламмасома. В мышцах воспалительные медиаторы способны влиять на IGF-1/Akt/mTOR, протеолиз, активность MuRF1 и atrogin-1, а также на среду стволовых клеток. Саркопения возникает и по другим причинам: денервация, снижение нагрузки, болезни, дефицит питания, гормональные и сосудистые изменения. Поэтому даже при уменьшении отдельных воспалительных маркеров нельзя заключить, что препарат устранил «воспалительное старение», восстановил миозин или предотвратил саркопению.
Субсарколеммальные митохондрии расположены ближе к сарколемме и сигнализации на её поверхности; интермиофибриллярные распределены между сократительными элементами, обеспечивая локальный обмен ATP и кальция. Различие между митохондриальным производством ATP и кратким фосфокреатиновым буфером объясняет, почему ответ выносливости нельзя подменять ответом максимальной силы; механизм буфера изложен в статье о креатине и мышечной работе. Это функциональные компартменты, но они взаимосвязаны. Динамика слияния и деления, дыхательная цепь, содержание крист, транспорт жирных кислот и контроль качества влияют на способность мышцы выдерживать нагрузку. Неполное β-окисление и изменения ацилкарнитинов могут сигнализировать о метаболической перестройке; концентрация плазменного ацилкарнитина не является прямым измерением ATP в миофибрилле. Диацилглицеролы, церамиды и PKCθ участвуют в липотоксическом нарушении инсулинового сигнала, однако причинная связь каждого из них с конкретной дозой уролитина A требует отдельной проверки.
Саркопению оценивают прежде всего по мышечной силе, массе и физической функции с применением критериев для конкретной популяции. Нарушение митохондриальной функции может способствовать её развитию, но не является единственным диагностическим механизмом. Клинические испытания уролитина A включали людей с разными исходными характеристиками; данные о силе здоровых или малоподвижных добровольцев нельзя автоматически переносить на пациентов с установленной саркопенией. Также показатель 6-минутной ходьбы зависит от сердца, лёгких, суставов, мотивации и тренировочного эффекта повторного тестирования.
Сателлитные клетки Pax7⁺ лежат между сарколеммой мышечного волокна и базальной пластинкой. В покое они сохраняют способность к самообновлению; после повреждения часть клеток активирует Myf5/MyoD, пролиферирует и дифференцируется с участием миогенина, а часть возвращается в резерв. Митохондриальная динамика, аутофагия и ROS участвуют в переходах между этими состояниями. Повышенные ROS не следует считать всегда патологическими: краткий сигнал необходим регенерации, тогда как хроническое повреждение и нарушенный контроль качества могут ограничить её. p16INK4a и p21CIP1 — маркеры контекстных программ старения и остановки цикла, а не прямые измерители мышечной силы.
Доклинические модели допускают гипотезу, что улучшение контроля митохондрий в Pax7⁺-клетках помогает сохранить регенераторный ответ. Но клинические испытания уролитина A не доказывают восстановление пула человеческих MuSC или образование новых зрелых миотуб у пациентов. Для такого вывода нужны биопсии с клеточными маркерами, отслеживание судьбы клеток и функциональная оценка регенерации, желательно после стандартизированного повреждения и с контролем тренировки.
Волокна I типа в среднем обладают высокой окислительной ёмкостью и устойчивостью к утомлению; IIa сочетают быстрый сократительный ответ с существенным аэробным компонентом; IIx опираются сильнее на гликолиз. Распределение типов зависит от мышцы, возраста, иннервации и тренировки. Утверждение о человеческих волокнах IIb как отдельной универсальной группе было бы некорректным. Старение особенно затрагивает быстрые моторные единицы, но клинический фенотип нельзя вывести из одного «сдвига типа».
PGC-1α-связанные программы способны затрагивать CPT1B, CD36, ферменты окисления и VEGF-A. Это связывает митохондриальный обмен с капилляризацией на уровне гипотез и экспериментальных моделей. При этом CPT1B регулирует вход длинноцепочечных ацильных остатков через карнитиновый шаттл, а CD36 — захват жирных кислот; подробнее ограничение этого этапа малонил-CoA разобрано в статье о CPT1 и β-окислении. Снижение лактата после нагрузки зависит не только от пируватдегидрогеназы, но и от интенсивности работы, тканевого обмена и его удаления. Клинические испытания уролитина A не показали надёжного увеличения capillary-to-fiber ratio, обязательного превращения IIx в I/IIa или доказанного ускорения клиренса лактата. Оценивать выносливость нужно по заранее определённому тесту и межгрупповому эффекту, а не по правдоподобной схеме волокон.
Клинические испытания отвечают на вопрос о конкретном измеренном исходе при конкретной дозе и сроке. Изменение ацилкарнитинов, экспрессии белков митофагии или самочувствия после нагрузки не заменяет заранее заявленную функциональную конечную точку. В этой области есть несколько рандомизированных исследований, но выборки невелики, а долгосрочных испытаний у пациентов с диагностированной саркопенией недостаточно. Препарат и часть исследований связаны с коммерческим спонсором; это требует особенно чёткого различения первичных и вторичных результатов, а не автоматического отрицания данных.
Первое исследование у людей включило 60 здоровых малоподвижных пожилых добровольцев. Протокол однократных и повторных доз оценивал безопасность, фармакокинетику и молекулярные показатели при короткой экспозиции; повторный приём продолжался 28 дней. Участники получали пероральный уролитин A в изученных группах, включая 250, 500 и 1000 мг/сут. Анализ плазмы и мышечных биоптатов выявил изменения, совместимые с перестройкой митохондриального метаболизма и профиля ацилкарнитинов. Это важное свидетельство экспозиции человека и биологической активности, но оно не является доказательством снижения риска саркопении, устойчивого прироста силы или восстановления митохондрий на протяжении лет. Биопсийная транскриптомная сигнатура тоже не измеряет митофагический поток сама по себе.
Исходный текст называл период полувыведения 17–22 часа, достижение стационарной концентрации за 3–4 дня и отсутствие токсичности вплоть до 2000 мг/сут так, будто это универсальный режим и долгосрочный порог. Такие характеристики различаются для свободного агликона и конъюгатов, дозы и режима; короткое наблюдение не устанавливает безопасную пожизненную экспозицию. В редакционном выводе остаются проверяемые рамки: изученные дозы переносились в ограниченной выборке и сроке, приём давал измеримые циркулирующие метаболиты и молекулярные изменения. Для функциональных клинических обещаний этого недостаточно.
В двойном слепом исследовании 66 взрослых 65–90 лет получали 1000 мг/сут уролитина A или плацебо четыре месяца. Две первичные конечные точки — изменение дистанции шестиминутной ходьбы и максимальной продукции ATP в мышце кисти — не показали статистически значимого межгруппового преимущества. Дистанция выросла в среднем на 60,8 м от исходного значения в группе активного вмешательства и на 42,5 м в группе плацебо. Положительная внутригрупповая разница поэтому не равна доказанной пользе относительно контроля. Для ATP-показателя различия также были малы и статистически неубедительны.
Вторичные тесты выявили сигнал большей выносливости передней большеберцовой мышцы и первой тыльной межкостной мышцы кисти, особенно через два месяца. Менялись отдельные плазменные ацилкарнитины, церамиды и CRP. Это согласуется с гипотезой о мышечном ответе, но множественные вторичные показатели и небольшая выборка требуют независимого воспроизведения. В выборке преобладали женщины и белые участники; средняя исходная дистанция указывала на относительно сохранную функцию. Данные нельзя без новой проверки переносить на пациентов с тяжёлой старческой астенией, иной этнической состав или на вывод о лечении саркопении. Указанный в исходной рукописи универсальный прирост выносливости «+17,3%» не нужен для честного описания результатов: важно, какой именно мышечный тест, время и сравнение он выражает.
Исследование 88 малоподвижных людей 40–64 лет с избыточной массой тела сравнивало плацебо, 500 и 1000 мг/сут в течение четырёх месяцев. Предварительно заданная основная точка — пиковая мощность при нагрузке — статистически значимо не улучшилась. Одновременно авторы сообщили примерно 12-процентное улучшение отдельных показателей силы ног и сигналы в измерениях аэробной функции, ходьбы, ацилкарнитинов и CRP. Для силы задней группы бедра на рисунке оригинальной работы приведены межгрупповые p = 0,027 и 0,029 для двух доз; это конкретнее, чем утверждение о приросте всей «силы колена» на 12% у любого пациента. Для VO₂ и 6MWD часть значимости относится к сравнению с собственным исходным уровнем, а не к преимуществу над плацебо. Именно такую разницу исходная рукопись местами теряла.
В биоптатах исследовали протеомные и транскриптомные пути, связанные с митохондриями; иммуноблот отдельных белков, включая фосфо-Parkin, выполнялся на малом подмножестве. Эти наблюдения поддерживают исследование механизма, но не устанавливают, что у всех участников активировался полный поток PINK1/Parkin до лизосомного разрушения органелл. Поскольку исследование спонсировала компания, связанная с продуктом, а часть авторов имела соответствующие связи, независимое повторение с заранее закреплёнными конечными точками особенно ценно. Нельзя игнорировать ни сигнал вторичных исходов, ни отрицательную первичную точку.
Оригинальная публикация Sports Medicine подписана Whitfield и соавторами, а не «D'Amico et al.» как первым автором. В рандомизированном двойном слепом испытании 42 хорошо тренированных бегуна-мужчины получали 1000 мг/сут уролитина A либо плацебо четыре недели во время высотного тренировочного сбора. В подгруппе выполняли тест на 3000 м; его результат не улучшился статистически значимо относительно сравнения. Участники с уролитином A показали сигнал меньшего воспринимаемого усилия и меньшую интегральную активность креатинкиназы после нагрузки, а мышечная протеомика дала признаки снижения воспалительных путей. Но респирометрия проницаемых мышечных волокон не показала улучшения митохондриальной функции в условиях протокола. Межгрупповое взаимодействие для VO₂max также не было значимым, хотя внутри активной группы показатель вырос.
Такой набор данных допускает гипотезу о влиянии на восстановление, но не подтверждает эргогенный эффект в гонке. Высотный сбор, малая подгруппа с тестом 3000 м, только мужчины и краткий срок ограничивают перенос на широкую спортивную практику. Не следует писать, что ускоренный клиренс лактата, снижение миоглобина и рост спортивной работоспособности уже доказаны этим исследованием: исходная рукопись объединяла эти разные показатели в слишком сильный вывод.
| Исследование и популяция | Доза и срок | Основная клиническая точка | Что остаётся после сопоставления с контролем |
|---|---|---|---|
| Andreux, здоровые пожилые, n=60 | Однократные дозы и до 28 дней повторного приёма | Переносимость, экспозиция, молекулярные показатели | Переносимость в коротком сроке и биологическая сигнатура; мышечное лечение не установлено. |
| Liu, пожилые 65–90 лет, n=66 | 1000 мг/сут, 4 месяца | 6MWD и максимальная ATP-продукция кисти | Обе первичные точки без значимого преимущества; вторичный сигнал локальной мышечной выносливости. |
| Singh, малоподвижные люди среднего возраста, n=88 | 500 или 1000 мг/сут, 4 месяца | Пиковая мощность | Первичная точка без значимого эффекта; отдельные вторичные показатели силы и биомаркеров благоприятны. |
| Whitfield, тренированные бегуны-мужчины, n=42 | 1000 мг/сут, 4 недели | Бег и показатели восстановления в условиях высотного сбора | Результат 3000 м не улучшен; CK и воспринимаемое усилие дают ограниченный сигнал восстановления. |
Данные не позволяют вывести общий «доказанный клинический консенсус» о профилактике старения или лечении мышечной болезни. Они позволяют точнее сформулировать следующие исследования: заранее выделять функциональную конечную точку, учитывать исходную функцию, тренировку и питание, измерять экспозицию свободного вещества и конъюгатов, отдельно проверять митофагический поток и долгосрочную безопасность.
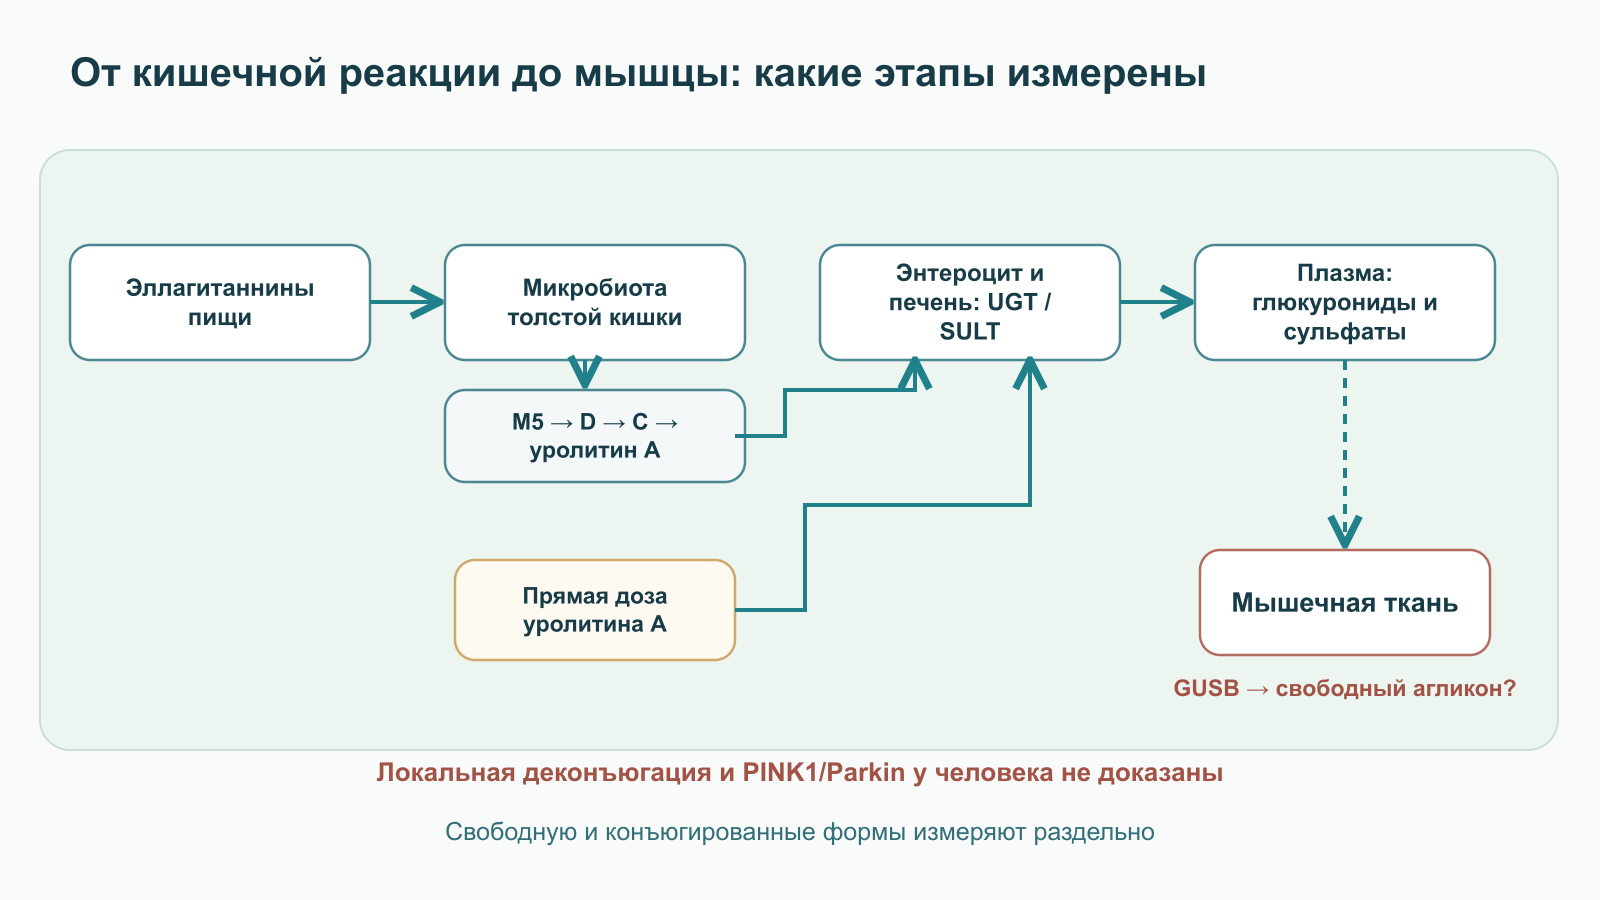
Пищевая эллаговая кислота должна пройти микробный этап; введённый перорально уролитин A этот этап обходит. Это различие объясняет меньшую зависимость от UM-A/UM-B/UM-0 при прямой дозе, но не даёт математического «100% успеха»: после приёма остаются вариации всасывания, конъюгации и выведения. Пиковая концентрация (), время пика () и площадь под кривой (AUC) зависят от того, измеряли ли свободный агликон, глюкуронид, сульфат или суммарное вещество после гидролиза образца. Сравнивать разные аналитические определения как одну концентрацию некорректно.
В исходнике 500 мл гранатового сока сравнивались с 1000 мг добавки и объявлялось «терапевтическое окно» 1,5–3,5 мкМ с восьми-десятикратной AUC. Без одинаковых химических матриц, доз эллагитаннинов, пробоподготовки и популяции эта точная шкала не является надёжным основанием клинического выбора. Прямую добавку можно описать как способ получить измеряемую экспозицию независимо от микробной конверсии предшественника; её предпочтение по долгосрочным функциональным исходам над эллагитаннин-содержащей диетой отдельным сравнительным испытанием не установлено.
После абсорбции фенольные группы уролитина A подвергаются глюкуронированию UGT и сульфатированию SULT в кишечнике и печени. Среди изучаемых изоформ называют UGT1A3, UGT1A8, UGT1A9 и UGT1A10; вклад каждой зависит от ткани и экспериментальной системы. В кровотоке часто преобладают глюкуронидные и сульфатные формы. Уролитин A 3-O-глюкуронид и 8-O-глюкуронид следует различать аналитически. Однако проценты 80–85%, 10–15% и менее 5% нельзя объявить постоянным составом циркулирующего пула при всех дозах и людях.
β-Глюкуронидаза GUSB гидролизует глюкуронидную связь и в определённых тканевых условиях может высвобождать агликон. Возможны вклад воспалительных клеток, внеклеточной ферментативной активности, местный pH и транспорт через мембраны. Это биохимически правдоподобный путь, но прямое доказательство, что у людей после стандартной добавки именно GUSB в работающей мышце создаёт достаточную локальную концентрацию агликона для активации PINK1/Parkin, отсутствует. Глюкуронид нельзя без таких измерений назвать гарантированным «пролекарством», которое селективно раскрывается только в больной ткани. Сам агликон также не обязан «концентрироваться в митохондриях» лишь по причине липофильности. Чтобы проверить маршрут, нужны тканевая фармакокинетика с пространственным разрешением, сопоставление свободной и конъюгированной форм и вмешательство в предполагаемый ферментный этап.
Участники описанных интервенций получали чаще всего 500 либо 1000 мг/сут, а ранний этап включал иные однократные дозы. Это исследовательские режимы для заданных популяций и продолжительности, не доказанные «профилактическая» и «терапевтическая» дозы для всех людей 35–50 и старше 60 лет. Не существует валидированного теста метаботипа, который сам по себе предписывает 500 мг утром, и приведённые испытания не установили длительный непрерывный курс для саркопении, восстановление после операций или улучшение профессионального спорта.
Выбор утренних часов, обязательный завтрак с липидами, запрет дробления дозы и необходимость «пикового Cmax для импульса Parkin» — исходные предположения, а не проверенные сравнением режимов правила. Аутофагические ритмы зависят от питания, сна и нагрузки; наличие циркадианной регуляции не делает 08:00–10:00 оптимальным клиническим окном. Если уролитин A рассматривают как добавку, доказательные рекомендации по физической активности, белку и коррекции причин слабости сохраняют приоритет. Результаты небольших исследований не должны задерживать диагностику прогрессирующей мышечной слабости.
Исходная рукопись предлагала три комбинации: уролитин A со спермидином 3–6 мг, с PQQ 20 мг и с NR 300–600 мг либо NMN 500 мг. Их смысловые гипотезы различаются. Спермидин связан с регуляцией аутофагии и трансляции, включая EP300 и гипусинирование eIF5A; PQQ изучается в контексте клеточной сигнализации и митохондриальных маркеров; NR и NMN выступают предшественниками путей NAD⁺. Обсуждение CD38 и клеточных пулов NAD⁺ в обзоре апигенина полезно здесь именно для различения кофакторного механизма и доказанной синергии добавок. Эти механизмы не означают, что совместный приём очищает все белковые агрегаты, обновляет кристы или насыщает сиртуины именно в человеческой мышце. Функция NAD⁺ также не сводится к «питанию комплекса I»: для переноса электронов важны локальные NAD⁺/NADH и состояние дыхательной цепи.
| Предложенная комбинация | Биологический вопрос | Клинический пробел |
|---|---|---|
| Уролитин A + спермидин | Дополняют ли пути органеллярного и общего протеостаза друг друга? | Нет доказанной для указанной пары дозы, функциональной эффективности и безопасности длительного приёма. |
| Уролитин A + PQQ | Совпадают ли клиренс и биогенез в нужных тканях и сроках? | Нет показанного ускоренного замещения митохондрий или лечения саркопении. |
| Уролитин A + NR/NMN | Меняет ли доступность NAD⁺ ответ ткани? | Нет доказательства, что добавление предшественника улучшает клинический исход сверх одного уролитина A. |
Факторный дизайн с изолированными и комбинированными группами позволил бы проверить взаимодействие. Простое сложение механизмов из разных публикаций не является измерением синергии, поэтому эти стеки не следует выдавать за готовый протокол.
Краткосрочные испытания не выявили крупного сигнала непереносимости в изученных дозах и выборках, но редкие события и годы непрерывного приёма ими оценить нельзя. Доклинический NOAEL выражается в мг/кг для конкретного вида, пола и протокола. Умножать животное значение на 70 кг и объявлять полученные «более 200 г/сут» безопасной дозой человеку нельзя: межвидовые различия и коэффициенты неопределённости делают такую арифметику бессмысленной. Статус GRAS отдельного ингредиента относится к определённым условиям предполагаемого пищевого использования; он не является одобрением лечения саркопении, спортивной эффективности или произвольной дозы продукта.
Данные о взаимодействиях с CYP и UGT ограничены; отсутствие обнаруженного эффекта в доступных моделях не исключает взаимодействий при полипрагмазии и иной экспозиции. При хронических болезнях, беременности, лечении препаратами с узким терапевтическим окном и симптомах мышечной слабости решение требует индивидуальной клинической оценки. АЛТ, АСТ, креатинин, eGFR, CK, глюкоза и липидный профиль могут назначаться по клинической задаче, но нет подтверждённого «уролитинового» набора лабораторных порогов или ожидаемого снижения hs-CRP на 20–25% через 12–16 недель. CK после нагрузки зависит от интенсивности и времени забора; CRP, IL-6 и HOMA-IR неспецифичны. Динамометрия, мышечная масса, физическая функция и причины слабости оцениваются по соответствующим клиническим критериям, а не для подтверждения обязательного эффекта добавки.
История уролитина A важна тем, что объединяет химическую трансформацию пищи микробиомом, сигнализацию качества митохондрий и первые измерения функции мышцы у человека. Наиболее надёжно установлен молекулярный язык PINK1/Parkin: импорт и протеолиз PINK1 зависят от состояния органеллы, pSer65-Ub и фосфо-Ubl раскрывают Parkin, убиквитиновые цепи собирают рецепторы, а фагофор должен дойти до лизосомного разрушения. Для уролитина A есть доклинические данные о влиянии на эту систему и человеческие данные об экспозиции и отдельных биомаркерах. Но полная причинная цепь от принятой капсулы до лизосомного потока в конкретной человеческой мышце и предотвращения саркопении пока не продемонстрирована.
Клиническая картина неоднородна: в исследованиях пожилых и среднего возраста первичные функциональные точки оказались нейтральными, при этом отдельные вторичные тесты силы или локальной выносливости дали положительные сигналы. У тренированных бегунов некоторые маркеры восстановления улучшались без убедительного улучшения результата на 3000 м. Эта неоднородность продуктивна для исследований: она уточняет, какой фенотип, дозу, срок и механизм нужно проверять дальше. Для клинициста и исследователя корректный вывод — перспективная, но ещё ограниченная доказательная база, а не признанный протокол омоложения мышцы, лечения саркопении или повышения спортивного результата.
Это нарративная редакционная переработка исходной рукописи с её библиографической базой. В ходе подготовки 4 октября 2026 года адресно сверены оригинальные публикации Liu, Singh и Whitfield из-за противоречий между заявленной клинической пользой и дизайном либо основными исходами; для Andreux уточнена идентификация статьи. Полного систематического поиска литературы, заранее опубликованного протокола отбора, формальной оценки риска смещения и GRADE не проводилось. Поэтому список источников не гарантирует исчерпывающий охват, а механистические подробности не означают независимой проверки каждой реакции в человеческой ткани. Ключевые клинические выводы следует читать с учётом первичных точек, популяции, срока и возможного конфликта интересов.
Это нарративный обзор уролитина A, митофагии и мышечной функции. Литературная подборка включает 30 публикаций. В редакции от 4 октября 2026 года адресно сверены ключевые клинические результаты, в том числе различие первичных и дополнительных исходов и изменений внутри группы и между группами. Систематический поиск по заранее заданному протоколу, метаанализ и формальная оценка риска смещения всех включённых работ не проводились; подборка не является исчерпывающей.
Ферментные реакции и клеточные модели объясняют исследовательскую гипотезу, но не подтверждают клиническое улучшение выносливости. Испытания у людей рассматриваются с учётом возраста, состояния участников, длительности вмешательства и выбранного исхода. Изменение молекулярного маркера, функционального теста и результата спортивного соревнования — разные уровни данных. Положительное дополнительное наблюдение не подменяет результат первичной конечной точки.
Нет. Испытания у взрослых среднего и старшего возраста обнаружили отдельные положительные вторичные сигналы, но основные функциональные точки в Liu и Singh не подтвердились. Пациенты с установленной саркопенией и долгосрочные исходы требуют специальных исследований.
При снижении импорта PINK1 задерживается на внешней мембране и фосфорилирует убиквитин. Это привлекает и активирует Parkin, запускающий накопление мембранных убиквитиновых цепей и рекрутирование рецепторов фагофора; завершение процесса требует лизосомы.
Прямая доза обходит микробный этап образования уролитина, но пища и добавка — разные вмешательства. Сравнительное превосходство по долгосрочной мышечной функции не установлено.
В четырёхнедельном испытании тренированных бегунов время на 3000 м значимо не улучшилось. Отдельные показатели восстановления дали сигнал, нуждающийся в повторении.
Нет. 500 и 1000 мг — изученные исследовательские дозы, а оптимальное время приёма, длительное лечение и клиническая синергия комбинаций не установлены.