Xenohormesis: estrés vegetal, adaptación celular y límites de la evidencia sobre longevidad
Cómo la química defensiva vegetal interactúa con Nrf2, AMPK, sirtuinas y autofagia. Biosíntesis, agroecología, metabolitos, farmacocinética y límites del traslado a salud y duración de vida humana.
La sequía, la radiación ultravioleta y los patógenos modifican la química de las plantas. Algunas sustancias defensivas interactúan después con enzimas animales, sensores de electrófilos y vías energéticas. La xenohormesis propone que los consumidores podrían utilizar esos cambios como aviso temprano de un ambiente adverso. Es una hipótesis evolutiva que merece investigación, pero no demuestra que las plantas estresadas o los suplementos de polifenoles prolonguen la vida humana.
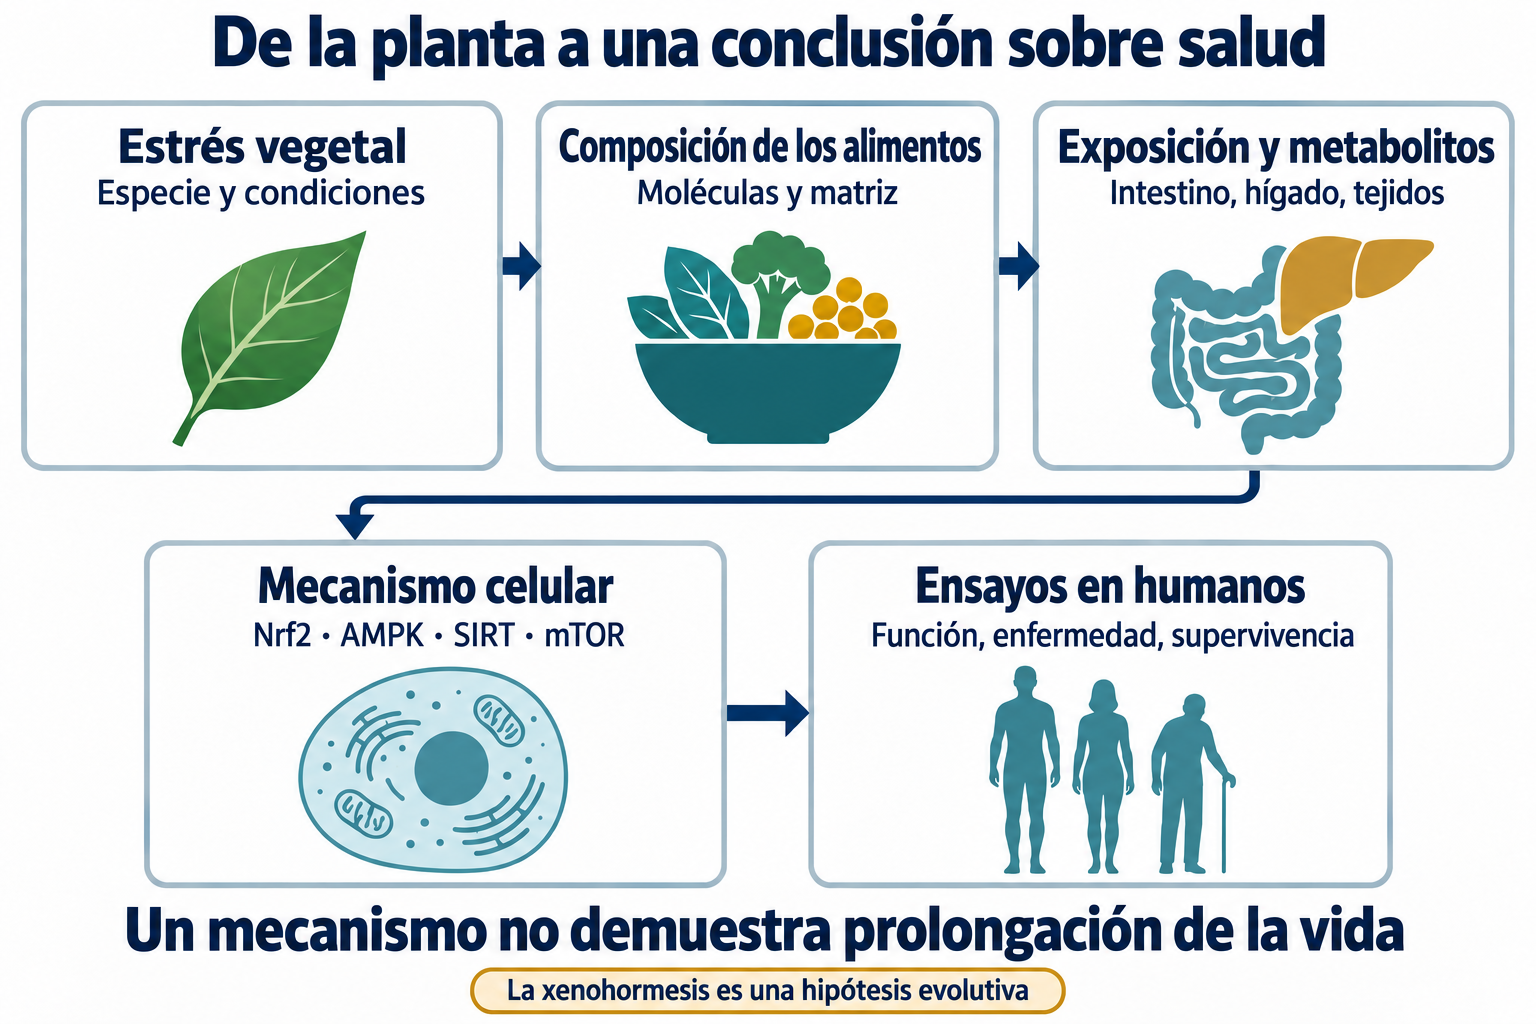
Conviene separar lo que cambió en la planta, las moléculas y metabolitos que llegaron al tejido, la respuesta de una diana y el resultado para la salud. La activación de Nrf2, la fosforilación de AMPK, el cambio de acetilación y la reducción de un marcador de senescencia son acontecimientos diferentes. Ninguno mide por sí solo la duración de la vida saludable.
1. Qué explica la hipótesis
1.1. La hormesis describe una respuesta, no garantiza beneficio
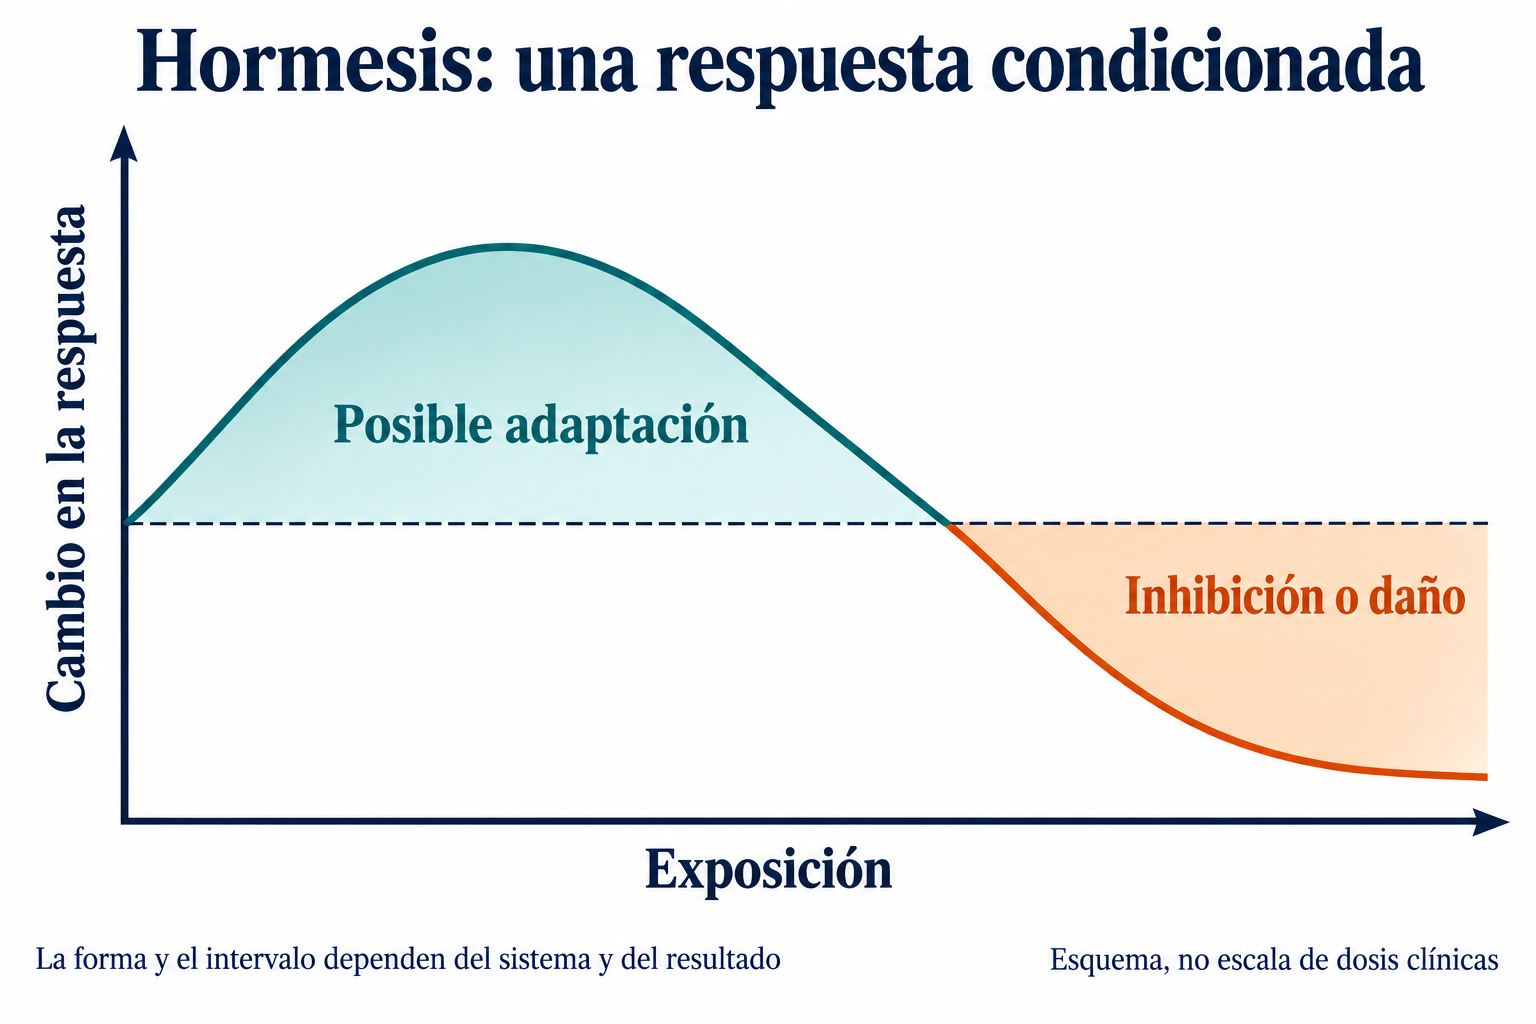
La hormesis es una relación bifásica entre una exposición y una respuesta concreta: un estímulo débil puede favorecer la adaptación, mientras uno mayor inhibe una función o produce daño. Según el resultado medido, la curva puede ser una U o una U invertida. Describe una observación, no una ley universal para cada molécula, tejido o enfermedad. La farmacología ha utilizado diversos modelos; reducir toda su historia a relaciones lineales sin umbral sería incorrecto.
La adaptación puede aumentar enzimas protectoras, reparación y recambio proteico, con cambios del gasto energético. La modificación electrofílica de un sensor o un cambio energético transitorio pueden iniciar respuestas antes de una lesión irreversible. No son requisitos un daño inicial obligatorio ni una amplificación fija de todas las defensas. Calabrese y Baldwin, 2003.
En este modelo ilustrativo, el primer término representa una adaptación saturable y el segundo un coste creciente. No está ajustado a un experimento: parámetros, intervalo y existencia de una región favorable deben comprobarse. Duración, repetición, enfermedad y resultado también importan. Una curva favorable para una variable no demuestra seguridad para otra.
1.2. Señal entre especies e interpretación evolutiva
Howitz y Sinclair propusieron que los animales podrían «escuchar» la química del estrés vegetal. Los metabolitos defensivos podrían advertir de recursos deteriorados antes de una escasez para el consumidor. La dependencia trófica y los reguladores celulares conservados hacen plausible la idea, pero su valor adaptativo requiere comparaciones entre especies y contexto ecológico. Howitz y Sinclair, 2008.
La unión de una molécula vegetal a una proteína humana no prueba que esta evolucionara para anticipar sequías. La reactividad amplia, la defensa frente a xenobióticos y la compatibilidad estructural son explicaciones alternativas. Un xenohormetino es un candidato a señal, no una clase química con farmacología uniforme.
Howitz y colaboradores relacionaron pequeños activadores de sirtuinas con la vida replicativa de levaduras. Estudios posteriores precisaron los ensayos y la dependencia del sustrato. El resultado no se extiende a todas las sirtuinas o tejidos humanos; el análisis de resveratrol, pterostilbeno y SIRT1 desarrolla esta diferencia.
1.3. Varias ramas de la defensa vegetal
Jasmonatos, ácidos salicílico y abscísico, etileno y señales redox regulan crecimiento y defensa. La fenilalanina amonio-liasa PAL incorpora fenilalanina al metabolismo fenilpropanoide. CHS y STS utilizan sustratos acil-CoA para generar esqueletos flavonoides y estilbénicos; FLS participa en los flavonoles.
No todas las defensas siguen esta rama. Los glucosinolatos de las crucíferas derivan de aminoácidos y contienen azufre; la glucorafanina está vinculada al metabolismo de metionina. El daño tisular permite formar isotiocianatos. Los secoiridoides del olivo tampoco son productos ordinarios de PAL–CHS–STS.
Los pigmentos filtran radiación, las fitoalexinas limitan patógenos y algunos productos de lesión disuaden a herbívoros. Son funciones útiles principalmente para la planta. Una mayor concentración defensiva no garantiza una dosis beneficiosa para quien la consume: algunas sustancias son tóxicas o reducen la digestibilidad.
1.4. Qué observaciones distinguen hipótesis y mecanismo
Comparar un extracto con un tubo de control no basta. Se necesitan medidas del estrés vegetal, caracterización de la comida, exposición del consumidor e intervención sobre la diana propuesta. Eliminar un sensor, restaurarlo y comparar la molécula purificada con la matriz permite reconstruir parte de la causalidad.
La afirmación evolutiva exige comprobar si la respuesta mejora la supervivencia en el ambiente predicho y si existe reconocimiento específico. Un resultado positivo no excluye estrés celular inicial. La xenohormesis no certifica que un extracto sustituya de forma segura cualquier estímulo fisiológico adaptativo.
2. Nodos celulares compartidos
2.1. Keap1–Nrf2–ARE y detección de electrófilos
Nrf2, codificado por NFE2L2, regula defensas frente a electrófilos y oxidantes. En condiciones basales, el dímero Keap1 es adaptador de sustrato de Cul3–Rbx1, favoreciendo ubiquitinación y degradación proteasómica de Nrf2. El dominio BTB contribuye a dimerización y unión a Cul3; la región intermedia contiene cisteínas relevantes, y Kelch reconoce los motivos ETGE y DLG.
Sus afinidades diferentes ayudan a orientar el sustrato, pero las constantes dependen del constructo y el método. Modificar Cys151 u otras cisteínas puede reducir la ubiquitinación eficaz. Dinkova-Kostova y colaboradores demostraron la importancia de grupos sulfhidrilo; no todos los inductores comparten una única cisteína diana.
La liberación obligatoria de una «cerradura» DLG tras sulforafano es demasiado literal. Baird y colaboradores observaron acumulación del complejo cerrado sin liberación necesaria de Nrf2 unido. Alterar el reciclaje de Keap1 permitió acumular Nrf2 recién sintetizado. La conclusión general es menor ubiquitinación eficaz, no disociación universal de DLG. Baird y colaboradores, 2013.
Nrf2 nuclear se combina con proteínas Maf pequeñas en elementos ARE. La respuesta incluye NQO1, glutatión-S-transferasas, HMOX1, GCLC/GCLM, transporte de cistina por SLC7A11 y producción de NADPH mediante G6PD, PGD y ME1. NQO1 reduce quinonas con dos electrones; la hemo oxigenasa produce biliverdina, hierro y CO; reducir GSSG utiliza NADPH. La expresión de un gen no mide toda la función redox de esta red.
La activación persistente también puede ayudar a células tumorales a sobrevivir y resistir tratamientos. Tejido, tiempo y enfermedad determinan la utilidad. «Más Nrf2» no es un objetivo universal, y no toda sustancia vegetal actúa como antioxidante directo.
2.2. AMPK: energía y vías de activación
AMPK contiene subunidades α catalítica, β reguladora y γ de unión a nucleótidos. La fosforilación de Thr172 es importante; LKB1 y CaMKK2 dependiente de calcio ofrecen rutas diferentes. La alostería por AMP y la protección frente a desfosforilación son acontecimientos distintos; ADP también modifica estados del complejo.
El equilibrio de adenilato quinasa ayuda a explicar la sensibilidad del AMP al déficit energético. Algunas sustancias inhiben respiración o alteran ATP a determinadas concentraciones; otras afectan enzimas señalizadoras. Inhibir complejo I no equivale a desacoplar mediante un protonóforo, y ningún mecanismo corresponde a todos los polifenoles. Mucha fosfo-AMPK en cultivo puede indicar estrés energético tóxico.
AMPK puede inhibir ACC, reducir malonil-CoA y su restricción de CPT1, modificar lipogénesis mediante HMGCR/SREBP y favorecer tráfico muscular de GLUT4 por reguladores Rab-GAP. Fosforilar PGC-1α conecta energía y programa mitocondrial. Los residuos y magnitudes dependen de isoforma y especie. Hardie y colaboradores, 2012.
2.3. Sirtuinas: sustrato y NAD por compartimentos
La desacetilación por sirtuinas consume NAD⁺ como cosustrato:
OAcADPR significa O-acetil-ADP-ribosa. SIRT1–SIRT7 difieren en localización y reacciones de desacilación; una ecuación no describe toda la familia. NAD⁺ disponible, NAM y sustrato proteico condicionan actividad. La relación NAD⁺/NADH no sustituye una medida de NAD⁺ en el compartimento adecuado.
Los ensayos STAC iniciales usaban péptidos fluorescentes, generando controversia. Hubbard y colaboradores encontraron que ciertos motivos hidrófobos de sustratos naturales también permiten alostería, con participación de Glu230 para los activadores estudiados. Esto apoya un mecanismo directo en condiciones apropiadas, no para todo sustrato. PDB 4I5I contiene el dominio catalítico SIRT1, NAD y un análogo inhibidor de EX527; no es una estructura de resveratrol que pruebe el bolsillo STAC.
Cantó y colaboradores vincularon AMPK con metabolismo de NAD y SIRT1. NAMPT reutiliza NAM, mientras el consumo de cofactor también importa. Las vías NR/NMN y recuperación de NAD⁺ ofrecen contexto, sin implicar que un polifenol active por igual SIRT1, SIRT3 mitocondrial y SIRT6 nuclear.
SIRT1 modifica acetilación de PGC-1α, FOXO y RelA/p65; SIRT3 regula proteínas como SOD2 e IDH2; SIRT6 interviene en cromatina y mantenimiento del genoma. PGC-1α, factores respiratorios nucleares y TFAM corresponden a un programa distinto de NFE2L2/Nrf2. Regular SOD2 no elimina todos los mtROS, ni SIRT6 equivale a una sola modalidad genérica de reparación de roturas.
2.4. mTORC1, flujo autofágico y mitofagia
mTORC1, con Raptor y mLST8, coordina crecimiento y síntesis proteica mediante S6K y 4E-BP1. AMPK puede limitarlo por TSC2–Rheb y Raptor. Ambas vías regulan ULK1 y conectan nutrientes e inicio de autofagia. Kim y colaboradores demostraron fosforilación directa de ULK1 en sus sistemas; los sitios no establecen un protocolo universal.
ULK1–ATG13–FIP200–ATG101, Beclin-1/VPS34 y PI3P participan en el fagóforo. ATG12–ATG5–ATG16L1 y ATG7/ATG3 contribuyen a membranas y lipidación de LC3 con fosfatidiletanolamina. Adaptadores como p62 vinculan carga seleccionada con eliminación. Completarla requiere fusión lisosomal y degradación.
Más LC3-II o autofagosomas pueden significar mayor formación o bloqueo final: el flujo necesita medidas dinámicas. Un marcador no prueba limpieza total de lipofuscina, agregados u orgánulos. Con despolarización, PINK1 puede estabilizarse en membrana externa, fosforilar ubiquitina y promover marcado por Parkin; NDP52 y optineurina capturan carga. Existen otras rutas. Urolitina A y función muscular muestran diferencias de modelos; mayor mitofagia no demuestra eliminación selectiva de ADNmt mutante.
3. Diversidad química y dianas
3.1. Resveratrol y pterostilbeno
Los estilbenos tienen dos anillos aromáticos unidos por etileno. El trans-resveratrol posee hidroxilos en 3, 5 y 4′; el pterostilbeno sustituye dos por metoxilos. La luz cambia proporciones de isómeros, y la metilación modifica lipofilia, conjugación y distribución. La estructura no prueba inactividad completa de una forma ni acceso superior al cerebro humano de otra.
Uvas y Fallopia japonica son fuentes de resveratrol; algunas bayas y madera de Pterocarpus contienen pterostilbeno. Los alimentos no equivalen a extractos estandarizados. Cifras elevadas de biodisponibilidad suelen proceder de condiciones animales concretas. El ensayo de seguridad breve de Riche y colaboradores tampoco midió longevidad.
3.2. Quercetina y fisetina
Los flavonoles poseen esqueleto C₆–C₃–C₆, 3-hidroxilo y 4-oxo. Quercetina contiene cinco hidroxilos, con pareja catecol 3′/4′; fisetina carece del 5-hidroxilo. Cambian enlaces de hidrógeno y metabolismo, pero esto no predice selectividad senolítica ni una rotación decisiva del anillo.
Hidroxilos y carbonilo participan en unión de metales y reacciones redox. Quercetina también interacciona con proteínas, incluidas quinasas, según concentración. Quelar no siempre evita oxidación: importan complejo y medio, como ilustra Fenton.
Alcaparras, cebolla y trigo sarraceno contienen quercetina; fresas y otras frutas, fisetina. Variedad, órgano y preparación cambian cantidades. La exposición alimentaria no equivale a concentraciones senolíticas de cultivo.
3.3. Sulforafano tras daño del tejido
Sulforafano es un isotiocianato alifático, no un polifenol. Cortar o masticar permite interacción de glucorafanina y mirosinasa; hidrólisis del tioglucósido y reorganización generan productos. pH, proteínas especificadoras y procesamiento alteran la mezcla. Sinigrina pertenece a otra rama y no es precursor de sulforafano.
N=C=S forma aductos ditiocarbamato con tioles, participando en Keap1 y metabolismo del glutatión. La reversibilidad no garantiza seguridad ni limita reacción a Cys151. Zhang y colaboradores aislaron el inductor; Fahey y colaboradores estudiaron brotes ricos en precursores. Inducir enzimas no prueba prevenir todos los cánceres humanos.
3.4. Curcumina y dificultades del ensayo
Curcumina es un difenilheptanoide fenólico con región dicetónica conjugada. El equilibrio ceto–enol depende de disolvente y condiciones; solubilidad, degradación, proteínas y oxidación también determinan disponibilidad. No hay una descripción universal de tautomería acuosa.
Regiones electrofílicas reaccionan con nucleófilos, como cisteína. Cambios en Nrf2, IKK/NF-κB o STAT3 requieren controles de especificidad, estabilidad e interferencia. Muchos cambios simultáneos no demuestran un ligando informativo específico. La formulación modifica exposición, pero su utilidad requiere resultados clínicos.
3.5. EGCG: bebida frente a extracto
Epigalocatequina-3-galato es un flavan-3-ol galoilado del té verde. Grupos fenólicos, estereoquímica y flexibilidad condicionan redox e interacción proteica. Se investigan receptor de laminina de 67 kDa, enzimas y dianas epigenéticas; no implica acción clínica simultánea sobre todas ellas.
Oxidación en medio de cultivo puede generar peróxido de hidrógeno y alterar el ensayo. Debe separarse molécula inicial de medio y productos. Los extractos concentrados difieren del té; Dostal y colaboradores observaron elevaciones de ALT, limitando la seguridad universal atribuida a lo natural.
3.6. Secoiridoides del olivo e hidroxitirosol
Oleuropeína es un secoiridoide glucosilado con fragmento de hidroxitirosol. Eliminar glucosa produce aglicona; liberar hidroxitirosol exige otras transformaciones, incluida hidrólisis. Una sola β-glucosidasa no lo convierte directamente todo en hidroxitirosol libre.
Hidroxitirosol es un feniletanoide con catecol. Cultivar, madurez, procesamiento y conservación cambian el aceite. Compuestos libres, derivados y matriz no equivalen a un producto aislado. ORAC es un ensayo químico, no protección vascular o años de vida. Los estudios del aceite en dieta no aíslan una molécula.
| Compuesto | Fórmula | Masa molar, g/mol | Rasgo estructural |
|---|---|---|---|
| Resveratrol | C₁₄H₁₂O₃ | 228,25 | Trihidroxiestilbeno |
| Pterostilbeno | C₁₆H₁₆O₃ | 256,30 | Dos metoxilos |
| Quercetina | C₁₅H₁₀O₇ | 302,24 | Pentahidroxiflavonol |
| Fisetina | C₁₅H₁₀O₆ | 286,24 | Tetrahidroxiflavonol |
| Sulforafano | C₆H₁₁NOS₂ | 177,29 | Isotiocianato y sulfóxido |
| Curcumina | C₂₁H₂₀O₆ | 368,38 | Región dicetónica conjugada |
| EGCG | C₂₂H₁₈O₁₁ | 458,37 | Catequina galoilada |
| Oleuropeína | C₂₅H₃₂O₁₃ | 540,51 | Glucósido secoiridoide |
| Hidroxitirosol | C₈H₁₀O₃ | 154,16 | Feniletanoide catecólico |
Fórmula y masa identifican la sustancia, no su dosis eficaz. La actividad exige conocer pureza, isómeros, concentración libre y sistema experimental.
4. Agroecología y composición alimentaria
4.1. Crecimiento y defensa no son un interruptor
Balance carbono–nutrientes y crecimiento–diferenciación describen reparto de recursos. Nitrógeno, luz y agua cambian metabolitos, pero especie, órgano, desarrollo e intensidad de estrés modifican la respuesta. El carbono no va exclusivamente a biomasa o defensa. Bryant y colaboradores, 1983.
Los pesticidas no eliminan todas las señales ni suprimen necesariamente todos los fenilpropanoides. El metaanálisis de Barański encontró diferencias medias entre sistemas; no prueba que cada cultivo industrial contenga varias veces menos sustancias beneficiosas. Composición no mide salud del consumidor ni valida xenohormesis.
4.2. Agua, UVR8 y elicitores: compromisos
Riego deficitario puede cambiar hormonas y frutos; sequía intensa reduce fotosíntesis y cosecha. Más concentración por peso fresco puede reflejar menos agua. Se necesitan masa seca, contenido por fruto y rendimiento total; aumentos de cientos por ciento no son una regla.
UV-B activa UVR8–COP1–HY5 y puede aumentar pigmentación defensiva. Elicitores biológicos, incluidos componentes de paredes, afectan inmunidad vegetal. Se investigan por cultivo, con rendimiento, composición y lesión; no existe un estrés universalmente seguro que mejore todo alimento.
4.3. Plantas silvestres, variedades y seguridad
Bayas silvestres y plantas de montaña pueden tener perfiles interesantes. Compararlas con cultivadas mezcla genética, suelo, madurez, órgano y métodos. No está demostrada superioridad universal para cada xenohormetino.
La riqueza química no sustituye identificación correcta ni control de contaminantes. Defensa vegetal y utilidad humana son preguntas distintas. Origen agroecológico es una variable de investigación, no propiedad clínica autónoma.
5. Exposición desde alimento hasta tejido
5.1. Absorción y primer paso
La actividad aislada importa a exposición alcanzable. Resveratrol se absorbe bien, pero se conjuga rápido: la molécula libre es mucho menor que el total de derivados. Walle y colaboradores, 2004. Baja biodisponibilidad del compuesto inicial no significa ausencia de absorción; mucha absorción no garantiza llegada a todo tejido.
UGT genera glucurónidos, SULT sulfatos y COMT metila ciertos catecoles. Cambian solubilidad, transporte y dianas; no son automáticamente desechos inactivos ni profármacos garantizados.
La reacción es esquemática. Localización enzimática, isómero y eliminación determinan exposición. Dosis de cápsula, nivel plasmático y concentración intracelular son magnitudes distintas.
5.2. Transformación microbiana
Compuestos no absorbidos llegan al colon. Enzimas microbianas rompen glucósidos y anillos, generando ácidos fenólicos y otros productos. Elagitaninos pueden pasar por ácido elágico a urolitinas; urolitina A deriva de dibenzo-α-pirona. Producción depende del metabotipo, no es universal.
Formar equol de daidzeína también exige microbiota apropiada. Igual alimento no garantiza igual exposición ni todo metabolito atraviesa la barrera hematoencefálica. Administrar urolitina A y comer su precursor requieren comparaciones separadas. Ryu, 2016; Andreux, 2019.
5.3. Desconjugación local y membranas
β-Glucuronidasa libera agliconas de ciertos glucurónidos en determinadas condiciones. Ishisaka y colaboradores lo mostraron para derivados de quercetina en modelos de macrófagos. Apoya metabolismo local, no entrega terapéutica de cualquier polifenol a todo órgano inflamado.
La partición de sustancias lipófilas en membranas cambia interacción con proteínas, pero no prueba un incremento activo universal de cien veces. Se deben medir fracción libre, distribución y acción sobre diana.
5.4. Distancia entre cultivo y persona
Cultivos usan a menudo concentraciones micromolares; la molécula libre tras comer puede estar muy por debajo. Trasladar resultados exige duración, unión proteica, metabolitos y toxicidad. Microbiota, membranas o desconjugación no cierran automáticamente esa distancia.
Una evaluación útil une farmacocinética analítica, acción sobre diana y resultado. Cambiar Nrf2 solo a concentraciones lesivas no demuestra adaptación alimentaria útil. Un metabolito que alcanza tejido necesita ensayo propio, sin heredar las propiedades de su aglicona.
6. Evidencia sobre salud y duración de vida
6.1. Organismos sencillos y contexto mamífero
Levaduras e invertebrados permiten estudiar genes y alimentación. Supervivencia depende de cepa, alimento, disolvente y análisis de mortalidad. Howitz, 2003; Wood, 2004. En mamíferos también importan sexo, edad inicial y patología.
Baur, 2006, encontró mejoras de salud y supervivencia con dieta hipercalórica. Pearson, 2008, encontró cambios funcionales sin prolongación de vida con dieta normal. Mejorar una patología nutricional no equivale a aumentar longevidad normal o imitar universalmente restricción calórica.
6.2. Resultados cardiometabólicos y dieta
PREDIMED incluyó 7447 participantes de alto riesgo, con dieta mediterránea más aceite o frutos secos. El reanálisis de 2018 abordó desviaciones de procedimientos de aleatorización. Menos eventos cardiovasculares mayores apoya la dieta estudiada, pero no aísla hidroxitirosol ni prueba xenohormesis evolutiva. Estruch, 2018.
Los ensayos de resveratrol aislado no concuerdan siempre. Poulsen, 2013, estudió 24 hombres con obesidad durante cuatro semanas sin mejora de sensibilidad a insulina por clamp y otros resultados. AMPK, SIRT1 o FOXO no garantizan beneficio: FOXO1 hepático puede promover gluconeogénesis. Tejido y estado determinan dirección.
6.3. Sistema nervioso y brecha clínica
Experimentos conectan algunos fitoquímicos con inflamación, mitocondrias y CREB–BDNF; se discuten FNDC5 y procesamiento de APP por ADAM10. Un cambio neuronal en cultivo no demuestra prevención de demencia o memoria humana mejorada. Hacen falta exposición cerebral y resultados clínicos adecuados.
M1/M2 simplifica diversidad de microglía. Reducir un marcador inflamatorio no implica restaurar una red neuronal. Deben separarse molécula inicial, metabolitos, células inmunes y cognición.
6.4. Senolíticos, senomórficos y selectividad
Células senescentes pueden sostener SASP, pero p16 no identifica siempre senescencia irreversible y no todo SASP es perjudicial en cualquier contexto. Senolíticos reducen células seleccionadas; senomórficos modifican secreción. Quercetina y fisetina dependen del tipo celular y estrés. Zhu, 2015; Yousefzadeh, 2018.
Hickson, 2019, probó abiertamente dasatinib más quercetina en nueve pacientes con enfermedad renal diabética, midiendo marcadores tras un curso breve. No estudió vida humana ni quercetina sola. Fisetina, SASP y selectividad senolítica amplían la diferencia. Dosis y ciclos murinos no son protocolos de automedicación.
6.5. Resultados diferentes, conclusiones diferentes
Defensa antioxidante, fuerza muscular, infarto y mortalidad global miden cosas distintas. Una mejora significativa no significa desacelerar todo envejecimiento. Control, muestra, duración, riesgo y efectos adversos condicionan interpretación.
| Trabajo y modelo | Observación | Lo que no demuestra |
|---|---|---|
| Baur, 2006: ratones, dieta hipercalórica | Supervivencia y metabolismo con resveratrol | Mayor vida con cualquier dieta |
| Pearson, 2008: dieta normal | Cambios de salud sin mayor longevidad | Función equivale a duración de vida |
| Estruch, 2018: PREDIMED, 7447 personas | Eventos cardiovasculares tras cambio alimentario | Hidroxitirosol aislado o xenohormesis probada |
| Poulsen, 2013: 24 hombres, cuatro semanas | Sin mejora establecida de insulina y otras medidas | Beneficio obligatorio de resveratrol |
| Hickson, 2019: nueve pacientes, abierto | Marcadores tras D+Q | Quercetina sola, menor mortalidad o prevención validada |
| Andreux, 2019: ensayo temprano de urolitina A | Seguridad y medidas moleculares | Vida humana más larga o equivalencia con elagitaninos |
7. Alimentos, formulaciones y condiciones
7.1. Una intervención multicomponente
Verduras, bayas, frutos secos y aceite aportan conjuntamente fibra, grasas, micronutrientes y fitoquímicos. No se reducen a una señal de estrés. Diversidad alimentaria permite hablar de fuentes sin fijar dosis diaria necesaria de cada polifenol.
Cortar y calentar cambian matriz y productos enzimáticos, particularmente mirosinasa del brócoli. Hidrólisis también importa para oliva y glucósidos. Crudo o concentrado no significa siempre mejor.
7.2. Formulación y exposición
Liposomas, micelas, partículas y grasas pueden cambiar disolución y absorción. Deben compararse formulaciones, metabolitos y resultados; la etiqueta tecnológica no garantiza entrega cerebral. Más exposición también puede aumentar daño.
Piperina y otros componentes alteran metabolismo o transporte y pueden interactuar con medicamentos. «Potenciador» no sustituye estudios de interacción. Un preparado no representa todos los productos de curcumina o resveratrol.
7.3. Horario y recuperación
Vías energéticas y de estrés interactúan con ritmos circadianos. El horario experimental debe registrarse junto con comida y actividad. No hay una ventana clínica general de mañana o noche para estas sustancias.
Duración y recuperación afectan respuesta, sin validar ciclos arbitrarios. Pulsos de fisetina o urolitina nocturna no derivan de una imagen celular. Cronofarmacología exige comparar regímenes en la población diana.
7.4. Convergencia no demuestra sinergia
Efectos sobre Nrf2, AMPK, sirtuinas y mTOR justifican investigar combinaciones. Podrían generar sinergia, antagonismo o estrés excesivo. Dianas distintas no prueban beneficio combinado.
D+Q incluye un fármaco y es intervención separada. No equivale a comer cebolla y bayas ni valida cualquier mezcla para longevidad. Se comparan componentes, mezcla y controles adecuados.
7.5. Seguridad individual y del producto
Alimentos y extractos concentrados producen exposiciones diferentes. Un ensayo anual de extracto de té verde en 1075 mujeres registró aumentos de ALT. Dostal, 2015. Origen natural no excluye lesión hepática, interacción o intolerancia.
Hígado, riñón, embarazo, medicamentos y procedimientos previstos cambian riesgo. No existe un único mecanismo CYP ni plazo preoperatorio para todo polifenol. Seguimiento requiere contexto clínico; el artículo no establece análisis obligatorios ni tratamiento.
8. Comparación sin clasificación de potencia
8.1. Clase química y evidencia
Reactividad, metabolismo y dianas difieren. La tabla describe barreras de traslado, no años de vida prometidos. Afinidad de unión, EC50 celular y dosis clínica no son intercambiables.
| Sustancia | Rasgo investigado | Límite principal |
|---|---|---|
| Resveratrol | Estilbeno; SIRT1 y energía según contexto | Sustrato y baja exposición libre |
| Pterostilbeno | Estilbeno metoxilado, distribución distinta | Farmacocinética animal no prueba superioridad humana |
| Quercetina | Flavonol; metabolitos, inflamación, modelos senolíticos | Tejido, conjugación y diferencia respecto a D+Q |
| Fisetina | Flavonol; senoterapia experimental | Modelo y célula; longevidad humana no probada |
| Sulforafano | Isotiocianato; tioles y Nrf2 | Conversión del precursor y estrés electrofílico |
| Curcumina | Diarilheptanoide polifenólico | Solubilidad, estabilidad y artefactos |
| EGCG | Catequina galoilada | Oxidación en cultivo y seguridad del extracto |
| Oleuropeína | Secoiridoide y productos de hidrólisis | Matriz; PREDIMED no aísla efecto |
| Hidroxitirosol | Alcohol fenólico catecólico | Antioxidación química no equivale a beneficio clínico |
8.2. Convergencia en resiliencia celular
Redox, energía y eliminación de componentes dañados están relacionados. Esto explica el interés, pero la convergencia también ocurre con intervenciones no alimentarias. No prueba reconocimiento evolutivo: se necesitan señales vegetales, exposición y adaptación.
La resiliencia tiene límites. Proteger células tumorales, inhibir crecimiento necesario o modificar excesivamente autofagia puede ser indeseable. Hay que definir condiciones, costes y duración, sin maximizar todos los caminos a la vez.
9. Conclusión y método
Xenohormesis conecta ecología vegetal y adaptación del consumidor mediante una hipótesis comprobable. Sustancias concretas permiten estudiar Nrf2, AMPK, sirtuinas, mTOR y autofagia. Las conclusiones son más fuertes cuando se miden molécula, exposición, diana y resultado; más débiles al extrapolar a vida humana más larga.
Beneficio dietético, actividad aislada y validación evolutiva requieren estudios diferentes. Ninguno implica automáticamente los otros. Separarlos conserva valor científico sin promesas universales o protocolos autoadministrados.
Cómo se preparó el artículo
Se leyó íntegramente el original y se conservaron bioquímica, agroecología, farmacocinética, vías, resultados funcionales y seguridad. La verificación primaria dirigida abordó SIRT1 y PDB 4I5I, Keap1–Nrf2, longevidad con dieta normal, desconjugación en macrófagos, ensayo negativo de resveratrol, D+Q temprano y seguridad del té concentrado. Se corrigieron autoría de Ishisaka y PMID de Hubbard.
Algunas páginas solo ofrecían resumen o texto indexado por límites de acceso; no se afirma lectura completa de toda referencia. No fue revisión sistemática. Tablas separan sistemas y resultados; imágenes son conceptuales sin escala clínica. Las flechas representan etapas que exigen evidencia, no causalidad demostrada. No se presenta experimento nuevo ni pauta individual de suplementos.
Preguntas frecuentes
¿Activar Nrf2 o AMPK demuestra vivir más?
No. Una vía celular es un resultado separado. Las afirmaciones sobre salud o supervivencia requieren resultados pertinentes, exposición y seguridad.
¿Siempre son más saludables las plantas estresadas?
No. Importan especie, condiciones e intensidad; la concentración por peso fresco puede cambiar por agua. Más defensa química no garantiza una dosis útil para humanos.
¿Por qué un cultivo celular no determina dosis de suplementos?
La concentración en cultivo difiere de la libre en tejidos tras absorción, conjugación y eliminación. Matriz y metabolitos modifican respuesta; una pauta clínica necesita su propio ensayo.
¿Existe una combinación u horario universal?
Compartir vías no prueba sinergia. Combinaciones, ciclos y horarios requieren comparaciones directas en la población correspondiente; no se establece un protocolo de automedicación.
Fuentes
- Howitz KT, Sinclair DA. Xenohormesis: Sensing the Chemical Cues of Other Species. Cell. 2008;133:387–391.
- Howitz KT et al. Small molecule activators of sirtuins extend Saccharomyces cerevisiae lifespan. Nature. 2003;425:191–196.
- Calabrese EJ, Baldwin LA. Hormesis: the dose-response revolution. Annu Rev Pharmacol Toxicol. 2003;43:175–197.
- Dinkova-Kostova AT et al. Direct evidence that sulfhydryl groups of Keap1 are the sensors regulating induction of phase 2 enzymes that protect against carcinogens and oxidants. PNAS. 2002;99:11908–11913.
- Baird L et al. Regulatory flexibility in the Nrf2-mediated stress response is conferred by conformational cycling of the Keap1-Nrf2 protein complex. PNAS. 2013;110:15259–15264.
- Hardie DG, Ross FA, Hawley SA. AMPK: a nutrient and energy sensor that maintains energy homeostasis. Nat Rev Mol Cell Biol. 2012;13:251–262.
- Cantó C et al. AMPK regulates energy expenditure by modulating NAD+ metabolism and SIRT1 activity. Nature. 2009;458:1056–1060.
- Hubbard BP et al. Evidence for a common mechanism of SIRT1 regulation by allosteric activators. Science. 2013;339:1216–1219.
- Kim J et al. AMPK and mTOR regulate autophagy through direct phosphorylation of Ulk1. Nat Cell Biol. 2011;13:132–141.
- Baur JA et al. Resveratrol improves health and survival of mice on a high-calorie diet. Nature. 2006;444:337–342.
- Pearson KJ et al. Resveratrol delays age-related deterioration and mimics transcriptional aspects of dietary restriction without extending life span. Cell Metab. 2008;8:157–168.
- Wood JG et al. Sirtuin activators mimic caloric restriction and delay ageing in metazoans. Nature. 2004;430:686–689.
- Yousefzadeh MJ et al. Fisetin is a senolytic that extends health and lifespan. EBioMedicine. 2018;36:18–28.
- Zhu Y et al. The Achilles’ heel of senescent cells: from transcriptome to senolytic drugs. Aging Cell. 2015;14:644–658.
- Hickson LJ et al. Senolytics decrease senescent cells in humans: Preliminary report from a clinical trial of Dasatinib plus Quercetin in individuals with diabetic kidney disease. EBioMedicine. 2019;47:446–456.
- Ryu D et al. Urolithin A induces mitophagy and prolongs lifespan in C. elegans and increases muscle function in rodents. Nat Med. 2016;22:879–888.
- Andreux PA et al. The mitophagy activator urolithin A is safe and induces a molecular signature of improved mitochondrial and cellular health in humans. Nat Metab. 2019;1:595–603.
- Zhang Y et al. A major inducer of anticarcinogenic protective enzymes from broccoli: isolation and elucidation of structure. PNAS. 1992;89:2399–2403.
- Fahey JW, Zhang Y, Talalay P. Broccoli sprouts: an exceptionally rich source of inducers of enzymes that protect against chemical carcinogens. PNAS. 1997;94:10367–10372.
- Walle T et al. High absorption but very low bioavailability of oral resveratrol in humans. Drug Metab Dispos. 2004;32:1377–1382.
- Ishisaka A et al. Mitochondrial dysfunction leads to deconjugation of quercetin glucuronides in inflammatory macrophages. PLoS ONE. 2013;8:e80843.
- Estruch R et al. Primary Prevention of Cardiovascular Disease with a Mediterranean Diet Supplemented with Extra-Virgin Olive Oil or Nuts. N Engl J Med. 2018;378:e34.
- Poulsen MM et al. High-dose resveratrol supplementation in obese men: an investigator-initiated, randomized, placebo-controlled clinical trial of substrate metabolism, insulin sensitivity, and body composition. Diabetes. 2013;62:1186–1195.
- Dostal AM et al. The safety of green tea extract supplementation in postmenopausal women at risk for breast cancer: results of the Minnesota Green Tea Trial. Food Chem Toxicol. 2015;83:26–35.
- Riche DM et al. Analysis of safety from a human clinical trial with pterostilbene. J Toxicol. 2013;2013:463595.
- Bryant JP, Chapin FS, Klein DR. Carbon/Nutrient Balance of Boreal Plants in Relation to Plant Defenses. Oikos. 1983;40:357–368.
- Barański M et al. Higher antioxidant and lower cadmium concentrations and lower incidence of pesticide residues in organically grown crops: a systematic meta-analysis of the literature. Br J Nutr. 2014;112:794–811.
- RCSB PDB 4I5I: SIRT1 catalytic domain bound to NAD and an EX527 inhibitor analogue.
Materiales relacionados
- Resveratrol y pterostilbeno: química de los estilbenos, SIRT1 y límites de la biodisponibilidad
- Urolitina A: mitofagia PINK1/Parkin, función muscular y límites de la evidencia
- Fisetina, senolíticos y SASP: mecanismos, evidencia preclínica y límites de los datos clínicos
- NR y NMN: la vía del NAD⁺, el transporte celular y los límites clínicos