
Физетин, сенолитиктер және SASP: механизмдер, клиникаға дейінгі деректер және клиникалық дәлелдердің шектері
Сенесценция мен физетиннің молекулалық биологиясы: жасушаға тән сенолиз, SASP, тышқан модельдері, фармакокинетика және адамда әзірге дәлелденбеген емдеу режимдері.
Сенесценция — «кәрі жасушаның» бір ғана түрі емес, әртүрлі зақымданудан кейін пайда болатын, секреторлық бейіні бөлек, бөлінудің тұрақты тоқтау күйлерінің жиынтығы. Бір жағдайда бұл жауап ісіктің өсуін шектеп, жараның жазылуына көмектеседі; басқа жағдайда ұзақ сақталған жасушалар тіндік ортаны өзгертеді. Сондықтан p16 маркерінің немесе қабыну цитокинінің төмендеуі өздігінен мүшенің жасаруын білдірмейді. Тағамдық флавонол 3,3′,4′,7-тетрагидроксифлавон — физетин кейбір жасушалық жүйелерде сенесцентті жасушалардың тірі қалуын азайтқандықтан, ал тышқан тәжірибелерінде қартаю маркерлері мен тіршілік ұзақтығының өзгеруімен қатар жүргендіктен қызығушылық тудырады. Осы нәтижені адамға арналған емдеу режиміне көшіру жеке міндет болып қала береді.
Бастапқыдан нәтиженің үш түрін ажыратқан дұрыс. Сенолитикалық әсер бұрын тірі болған сенесцентті жасушалардың өлуін білдіреді; оны жалпы цитоуыттылық пен сенесцентті емес бақылау жасушаларының тағдырын ескере отырып бағалайды. Сеноморфтық әсер SASP секрециясын немесе байланысты сигналдық жолдарды өзгертеді, бірақ жасуша тірі қалуы мүмкін. Үлгідегі SA-β-gal-оң жасушалар үлесінің, p16INK4a немесе интерлейкиннің азаюы осы сценарийлердің біріне сәйкес келеді, алайда жеке өзі оларды ажыратпайды. Клиникалық әсер болса, адамдардағы маңызды нәтижелерді: функцияны, симптомдарды, аурушаңдықты немесе өмір сүруді салыстыруды қажет етеді. Төмендегі мәтінде осы дәлел деңгейлері бөлек қарастырылады.
Сенесцентті күй қалай қалыптасады
Дақылдағы репликативтік қартаю, басқа себептермен қатар, сызықтық ДНҚ ұштарын толық көшіру мәселесіне байланысты. Әр репликация циклінде теломеразалық кешен шығынды өтемесе, TTAGGG теломерлік қайталанымдары қысқаруы мүмкін. TRF1, TRF2, RAP1, TIN2, TPP1 және POT1 құрамды шелтерин кешені теломера ұшын қорғайды, t-ілмектің түзілуіне қатысады және хромосома ұшының зақым ретінде қате танылуын шектейді. Шешуші белгі килобазамен берілген әмбебап ұзындық емес: зақымдалған немесе қорғанысын жоғалтқан теломералар әртүрлі өлшенген ұзындықта жауапты бастауы мүмкін. Ашық ұш пен басқа тұрақты зақымдар ДНҚ зақымына жауаптың теломерлік ошақтарын — MRN, ATM/ATR, γH2AX және 53BP1 — сақтайды. ATM CHK2-ні, ал ATR негізінен CHK1-ді белсендіреді; p53 тұрақтануы арқылы бұл сигнал CDKN1A мен p21 экспрессиясын арттырады. Жол себептік тізбекті сипаттайды, бірақ жеке TIF немесе γH2AX жасушалық қартаюға тән диагностикалық тест емес (Hayflick және Moorhead, 1961; Gorgoulis және әріптестері, 2019).
Жасуша теломералары біртіндеп сарқылмай-ақ сенесценцияға түсе алады. Иондаушы сәулелену, кейбір цитостатиктер, HRAS немесе BRAF гипербелсенділігі және репликациялық стресстің басқа түрлері ДНҚ зақымына тұрақты жауапты іске қосады. Онкогендік стресс қорғаныш пролиферациялық тосқауыл жасай алады; сондықтан барлық сенесцентті жасушаларды жаппай жою қауіпсіз мақсат болып көрінбейді. Жеке нұсқа — митохондриялық дисфункциядан туындайтын MiDAS сенесценциясы: тыныс алудың бұзылуы, NAD⁺/NADH арақатынасының өзгеруі және AMPK–p53 белсенуі классикалық IL-1-тәуелді SASP-тен өзгеше секреторлық бейінмен ұштасуы мүмкін. MiDAS тәжірибелік модельдерінде кейбір IL-1-тәуелді факторлардың секрециясы әлсіреген; бұл митохондриялары зақымданған барлық тінде IL-6 болмайды деген ереже емес (Wiley және әріптестері, 2016).
Жасушалық циклдің өзара әрекеттесетін екі тежегіші — p53–p21 және p16INK4a–Rb осьтері. p21 циклин E/A–CDK2 кешендерінің белсенділігін шектейді; CDKN2A өнімі p16INK4a CDK4/6-мен байланысып, олардың D циклиндерімен жұмыс істеуіне кедергі жасайды. Rb жеткіліксіз фосфорланса, E2F-пен байланысын сақтап, S-фазаға кіру гендерінің, соның ішінде репликациялық аппарат компоненттерінің транскрипциясын басады. CDKN2A локусындағы H3K27me3 өзгерісі, KDM6B/JMJD3 сияқты деметилазалардың қатысуы, HDAC тартылуы және H3K9me3-ке бай сенесценциямен байланысты гетерохроматин ошақтарының қалыптасуы тоқтауды тұрақтандыруы мүмкін. Алайда SAHF әрбір сенесцентті популяцияда түзілмейді; олардың болмауы бұл күйді жоққа шығармайды. Бөлінудің ұзақ тоқтауы да кез келген тәжірибелік манипуляция жағдайында абсолютті қайтымсыздықты білдірмейді (Campisi және d’Adda di Fagagna, 2007; Gorgoulis және әріптестері, 2019).
Зақымдалған жасуша SCAP антиапоптоздық жолдары арқылы күшті проапоптоздық сигналға қарамастан тірі қалуы мүмкін. Әртүрлі модельде бұл BCL-2-тәрізді BCL-xL, BCL-2, BCL-w ақуыздарына, PI3K–AKT-қа, p21 пептидтік тежегішіне, PAI-1 серпиніне немесе рецепторлық тирозинкиназалармен байланысты сигналдарға тәуелділік. Мембраналық PIP₃-ке тартылғаннан кейін AKT-ты Thr308 бойынша PDK1, Ser473 бойынша mTORC2 фосфорлайды; BAD фосфорлануы мен басқа шығыс сигналдары тірі қалуды қолдайды. BH3-only ақуыздары BIM, PUMA және NOXA зақымдану кезінде артуы мүмкін, бірақ барлық сенесцентті жасушада олардың «аса жоғары» концентрациясы болмайды. Zhu және әріптестері тәжірибелерінде BCL-xL мен басқа SCAP-тарға тәуелділік преадипоциттер, эндотелий жасушалары және фибробласттар арасында өзгерген. Демек, сенолитиктің селективтілігін әр жасушалық модельде анықтау керек; оны апоптоз шегінің жалпы сызбасынан шығару жеткіліксіз (Zhu және әріптестері, 2015).
| Қорғаныс немесе тоқтау деңгейі | Молекулалық мазмұны | Өлшеу нені дәлелдемейді |
|---|---|---|
| p53–p21; p16–Rb–E2F | Зақымға жауап және циклинге тәуелді киназаларды шектеу | Бір оң маркер тоқтаудың себебі мен ұзақтығын анықтамайды |
| BCL-xL/BCL-2/BCL-w; PI3K–AKT | Жасушаға тәуелді тірі қалу және MOMP-ты басу жолдары | Ақуыз экспрессиясы физетинмен тікелей байланысуға тең емес |
| SAHF және хроматин өзгерістері | Транскрипциялық бағдарламаны тұрақтандыру тәсілдерінің бірі | SAHF сенесценцияның барлық түріне міндетті емес |
| SASP | Цитокиндер, хемокиндер, протеазалар және өсу факторларының секрециясы | Бір ақуыздың азаюы жасушалар клиренсін көрсетпейді |
SASP — өзгермейтін «уыт» емес, секреторлық бағдарлама. IL-6, IL-1α/β, CXCL8, CCL2, TGF-β, VEGF, матрикстік металлопротеиназалар және жасушадан тыс везикулалар әртүрлі үйлесімде қосылуы мүмкін; олардың құрамы стресс көзіне, тінге, тоқтаудан кейінгі уақытқа және иммундық ортаға байланысты. Кейбір модельдерде IL-1 мен NF-κB қабыну контурын сақтайды, JAK/STAT3 көрші жасушаларға сигнал береді, ал MMP жасушадан тыс матриксті өзгертеді. Сенесценцияға ұқсас күйдің паракриндік берілуі мүмкін, бірақ оны бүкіл ағзада қартаюдың клиникалық таралуымен автоматты түрде теңестіруге болмайды. Репарация кезіндегі уақытша SASP пайдалы қызмет атқаруы мүмкін; созылмалы қабыну бағдарламасының ықпалы басқа болуы ықтимал (Coppé және әріптестері, 2008; Gorgoulis және әріптестері, 2019).
Физетин молекуласы және тағамдық салыстырудың шектері
Физетиннің формуласы C₁₅H₁₀O₆, молярлық массасы 286,24 г/моль. Оның C₆–C₃–C₆ қаңқасына 4-кетотобы, 3- және 7-гидроксилдері бар хромон сақинасы мен фенил сақинасындағы 3′,4′-OH катехол фрагменті кіреді. Катехол тотығу-тотықсыздану түрленулеріне және кешен түзуге қатыса алады, ал қосарланған жүйе физика-химиялық қасиеттерге әсер етеді. Кверцетинде қосымша 5-OH бар; ол 4-карбонилмен молекулаішілік сутектік байланыс түзе алады. Бұл нақты құрылымдық айырмашылық, бірақ тек осының негізінде PI3K, BCL-xL-ге аффинділікті, гематоэнцефалдық тосқауыл арқылы тасымалды немесе сенолиз селективтілігін есептеуге болмайды. logP параметрі әдіс пен күйге байланысты өзгереді және тіндегі бос концентрацияны өлшеуді алмастырмайды.
Өсімдіктерде флавонол қаңқасы фенилпропаноид жолымен түзіледі: фенилаланин-аммиак-лиаза L-фенилаланинді даршын қышқылына айналдырады, кейінгі реакциялар 4-кумароил-CoA-ға әкеледі; халконсинтаза осы субстратты үш малонил-CoA-мен конденсациялайды, халконизомераза флаванон қаңқасын қалыптастырады, ал гидроксилдену мен тотығу флавонол түзілуіне қатысады. Бұл сызбаны аталған барлық өсімдікте физетин синтезінің дәлелденген бірдей жолы ретінде түсіндіруге болмайды. Физетин мен оның конъюгаттары скумпияда, кейбір жидек, жеміс пен көкөністе, соның ішінде құлпынай, алма және құрмада кездеседі. Тағамдағы мөлшері сұрыпқа, тінге, пісу дәрежесіне және талдау әдісіне байланысты; бастапқы кестедегі нақты сандарды әмбебап норма деуге олардың әдіс пен үлгіге тұрақты байланысы жеткіліксіз. Тағаммен түсу таза заттың зерттеу дозасына тең емес. Бірақ осы айырмашылықтан адам сенолизіне нақты грамдық доза «қажет» деген кері қорытынды да шықпайды.
Yousefzadeh және әріптестері (2018) жасушалық модельдерде он флавоноид/полифенол кандидатын салыстырған; таңдалған көрсеткіштер бойынша физетин ең белсенді болған. Ercc1-дефицитті фибробласттардағы бастапқы салыстыруда 5 мкМ қолданылған; этопозидтен кейінгі адамның IMR90 жасушаларында 1–15 мкМ 48 сағат бойы бағаланған. Тірі SA-β-gal-оң жасушалар санының жалпы тіршілікке қабілеттілікпен салыстырғанда азаюы осы жағдайдағы сенолитикалық белсенділікке сәйкес келеді. Бұл барлық табиғи қосылыстың кез келген жасуша түріндегі тиімділік рейтингі емес. Сол жұмыста тышқанның май тініндегі жеке популяциялар мен адам экспланттарына әсер жасушаға тән болған; 20 мкМ-мен ex vivo өңделген адам экспланты адамдардың физетин ішуін зерттеген сынақ емес. 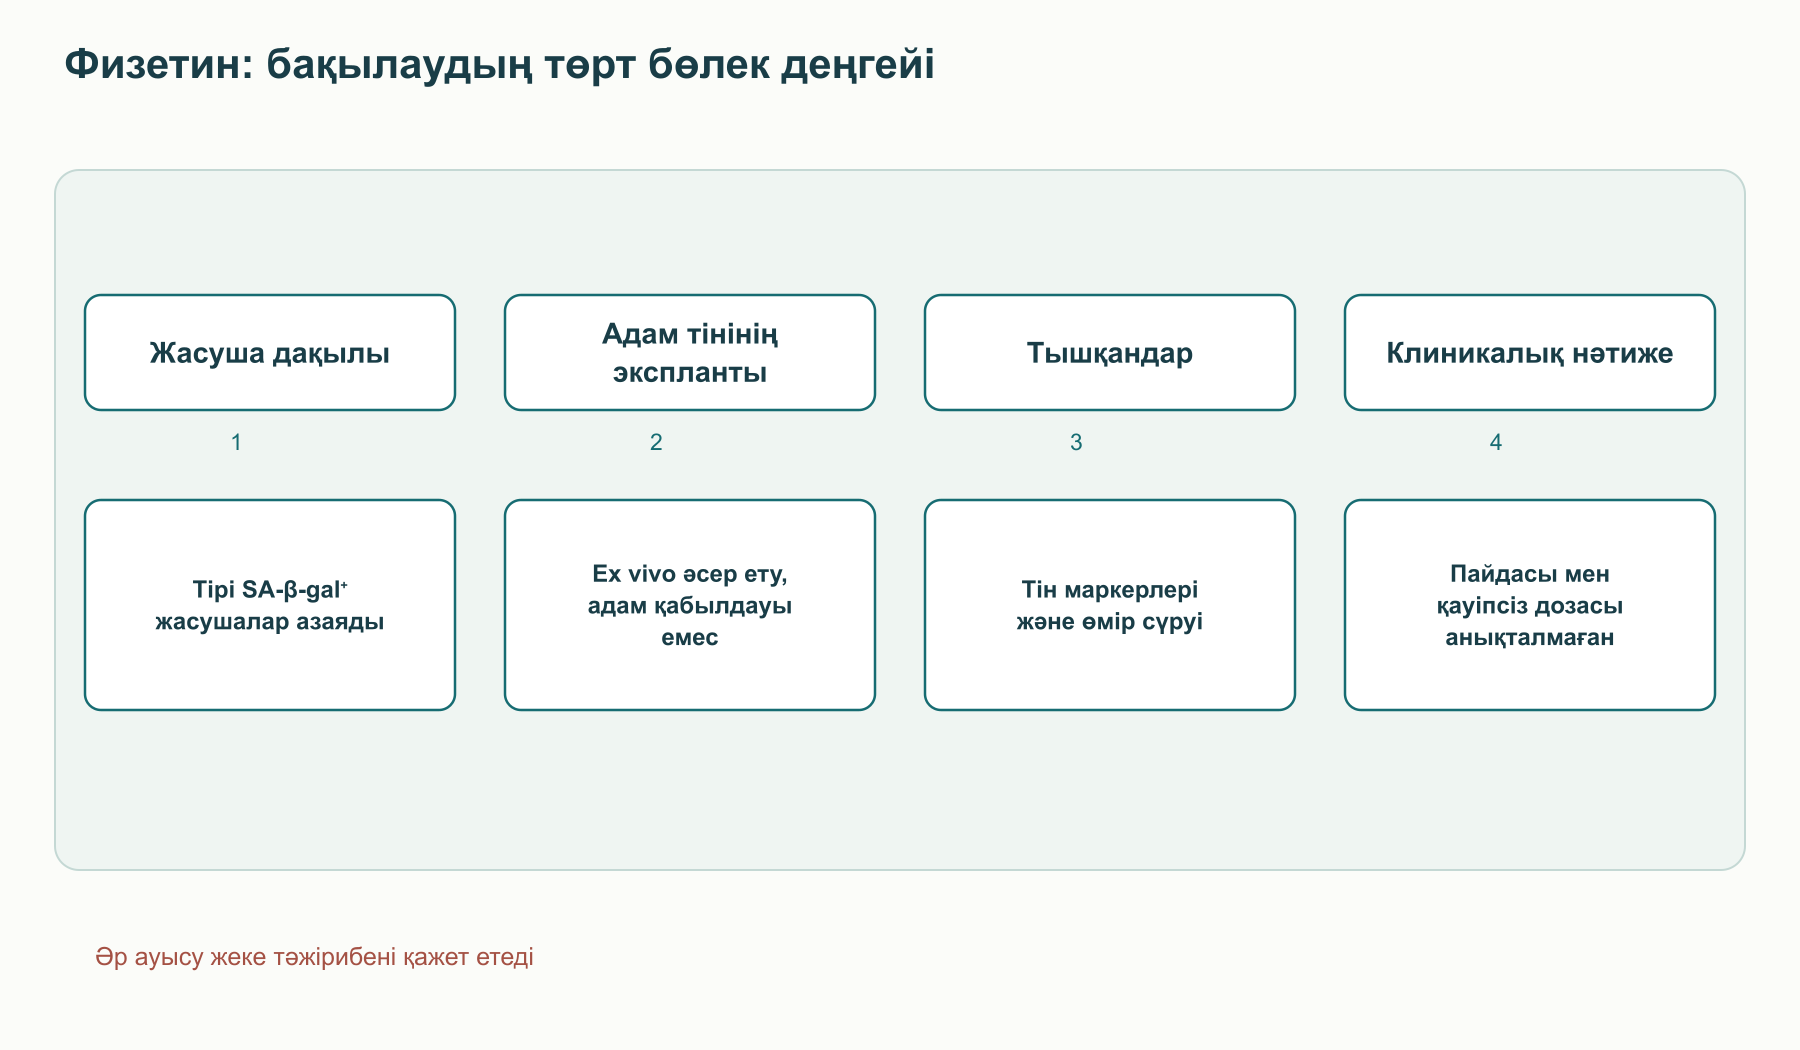
Сигналдық жолдан жасуша өліміне дейін: механизм туралы не белгілі
«Физетин PI3K/Akt/mTOR-ды тежейді» деген тіркес бірнеше бөлек тәжірибелік тұжырымды біріктіреді. I класты PI3K мембраналық PI(4,5)P₂-ні PI(3,4,5)P₃-ке фосфорлау үшін ATP пайдаланады; осы липидтік өнім AKT пен PDK1-дің PH-домендерін тартады. PDK1 AKT-ты Thr308, mTORC2 Ser473 бойынша фосфорлайды. Белсенді AKT BAD, TSC2, FOXO және басқа субстраттарға әсер етеді, ал mTORC1 S6K және 4E-BP1 арқылы өсу мен ақуыз синтезін реттейді. Физетин қосылғаннан кейін осы шығыс сигналдарының фосфорлануы төмендегені әртүрлі жасушалық жұмыста байқалған; дегенмен мұндай иммуноблоттың өзі физетиннің PI3Kα немесе mTOR-дың ATP-қалтасына орналасатынын дәлелдемейді және барлық сенесцентті типте бірдей механизм барын анықтамайды. Тікелей байланысу туралы тұжырым үшін биохимиялық аффинділік, ATP-пен бәсекелесу, құрылымдық растау және салыстырмалы жасушалық концентрациялар керек. PI3Kα мен mTOR-дың жеке қалдықтарына арналған докинг модельдері және олардың IC₅₀ мәндері тікелей байланысуды да, сенолиз механизмін де анықтамайды.
AKT белсенділігі төмендесе, фосфорланған BAD 14-3-3 ақуыздарынан босап, митохондрияның сыртқы мембранасындағы проапоптоздық факторлардың қолжетімділігін арттыруы мүмкін. Алайда нәтиже BIM, PUMA, NOXA, антиапоптоздық BCL-xL, BCL-2, MCL-1 және эффекторлық BAX/BAK теңгеріміне байланысты; бір Ser136 қалдығы нәтижені жеке өзі болжамайды. Классикалық сенолитиктер осы желілерге жасушаға тән тәуелділікті пайдаланады. Физетиннің Tyr101 және Arg139 контактілері арқылы BCL-xL сайына тікелей BH3-миметикалық орналасуы туралы ұсыныс қолжетімді бастапқы деректер тікелей растамайтын құрылымдық интерпретацияға негізделеді. Докингті, BCL2L1 экспрессиясының өзгеруін және тазартылған кешеннен BIM ығыстырылуын ажырату ерекше маңызды: бұлар дәлелдің әртүрлі деңгейі. Салыстырмалы биохимиясыз физетинді навитоклакс немесе венетоклакспен фармакологиялық тұрғыдан тең деуге болмайды.
Проапоптоздық сигнал жеткілікті болғандағы орындаушы митохондриялық жол физетиннен тәуелсіз жақсы сипатталған. Белсендіруші BH3-only ақуыздары сыртқы митохондриялық мембранада BAX/BAK конформациясының өзгеруі мен олигомерленуін қолдайды. Осы мембрананың өткізгіштенуі (MOMP) цитохром c-нің мембранааралық кеңістіктен цитозольге шығуына мүмкіндік береді; бұл ішкі мембрана потенциалының бірден толық жоғалуына тең емес. Цитозольдік цитохром c және ATP/dATP прокаспаза-9-ды тартатын APAF1 кешенінің жиналуын қолдайды; димерлену мен протеолиз каспаза-9-ды, одан кейін орындаушы каспазалар-3/7-ні белсендіреді. Smac/DIABLO IAP ақуыздарының каспазаларды тежеуін әлсіретеді. ICAD ыдырауы ДНҚ фрагментациясы үшін CAD-ты босатады, ал XKR8 белсенуі және мембрананың ішкі қабатында фосфатидилсериннің ұсталуын басу фагоциттерге берілетін сигналды қолдайды. Апоптоз екіншілік некрозсыз эффероцитозбен аяқталуы мүмкін, бірақ бұл тіндер мен фагоциттік жүйенің күйіне байланысты; «иммунологиялық тұрғыдан мүлдем үнсіз» өлімге кепілдік жоқ. 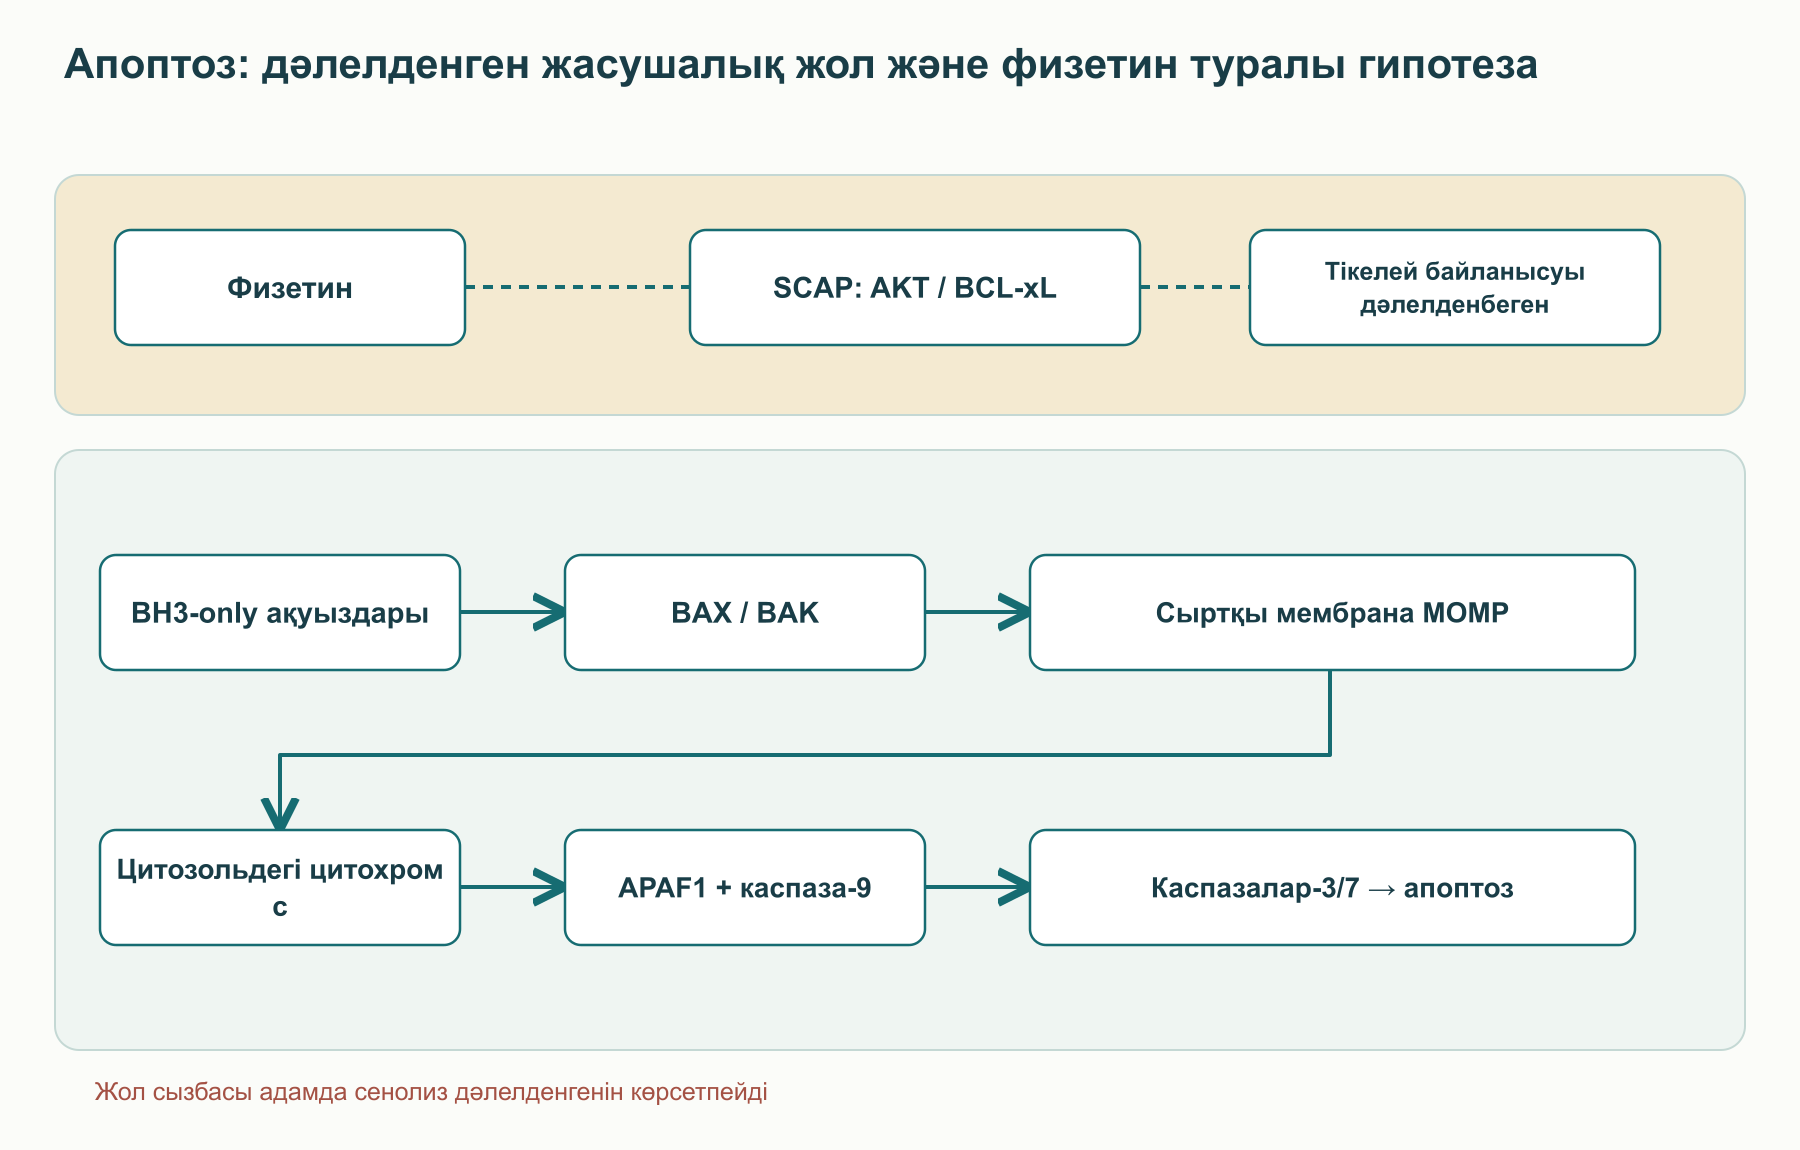
Физетиннің таңдамалылығы молекуланың екілік қасиеті емес. Yousefzadeh және әріптестері (2018) кейбір дақылда SA-β-gal-оң жасушалардың тіршілікке қабілеттілігі жалпы тіршілікке қабілеттіліктен көбірек төмендегенін, ал май тінінің жасушалық қосалқы типтері әртүрлі жауап бергенін көрсетті. Басқа жасушалар экспозициясы, зақымдану дәрежесі, полифенол метаболизмі және SCAP-қа тәуелділігі бойынша ерекшеленуі мүмкін. Сондықтан Ercc1-дефицитті эмбриондық фибробласттар, этопозидпен өңделген IMR90 және тышқан майы нәтижелерін модельді көрсете отырып беру керек. «Апоптозға дайындық» тұжырымдамасы гипотеза құруға көмектеседі, бірақ қалыпты дің жасушалары немесе адам мүшелері үшін 5–15 мкМ әмбебап қауіпсіз шегін бермейді.
Жасушаны жоймай-ақ SASP-ты әлсіретуге болады
Сеноморфтық әсер деректерді өзгеше түсіндіруді талап етеді. Канондық NF-κB белсенгенде IKKα/IKKβ/NEMO кешені IκBα-ны Ser32/Ser36 бойынша фосфорлайды, содан кейін SCF^β-TrCP тежегішті протеасомалық ыдырауға таңбалайды; RelA/p65–p50 ядроға ауысуға мүмкіндік алады. Бұл кезеңдер SASP гендерінің бір бөлігінің транскрипциясын қолдайды, бірақ бүкіл секретомды және сенесценцияның барлық түрін қамтымайды. Физетин дақылда IκBα фосфорлануын, ядролық p65-ті немесе бөлінетін цитокиндерді азайтса, бұл сол модельдегі шығыс сигналдың өзгергенін растайды. Бастапқы қолжазбада физетиннің IKKβ Cys99/Asp166 қалдықтарымен нақты «контактілері» мен IC₅₀ 8–12 мкМ көрсетілуін тазартылған киназаға жеке талдаусыз дәлелденген тікелей ферменттік механизм деп қабылдауға болмайды.
Бақылаудың екінші ықтимал деңгейі — мРНҚ өмір сүру уақыты. MKK3/6–p38 MAPK–MK2 осі РНҚ-байланыстырушы TTP/ZFP36 ақуызының фосфорлануына әсер етеді; фосфорланған TTP 14-3-3-пен байланысып, AU-ға бай цитокин транскрипттерінің жойылуын нашар қолдайды, ал белсенді TTP CCR4–NOT кешені мен РНҚ ыдырауын тарта алады. Тышқан TTP үшін Ser52/Ser178 қалдықтары жиі көрсетіледі; қалдық нөмірлерін адамның ақуызына механикалық көшіруге болмайды. Бұл SASP реттелуінің қисынды архитектурасы, бірақ қолжетімді бастапқы деректер физетиннің p38α Met109-мен байланысуы IL-6-ның әр байқалған төмендеуіне міндетті себеп екенін анықтамайды. Цитокин мРНҚ-ларының жартылай өмір сүру кезеңдері модельге байланысты, әмбебап тұрақтылар емес.
SIRT1 — NAD⁺-тәуелді деацетилаза: деацетилдену реакциясында NAD⁺ жұмсап, никотинамид пен O-ацетил-ADP-рибоза түзеді. RelA Lys310 деацетилденуі NF-κB транскрипциялық жауабын әлсіретуі мүмкін. AMPK жасушалық энергия күйіне жауап береді және Thr172 бойынша белсенгенде анаболизм мен катаболизм теңгерімін өзгертеді; NAMPT-пен байланысы NAD⁺ толықтыру жолына әсер етуі мүмкін. Модельде физетиннен кейін SIRT1/AMPK белсенділігінің өзгеруін физетиннің SIRT1-мен тікелей аллостериялық байланысуының дәлелі деп автоматты түрде атауға болмайды. Физетин қабылдағаннан кейін hs-CRP, IL-6 немесе TNF-α клиникалық төмендеуі де қолжетімді бастапқы зерттеулермен расталмаған. NAD⁺ метаболизмі мен CD38 рөлінің кеңірек контексі үшін апигенин және CD38 туралы материал пайдалы; ол екі қоспаның емдік синергиясын дәлелдемейді.
Сол шек «дің жасушаларының нишаларын қалпына келтіруге» де қатысты. Созылмалы SASP Pax7-оң бұлшықет сателлит жасушаларының, гемопоэздік дің жасушаларының және мезенхималық стромалық жасушалардың ортасын бұзуы мүмкін. Жануар моделінде қабыну секрециясын азайту немесе сенесцентті жасушаларды жою ниша жағдайын өзгерте алады. Бірақ физетин MyoD/миогенинді қалпына келтіреді, тінді жас жасушалармен қайта толтырады және адамдағы клиникалық регенерацияны қайтарады деген нақты тұжырым тиісті модель мен нәтижелерді тікелей талдауды талап етеді. Оны SASP туралы жалпы түсініктен шығаруға болмайды.
Мүшелік фенотиптер: әртүрлі араласудың нәтижесін физетиннің бір әсеріне біріктіруге болмайды
Yousefzadeh және әріптестері (2018) тәжірибесінде ажырату маңызды бірнеше режим қолданылған. Ercc1-дефицитті прогероидты тышқандарда физетин жемге қосылғаннан кейін жасушалық және тіндік маркерлер бағаланған; тәжірибенің бір бөлігінде 500 ppm жем үзіліспен берілген. 22–24 айлық тышқандарға 100 мг/кг бес күн қысқа енгізу шап май тініндегі SA-β-gal-оң жасушалар үлесін азайтқан, ал CyTOF жасушалық популяциялардың әркелкі жауабын көрсеткен. Адамның май тіні үлгілері 20 мкМ-мен ex vivo өңделген: бұл адамның тіні зертханалық ыдыста биологиялық жауап беретінін растайды, бірақ ішке қабылдағаннан кейін қолжетімді концентрацияны немесе пайданы көрсетпейді.
Кәдімгі тышқандардың жеке когорты 85 апталық жаста 500 ppm физетин бар жем ала бастаған; бұл өмірдің соңғы кезеңіндегі ұзақ қоректенуді зерттеу, клиникалық екі күндік «импульстің» дәлелі емес. Әр тармақта шамамен 8–9 жануар болған шағын топта авторлар медианалық және ең жоғары тіршілік ұзақтығының, геропатологиялық бағалардың және кейбір SASP маркерлерінің жақсарғанын хабарлаған. Тіршілік ұзақтығына әсер мөлшерін есептеу әдісі мен бағалау белгісіздігін нақтыламай жыныстар мен тәжірибелер арасында көшіруге болмайды. Шағын топтар, штамм және ұзақ араласу адамға көшіруді шектейді. Сондай-ақ тіндегі Cdkn2a/Cdkn1a төмендеуі жойылған сенесцентті жасушалардың дәл есебін емес, жасушалық құрам мен экспрессияның өзгеруін көрсетуі мүмкін.
Сүйек пен буын механизмдері әртүрлі тәжірибелік араласуда зерттелген. Jeon және әріптестері (2017) буын жарақатынан кейін сенесцентті жасушаларды жергілікті жою остеоартроз белгілері мен регенерациялық микроортаны өзгерткенін көрсеткен; бұл физетинді ішке қабылдаудың клиникалық сынағы емес. Farr және әріптестері (2017) тышқандардағы жасқа байланысты сүйек жоғалу моделінде сенесцентті жасушаларға бағытталған әсерді зерттеген; нәтиже физетин, RANKL және BMD қалпына келуі туралы нақты тұжырымды растамайды. MMP-13/ADAMTS-5 → II коллаген мен аггреканның ыдырауы биохимиялық тізбегі шеміршек катаболизмінің моделі ретінде сипаттауға тұрарлық, бірақ сафранин O-мен гистологиялық бояуды немесе BV/TV өсуін тиісті тәжірибесіз физетинге телуге болмайды. Сондықтан физиологиялық нысана мен препараттың дәлелденген әсері ажыратылған.
Нейрондық контекст те әркелкі. Currais және әріптестері зерттеулерінде физетин трансгендік және жедел қартаятын тышқан модельдеріндегі қабыну мен мінез-құлық көрсеткіштерін өзгерткен; p25/CDK5, тау фосфорлануы және мінез-құлық өзгерістері осы модельдерге қатысты және глияның дәлелденген сенолитикалық клиренсін білдірмейді. Bussian және әріптестері (2018) сенесцентті глияны генетикалық жоюды тышқандардағы тауға тәуелді патологияның әлсіреуімен сенімді байланыстырған; олар физетинмен емдеуді зерттемеген. Молекуланың липофилділігі өздігінен гиппокамптағы бос экспозицияны, адамдағы нақты концентрацияны немесе ұзақ мерзімді потенциацияның қалпына келуін дәлелдемейді. «Деменцияның толық алдын алу» аталған дерек базасының нәтижесі емес.
Тамыр жүйесінде сенесцентті эндотелий және тегіс бұлшықет жасушалары NO сигналдануын, қабыну секрециясын, матриксті және RUNX2 тәрізді остеогендік бағдарламаларды өзгерте алады. Roos және әріптестері (2016) ұзақ сенолитикалық араласу кезінде кәрі немесе семіз тышқандарда тамыр дисфункциясының әлсірегенін көрсеткен; мұны физетиннің пульстік толқын жылдамдығын азайтуының, кальцинозды кері қайтаруының және түйіндақтарды тұрақтандыруының тікелей дәлелі деп қайта түсіндіруге болмайды. Сол сияқты HOMA-IR, стеатоз және лептиннің жақсаруы физетинмен жүргізілген, нәтижелері өлшенген нақты бастапқы тәжірибеде анықталмаған. Әр мүше үшін дәлел тізбегінде жалпы сенолиз мүмкіндігіне сілтеме емес, өзінің әсері, моделі және бақылауы болуы керек.
Клиникалық көшіру: сынақты тіркеу әлі нәтиже емес
AFFIRM және физетиннің басқа тіркелген зерттеулері адамдарда көтерімділік, қабыну көрсеткіштері мен физикалық функциялар туралы сұрақтар зерттеу үшін қойылғанын көрсетеді. Қолданылған базада осы бағдарлама бойынша цитокиндердің төмендеуі мен қозғалу қабілетінің жақсаруын растайтын жарияланған бастапқы нәтижелер кестесі табылмаған. NCT03430037 және NCT03675724 нөмірлерін тиімділікті растау емес, хаттамалар идентификаторлары ретінде қарау керек. Тіркелген сынақ режимдері белгілі популяция мен зерттеу формасына қатысты; оларды өздігінен тағайындауға арналған жалпы стандартқа айналдыруға болмайды. Қорытынды жасамас бұрын негізгі функционалдық және биомаркерлік соңғы нүктелерді, қатысушылар санын, қатысуды тоқтатуды және жағымсыз құбылыстарды нақты зерттеу жарияланған болса, оның нәтижелері бойынша талдау керек.
COVID-FISETIN және Camell және әріптестері (2021) тәжірибесі сол шекті көрсетеді. Кәрі тышқандарда сенолитикалық араласулар коронавирус жұқтырғаннан кейінгі нәтижелерді өзгертіп, сенесцентті жасушалар қабыну жауабына қатысады деген гипотезаны қолдаған. Олар адамдарда физетиннен кейін өкпе фиброзының алдын алуды, D-димер немесе өлім-жітімнің төмендеуін көрсетпейді. Диабеттік бүйрек ауруы мен шеткері артериялық ауру зерттеулерін де подоциттердің дәлелденген клиренсі, есептік шумақтық сүзілу жылдамдығының немесе жүру қашықтығының жақсаруы деп сипаттауға болмайды: Hickson және әріптестері (2019) физетинді емес, диабеттік бүйрек ауруындағы дазатиниб пен кверцетин қосындысын қарастырады. Идиопатиялық өкпе фиброзындағы Justice және әріптестері (2019) ашық пилоты да D+Q-ды зерттеген. Молекулалар, дизайн және популяция айырмашылығы принципті.
Зерттеуде сенесценцияны бағалау маркерлер жиынтығы мен тін контексін талап етеді. Шеткері қан T-лимфоциттеріндегі p16INK4a/CDKN2A осы популяция күйін көрсетіп, жаспен байланысты болуы мүмкін, бірақ жүрек, буын және мидағы барлық сенесцентті жасушаның валидтелген сандық есептегіші емес. pH шамамен 6 болғанда SA-β-gal және флуорогендік C₁₂FDG белгілі жасушалық хаттамаларда қолданылады; лизосомалық белсенділік пен бояу жағдайлары ерекшелікті шектейді. Плазмалық IL-6, CCL2, MMP-3, активин A және PAI-1 тек SASP-қа тән емес. cfDNA, miR-34a және miR-146a көптеген көзден шығуы мүмкін. Мұндай панель нақты пациентте физетиннің сенолитикалық әсерін дәлелдейтін жалпы қабылданған клиникалық шек әзірге жоқ.
Экспозиция, конъюгация және концентрацияларды салыстыру мәселесі
Физетин суда нашар ериді; еру, тағам, тасымалдаушы және ішек арқылы тасымал агликон қолжетімділігіне әсер етеді. Энтероциттер мен бауырда флавонол II фаза реакцияларынан өтеді: UDP-глюкуронозилтрансферазалар глюкуронил тобын UDP-глюкурон қышқылынан гидроксилдерге көшіреді, сульфотрансферазалар сульфат доноры ретінде PAPS пайдаланады, ал катехол-O-метилтрансфераза SAM-нан катехол фрагментіне метил көшіріп, соның ішінде гералдол түзеді. Бұл реакциялар полярлықты, таралуды және қосылыстың талдауда өлшенетін формасын өзгертеді. Бірақ нақты UGT изоформалары, конъюгат позициялары және әр метаболиттің BCL-xL-ге аффинділігі арнайы аналитикалық немесе биохимиялық растауды талап етеді. «Абсолютті биожетімділік 5–10 %» мәнін де көктамырішілік салыстырғыш пен тиісті дизайнсыз адамға қатысты айтуға болмайды.
Клиникалық көшіру үшін негізгі салыстыру — қажетті тіндегі өзгермеген агликонның бос концентрациясы мен жасушалық жүйеде әсер байқалған концентрация. Конъюгаттарды қамтитын немесе үлгі гидролизінен кейін өлшенген жалпы плазмалық AUC аналитті анықтамай бұл сұраққа жауап бермейді. Ерігіштік төмен, алғашқы өту метаболизмі, ақуыздармен байланысу және тіндік әркелкілік болғанда дақыл ортасындағы 5–20 мкМ-ді капсула дозасымен теңестіруге болмайды. Белгісіздік миға да қатысты: жүйелік экспозиция гематоэнцефалдық тосқауылдың ар жағындағы концентрацияға кепілдік бермейді.
Krishnakumar және әріптестері (2022) жүргізген шағын рандомизацияланған, қос соқыр, айқаспалы фармакокинетикалық зерттеуге 15 дені сау ерікті қатысқан. Авторлар кәдімгі физетинді пажитниктің галактоманнандарына негізделген FF-20 формасымен салыстырып, зерттелген формада физетин мен гералдол метаболитінің плазмалық экспозициясы едәуір жоғары болғанын хабарлаған. Бастапқы жарияланымда осы зерттеу жағдайында AUC арақатынасы шамамен 26,9 деп берілген; оны «27 есе күшті сенолиз» деп емес, аналитикалық матрица, доза және әдісті көрсете отырып түсіну керек. Авторлар ингредиент әзірлеушісі және коммерциялық серіктеспен байланысты; бұл фармакокинетикалық бақылауды жоққа шығармайды, бірақ тәуелсіз қайталаудың маңызын арттырады. Зерттеуде сенесцентті жасушалар клиренсі, функция немесе өмір ұзақтығы туралы ешбір нәтиже өлшенбеген. AUC артуы 500–1000 мг дозаны шығаруға немесе болжалды «сенолитикалық курсты» арифметикалық бөлуге негіз емес.
Липосомалар, фосфолипид кешендері және өздігінен эмульсияланатын жүйелер дәрілік форма жасау тәсілдері болып қала береді. Олардың ерітуді жақсартуы барлық өнім үшін лимфалық сіңуді, бауырды айналып өтуді немесе клиникалық тиімділікті дәлелдемейді; салыстыру үшін құрамы, бөлшек өлшемі, тұрақтылығы және бос агликонды өлшеу қажет. Биожетімділік пен құрамсыз формаларды тек номинал миллиграмдар бойынша салыстыру әдіснамалық тұрғыдан дұрыс емес.
Үзіліспен енгізу — күнделікті хаттама емес, зерттеу гипотезасы
Hit-and-run идеясы сенесцентті жасушалардың бір бөлігі қысқа уақытта жойылғаннан кейін биологиялық әсер сенолитиктің өзі болған уақыттан ұзақ сақталуы мүмкін деген болжамнан туған. Кейбір араласу үшін бұл модельдік тәжірибелерде расталады; физетиннің нақты режимдері бес күн зондпен енгізуден жем беру кезеңдері мен өмірдің соңғы уақытындағы ұзақ қоректенуге дейін әртүрлі болған. Сондықтан «күн сайын қабылдауға үзілді-кесілді тыйым салынады» да, «ай сайын екі күн жеткілікті» де дәлелденген жалпы заң емес. Оның үстіне өткінші сенесценция репарацияға қатысуы мүмкін, ал ізашар жасушалар тірі қалу және пролиферация үшін PI3K–AKT сигналдарын қажет етеді. Осы жағдайлар қауіпсіздікті, уақытты және араласу контексін арнайы зерттеуге негіз береді, бірақ «нишаның қалпына келуінің» әмбебап аралығын тағайындауға мүмкіндік бермейді.
Жеке хаттамалардың зерттеу режимдері қартаюды, остеоартрозды немесе COVID-19-ды емдеудің бекітілген схемасы емес; дене массасына қайта есептеу клиникалық пайда мен қауіпсіздікті анықтамайды. FF-20 мен кәдімгі ұнтақтың плазмалық AUC айырмасын болжалды «баламалы» курсқа көшіру ерекше қате: адамда AUC пен сенолитикалық әсер арасындағы байланыс өлшенбеген, мүшедегі бос белсенді агликон үлесі белгісіз. Маман үшін орынды тұжырым — нақты сынақтың хаттамасын, формасын, популяциясын, қосу критерийлерін, негізгі нәтижесін және жағымсыз құбылыстарын нақтылау; осы деректерге дейін араласуды стандарт деп көрсетпеу.
| Сұрақ | Физетин | Дазатиниб + кверцетин (D+Q) |
|---|---|---|
| Молекула түрі | Сенотерапия туралы жасушалық және жануарлық дерегі бар тағамдық флавонол | Рецептпен берілетін тирозинкиназа тежегіші және флавонол; қосындының адамдардағы жеке пилоттық зерттеулері бар |
| Модельдік жасушалық селективтілік | Кейбір фибробласт және май жүйелерінде байқалған; модельге тәуелді | Жасуша түрі мен комбинация компоненттеріне тәуелді |
| Адамдағы деректер | Ex vivo экспланттар, фармакокинетика және тіркелген интервенциялық сұрақтар дәлелденген емдік нәтижеге тең емес | Диабеттік бүйрек ауруы мен өкпе фиброзының пилоттық деректерін физетинге көшіруге болмайды |
| Қауіпсіздік | Жоғары қайталама дозалар мен әртүрлі формалар үшін «өте жақсы» деп анықталмаған | Дазатинибтің белгілі қауіптері дәрігер бақылауын талап етеді; бейіні басқа |
Бұл деректерден «ең жақсы сенолитик» рейтингін жасауға болмайды, себебі молекулалар, дозалар, тіндер және соңғы нүктелер тиісті тікелей салыстырмалы клиникалық сынақта салыстырылмаған. Жасушалық скринингте физетинді кверцетин, куркумин және EGCG-мен салыстыру да физетинмен дайын «стектерді» қолдамайды. Полифенолдар және олардың қауіпсіздігі туралы мақала тағамдық экспозицияны концентрленген формалардан ажыратуға пайдалы, бірақ оларды сенолиз үшін біріктіруге негіз емес. Спермидин мен апигенин басқа тәжірибелік контексте тиісінше аутофагия/EP300 және NAD⁺/CD38 метаболизміне әсер етеді; олармен біріктірілген немесе кезектескен схемаларға клиникалық негіз жоқ.
Қауіпсіздікті физетиннің тағамда кең таралғанынан шығаруға болмайды. Тағамдық мөлшерді концентрленген тәжірибелік режимдермен салыстыру басқа экспозиция мен ықтимал өзара әрекеттесулерді білдіреді. CYP1A2, CYP2C9, CYP3A4 тежелуі және тромбоцит агрегациясына ықпал туралы деректерді, әсіресе емдік аралығы тар препараттар мен гемостаз бұзылыстары кезінде, фармакологиялық бағалауға арналған сигнал деп қарау керек; жасушалық IC₅₀ адамдағы дәрілік өзара әрекеттесудің мөлшерін болжамайды. Операция алдында тоқтатудың нақты мерзімі мен жоғары дозалы физетинге абсолютті қарсы көрсетілімдер тізімі клиникалық зерттеулермен анықталмаған. Жүктілік, емізу, ауыр ауруды белсенді емдеу, қан кету және жақын операция жоғары дозалы физетин туралы жеткілікті дерек болмағандықтан жеке медициналық бағалауды талап етеді. Бауыр мен бүйрек функциясы да осылай бағаланады. Жалпы қан талдауы, АЛТ/АСТ, креатинин, IL-6 немесе hs-CRP көрсеткіштері нақты хаттама аясында бақылануы мүмкін, бірақ олардың үйлесімі мен қайталау жиілігі сенолизді бағалаудың валидтелген алгоритмін құрамайды.
Клиникалық қорытынды әзірге деректердің тәжірибелік деңгейімен шектеледі. Физетин — жеке сенесцентті популяциялардың тағдыры мен тіндік SASP-ты өзгертуге болатынын тексерудің маңызды құралы. Адамда белсенді формалардың бақыланатын экспозициясын, репрезентативті тіндік маркерлерді, алдын ала белгіленген нәтиже бойынша пайданы және жағымсыз оқиғалардың қолайлы бейінін көрсету қажет. Осы буындар байланыспайынша астения, остеоартроз белгілері немесе жоғары hs-CRP өздігінен жоғары дозалы «жасарту» курсына көрсетілім болмайды. Зерттеуші үшін негізгі келесі қадам — популяция мен форманы ашық таңдайтын, сенолитикалық клиренс пен SASP-тың сеноморфтық басылуын ажырататын және оң нәтижелермен қатар теріс нәтижелерді де жариялайтын сынақтар.
Шолу қалай дайындалды
Бұл физетин, жасушалық қартаю және SASP туралы 19 дереккөздің іріктемесіне негізделген нарративтік шолу. 2026 жылғы 4 қазандағы редакцияда жасушалық, жануарлық және фармакокинетикалық деректер арасындағы маңызды айырмашылықтар нысаналы түрде салыстырылды. Сенесцентті жасушаларды жоюдың басқа әдістерінің нәтижелері физетинге телінген жағдайлар анықталды. Толық қамтитын іздеу, метаталдау, жүйелі қателік қаупін формалды бағалау және тәуелсіз рецензиялау жүргізілген жоқ; ашылмаған толық мәтіндер тәуелсіз тексерілген деп саналмайды.
Жасуша дақылы, адам тінінің экспланты, тышқандарды үздіксіз қоректендіру және еріктілердегі қысқа фармакокинетикалық тәжірибе клиникалық сенолитикалық терапияның дәлеліне біріктірілмейді. Сынақты тіркеу расталған әсерді емес, зерттеу сұрағын білдіреді. Модельдердегі режимдер адамға арналған әмбебап ұсынымдар деп қаралмайды.
Жиі қойылатын сұрақтар
Физетиннің адамды жасартатыны дәлелденген бе?
Жоқ. Жасушалық және тышқан нәтижелері клиникалық жасаруды анықтамайды; алдын ала белгіленген нәтижелері бар бақыланатын деректер керек.
Сенолитикалық әсердің сеноморфтық әсерден айырмасы қандай?
Сенолитикалық әсер тірі сенесцентті жасушалар санын азайтады, ал сеноморфтық әсер олардың секреторлық бағдарламасын міндетті өлімсіз өзгертеді.
p16 немесе IL-6 төмендеуін сенолиз дәлелі деуге бола ма?
Жоқ. Бұл көрсеткіштер арнайы емес және жасуша тағдырын өлшемей өлімді, экспрессия өзгерісін және тін құрамының өзгерісін ажыратпайды.
Физетиннің белгіленген екі күндік курсы бар ма?
Жоқ. Екі күндік режимдер хаттамаларда зерттеледі, бірақ жалпы қолдануға арналған емдік доза, аралық және ұзақ мерзімді қауіпсіздік анықталмаған.
FF-20 зерттеуі нені көрсетті?
15 дені сау еріктіде галактоманнанға негізделген форма кәдімгі физетинмен салыстырғанда өлшенген плазмалық экспозицияны арттырған; клиникалық пайда зерттелмеген.
Физетин деректерін дазатиниб пен кверцетин зерттеулерімен алмастыруға бола ма?
Жоқ. Бұл басқа араласу және оның нәтижелерін физетинге көшіруге болмайды.
Дереккөздер
- Yousefzadeh MJ et al. Fisetin is a senotherapeutic that extends health and lifespan
- Zhu Y et al. The Achilles’ heel of senescent cells: from transcriptome to senolytic drugs
- Gorgoulis V et al. Cellular Senescence: Defining a Path Forward
- Coppé JP et al. Senescence-associated secretory phenotypes reveal cell-nonautonomous functions of oncogenic RAS and the p53 tumor suppressor
- Hayflick L, Moorhead PS. The serial cultivation of human diploid cell strains
- Wiley CD et al. Mitochondrial Dysfunction Induces Senescence with a Distinct Secretory Phenotype
- Jeon OH et al. Local clearance of senescent cells attenuates the development of post-traumatic osteoarthritis and creates a pro-regenerative environment
- Farr JN et al. Targeting cellular senescence prevents age-related bone loss in mice
- Bussian TJ et al. Clearance of senescent glial cells prevents tau-dependent pathology and cognitive decline
- Currais A et al. Modulation of p25 and inflammatory pathways by fisetin maintains cognitive function in Alzheimer’s disease transgenic mice
- Currais A et al. Fisetin Reduces the Impact of Aging on Behavior and Physiology in the Rapidly Aging SAMP8 Mouse
- Roos CM et al. Chronic senolytic treatment alleviates established vasomotor dysfunction in aged or obese mice
- Krishnakumar IM et al. Enhanced bioavailability and pharmacokinetics of a novel hybrid-hydrogel formulation of fisetin orally administered in healthy individuals
- Camell CD et al. Senolytics reduce coronavirus-related mortality in old mice
- Hickson LJ et al. Senolytics decrease senescent cells in humans: preliminary report from a trial of dasatinib plus quercetin in diabetic kidney disease
- Justice JN et al. Senolytics in idiopathic pulmonary fibrosis: first-in-human open-label pilot study
- Kirkland JL, Tchkonia T. Senolytic drugs: from discovery to translation
- Baker DJ et al. Clearance of p16Ink4a-positive senescent cells delays ageing-associated disorders
- Baker DJ et al. Naturally occurring p16(Ink4a)-positive cells shorten healthy lifespan