Физетин и сенесценция: механизмы, SASP и клинические данные — NutriFit
Физетин, сенолитики и SASP: механизмы, доклиника и пределы клинических данных
Молекулярная биология сенесценции и физетина с разбором клеточно-специфического сенолиза, SASP, мышиных моделей, фармакокинетики и пока недоказанных лечебных режимов у людей.
Сенесценция — не единый тип «старой клетки», а набор устойчивых состояний остановки деления, возникающих после различных повреждений и имеющих разный секреторный профиль. В одних обстоятельствах этот ответ ограничивает опухолевую экспансию и способствует заживлению; в других хронически сохраняющиеся клетки меняют тканевую среду. Поэтому снижение маркера p16 или воспалительного цитокина само по себе не равнозначно омоложению органа. Физетин, пищевой флавонол 3,3′,4′,7-тетрагидроксифлавон, представляет интерес потому, что в некоторых клеточных системах уменьшал выживание сенесцентных клеток, а в опытах на мышах сопровождался изменением маркеров старения и выживаемости. Перенос этого результата на лечебный режим человека остаётся отдельной задачей.
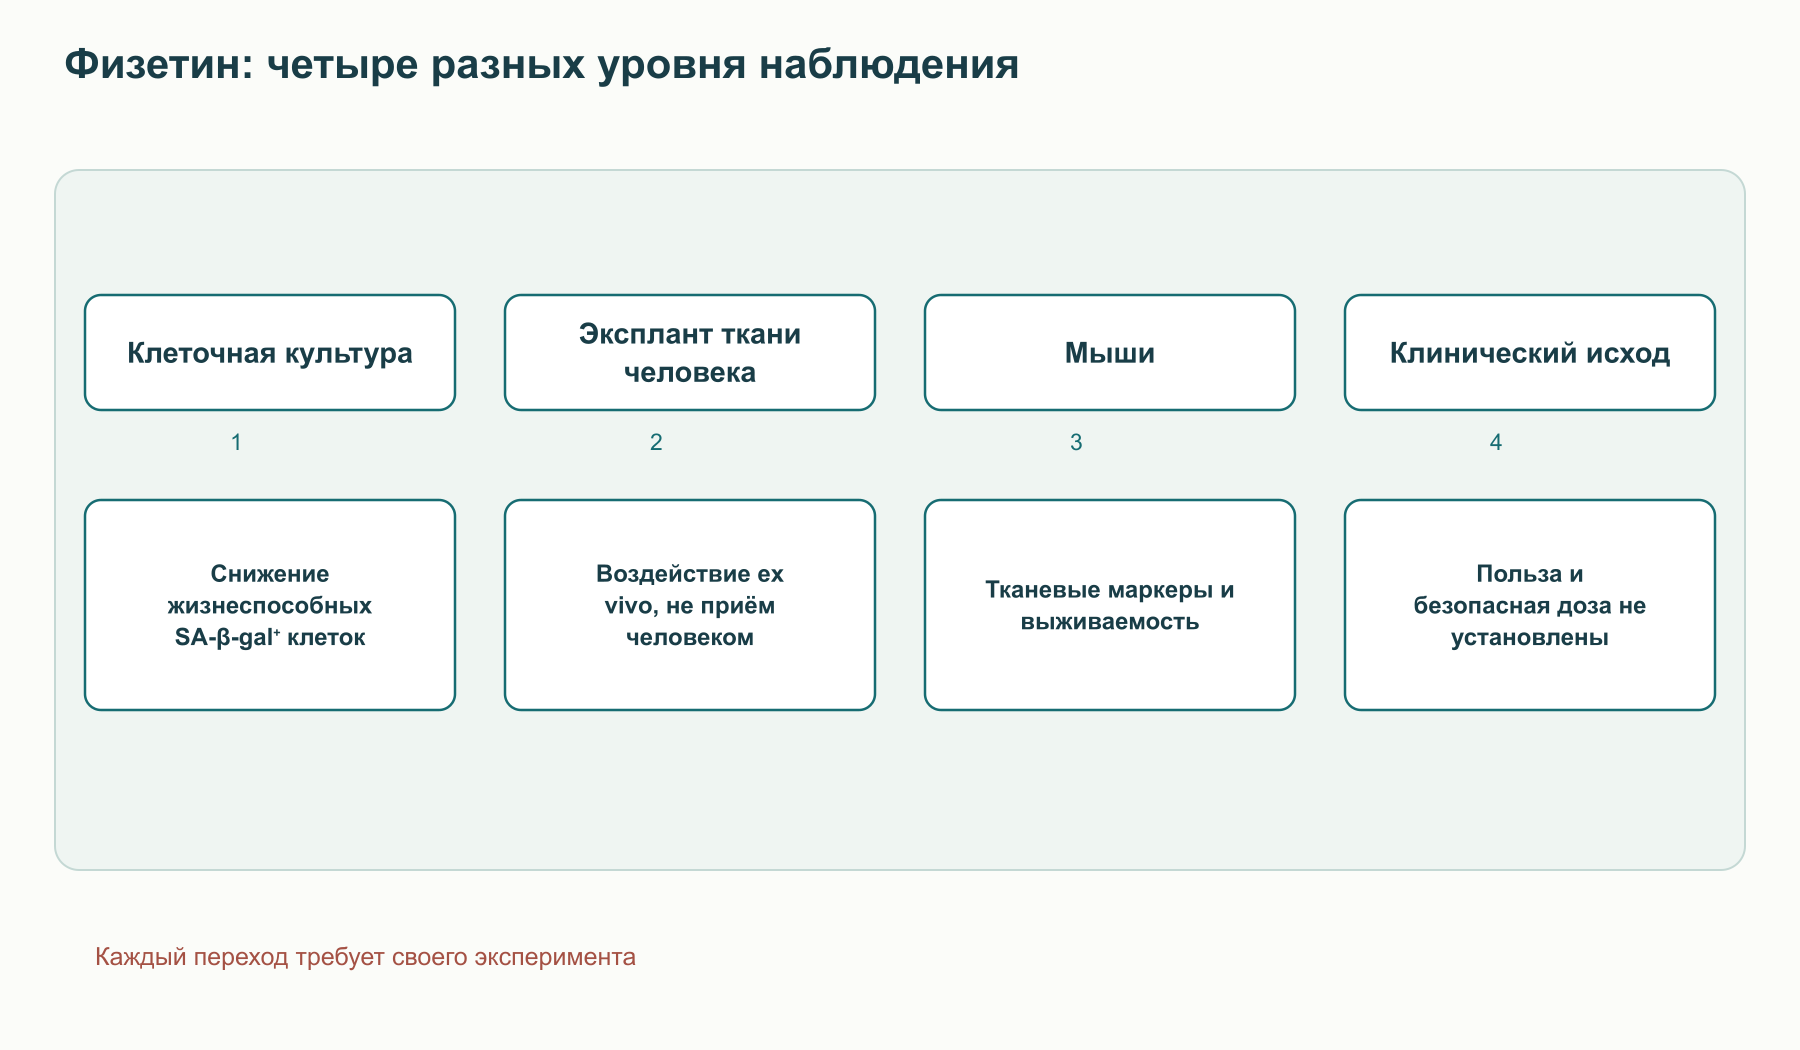
Полезно с самого начала различать три типа результата. Сенолитический эффект означает гибель ранее живых сенесцентных клеток, оценённую с учётом общей цитотоксичности и судьбы несенесцентных контролей. Сеноморфный эффект меняет секрецию SASP или связанные сигнальные пути, но клетка может остаться живой. Снижение доли SA-β-gal-положительных клеток, p16INK4a или интерлейкина в образце согласуется с одним из этих сценариев, однако по отдельности их не разделяет. Наконец, клинический эффект требует сравнения значимых исходов у людей: функции, симптомов, заболеваемости или выживания. Материал ниже ведёт эти уровни доказательств раздельно.
Как формируется сенесцентное состояние
Репликативное старение в культуре связано, среди прочего, с проблемой достройки концов линейной ДНК. При каждом цикле репликации теломерные повторы TTAGGG могут укорачиваться, если теломеразный комплекс не компенсирует потерю. Комплекс шелтерина — TRF1, TRF2, RAP1, TIN2, TPP1 и POT1 — защищает теломерный конец, участвует в формировании t-петли и ограничивает ошибочное распознавание конца хромосомы как повреждения. Критична не универсальная длина в килобазах: повреждённые или лишённые защиты теломеры могут инициировать ответ при разных измеренных длинах. Раскрытый конец и иные стойкие повреждения поддерживают теломерные фокусы ответа на повреждение ДНК: MRN, ATM/ATR, γH2AX и 53BP1. ATM активирует CHK2, ATR — прежде всего CHK1; через стабилизацию p53 этот сигнал повышает экспрессию CDKN1A и p21. Путь описывает причинную последовательность, но отдельный TIF или γH2AX не является специфичным диагностическим тестом на старение клетки (Hayflick и Moorhead, 1961; Gorgoulis и соавт., 2019).
Клетка может войти в сенесценцию без последовательного истощения теломер. Ионизирующее излучение, некоторые цитостатики, гиперактивация HRAS либо BRAF и другие формы репликативного стресса запускают стойкий ответ на повреждение ДНК. Опухолевый стресс способен создать защитный пролиферативный барьер; это одна из причин, по которым универсальная элиминация всех сенесцентных клеток не выглядит безопасной целью. Отдельный вариант — митохондриально обусловленная сенесценция MiDAS: нарушение дыхания, изменение соотношения NAD⁺/NADH и активация AMPK–p53 могут сочетаться с секреторным профилем, отличным от классического IL-1-зависимого SASP. В экспериментальных моделях MiDAS ослаблялась секреция некоторых IL-1-зависимых факторов; это не правило отсутствия IL-6 во всех митохондриально повреждённых тканях (Wiley и соавт., 2016).
Два взаимодействующих тормоза клеточного цикла — оси p53–p21 и p16INK4a–Rb. p21 ограничивает активность комплексов циклин E/A–CDK2; продукт CDKN2A p16INK4a связывает CDK4/6 и препятствует их работе с циклинами D. При недостаточном фосфорилировании Rb сохраняет связывание с E2F и подавляет транскрипцию генов входа в S-фазу, включая компоненты репликационного аппарата. Изменение H3K27me3 в локусе CDKN2A, участие деметилаз вроде KDM6B/JMJD3, рекрутирование HDAC и формирование H3K9me3-богатых сенесцентно-ассоциированных фокусов гетерохроматина могут стабилизировать арест. Однако SAHF формируются не в каждой сенесцентной популяции; отсутствие этих фокусов не исключает состояния. Продолжительная остановка деления также не тождественна абсолютной необратимости при любых экспериментальных манипуляциях (Campisi и d’Adda di Fagagna, 2007; Gorgoulis и соавт., 2019).
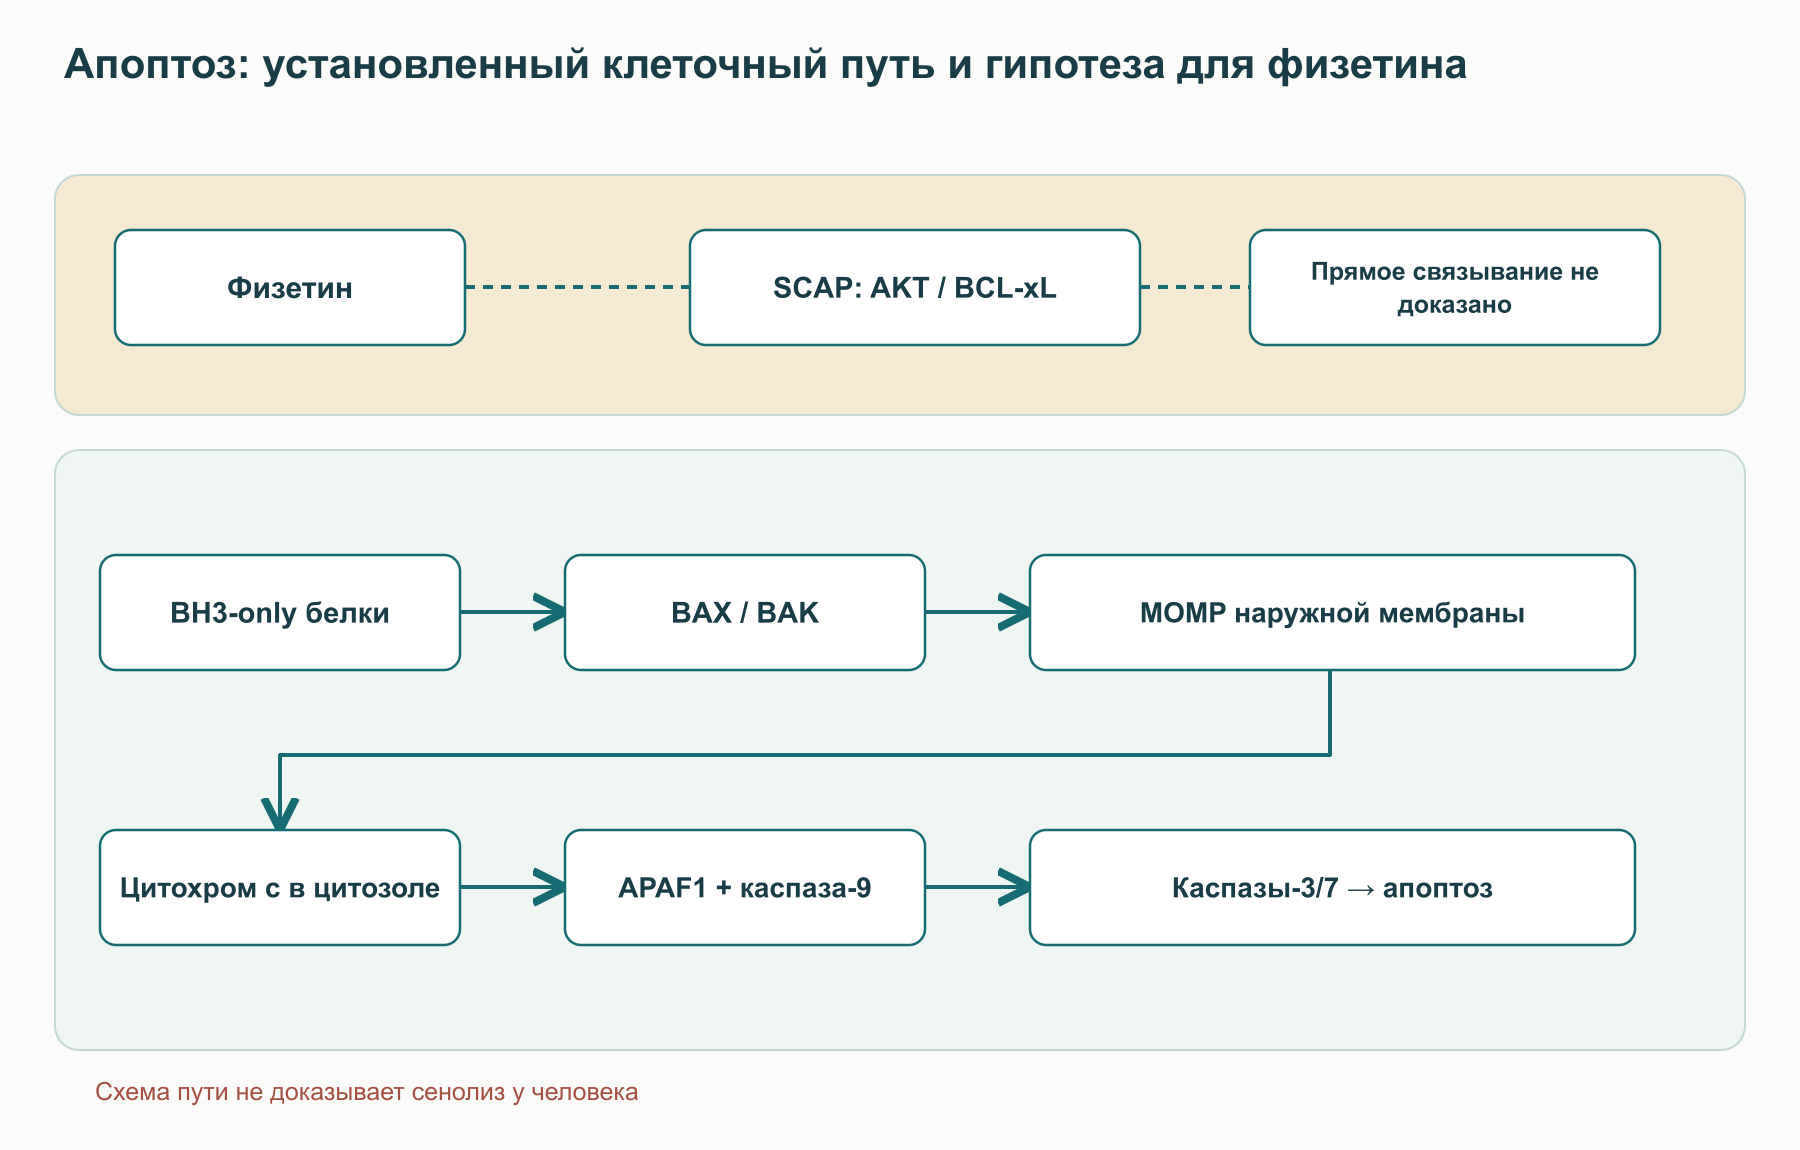
Повреждённая клетка может пережить высокий проапоптотический сигнал за счёт антиапоптотических путей SCAP. В разных моделях это зависимость от BCL-2-подобных белков BCL-xL, BCL-2, BCL-w, от PI3K–AKT, пептидного ингибитора p21, серпина PAI-1 либо связанных с рецепторами тирозинкиназ сигналов. AKT после рекрутирования к мембранному PIP₃ фосфорилируется PDK1 по Thr308 и mTORC2 по Ser473; фосфорилирование BAD и другие выходы поддерживают выживание. BH3-only белки BIM, PUMA и NOXA могут повышаться при повреждении, но это не универсальная «сверхвысокая» концентрация во всех сенесцентных клетках. В опытах Zhu и соавт. зависимость от BCL-xL и других SCAP менялась между преадипоцитами, эндотелиальными клетками и фибробластами. Следовательно, селективность сенолитика необходимо устанавливать для каждой клеточной модели, а не выводить из общей схемы апоптотического порога (Zhu и соавт., 2015).
Слой защиты или ареста
Молекулярное содержание
Что измерение не доказывает
p53–p21; p16–Rb–E2F
Ответ на повреждение и ограничение циклин-зависимых киназ
Один положительный маркер не устанавливает причину и длительность ареста
BCL-xL/BCL-2/BCL-w; PI3K–AKT
Зависимые от клетки пути выживания и подавления MOMP
Экспрессия белка не равна прямому связыванию с физетином
SAHF и изменения хроматина
Один из способов стабилизации транскрипционной программы
SAHF не обязательны для всех видов сенесценции
SASP
Секреция цитокинов, хемокинов, протеаз и факторов роста
Падение одного белка не показывает клиренс клеток
SASP — секреторная программа, а не неизменный «токсин». IL-6, IL-1α/β, CXCL8, CCL2, TGF-β, VEGF, матриксные металлопротеиназы и внеклеточные везикулы могут включаться в разных сочетаниях; их набор зависит от источника стресса, ткани, времени после ареста и иммунного окружения. В определённых моделях IL-1 и NF-κB поддерживают воспалительный контур, JAK/STAT3 передаёт сигналы соседним клеткам, а MMP изменяют внеклеточный матрикс. Паракринная передача сенесцентноподобного состояния возможна, но её нельзя автоматически отождествить с клиническим распространением старения по организму. Временный SASP при репарации может иметь полезную функцию; хроническая воспалительная программа — потенциально другую (Coppé и соавт., 2008; Gorgoulis и соавт., 2019).
Молекула физетина и пределы пищевого сравнения
Физетин имеет формулу C₁₅H₁₀O₆ и молярную массу 286,24 г/моль. Его скелет C₆–C₃–C₆ включает хромоновое кольцо с 4-кетогруппой, 3- и 7-гидроксилами и катехольный фрагмент 3′,4′-OH на фенильном кольце. Катехол может участвовать в окислительно-восстановительных превращениях и комплексообразовании, а сопряжённая система влияет на физико-химические свойства. У кверцетина дополнительно есть 5-OH; она способна образовать внутримолекулярную водородную связь с 4-карбонилом. Это реальное структурное различие, но из него одного нельзя вычислить сродство к PI3K, BCL-xL, гематоэнцефалический транспорт или селективность сенолиза. Параметр logP меняется в зависимости от метода и состояния и не заменяет измерения свободной концентрации в ткани.
В растениях флавонольный скелет возникает через фенилпропаноидный путь: фенилаланинаммиаклиаза переводит L-фенилаланин в коричную кислоту, последующие реакции ведут к 4-кумароил-CoA; халконсинтаза конденсирует этот субстрат с тремя малонил-CoA, халконизомераза формирует флаваноновый скелет, а гидроксилирование и окисление участвуют в образовании флавонола. Эту схему нельзя читать как доказанный единый маршрут синтеза физетина во всех упомянутых растениях. Физетин и его конъюгаты обнаруживаются в скумпии, некоторых ягодах, фруктах и овощах, включая клубнику, яблоки и хурму. Содержание в пище зависит от сорта, ткани, зрелости и аналитического метода; точные цифры из исходной таблицы не имеют достаточно устойчивой привязки к методу и образцу, чтобы выдавать их за универсальные нормы. Пищевое поступление не эквивалентно исследовательской дозе чистого вещества. Но и обратный вывод — будто конкретная граммовая доза «необходима» для сенолиза человека — из этого различия не следует.
В работе Yousefzadeh и соавт. (2018) сравнивали десять флавоноидных/полифенольных кандидатов в клеточных моделях, среди которых физетин был наиболее активным по выбранным показателям. Доза 5 мкМ использовалась при первичном сравнении на Ercc1-дефицитных фибробластах; в человеческих IMR90 после этопозида оценивали 1–15 мкМ в течение 48 часов. Уменьшение числа жизнеспособных SA-β-gal-положительных клеток при сопоставлении с общей жизнеспособностью согласуется с сенолитической активностью в этих условиях. Это не ранжирование эффективности всех природных соединений в любом типе клетки. В той же работе эффект на отдельные популяции жировой ткани мыши и человеческие экспланты был клеточно-специфичным; эксплант человека, обработанный 20 мкМ ex vivo, не является испытанием приёма физетина человеком.
От сигнального пути к гибели клетки: что известно о механизме
Словосочетание «физетин ингибирует PI3K/Akt/mTOR» объединяет несколько различных экспериментальных утверждений. PI3K класса I использует ATP для фосфорилирования мембранного PI(4,5)P₂ до PI(3,4,5)P₃; липидный продукт рекрутирует PH-домены AKT и PDK1. PDK1 фосфорилирует AKT по Thr308, mTORC2 — по Ser473. Активная AKT воздействует на BAD, TSC2, FOXO и другие субстраты, а mTORC1 через S6K и 4E-BP1 регулирует рост и синтез белка. Снижение фосфорилирования этих выходов после добавления физетина наблюдалось в различных клеточных работах; однако сам по себе такой иммуноблот не доказывает, что физетин занимает ATP-карман PI3Kα или mTOR, и не устанавливает одинаковый механизм во всех сенесцентных типах. Для прямого утверждения о связывании нужны биохимическая аффинность, конкуренция с ATP, структурное подтверждение и сопоставимые клеточные концентрации. Модели докинга отдельных остатков PI3Kα и mTOR и приведённые для них IC₅₀ не устанавливают прямого связывания или механизма сенолиза.
Если активность AKT падает, фосфорилированный BAD может освободиться от белков 14-3-3 и увеличить доступность проапоптотических факторов у наружной мембраны митохондрии. Однако итог зависит от баланса BIM, PUMA, NOXA, антиапоптотических BCL-xL, BCL-2, MCL-1 и эффекторных BAX/BAK; ни один остаток Ser136 не предсказывает исход самостоятельно. Классические сенолитики используют клеточно-специфическую зависимость от этих сетей. Предложенное для физетина прямое BH3-миметическое занятие желобка BCL-xL с контактами Tyr101 и Arg139 основано на структурной интерпретации, для которой доступные первичные данные не дают прямого подтверждения. Особенно важно различать докинг, изменение экспрессии BCL2L1 и вытеснение BIM из очищенного комплекса: это разные уровни данных. Физетин не следует называть фармакологически эквивалентным навитоклаксу или венетоклаксу без сравнительной биохимии.
Исполнительный митохондриальный путь при достаточном проапоптотическом сигнале хорошо описан независимо от физетина. Активирующие BH3-only белки способствуют конформационному переходу и олигомеризации BAX/BAK во внешней митохондриальной мембране. Пермеабилизация этой мембраны (MOMP) позволяет цитохрому c выйти из межмембранного пространства в цитозоль; она не тождественна немедленному полному исчезновению потенциала на внутренней мембране. Цитозольный цитохром c и ATP/dATP поддерживают сборку комплекса APAF1, который рекрутирует прокаспазу-9; димеризация и протеолиз приводят к активации каспазы-9, затем исполнительных каспаз-3/7. Smac/DIABLO ослабляет торможение каспаз белками IAP. Расщепление ICAD освобождает CAD для фрагментации ДНК, а активация XKR8 и подавление удержания фосфатидилсерина на внутреннем листке мембраны способствуют сигналу для фагоцитов. Апоптоз может завершиться эффероцитозом без вторичного некроза, но это зависит от состояния тканей и фагоцитарной системы; «иммунологически абсолютно тихая» гибель не гарантирована.
Избирательность физетина не является бинарным свойством молекулы. В Yousefzadeh и соавт. (2018) жизнеспособность SA-β-gal-положительных клеток в определённых культурах снижалась сильнее, чем общая жизнеспособность, а в жировой ткани ответы различных клеточных подтипов различались. Другие клетки могут отличаться экспозицией, степенью повреждения, метаболизмом полифенола и зависимостью от SCAP. Именно поэтому результаты Ercc1-дефицитных эмбриональных фибробластов, этопозид-обработанных IMR90 и мышиного жира следует приводить с указанием модели. Концепция «апоптотической готовности» помогает сформулировать гипотезу, но не даёт универсального безопасного порога 5–15 мкМ для нормальных стволовых клеток или органов человека.
SASP можно ослабить без элиминации клетки
Сеноморфный эффект требует иного прочтения данных. При активации канонического NF-κB комплекс IKKα/IKKβ/NEMO фосфорилирует IκBα по Ser32/Ser36, после чего SCF^β-TrCP маркирует ингибитор для протеасомной деградации; RelA/p65–p50 получает возможность ядерной транслокации. Эти этапы поддерживают транскрипцию части SASP-генов, но не всего секретома и не во всяком типе сенесценции. Если физетин уменьшает фосфорилирование IκBα, ядерный p65 или секретируемые цитокины в культуре, это подтверждает изменение сигнального выхода в данной модели. Указание конкретных «контактов» физетина с Cys99/Asp166 IKKβ и IC₅₀ 8–12 мкМ в исходной рукописи не следует принимать за доказанный прямой ферментный механизм без отдельного анализа очищенной киназы.
Второй возможный слой контроля — время жизни мРНК. Ось MKK3/6–p38 MAPK–MK2 влияет на фосфорилирование РНК-связывающего белка TTP/ZFP36; фосфорилированный TTP связывает 14-3-3 и хуже содействует удалению AU-богатых цитокиновых транскриптов, тогда как активный TTP может привлекать комплекс CCR4–NOT и РНК-деградацию. Для мышиного TTP часто приводят остатки Ser52/Ser178; номера остатков нельзя механически переносить на человеческий белок. Это правдоподобная архитектура регуляции SASP, но доступные первичные данные не устанавливают, что именно связывание физетина с Met109 p38α является необходимой причиной каждого наблюдаемого снижения IL-6. Периоды полужизни цитокиновых мРНК зависят от модели и не являются универсальными константами.
SIRT1 — NAD⁺-зависимая деацетилаза: при реакции деацетилирования она потребляет NAD⁺, образуя никотинамид и O-ацетил-ADP-рибозу. Деацетилирование Lys310 RelA может ослаблять транскрипционный ответ NF-κB. AMPK реагирует на клеточный энергетический статус и при активации Thr172 меняет баланс анаболизма и катаболизма; связь с NAMPT может влиять на путь восполнения NAD⁺. Изменение активности SIRT1/AMPK после физетина в модели нельзя автоматически назвать доказанным прямым аллостерическим связыванием физетина с SIRT1. Клиническое снижение hs-CRP, IL-6 или TNF-α после приёма физетина также не подтверждено доступными первичными исследованиями. Для более широкого контекста метаболизма NAD⁺ и роли CD38 полезен материал об апигенине и CD38; он не доказывает лечебную синергию двух добавок.
Та же граница применима к «восстановлению стволовых ниш». Хронический SASP способен нарушать окружение Pax7-положительных мышечных клеток-сателлитов, гемопоэтических стволовых клеток и мезенхимальных стромальных клеток. Снижение воспалительной секреции или удаление сенесцентных клеток в животной модели может менять условия ниши. Но конкретное утверждение, что физетин восстанавливает MyoD/миогенин, репопулирует ткань молодыми клетками и возвращает клиническую регенерацию человеку, требует прямого анализа соответствующей модели и исходов. Его нельзя вывести из общего представления о SASP.
Органные фенотипы: результаты разных вмешательств нельзя складывать в один эффект физетина
В эксперименте Yousefzadeh и соавт. (2018) применялись несколько режимов, которые важно различать. У Ercc1-дефицитных прогероидных мышей оценивали клеточные и тканевые маркеры после включения физетина в корм; в части опыта корм 500 ppm давали с перерывами. У 22–24-месячных мышей краткое введение 100 мг/кг в течение пяти дней уменьшало долю SA-β-gal-положительных клеток в паховой жировой ткани, а CyTOF обнаруживал неоднородный ответ клеточных популяций. Человеческие образцы жировой ткани обрабатывали 20 мкМ ex vivo: это подтверждает биологическую реакцию человеческой ткани в чашке, но не достижимую концентрацию или пользу после перорального приёма.
Отдельная когорта обычных мышей начала получать корм с физетином 500 ppm в возрасте 85 недель; это исследование позднего длительного кормления, а не доказательство клинического двухдневного «импульса». В небольшой группе порядка 8–9 животных на ветвь авторы сообщили улучшение медианной и максимальной выживаемости, геропатологических оценок и некоторых маркеров SASP. Величину эффекта на выживаемость нельзя переносить между полами и экспериментами без уточнения способа подсчёта и неопределённости оценки. Малые группы, штамм и длительное вмешательство ограничивают переносимость на людей. Также снижение Cdkn2a/Cdkn1a в ткани может отражать изменение состава клеток и экспрессии, а не точный подсчёт уничтоженных сенесцентных клеток.
Для костей и суставов механизмы изучались в разных экспериментальных вмешательствах. Jeon и соавт. (2017) показали, что локальное удаление сенесцентных клеток после травмы сустава меняло признаки остеоартроза и регенеративное микроокружение; это не клиническое испытание перорального физетина. Farr и соавт. (2017) исследовали направленное воздействие на сенесцентные клетки в модели возрастной потери кости у мышей; результат не удостоверяет конкретное утверждение о физетине, RANKL и восстановлении BMD. Биохимическая последовательность MMP-13/ADAMTS-5 → разрушение коллагена II и аггрекана заслуживает описания как модель катаболизма хряща, но гистологическое окрашивание сафранином O или рост BV/TV нельзя приписывать физетину без соответствующего эксперимента. Поэтому физиологическая мишень и доказанный эффект препарата разделены.
Нейрональный контекст также неоднороден. В исследованиях Currais и соавт. физетин изменял воспалительные и поведенческие показатели в трансгенных и ускоренно стареющих мышиных моделях; изменение p25/CDK5, тау-фосфорилирования и поведения относится к этим моделям и не означает доказанный сенолитический клиренс глии. Работа Bussian и соавт. (2018) убедительно связала генетическое удаление сенесцентной глии с ослаблением тау-зависимой патологии у мышей; в ней не изучали лечение физетином. Липофильность молекулы сама по себе не доказывает свободную экспозицию в гиппокампе, конкретную концентрацию у человека или восстановление долговременной потенциации. «Полное предотвращение деменции» не является результатом указанной базы.
В сосудистой системе сенесцентные эндотелиальные и гладкомышечные клетки могут менять NO-сигнализацию, воспалительную секрецию, матрикс и остеогенные программы вроде RUNX2. Roos и соавт. (2016) показали ослабление сосудистой дисфункции у старых или тучных мышей при длительном сенолитическом вмешательстве, но его нельзя переписать как прямое доказательство снижения скорости пульсовой волны, регресса кальциноза и стабилизации бляшек физетином. Аналогично улучшение HOMA-IR, стеатоза и лептина не установлено адресным первичным опытом с физетином и измеренными исходами. Для каждого органа доказательная цепь должна иметь собственные воздействие, модель и контроль, а не ссылаться на общую возможность сенолиза.
Клиническая трансляция: регистрация испытания ещё не результат
AFFIRM и другие зарегистрированные исследования физетина демонстрируют, что вопросы переносимости, воспалительных показателей и физических функций поставлены для изучения у людей. Опубликованная первичная таблица результатов, подтверждающая снижение цитокинов и улучшение мобильности по этой программе, в использованной базе не найдена. Номера NCT03430037 и NCT03675724 следует рассматривать как идентификаторы протоколов, а не как подтверждение эффективности. Режимы зарегистрированных испытаний относятся к определённой популяции и исследовательской форме; их нельзя превращать в общий стандарт для самостоятельного назначения. Первичные функциональные и биомаркерные конечные точки, число участников, прекращения участия и нежелательные явления должны анализироваться по результатам конкретного исследования, если они опубликованы, прежде чем делать вывод.
COVID-FISETIN и эксперимент Камелл и соавт. (2021) иллюстрируют ту же границу. В старых мышах сенолитические вмешательства изменяли исходы после заражения коронавирусом и поддерживали гипотезу об участии сенесцентных клеток в воспалительном ответе. Они не показывают профилактику фиброза лёгких, снижение D-димера или смертности у людей после физетина. Исследования диабетической болезни почек и периферической артериальной болезни также нельзя описывать как доказанный клиренс подоцитов, улучшение рСКФ и дистанции ходьбы: ссылка Hickson и соавт. (2019) касается сочетания дазатиниба с кверцетином при диабетической болезни почек, а не физетина. Открытый пилот Justice и соавт. (2019) при идиопатическом фиброзе лёгких также изучал D+Q. Различие молекул, дизайна и популяции принципиально.
Оценка сенесценции в исследованиях требует совокупности маркеров и контекста ткани. p16INK4a/CDKN2A в T-лимфоцитах периферической крови отражает состояние этой популяции и может коррелировать с возрастом, но не служит валидированным количественным счётчиком всех сенесцентных клеток сердца, сустава и мозга. SA-β-gal при pH около 6 и флуорогенный C₁₂FDG применяют в определённых клеточных протоколах; лизосомальная активность и условия окрашивания создают ограничения специфичности. Плазменные IL-6, CCL2, MMP-3, активин A и PAI-1 не уникальны для SASP. cfDNA, miR-34a и miR-146a могут иметь множество источников. Пока нет общепринятого клинического порога, по которому такая панель доказывает сенолитическое действие физетина у конкретного пациента.
Экспозиция, конъюгация и проблема сопоставления концентраций
Физетин плохо растворяется в воде; растворение, пища, носитель и кишечный транспорт влияют на доступность агликона. В энтероцитах и печени флавонол подвергается реакциям II фазы: UDP-глюкуронозилтрансферазы переносят глюкуронильную группу из UDP-глюкуроновой кислоты на гидроксилы, сульфотрансферазы используют PAPS как донор сульфата, а катехол-O-метилтрансфераза переносит метил из SAM на катехольный фрагмент, образуя в том числе гералдол. Эти реакции меняют полярность, распределение и аналитически измеряемую форму соединения. Но конкретные изоформы UGT, позиции конъюгатов и сродство каждого метаболита к BCL-xL требуют специфического аналитического или биохимического подтверждения. Значение «абсолютная биодоступность 5–10 %» также нельзя утверждать для человека без внутривенного компаратора и соответствующего дизайна.
Ключевое трансляционное сравнение — свободная концентрация неизменённого агликона в нужной ткани против концентрации, при которой наблюдался эффект в клеточной системе. Общая плазменная AUC, включающая конъюгаты либо измеренная после гидролиза образца, не отвечает на этот вопрос без идентификации аналита. При низкой растворимости, метаболизме первого прохождения, связывании с белками и тканевой неоднородности нельзя приравнивать 5–20 мкМ в культуральной среде к дозе капсулы. Неопределённость касается и мозга: системная экспозиция не гарантирует концентрацию за гематоэнцефалическим барьером.
В небольшом рандомизированном двойном слепом перекрёстном фармакокинетическом исследовании Krishnakumar и соавт. (2022) участвовали 15 здоровых добровольцев. Авторы сравнивали обычный физетин с формой FF-20 на основе галактоманнанов пажитника и сообщили значительно большую плазменную экспозицию физетина и метаболита гералдола у исследованной формы. В первичной публикации представлено отношение AUC порядка 26,9 в условиях этого исследования; его надо читать с указанием аналитической матрицы, дозы и метода, а не как «в 27 раз более сильный сенолиз». Авторы связаны с разработчиком ингредиента и коммерческим партнёром; это не обесценивает фармакокинетическое наблюдение, но повышает значение независимого воспроизведения. Никакой исход по клиренсу сенесцентных клеток, функции или продолжительности жизни в исследовании не измерялся. Увеличение AUC не является основанием выводить дозу 500–1000 мг или арифметически делить предполагаемый «сенолитический курс».
Липосомы, фосфолипидные комплексы и самоэмульгирующиеся системы остаются формуляционными подходами. Их способность повысить растворение не доказывает для всех изделий лимфатическое всасывание, обход печени или клиническую эффективность; состав, размер частиц, стабильность и измерение свободного агликона нужны для сравнения. Сравнение форм только по номинальным миллиграммам без биодоступности и состава методологически некорректно.
Интермиттирующее введение — исследовательская гипотеза, а не бытовой протокол
Идея hit-and-run возникла из предположения, что после краткой элиминации части сенесцентных клеток биологический эффект может сохраняться дольше присутствия сенолитика. Для некоторых вмешательств это подтверждается модельными опытами; для физетина конкретные режимы различались от пятидневного зондового введения до периодов кормления и позднего длительного корма. Поэтому ни «ежедневный приём категорически запрещён», ни «двух дней каждый месяц достаточно» не являются доказанными общими законами. Более того, транзиторная сенесценция может участвовать в репарации, а клетки-предшественники требуют сигналов PI3K–AKT для выживания и пролиферации. Эти обстоятельства дают причины специально исследовать безопасность, время и контекст вмешательства, но не позволяют назначить универсальный интервал «восстановления ниши».
Исследовательские режимы отдельных протоколов не являются утверждённой схемой лечения старения, остеоартроза или COVID-19; пересчёт на массу тела не устанавливает клиническую пользу и безопасность. Особенно ошибочно переносить различие плазменной AUC FF-20 и обычного порошка на предполагаемый «эквивалентный» курс: зависимость между AUC и сенолитическим эффектом у человека не измерена, доля свободного активного агликона в органе неизвестна. Допустимые формулировки для специалиста: уточнить протокол, форму, популяцию, критерии включения, первичный исход и нежелательные явления конкретного испытания; до этих данных не представлять вмешательство как стандарт.
Вопрос
Физетин
Дазатиниб + кверцетин (D+Q)
Тип молекул
Пищевой флавонол с клеточными и животными данными о сенотерапии
Рецептурный ингибитор тирозинкиназ и флавонол; сочетание имеет отдельные пилотные исследования у людей
Модельная клеточная селективность
Обнаружена в части фибробластных и жировых систем; зависит от модели
Зависит от клеточного типа и компонентов комбинации
Данные у людей
Экспланты ex vivo, фармакокинетика и зарегистрированные интервенционные вопросы не равны доказанному лечебному исходу
Пилотные данные при диабетической болезни почек и лёгочном фиброзе нельзя переносить на физетин
Безопасность
Для высоких повторных доз и разных форм не установлена как «превосходная»
Известные риски дазатиниба требуют врачебного контроля; профиль другой
Из этих данных нельзя построить рейтинг «лучшего сенолитика», поскольку молекулы, дозы, ткани и конечные точки не сравнивались в адекватном прямом клиническом испытании. Сопоставление физетина с кверцетином, куркумином и EGCG в клеточном скрининге также не поддерживает готовых «стеков» с физетином. Статья о полифенолах и их безопасности полезна для различения пищевой экспозиции и концентрированных форм, но не служит основанием комбинировать их для сенолиза. Спермидин и апигенин затрагивают соответственно аутофагию/EP300 и метаболизм NAD⁺/CD38 в других экспериментальных контекстах; клинических оснований для сочетанных или последовательных схем с ними нет.
Безопасность нельзя вывести из распространённости физетина в пище. Сравнение пищевых количеств с концентрированными опытными режимами означает другую экспозицию и возможные взаимодействия. Данные об ингибировании CYP1A2, CYP2C9, CYP3A4 и влиянии на агрегацию тромбоцитов следует считать сигналами для фармакологической оценки, особенно при препаратах с узким терапевтическим диапазоном и нарушениях гемостаза; клеточные IC₅₀ не предсказывают величину лекарственного взаимодействия у человека. Конкретный срок отмены перед операцией и перечень абсолютных противопоказаний для высокодозного физетина не установлены клиническими исследованиями. Беременность, лактация, активное лечение тяжёлой болезни, кровотечение и близкая операция требуют индивидуальной медицинской оценки ввиду отсутствия достаточных данных для высокодозного физетина. То же относится к функции печени и почек. Показатели общего анализа крови, АЛТ/АСТ, креатинина, IL-6 или hs-CRP могут отслеживаться в рамках конкретного протокола, но сочетание показателей и частота их повторения не составляют валидированного алгоритма оценки сенолиза.
Клинический вывод пока ограничен экспериментальным уровнем данных. Физетин — важный инструмент для проверки того, можно ли изменить судьбу отдельных сенесцентных популяций и тканевой SASP. Для человека необходимо продемонстрировать контролируемую экспозицию активных форм, репрезентативные тканевые маркеры, пользу по заранее заданному исходу и приемлемый профиль нежелательных событий. Пока эти звенья не связаны, признаки астении, остеоартроза или повышенный hs-CRP сами по себе не являются показаниями к высокодозному «омолаживающему» курсу. Для исследователя центральный следующий шаг — испытания с прозрачным выбором популяции и формы, разделением сенолитического клиренса и сеноморфного подавления SASP и публикацией отрицательных результатов наряду с положительными.
Как подготовлен обзор
Это нарративный обзор фисетина, клеточного старения и SASP на основе подборки из 19 источников. В редакции от 4 октября 2026 года адресно сверены значимые расхождения между клеточными, животными и фармакокинетическими данными. Выявлены случаи, когда результаты других методов удаления сенесцентных клеток приписывались фисетину. Исчерпывающий поиск, метаанализ, формальная оценка риска смещения и независимое рецензирование не проводились; неоткрытые полные тексты не считаются независимо проверенными.
Клеточная культура, эксплант человеческой ткани, непрерывное кормление мышей и краткий фармакокинетический опыт у добровольцев не объединены в доказательство клинической сенолитической терапии. Регистрация испытания обозначает исследовательский вопрос, а не подтверждённый эффект. Режимы из моделей не рассматриваются как универсальные рекомендации человеку.
Частые вопросы
Доказано ли, что физетин омолаживает человека?
Нет. Клеточные и мышиные результаты не устанавливают клинического омоложения; требуются контролируемые результаты с заранее заданными исходами.
Что отличает сенолитическое действие от сеноморфного?
Сенолитическое действие уменьшает число живых сенесцентных клеток, а сеноморфное изменяет их секреторную программу без обязательной гибели.
Можно ли считать уменьшение p16 или IL-6 доказательством сенолиза?
Нет. Эти показатели неспецифичны и без измерения клеточной судьбы не различают гибель, изменение экспрессии и изменение состава ткани.
Есть ли установленный двухдневный курс физетина?
Нет. Двухдневные режимы изучают в протоколах, но лечебная доза, интервал и долгосрочная безопасность для общего применения не установлены.
Что показало исследование FF-20?
У 15 здоровых добровольцев форма на основе галактоманнанов повысила измеренную плазменную экспозицию по сравнению с обычным физетином; клиническую пользу не изучали.
Можно ли заменить данные физетина исследованиями дазатиниба с кверцетином?
Нет. Это другое вмешательство, и его результаты нельзя переносить на физетин.