NLRP3, IL-1β және инфламмэйджинг: механизмдер мен шектер — NutriFit
NLRP3 инфламмасомасы: жиналуы, IL-1β және инфламмэйджинг моделінің шектері
NLRP3 инфламмасомасының молекулалық жиналуы, прайминг, K⁺ эффлюксі, IL-1β/IL-18 жетілуі және клиникалық деректер жеке қарастырылады; инфламмэйджинг бір сенсорға тең емес, ал IL-1β блокадасы NLRP3-ті тікелей тежеумен бірдей емес.
Бір макрофаг урат кристалымен, жасушадан тыс АТФ-пен немесе бактериялық токсинмен кездесуі мүмкін, бірақ әр тітіркендіргіштің химиялық құрамына арналған бөлек рецептор қажет емес. NLRP3 инфламмасомасы осындай әсерлерден кейін жасушалық орта өзгергенде жиналады. Жиналған платформа каспаза-1-ді белсендіреді, IL-1β мен IL-18 жетіледі, ал газдермин D-нің бөлшектенуі мембранада тесік ашып, пироптозға әкелуі мүмкін. Бұл реттілік жасушалар мен тәжірибелік модельдерде жақсы сипатталған. Осы бір жолдың созылмалы қабынуды немесе адамның өмір ұзақтығын түсіндіретінін дәлелдеу әлдеқайда қиын.
Платформаның құрылысы және жасушадағы орны
NLRP3 — үш негізгі модулі бар жасушаішілік NLR тұқымдасының ақуызы. N-соңындағы PYD ASC адапторының PYD бөлігімен гомотиптік әрекеттесуді қамтамасыз етеді. Орталық NACHT құрамында нуклеотид байланыстыратын NBD аймағы және оған жақын HD1, WHD, HD2 бар; нуклеотид күйі мен АТФ байланысу/гидролиз циклі конформация өзгеруіне қатысады. C-соңындағы лейцинге бай қайталанымдар (LRR) реттеуші байланыстарды, соның ішінде NEK7 интерфейсінде, құрайды. Домен шекараларының нақты орны қолданылған құрылымдық конструкцияға байланысты; аминқышқыл нөмірлерінің тізімі тірі жасушадағы нақты ақуыз картасын алмастырмайды.
ASC/PYCARD құрамында өзінің PYD және CARD домендері бар. PYD нуклеацияланған NLRP3 желісін жалғастырады, ал CARD CARD–CARD байланысы арқылы прокаспаза-1-ді жинайды. Көп ASC молекуласы филаменттер мен көзге көрінетін «спек» түзеді; прокаспазалардың жақын болуы белсену мен протеолиздік өңделуге ықпал етеді. Каспаза-1 — үлкен p20 және кіші p10 суббірлігі бар цистеин протеазасы. p20₂/p10₂ белгіленімі жетілген фермент формасын сипаттауға пайдалы, бірақ жасушадағы каталитикалық белсенділік толық бөлінген бос суббірліктер пайда болғанша міндетті түрде күтіп тұрмайды. Өздігінен жиналу сигналды күшейтеді: бір сенсор көп адаптор мен эффектор жинай алады.
Крио-ЭМ және биохимия ақуыздың түрлі күйлерін ажыратады. Толық ұзындықтағы тышқан NLRP3 бойынша жұмыс мембранамен байланысқан, PYD бөліктері бүркемеленген шамамен 12–16 суббірліктен тұратын қос сақиналы «тор» көрсетті. MCC950/CRID3-пен байланысқан толық ұзындықтағы адам NLRP3 құрылымы басқа белсенді емес олигомерлік контексті сипаттады. Бұл деректерді тыныш күйдегі адам макрофагындағы барлық NLRP3 цитозольде бір декамер түрінде еркін жүзіп жүреді деген әмбебап тұжырымға біріктіруге болмайды. Орналасуы Гольджидің транс-желісі күйіне, басқа мембраналарға, жасуша түріне және препаратқа байланысты. NLRP3–NEK7-дің бөлек құрылымы NEK7 LRR мен NACHT бөліктеріне қалай байланысатынын және жинаққа қабілетті конфигурацияны қалай қолдайтынын көрсетеді; NEK7-дің құрылымдық рөлі осы киназа NLRP3-ті жай ғана фосфорилдейді дегенді білдірмейді.
Жиналуды прайминг, нуклеотид қалтасының күйі, убиквитиндену, фосфорлану және мембрана алаңдарының қолжетімділігі шектейді. BRCC36/BRCC3 қатысатын жылдам деубиквитиндену, жеке модельдердегі IRAK1 және JNK1 рөлі, сондай-ақ PYD фосфорлануы көрсетілген. Бұл бақылаулар барлық адам жасушасына ортақ міндетті «10–30 минуттық таймер» құрмайды. Сол сияқты жасушалық жүйелерден алынған нақты E3-лигаза мен аминқышқыл қалдықтарының тізімі сәйкес ақуыздарды талдамай, пациенттегі инфламмасома белсенділігін өлшеуге мүмкіндік бермейді.
Праймингтен жинақ сигналына дейін
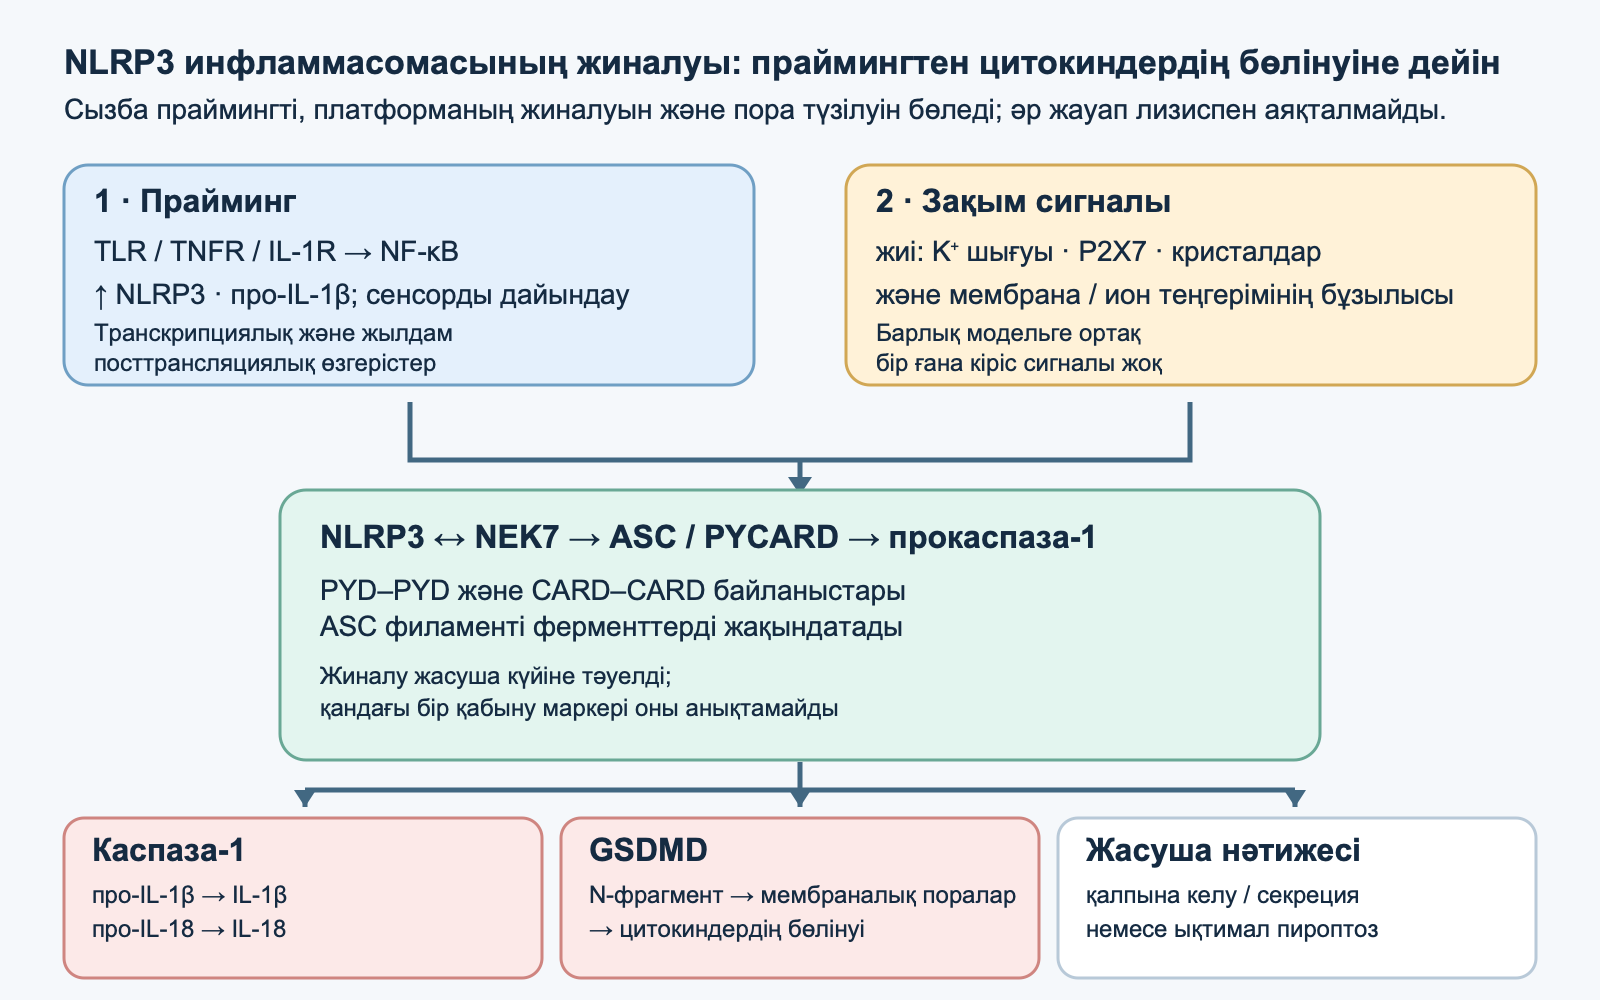
Сигнал 1: субстрат құрып, сенсорды дайындау
Классикалық екі сатылы модельде бактериалдық LPS TLR4 арқылы, басқа TLR лигандары, TNF немесе IL-1 NF-κB-ке дейінгі жасушалық сигнал жолдарын белсендіреді. TLR4 үшін MyD88 және/немесе TRIF арқылы өтетін жол компартмент пен уақытқа байланысты; TNFR1 өз адапторларын пайдаланады, оны «MyD88-тәуелді» жолға механикалық түрде жатқызуға болмайды. IRAK–TRAF6–TAK1–IKK арқылы және IκBα деградациясынан кейін NF-κB димері ядроға кіреді. NLRP3 және әсіресе цитозольдік про-IL-1β кодтайтын IL1B экспрессиясы артады. Бұл каспаза-1 үшін қолжетімді субстрат жасайды. Про-IL-1β-дан өзгеше, про-IL-18 кей жасушаларда қабыну тітіркендіргішіне дейін-ақ болады, бірақ оның экспрессиясы да тін мен күйге тәуелді.
Прайминг посттрансляциялық жолмен де жүреді. Тәжірибелер TLR сигналы өткеннен кейін NLRP3-тен кейбір убиквитин тізбектерін алып тастау және фосфорлану өзгерістері жаңа ақуыз толық синтезделуін күтпей-ақ жауапты күшейте алатынын көрсетті. Сондықтан «сигнал 1» — мРНҚ-ның екі сағаттық өсуі ғана емес, кешенді дайындаудың функционалдық санаты. Транскрипция мен жылдам дайындық қатар жүруі мүмкін. Моноцитте LPS-тен кейін IL-1β өзгеруі иондық зақым болды немесе нигерициннен кейінгідей мөлшерде ASC-спек жиналды дегенді дәлелдемейді.
Сигнал 2: иондық және мембраналық тепе-теңдіктің бұзылуы
Көп классикалық стимул үшін ортақ интегратор — жасуша ішіндегі K⁺ азаюы. Тыныш цитозольде Na⁺/K⁺-АТФазаға байланысты K⁺ концентрациясы жасушадан тыс ортаға қарағанда жоғары. Тәжірибеде сыртқы калийі жоғары буфер әртүрлі токсин мен бөлшектерге NLRP3 жауабын тежеген. Бұл канондық модельдерде эффлюкстің себептік рөлін күшті қолдайды, бірақ барлық жасуша үшін әмбебап «70–90 ммоль/л» биологиялық шегін немесе NLRP3-тің әр жолына ортақ ережені орнатпайды. Әртүрлі стимулдарды әр молекуланы химиялық тану емес, градиент өзгеруі байланыстырады.
Тін зақымынан кейін босайтын жасушадан тыс АТФ ATP-басқарылатын катион арнасы P2X7-ні байланыстырып, K⁺ сыртқа шығуын тудыруы мүмкін; қажет концентрация тәжірибе жүйесіне, АТФ қолжетімділігіне және басқа пуринергиялық жолдарға байланысты. Нигерицин — жасушалық K⁺-ті қайталанымды төмендетуге ыңғайлы зертханалық K⁺/H⁺ ионофоры. Оның әсерін әр адам инфекциясына тән деуге болмайды. Бактериялық пора түзетін токсиндер де мембрананы зақымдап, ион құрамын өзгертеді. Паннексин-1 нақты тәжірибелерде P2X7-ге тәуелді ірі пора жауабымен байланыстырылды, бірақ оны АТФ тудырған әр NLRP3 жауабында міндетті кезекті аралық буын ретінде көрсетуге болмайды.
Бөлшектер басқа жолмен әсер етеді. Фагоцитке түскеннен кейін подаградағы натрий моноураты кристалдары, атеросклероз модельдеріндегі холестерин кристалдары, кремнезем және алюминий тұздары эндолизосомалық мембрананы бұзуы мүмкін. Катепсиндерді қоса лизосома компоненттерінің шығуы жауапқа қатыса алады, бірақ катепсин B тежегіші дәл B NLRP3-тің жалғыз тікелей сенсоры екенін дәлелдемейді. Бұл тәжірибелерде кристалл зақым тізбегін бастайды, кристалл LRR-мен тікелей байланысады дегенді көрсетпейді. Фибриллярлы ақуыз агрегаттары микроглия мен макрофагтарда зерттелді; экспозиция жағдайы мен нейродегенерация кезеңі маңызды.
Митохондриялар қосымша деңгей беруі мүмкін. Кей модельдерде мембрана потенциалының өзгеруі, митохондрияның белсенді оттегі түрлері, цитозольде тотыққан мтДНҚ пайда болуы және кардиолипин орнының өзгеруі байқалды. Алғашқы жұмыстар мұндай оқиғалардың қатысуын көрсетеді, бірақ әрбір NLRP3 стимулы mPTP, VDAC, ox-mtDNA-ның бірдей NLRP3 аймағымен тікелей байланысы және кардиолипин арқылы өтуі міндетті екенін бекітпейді. ROS тежелуі прайминг пен көптеген өзге реакцияға әсер етуі мүмкін. Сенімді механизм уақытты, компартментті және нақты функция жоғалуын ажыратуы керек.
Ca²⁺ пен Cl⁻ иондары, жасуша көлемі және Гольджидің транс-желісінің ыдырауы да жинақ ықтималдығын өзгерте алады. Дегенмен, қолда бар тәжірибелер барлық тіндегі CLIC арналарының 100% үлесі бар «біртұтас міндетті иондық желіні» білдірмейді. K⁺ жоғалуы маңызды әрі жиі кездесетін ортақ механизм, алайда сипатталған ерекшеліктер бар; бұл адам моноциттерінің балама жауабында айқын көрінеді.
Протеолиз: екі цитокин және пора түзуші эффектор
ASC-ақуыз платформасына жиналған соң белсенді каспаза-1 шамамен 31 кДа про-IL-1β-ны ыдыратып, шамамен 17 кДа жетілген IL-1β түзеді. Адам прекурсорындағы негізгі орын Asp116-дан кейін орналасқан. IL-1β-де классикалық сигнал пептиді жоқ, сондықтан ол кәдімгі ЭПР–Гольджи секреция жолымен өтпейді; жасушадан шыққан соң IL-1RAcP корецепторымен бірге IL-1R1-ді байланыстырып, тіндік қабыну жауабын, қызбаны және жедел фаза сигналдарын белсендіреді. Жасушада про-IL-1β болуы жетілген цитокин секрецияланды дегенді білдірмейді. Сарысудағы IL-1β деңгейі, әсіресе төмен болса, өлшеу тәсіліне де байланысты.
Про-IL-18 де каспаза-1 субстраты бола алады. Жетілген IL-18 IL-18Rα/β арқылы әсер етіп, әсіресе IL-12-мен бірге NK және T-жасушаларда IFN-γ жауабын күшейте алады. Бұл жай ғана «қартаюдың зиянды цитокині» емес: оның инфекцияға қарсы қорғаныш және тіндік иммундық бақылау функциялары бар. Биологиялық жауап IL-18 байланыстырушы ақуызына (IL-18BP) және тін контекстіне де тәуелді. IL-1β-ны бейтараптайтын антидене IL-18-ді автоматты түрде өшірмейді.
Каспаза-1 газдермин D (GSDMD)-ні де ыдыратып, N-соңғы доменін ішкі тежелуден босатады. N-соңғы фрагменттер плазмалық мембрананың ішкі бетінде олигомерленіп, пора түзеді. Олар арқылы ұсақ еріген заттар өтеді, IL-1β/IL-18 шығуы мүмкін; осмостық бұзылыс жиі пироптозбен аяқталады. Жасушаның механикалық төзімділігі, мембрананы жөндеу және пора түзу қарқыны кей жағдайда соңғы лизиске дейін секрецияға мүмкіндік береді. GSDMD порасына бір диаметр мен тұрақты «16-мера» беру артық дәлдік болар еді: құрылымдық өлшемдер газдермин түріне, мембрана моделіне және әдіске байланысты. Әдебиеттегі GSDMA3 құрылымы адам макрофагындағы GSDMD порасын тікелей өлшемейді.
Жолды міндетті лизис деген жалған болжамсыз былай қорытындылауға болады:
\mathrm{pro\!\!\!{-}IL\!\!\!{-}18}\xrightarrow{\mathrm{caspase\!\!\!{-}1}}\mathrm{IL\!\!\!{-}18},$$
$$\mathrm{GSDMD}_{\rm full}\xrightarrow{\mathrm{caspase\!\!\!{-}1}}\mathrm{GSDMD}_{\rm N}+\mathrm{GSDMD}_{\rm C};\quad
\mathrm{GSDMD}_{\rm N}\rightarrow\text{мембрана поралары}\rightarrow\text{секреция / ықтимал пироптоз}.$$
Бұл реакциялар молекулалық өзгерістерді көрсетеді, тіндегі нәтижелер стехиометриясын емес. ASC-спектер мен инфламмасома бөлшектері жасуша өлген соң жасушадан тыс қалып, тәжірибеде қабынуды ұстап тұруы мүмкін. Мұндай әсерді бақылау адамда өздігінен тарайтын «прион ауруын» дәлелдемейді.
### Канондық, канондық емес және балама жолдарды біріктіруге болмайды
| Жол мен модель | Жақын сигнал | GSDMD-ні тікелей не кеседі | IL-1β/IL-18 қалай жетіледі | Маңызды шектеу |
|---|---|---|---|---|
| Праймингтен өткен макрофагтағы канондық NLRP3 | Мембрана/ион градиенті зақымы, кристалдар және басқа стимулдар → NLRP3–NEK7–ASC | Каспаза-1 | Инфламмасома платформасындағы каспаза-1 | Көп стимулда K⁺ эффлюксі қажет, бірақ сипатталған контексттердің бәрінде емес |
| Цитозольдік LPS-ке канондық емес жауап | Адамда каспаза-4/5; тышқанда каспаза-11 LPS-ті таниды | Каспаза-4/5/11 | GSDMD поралары мен K⁺ шығуынан кейінгі екіншілік NLRP3–ASC–каспаза-1 белсенуі | LPS-тің цитозольде танылуын беткі TLR4 праймингінен ажырату керек |
| Адамның бастапқы моноциттеріндегі балама NLRP3 | LPS–TLR4–TRIF–RIPK1–FADD–каспаза-8 | Пироптоздық жарылу міндетті белгі емес | NLRP3–ASC–каспаза-1 жетілген IL-1β бере алады | Бастапқы модельде K⁺ эффлюксі мен ASC-спек қажет болмады; оны барлық жасушаға таратуға болмайды |
Адамның канондық емес каспазалары 4/5 және тышқан каспазасы 11 цитозольдік LPS-ті CARD арқылы байланыстырып, GSDMD-ні белсендіре алады. Олар про-IL-1β-ны тікелей өңдеуде каспаза-1-ге тең емес. Егер жасуша тиісті түрде дайындалған болса, GSDMD поралары K⁺-ке тәуелді екіншілік NLRP3 белсенуін іске қосады. Ал адам моноциттері туралы жұмыс ерекше ASC-спектерсіз, K⁺ эффлюксінсіз және пироптозсыз LPS-тәуелді балама NLRP3 жауабын көрсетті. Бұл LPS пен АТФ-ты бөлек, кезекпен екі рет енгізу пайдалы зертханалық хаттама болғанымен, бүкіл физиологияға ортақ заң емес екенін түсіндіреді.
## Инфламмэйджинг: модельден адамға дейін
«Инфламмэйджинг» термині жасқа байланысты созылмалы төмен қарқынды қабыну фонына бейімділікті сипаттайды. Бұл популяциялық сипаттама, бір IL-1β, CRP немесе «NLRP3 белсенділігі» бойынша қойылатын диагноз емес. Себептері көп: жасушалық қартаю мен секреторлық фенотип, иммундық қайта құрылу, созылмалы инфекциялар, тосқауылдар мен микробиотаның өзгеруі, тін зақымы, май тіні және метаболизм. Олардың кейбірі NLRP3-ті іске қоса алады; әр адамның жасына байланысты қабынуының жалғыз немесе басты көзі NLRP3 деген кері тұжырым анықталмаған.
Семіз тышқанның май тінінде және жасушалық тәжірибелерде қаныққан май қышқылдары мен метаболизмдік сигналдар NLRP3-ке тәуелді қабынуды күшейтті; жолдың жекелеген компоненттерін алып тастау инсулин жауабын өзгертті. Бұл мета-қабыну гипотезасын қолдайды, алайда белгілі бір рациондағы генетикалық модификацияланған тышқан адамның диабетке дейінгі ұзақ тарихын түгел қайталамайды. Адамдарда семіздік, инсулинрезистенттілік және қабыну маркерлері көптеген жолдар арқылы корреляцияланады. Деректер дене салмағына қарап жеке адамға «NLRP3 тежегіші» дозасын тағайындауға немесе NLRP3-ті 2-типті диабеттің әр жағдайының дәлелденген бастапқы себебі деуге мүмкіндік бермейді.
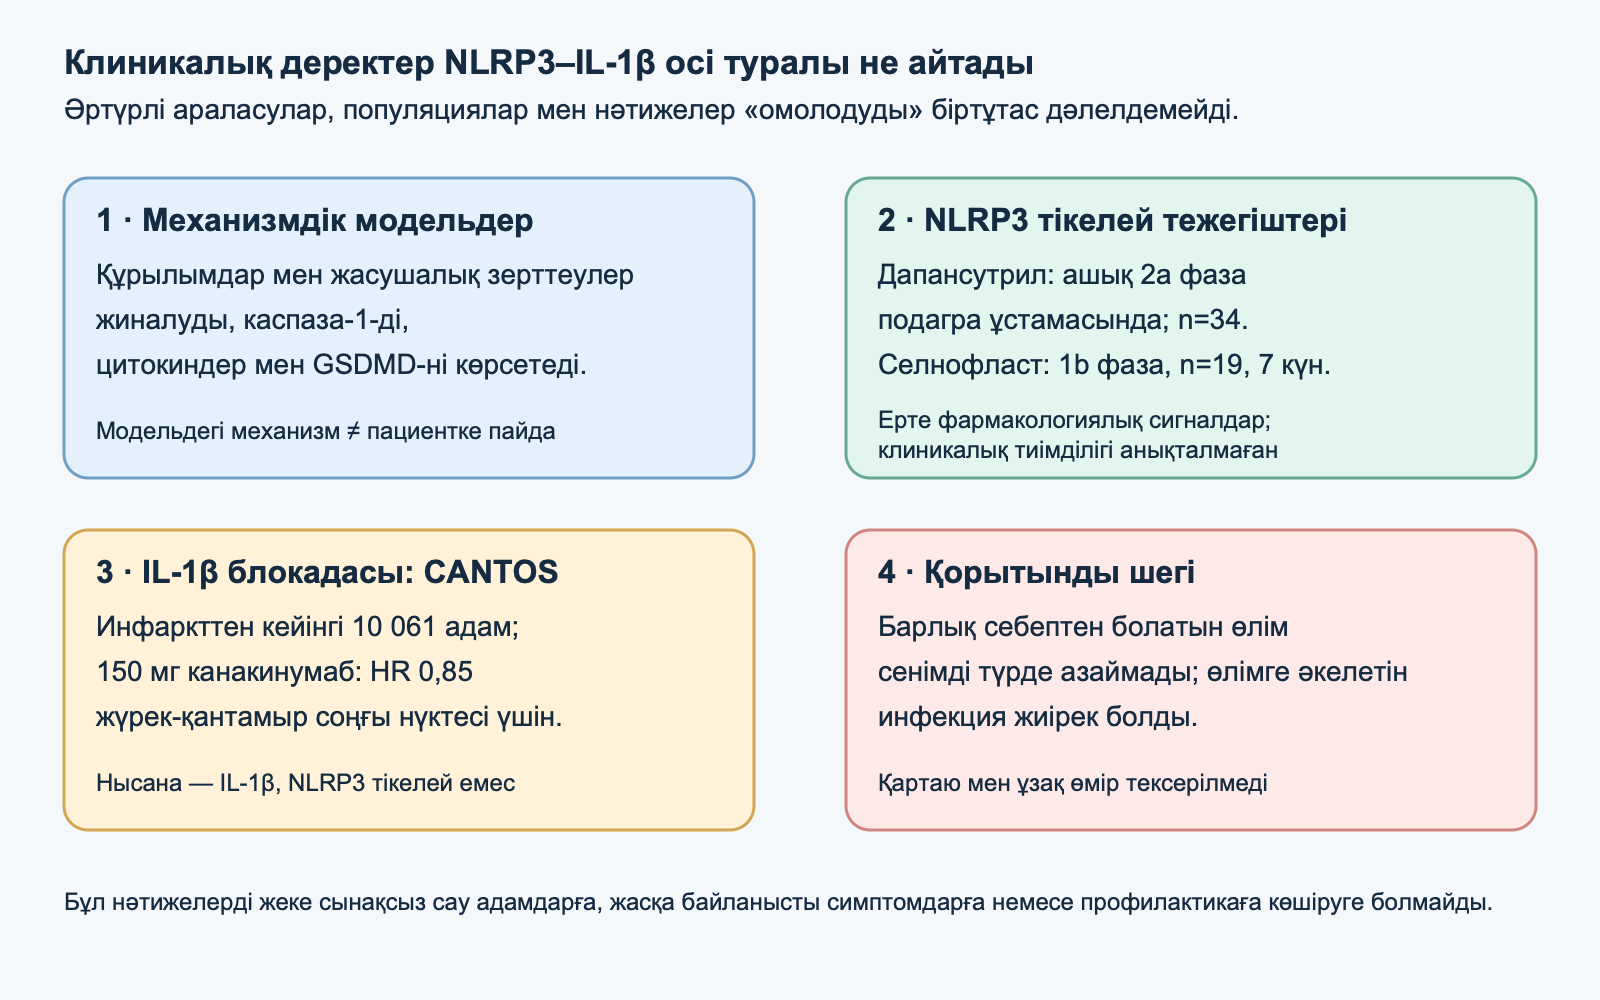
Холестерин кристалдары макрофагтарда NLRP3 жауабын туғызды, ал атерогенездің тышқан модельдері осы жолдың белгілі шарттардағы үлесін көрсетті. Адам бляшкасында липопротеиндер, гемодинамика, некроздық ядро және басқа иммундық желілер де әсер етеді. CANTOS клиникалық сынағы **IL-1β** блокадасын, NLRP3-ті таңдамалы өшіруді емес, тексерді: канакинумаб алынған жүрек-қантамыр әсеріне NLRP3 міндетті түрде қажет болды деген қорытынды жасауға мүмкіндік бермейді. CRP азаюы фармакодинамикалық жауапты растайды, бірақ дәлелденген қартаю баяулауына тең емес.
Тышқанның амилоид жиналу модельдерінде NLRP3 микроглия патологиясына қатысқан; агрегатталған α-синуклеин жеке тәжірибелік жүйелерде инфламмасома жауабын тудырған. Бұл нәтижелер жасуша реакциясын нейродегенерация гипотезасымен байланыстырады, бірақ NLRP3 блокадасы адамда Альцгеймер немесе Паркинсон ауруын емдейтінін растамайды. Бауыр, бүйрек және басқа мүшелер фиброзы туралы деректер күрделірек: TGF-β, макрофагтар, метаболизмдік зақым және эпителий жауаптары өзара астасқан. Тіндегі ASC боялуының немесе NLRP3 транскрипт санының азаюы клиникалық нәтиже дәлелін алмастырмайды.
[](https://api.nutrifit.health/api/v2/public/knowledge/files/images/nutrifit-scientific-20261009-nlrp3-inflammasome-il1beta-inflammaging-drivers-nlrp3-evidence-ladder-875aac6b8f8b.png)
### «Инфламмэйджинг» неге тұрақты белсенді инфламмасомамен тең емес
Кей популяцияларда жас ұлғайған сайын орташа CRP, IL-6 және өзге маркерлердің көтерілуі әрбір егде жастағы адамда NLRP3 үздіксіз жиналады дегенді білдірмейді. Бұл термин үрдіс пен адамдар арасындағы әркелкілікті сипаттайды; маркерлерге жасырын не жуырдағы инфекциялар, темекі шегу, семіздік, созылмалы аурулар, дәрілер, бүйрек пен бауыр қызметі, дене белсенділігі және когорт құрамы әсер етеді. Иммундық қартаю туа біткен және адаптивті жасушаларды қатар өзгертеді: ескі моноциттер басқаша прайминг алуы, лимфоциттер жауапты басқаша реттеуі, ал зақымданған тіндер көбірек DAMP сигналын беруі мүмкін. Қандағы IL-1β-ны өлшеу оны қандай жасуша шығарғанын, жетілген түрін қай процессор түзгенін немесе себеп NLRP3 болған-болмағанын көрсетпейді.
Сенесцентті жасушалар, митохондрия стресі, тосқауыл бұзылысы, кристалдар, өзгерген микробиота және метаболизмдік артық жүктеме — қабыну желілеріне кіретін әртүрлі ықтимал сигналдар. Олардың салыстырмалы үлесі тін мен ауруға байланысты. Бір модельде сигнал TLR/NF-κB-тен басталса, басқа модельде цитозольдік LPS-тен, кристалл зақымынан немесе өзге инфламмасомадан басталуы мүмкін. Тәжірибеде NLRP3-ке тәуелді компонент табылуы AIM2, NLRC4, каспаза-4/5, cGAS–STING, адаптивті иммундық жауаптар мен инфламмасомадан тыс цитокиндердің үлесін жоққа шығармайды.
Сондықтан «жас → DAMP → NLRP3 → қабыну → қартаю» тізбегі тексерілетін схема ретінде пайдалы, бірақ адамдағы дәлелденген сызықтық себептік тізбек емес. Қартаюдың алдын алу туралы айту үшін мишеньге жетуді ғана емес, инфекция және өзге қауіптер бақыланған жеткілікті ұзақ сынақта алдын ала белгіленген нәтижеде клиникалық маңызды өзгерісті көрсету керек. Тышқан моделі де, препараттан соң IL-1β-ның қысқа уақытқа төмендеуі де мұндай сынақты алмастырмайды.
### Ауру, модель және қорытынды күштілігі
| Контекст | Не зерттелді | Нәтиже нені қолдайды | Нені анықтамайды |
|---|---|---|---|
| Подагралық қабыну | Жасуша мен жануар модельдеріндегі натрий моноураты кристалдары және NLRP3 | Кристалл фаголизосома зақымын және кейінгі инфламмасома белсенуін туғыза алады | Адамдағы әр шабуыл тек NLRP3-тен болады немесе механизм схемасы жеке емді анықтайды деуді |
| Атеросклероз | Бляшка модельдеріндегі холестерин кристалдары мен NLRP3 | Кей модельдерде туа біткен қабыну атерогенезге қатысады | CANTOS NLRP3-ті тікелей тежеді немесе клиникалық пайданың жалғыз делдалы NLRP3 болды деуді |
| Семіздік пен инсулинрезистенттілік | Май жүктемесі жоғары жасушалық және генетикалық модельдер | Берілген модельде NLRP3 кей метаболизмдік сигналдарды қабынумен байланыстыра алады | NLRP3 жою адамда диабетті болдырмайды немесе инсулинрезистенттіліктің барлық түрін түсіндіреді деуді |
| Нейродегенеративті аурулар | Негізінен тәжірибелік модельдердегі микроглия, амилоид немесе α-синуклеин агрегаттары | Инфламмасома агрегаттарға жауап беріп, жергілікті қабыну үдерістерін өзгерте алады | NLRP3 тежегіші Альцгеймер не Паркинсон ауруын емдейді немесе адамда танымды сақтайды деуді |
| Қартаю | Жасқа байланысты маркерлер, тіндер және тәжірибелік модельдер | Қабыну жолдары күрделі жасқа байланысты қайта құрылудың бір бөлігі болуы мүмкін | Бір биомаркер қартаю жылдамдығын өлшейді немесе бір жолды тежеу адам өмірін ұзартады деуді |
Атеросклероз модельдерінде холестерин кристалдары қабыну жауабын белсендірді, ал адамның коронарлық ауруында клиникалық тексеруден басқа араласу нүктесі — IL-1β өтті. Бұл дәлел деңгейлерін бір тұжырымға біріктіруге болмайды. Микроглия мен агрегаттарға қатысты эксперименттік жұмыстар да нейроқабынудың биологиялық тұрғыдан ықтимал екенін көрсетеді, бірақ клиникалық тиімділігін емес. Бұл әдебиетті бөлек қарастырғысы келетіндерге [нейроқабыну және микроглия](/kk/knowledge/neuroinflammation-microglia-kynurenine-pathway) және [байкалин және нейроқабыну](/kk/knowledge/skullcap-baicalin-neuroinflammation-gaba) материалдары пайдалы; олардың болуы өсімдік өнімдері адамда инфламмасоманы тежейді дегенді білдірмейді.
## Клиникалық араласулар нені көрсетеді
### CAPS кезіндегі IL-1β блокадасы: сирек моногендік синдромды емдеу
Криопиринмен байланысты мерзімді синдромдар (CAPS) IL-1β шамадан тыс өндірілуіне әкелуі мүмкін NLRP3 патогендік нұсқаларымен байланысты. Бұл сенсор мен цитокин арасындағы генетикалық анықталған байланысы бар сирек ауруға мысал. Канакинумабты рандомизацияланған зерттеуде CAPS бар 35 пациент алғашында препаратты тері астына алды; бастапқы фазада 34 толық жауапқа жетті. Рандомизацияланған тоқтату кезеңіне өткен 31 қатысушының канакинумабты жалғастырған 15-інде ремиссия сақталды, ал плацебо алған 16 адамның 13-інде қайта өршу болды. Инфекциялар тіркелді; ауыр жағымсыз құбылыстар арасында уросепсис және бас айналу болған.
Бұл нәтиже сирек кездесетін нақты синдромдардағы IL-1β клиникалық рөлін және осы популяцияда цитокин блокадасының тиімділігін қолдайды. Ол сол препарат жасқа байланысты белгісіз симптомдарда, кәдімгі төмен қарқынды қабынуда немесе нейродегенерацияда жарамды екенін дәлелдемейді. Оның үстіне канакинумаб инфламмасомадан төмен орналасқан IL-1β-ны байланыстырады; бұл барлық тінде NLRP3-ті селективті өшірудің тікелей тәжірибесі емес.
### CANTOS: қабыну гипотезасын тексеру, бірақ NLRP3 препараты емес
CANTOS миокард инфарктісін өткергеннен кейін жағдайы тұрақты және hsCRP деңгейі 2 мг/л-ден кем емес 10 061 адамды қамтыды. Қатысушыларды тері астына плацебо немесе үш айда бір рет 50, 150 не 300 мг канакинумаб алуға рандомизациялады; бақылаудың медианалық мерзімі 3,7 жыл болды. Біріншілік құрама соңғы нүктеге өлімге әкелмейтін инфаркт, өлімге әкелмейтін инсульт немесе жүрек-қантамыр өлімі кірді. Оқиға жиілігі плацебо тобында 100 адам-жылға 4,50, ал 150 мг тобында 3,86 болды; осы доза үшін қауіп арақатынасы 0,85 (95% сенімділік аралығы 0,74–0,98; p=0,021) еді. Біріншілік соңғы нүкте үшін алдын ала белгіленген түзетілген маңыздылық шегінен тек 150 мг доза өтті. Айырмашылықтар липидтердің төмендеуімен қатар жүрмеді; барлық себептен болатын өлім статистикалық мәнді өзгерген жоқ. Канакинумаб топтарын біріктіргенде өлімге әкелетін инфекциялар жиілігі жоғарырақ болды.
CANTOS — туа біткен иммунитет жолына араласу мен қайталанатын жүрек-қантамыр оқиғаларын нақты жоғары қауіп тобында тексерген маңызды сынақ. Препарат нысанасы жетілген IL-1β болды, NLRP3, ASC, каспаза-1 немесе GSDMD емес. IL-1β әртүрлі жасушалар мен процессорлардан пайда болуы мүмкін болғандықтан, антидене әсерінің өзі инфламмасома қажетті механизм екенін анықтамайды. Зерттеу биологиялық жасты өлшемеді және өмірді ұзартуды сынамады. «CANTOS омолодил» деу оның дизайны мен нәтижелерінен әлдеқайда асып кетеді.
### NLRP3-тің тікелей тежегіштері: ерте клиникалық сигналдар
Дапансутрил (OLT1177) — ауыз арқылы қабылданатын селективті NLRP3 тежегіші. Подагра ұстамасы кезіндегі ашық адаптивті 2a-фаза зерттеуінде 34 ересек сегіз күн бойы тәулігіне 100, 300, 1000 немесе 2000 мг алды; 29 адам протокол бойынша талдауға кірді. Ауырсынудың орташа өзіндік бағасы бастапқы деңгейден төмендеді, бірақ плацебомен салыстыру болмады, топтар шағын болды, дозалар кезекпен тағайындалды, ал подагра ұстамалары уақыт өте немесе қосымша көмектің әсерінен басылуы мүмкін. Сондықтан байқалған жақсару себептік әсердің көлемін анықтамайды. Жағымсыз құбылыстар 34 қатысушының 25-інде тіркелді; 45 оқиға және зерттеушілер препаратқа қатысы жоқ деп санаған екі ауыр оқиға хабарланды. Бұл деректі «жағымсыз әсер болмады» деп те, подаграның ұзақ мерзімді профилактикасы расталды деп те жеткізуге болмайды.
Рандомизацияланған 1b-фаза зерттеуінде селнофласт белсенділігі орташа немесе ауыр ойық жаралы колиті бар 19 ересекте қарастырылды. Қатысушылар жеті күнге селнофласт немесе плацебоға 2:1 қатынасында бөлінді; селнофласт дозасы тәулігіне бір рет 450 мг болды. Плазма мен сигма тәрізді ішек биоптаттарындағы концентрациялар тәжірибелік өлшемдерде IL-1β тежелуімен байланыстырылған есептік диапазонға жетті. LPS-пен ex vivo стимуляциядан кейін препарат тобында тұтас қанда IL-1β өндірісі азайды, бірақ плазмадағы IL-18 өзгерген жоқ, ал ішек тініндегі IL-1 сигнатурасы мен нәжіс маркерлері бойынша топаралық сенімді айырмашылық болмады. Зерттеу қысқа әрі шағын болды, тіндік мишень өлшемі жанама еді; ол қауіпсіздікті, фармакокинетиканы және фармакодинамиканы бағалады, клиникалық ремиссияны немесе асқыну профилактикасын емес.
Осы екі ерте сигналдың ешқайсысы препаратты «жасты азайту» үшін сау адамдарға беруге негіз болмайды. NLRP3 тікелей тежегіші мен IL-1β антиденесі — бөлек араласулар: біріншісі молекуланың фармакологиялық профилі шегінде сенсор жинақталуын/белсенділігін тежейді, екіншісі түзілгеннен кейін бір цитокинді бейтараптайды. Олардың әсерін, тіндегі таралуын, қайтымдылығын және тәуекелін бірдей деуге болмайды.
## Биомаркерлер мен араласулардың практикалық шектері
CRP, IL-6 жоғары болуы немесе IL-1β-ны бір рет өлшеу NLRP3 белсенділігінің арнайы тесті емес. Клиникада көрсеткіш қабынуды бағалауға немесе анықталған ауру барысын бақылауға көмектесуі мүмкін, бірақ инфламмасома туралы тікелей қорытынды үшін тиісті жасушаны, жетілген цитокиндерді, каспаза процесингін немесе жолдың өзге компоненттерін бағалау қажет. ASC-спек сынағы не стимулданған жасуша талдауы механизм өлшейді екен деп қартаюдың валидтелген тестіне айналмайды.
Аутоқабыну ауруына күдік болса, қайталанатын ұстамалардың сипаты, басталған жасы, қызба, тері мен буын белгілері, отбасылық анамнез, жедел фаза талдаулары және клиникалық иммунолог не ревматолог кеңесі маңызды. Генетикалық нұсқаны клиникалық фенотиппен салыстыру керек: NLRP3-тегі сирек алмастыру патогенді мутация дәлелденді деген сөз емес, ал теріс панель барлық қабыну себептерін жоққа шығармайды. Генотипті өз бетінше тежегіш тағайындау деп түсіндіру қауіпті.
Созылмалы қабыну ауруында ем жасуша биологиясының бір болжамды схемасына емес, диагноз бен сол популяциядағы сынақтарға сүйеніп таңдалады. IL-1-ді бейтараптау, NLRP3-ті басу, каспаза-1-ді тежеу және GSDMD-ні өзгерту әртүрлі түйіндерге әсер етеді. Туа біткен қорғанысты кеңінен әлсірету инфекция жауабын өзгертуі мүмкін; CANTOS-та өлімге әкелетін инфекциялар нақты қауіпсіздік сигналы болды. Сонымен бірге барлық қабыну зиян емес: IL-1β және IL-18 инфекция бақылауына және тіндік иммунитетке қатысады, ал зақымға қысқа жауап созылмалы үдерістен бөлек.
Бастапқы материалдарда ресвератрол, мелатонин, магний, омега-3, ацетил-L-карнитин және альфа-липой қышқылының жоғары дозалары NLRP3-ті басу сызбасы сияқты тізілген. Жасушалық механизм немесе зат туралы доклиникалық жарияланым оның адамдарға арналған дозасын, клиникалық әсерін не қауіпсіздігін белгілемейді. Бұл мақала қоспалар хаттамасын ұсынбайды және подагра, CAPS, жүрек-қантамыр немесе ішектің қабыну ауруларын емдеуді алмастырмайды. Тамақтану, ұйқы, қозғалыс және темекіден бас тарту өз алдына медициналық негіздермен талқылануы мүмкін; оларды инфламмасоманың дәлелденген фармакологиялық блокадасы деп атауға болмайды.
## Дәлелдерді қалай оқу керек
Алдымен араласу нақты қай нысанаға әсер еткенін тексеріңіз: NLRP3, IL-1β, IL-1R, каспаза-1 немесе өзге компонент. Содан кейін жасуша не жануар моделін адам сынағынан, нысанаға қысқа уақыт әсер етуді симптом өзгерісінен, симптом нәтижесін асқыну, өлім және өмір ұзақтығынан ажыратыңыз. Клиникалық есепте популяция, бақылау тобы, ұзақтығы, доза, алдын ала белгіленген соңғы нүкте, қатысушы жоғалуы, жағымсыз құбылыстар және қосымша қаржыландыру маңызды. Қатысушысы аз зерттеуде сигнал болмауы әсер жоқ екенін дәлелдемейді, бірақ биологиялық тұрғыдан қисынды механизм де оң клиникалық нәтижеге айналмайды.
| Бақылау | Қорытындының орынды деңгейі |
|---|---|
| Жасушада NLRP3 жиналуы, цитокин кесілуі немесе GSDMD поралары | Осы модельдегі механизмді қолдайды |
| Аурудың жануар моделіндегі генетикалық нокаут немесе тежегіш | Сол модель мен жағдайларда нысананың себептік үлесін қолдайды |
| Қысқа фармакологиялық әсер кезінде IL-1β төмендеуі | Фармакодинамикалық сигнал; міндетті түрде клиникалық пайда емес |
| Инфаркттен кейін канакинумаб қолданған CANTOS | Таңдалған популяциядағы кей жүрек-қантамыр нәтижелеріне IL-1β блокадасының әсері |
| Жоғарыда аталған кез келгені жеке алғанда | Омолодуды, ұзақ өмірді немесе жасқа байланысты аурулардың әмбебап профилактикасын дәлелдемейді |
## Әдіс және осы шолудың шектері
Бұл — құрылымдық және функционалдық жұмыстарға, ауру модельдеріне және клиникалық сынақтарға жасалған нарративтік шолу; жүйелі іздеу емес. 2026 жылғы 9 қазанда NLRP3 құрылымдары, моноциттердегі балама белсену, CANTOS пен дапансутрилдің клиникалық сынақтары, сондай-ақ селнофласттың фармакокинетикасы мен фармакодинамикасы туралы алғашқы жарияланымдар арнайы тексерілді. Жүйелі хаттама, бұрмалау қаупін ресми бағалау, GRADE және сыртқы рецензия жүргізілген жоқ. Негізгі шектеулер — NLRP3 пен инфламмэйджинг байланысы жөніндегі жасушалық және жануарлық деректердің басымдығы және қартаю не ұзақ өмір нәтижелері бар тікелей NLRP3 тежегіші сынағының болмауы. Механизмдік және клиникалық қорытындылар дерек түрі мен араласу нысанасы бойынша бөлек көрсетілді.
Жоқ. CANTOS инфаркттен кейінгі жоғары қауіпті адамдарда IL-1β бейтараптануын тексерді. Бұл NLRP3 тікелей тежегішінің сынағы болған жоқ және қартаю не ұзақ өмір өлшенбеді.
IL-1β мен IL-18 бірдей ме?
Жоқ. Екеуі де инфламмасома белсендіретін каспаза-1 арқылы өңделеді, бірақ рецепторлары мен иммундық қызметтері әртүрлі.
Инфламмасома белсенсе, жасуша міндетті түрде өле ме?
Жоқ. GSDMD поралары секрецияға мүмкіндік береді, бірақ пироптоз және лизис әр жауапта болмайды; нәтиже жасуша күйі мен сигналға байланысты.
Қандағы CRP NLRP3 белсенділігін көрсетеді ме?
Жоқ. CRP жүйелік қабынуды көрсететін бейспецификалық маркер. Ол инфламмасома жиналуын немесе каспаза-1 өңдеуін тікелей өлшемейді.
NLRP3 нұсқасы болса, тежегіш қабылдау керек пе?
Жоқ. Генетикалық нұсқаны клиникалық белгілермен және арнайы маман бағасымен салыстыру керек; жалғыз нұсқа емді негіздемейді.
NLRP3 ингибиторы өмірді ұзартатыны көрсетілді ме?
Жоқ. Тікелей NLRP3 тежегіштерінің қолда бар адам зерттеулері шағын әрі қысқа; қартаю немесе ұзақ өмір нәтижелерін сынаған жоқ.