Магний L-треонаты: ГЭБ, NMDA, синапстар және адам деректері — NutriFit
Магний L-треонаты: миға өтуі, синапс қызметі және клиникалық деректердің шектері
Магний L-треонатының ми магнийімен, NMDA-рецепторларымен және синапстық пластикалылықпен байланысы. Қосылыс химиясы, тосқауылдар арқылы тасымал, жануарлар мен адамдардағы жад зерттеулері, дозалау және қауіпсіздік дәлелдерді асыра көрсетпей қарастырылады.
Жүйке жүйесінде магнийді шатастыруы оңай екі қызмет атқарады. Жасушаларға АТФ, нуклеин қышқылдары және ферменттермен жұмыс істеу үшін магний қажет, сонымен бірге ол қозғыштықты физиологиялық тұрғыдан реттейді: мембраналық потенциал теріс болғанда Mg²⁺ ионы NMDA-рецепторының өзегін бөгейді. Сондықтан қандағы концентрацияны бір рет өлшеу магний қоспасының жадқа ықпал етуі мүмкін бе деген сұраққа жауап бермейді. Мидағы қолжетімді магнийдің өзгеретін-өзгермейтінін, оның синапстарға қалай әсер ететінін және тәжірибе нәтижелерін адамға қолдануға болатынын анықтау керек.
Магний L-треонатына жануарлардың миында магний ұзақ уақыт жоғарылаған тәжірибелерден кейін назар аударылды; бұл өзгерістер синапстық пластикалылықпен және оқу тапсырмаларын орындаумен қатар байқалды. Magtein® — осы тұздың коммерциялық шикізатына берілген сауда атауы; ол жеке нейромедиатордың атауы да, ерекше жеткізу жолының дәлелі де емес. Бұл мақалада кешеннің химиясы, тосқауылдар арқылы тасымалдануы, синапс қызметі және шағын клиникалық зерттеулердің шектеулері қарастырылады. Mg²⁺ биофизикасын, кеміргіштерде алынған нәтижелерді және адамдардағы әзірге шектеулі деректерді ажырату маңызды.
Капсуладағы молекуладан ми магнийіне дейін
L-треонаттың химиясы және лигандтың шығу тегі
Магний L-треонатын әдетте бір катион мен L-треонаттың екі анионынан құралған кешен ретінде сипаттайды: Mg(C4H7O5)2. Молярлық массасы шамамен 294,5 г/моль болғанда, идеалдандырылған сусыз қосылыстағы элементтік магнийдің үлесі 24,305/294,5≈8,25% болады. Нақты өнімде су мен қосымша заттар болуы мүмкін, сондықтан мөлшерді ұнтақтың жалпы массасымен емес, заттаңбадағы элементтік магний мөлшерімен есептеу керек. L-треон қышқылында екі хиралдық орталық бар; бастапқы материалда 2,3,4-тригидроксибутан қышқылының конфигурациясы (2R,3S) деп берілген. Карбоксил және көршілес гидроксил топтары Mg²⁺-пен координацияланып, ерігіштік пен диссоциация тепе-теңдігін өзгертуі мүмкін. Суда бос Mg²⁺ гидратталады: оның бірінші қабатында әдетте алты су молекуласы болады деп есептеледі. Бұл химиялық ерекшеліктер сіңу туралы сұрақтарды талқылауға көмектеседі, бірақ тұтас кешеннің гематоэнцефалдық бөгеттен (ГЭБ) өтетінін дәлелдемейді.
L-треонат аскорбин қышқылының ыдырауымен байланысты. Аскорбат дегидроаскорбатқа дейін тотығады; лактон сақинасының ашылуы 2,3-дикетогулонат түзеді, одан басқа өнімдермен бірге треонат та пайда болуы мүмкін. Сызбалық түрде бұл жол былай жазылады: L-аскорбат→дегидроаскорбат→2,3-дикето-L-гулонат→L-треонат. Аралық 2,3-дикетогулонат бірнеше бағытта ыдырай алады, соның ішінде оксалат түзіледі; жоғарыдағы теңдеу треонатқа қатысты тармақты ғана көрсетеді және көміртектің толық балансын бермейді. Бұл шығу тегі лигандтың биологиялық жүйелерде неге кездесетінін түсіндіреді, бірақ кез келген мөлшерде сөзсіз қауіпсіз екенін де, тұтас кешенге арналған арнайы тасымалдағыш бар екенін де дәлелдемейді. Аскорбаттың ыдырауының басқа тармақтары да бар; оны треонатқа апаратын жалғыз стехиометриялық жол ретінде көрсетуге болмайды.
Екі тосқауыл және механизм туралы ашық сұрақ
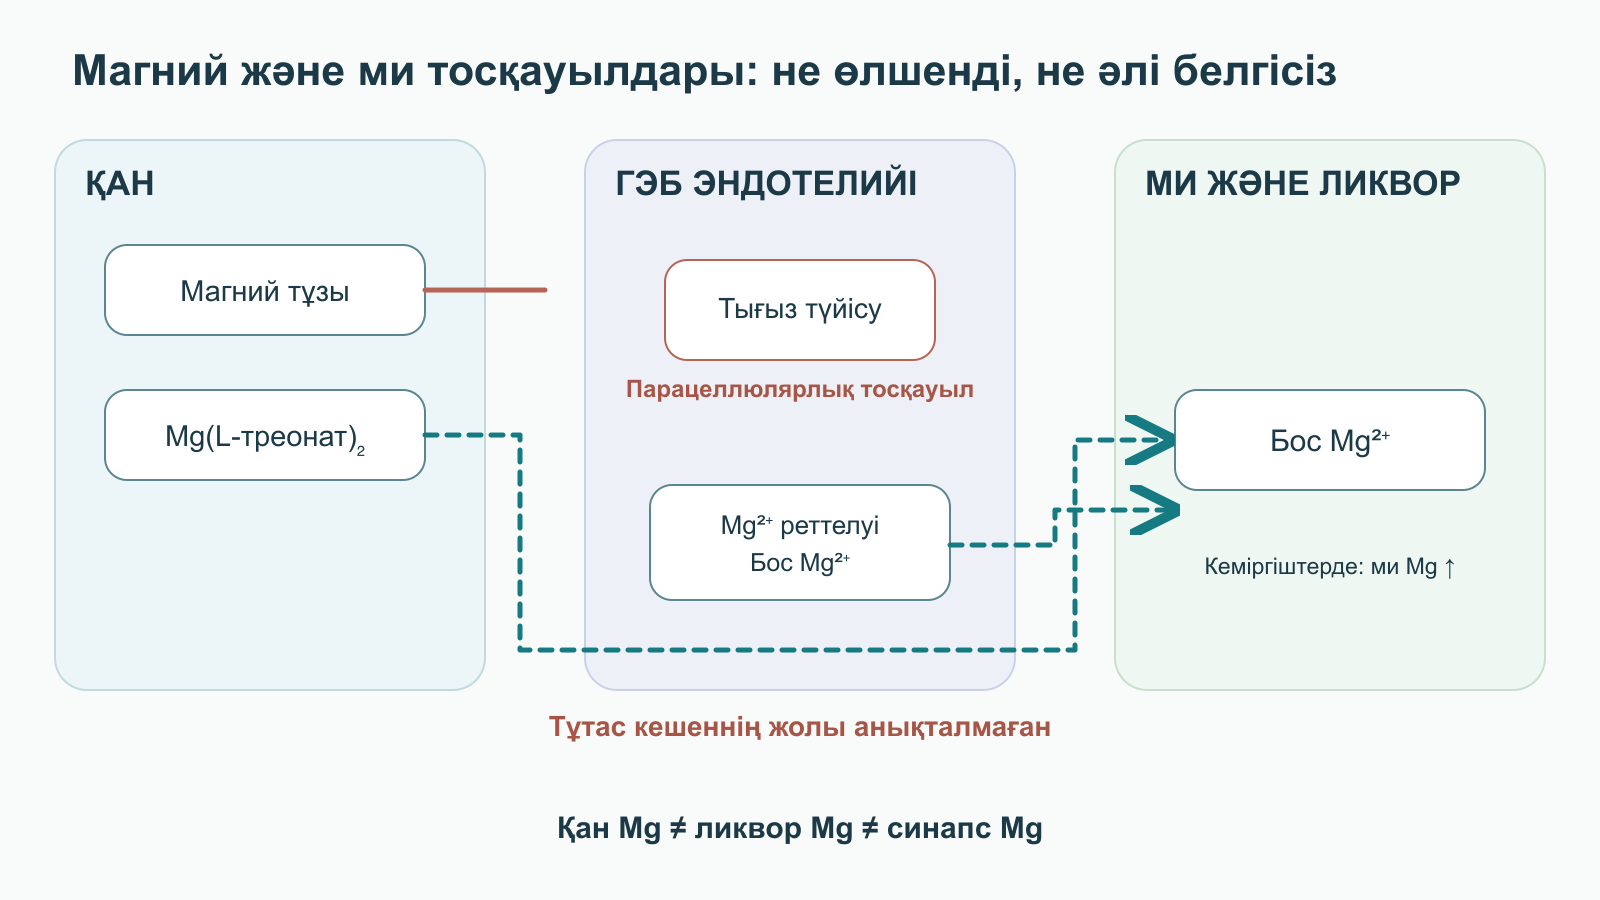
Ми қылтамырларының эндотелийі claudin-5, occludin және ZO ақуыздары қатысатын тығыз түйіспелер арқылы жалғасады; перициттер мен астроцит өсінділерімен бірге ол нейротамырлық бірлікті құрайды. Тығыз түйіспелер гидратталған иондардың жасушалар арасымен өтуін қатты шектейді. Екінші интерфейс — жұлын-ми сұйықтығының құрамын реттейтін тамырлы өрім. Сондықтан плазмадағы, жұлын-ми сұйықтығындағы және ми тініндегі Mg²⁺ концентрациялары — үш бөлек шама. Жұлын-ми сұйықтығында байқалған өзгеріс әр синапстағы бос магнийді өлшеумен тең емес.
Жасушадағы магний реттелуіне TRPM7 арна-киназасы, MagT1, SLC41A1 алмастырғышы және CNNM тобының ақуыздары, соның ішінде қарастырылып отырған CNNM2 мен CNNM4 қатысады. Иондардың ішке енуі мен шығарылуының өзін-өзі реттеуі плазмадағы Mg²⁺ едәуір артқанда жұлын-ми сұйықтығындағы деңгей неге міндетті түрде соған сай өспейтінін түсіндіреді. Бастапқы сызбада реттеуші үміткерлер ретінде CaSR және ARL15 те аталған. Олардың қызметі әртүрлі тіндер мен тәжірибелік жүйелерде зерттелген, алайда бұл деректер «MCT1 Mg(L-треонат)₂-ні ГЭБ арқылы өткізеді, содан кейін MagT1 оны миға босатады» деген дайын тізбекті дәлелдемейді. Қолда бар деректер тұтас кешен үшін мұндай жолды анықтамайды; MCT1 мен SMCT1-ді Mg-треонаттың расталған тасымалдағыштары деп сипаттауға болмайды. Сол сияқты CaSR, ARL15 немесе CNNM2 де мұнда тасымалдың анықталған сатылар тізбегін құрмайды. Негізгі зерттеу сұрағы — сіңгеннен кейін бос және байланысқан магнийдің қандай концентрациялары пайда болатыны және олардың орталық жүйке жүйесімен алмасуы қалай өзгеретіні. Ұсынылған «троян аты» механизмін негіздеу үшін қандағы және эндотелийдің екі жағындағы химиялық түрлерді өлшеу, тасымалдағышты анықтау, тасымалды бәсекелі түрде тежеу және ағын теңгерімін өлшеу керек. Жұлын-ми сұйықтығындағы жалпы Mg өзгерісінің өзі жеткіліксіз. Тамырлы өрімге бөлек назар аудару қажет: оның эпителийі жұлын-ми сұйықтығымен капилляр эндотелийінің интерстициялық кеңістікпен әрекеттесуінен өзгеше байланысады, сондықтан қосымша өлшеулерсіз осы екі интерфейстің нәтижелерін біріктіруге болмайды.
Slutsky және әріптестерінің тәжірибелерінде жануарлардың миында L-треонат арқылы магнийді көтеру жад пен синапстық пластикалылықтың бірнеше көрсеткішінің жақсаруымен қатар жүрді. Бұл осы түрді әрі қарай зерттеуге негіз береді, бірақ басқа қосылыстардың миға мүлде өтпейтінін дәлелдеуге негіз болмайды. Бастапқы салыстырмалы кестеде оксид, хлорид, цитрат және бисглицинат үшін биожетімділік пайыздары, күн сайынғы жұлын-ми сұйықтығындағы Mg²⁺ мәндері және морфометриялық әсерлер бір тікелей тәжірибеден алынғандай берілген. Ұсынылған жұмыстар мұндай толық әрі салыстыруға болатын матрицаны анықтамайды; клиникалық таңдауды пайыздың ондық үлесіне дейінгі дәлдікпен соған сүйеніп жасау қате болар еді.
Өлшенген деңгей
Нені анықтауға болады
Бұл көрсеткіш нені дәлелдемейді
Мөлшердегі элементтік магний
Өнімнен түсетін Mg²⁺ мөлшері
Оның қаншасы миға жететінін
Қан магнийі
Жүйелік күйді және қауіпсіздікке қатысты кейбір сұрақтарды
Синапстық саңылаудағы концентрацияны
Жұлын-ми сұйықтығындағы магний
Орталық компартменттердің біріндегі өзгерісті
Мидың барлық бөліктеріндегі біркелкі өзгерісті
Синапстық маркерлер мен кеміргіштердің мінез-құлқы
Модельдегі экспозиция мен биологиялық жауаптың байланысын
Адамда жадтың клиникалық жақсаруын
Синапс құрылымы өзгерген кезде
Гиппокамп пен маңдайалды қыртыс
Гиппокамп біртекті «жад орталығы» емес. Кіріс сигналдары тісті қатпар мен CA3 және CA1 өрістері арқылы өтеді; бұл желілер ұқсас оқиғаларды ажыратуға, тәжірибенің элементтерін байланыстыруға және кейінгі консолидацияға қатысады. Медиалды маңдайалды қыртыс ақпаратты белсенді түрде ұстап тұруды, әрекетті таңдауды және эмоциялық жауапты бақылауды қолдайды. Магнийге қатысты тәжірибелерде бұл аймақтар пластикалылықты бағалайтын маңызды орындар болып табылады, бірақ адамдарда қоспаның іріктеп жиналатын жері екені дәлелденбеген. Басқа аймақта өлшенетін әсер болмауы сол әсер онда мүлде жоқ екенін де дәлелдемейді.
Пресинапстық қор және постсинапстық қаңқа
Синаптофизин — синапстық везикулалар мембранасының ақуызы, сондықтан оны бояу пресинапстық ұштарды бағалауға көмектеседі. DLG4 генімен кодталатын PSD-95 постсинапстық тығыздықтың ақуыздық қаңқасын ұйымдастырып, сигналдық кешендерді AMPA және NMDA рецепторларының жанында ұстайды. Жануарларға жасалған зерттеулерде ми магнийінің көтерілуі осы маркерлердің және функционалдық түйіспелер санының өзгерістерімен салыстырылды. Алайда боялу қарқындылығының артуы жаңа жетілген синапстардың белгілі бір пайызға көбейгенін білдірмейді, ал саңырауқұлақ тәрізді тікенектің пішіні мінез-құлық жақсаратынына кепіл емес. Бастапқы мәтінде айтылған синаптофизиннің 36–44% және PSD-95-тің 32–41% әмбебап өсу диапазондарын барлық аймақтарға, мерзімдерге және дозаларға қолдануға болмайды.
Бастапқы тәжірибелерде морфометрия, иммундық таңбалау және электрофизиологиялық жауаптар қолданылған; бұл әдістер әртүрлі сұрақтарға жауап береді. Синаптофизинге оң нүкте везикулалық мембрананың барын білдіруі мүмкін, PSD-95 постсинапстық тығыздықтың ұйымдасуын көрсетуі мүмкін, ал жұптасқан функционалдық синапс үшін пре- және постсинапстық құрылымдар келісімді орналасып, ток қайта өндірілуі керек. Сондықтан екі маркердің де көбеюі нейрондық популяция өлшемі мен тін көлемін ескеріп, жұмыс істейтін түйіспелерді санауды алмастырмайды.
Пресинапстық везикулалар әртүрлі функционалдық күйде болады. Резервтік пул цитоскелетпен байланысқан, қайта айналым пулы қайталанатын экзоцитоз циклдеріне қатысады, ал жылдам босап шығуға дайын пулға (readily releasable pool, RRP) түйіскен әрі тез бөлінуге дайындалған везикулалар кіреді. Са²⁺ ұшқа кіргенде, везикулалық VAMP2/синаптобревин қатысатын SNARE кешені мембраналардың қосылуын және глутаматтың босап шығуын қамтамасыз етеді. Бастапқы деректе келтірілген шамамен бөлініс — резервтік пул 80–90%, қайта айналым пулы 10–15%, дереу босайтын пул 1–2% — синапс түрі мен өлшеу әдісіне тәуелді: бұл адам миындағы тұрақты үлестер емес, шаманы түсіндіретін мысал. Модельдік зерттеулерде қолжетімді пулдың ұлғаюы мен босап шығу ықтималдығының өзгеруін фондық шуды төмен ұстап, импульстер қатарына жауапты күшейтудің ықтимал жолы ретінде қарастырады. RRP көлемін әдетте стимулдар тізбегімен немесе гипертониялық сахарозамен бағалап, босап шыққан жалпы зарядтан босап шығу ықтималдығы мен қайта айналымды ескере отырып есептейді. Бастапқы деректе аталған шамамен 40 Гц стимуляция жоғары жиіліктегі берілісті сынауға мүмкіндік береді, бірақ нәтиже хаттамаға тәуелді және тірі адам миындағы везикулалар санын өлшеумен тең емес. Бұл гипотезаны белгілі бір капсуланы қабылдау адамның RRP мөлшерін тұрақты пайызға арттырады деген тұжырымға айналдыруға болмайды.
Пресинапс пен тікенек арасындағы байланысты кері байланысы бар тізбек ретінде қарастырған дұрыс: везикула глутамат бөледі, AMPA рецепторы потенциалды өзгертеді, жағдайлар сәйкес келгенде NMDA рецепторы Ca²⁺ өткізеді, ал жасушаішілік сигнал беру PSD-95 ұйымдасуы мен рецепторлардың қолжетімділігін өзгертеді. Осы тізбек морфологияны, электрофизиологияны және мінез-құлықты бөлек өлшеу керегін түсіндіреді. Ол жадты бір ақуызға немесе тікенектің бір түріне де сыйғызбайды.
Магний «тығыны» және пластикалылық терезесі
NMDA-рецепторы сигналдардың сәйкестігін қалай таниды
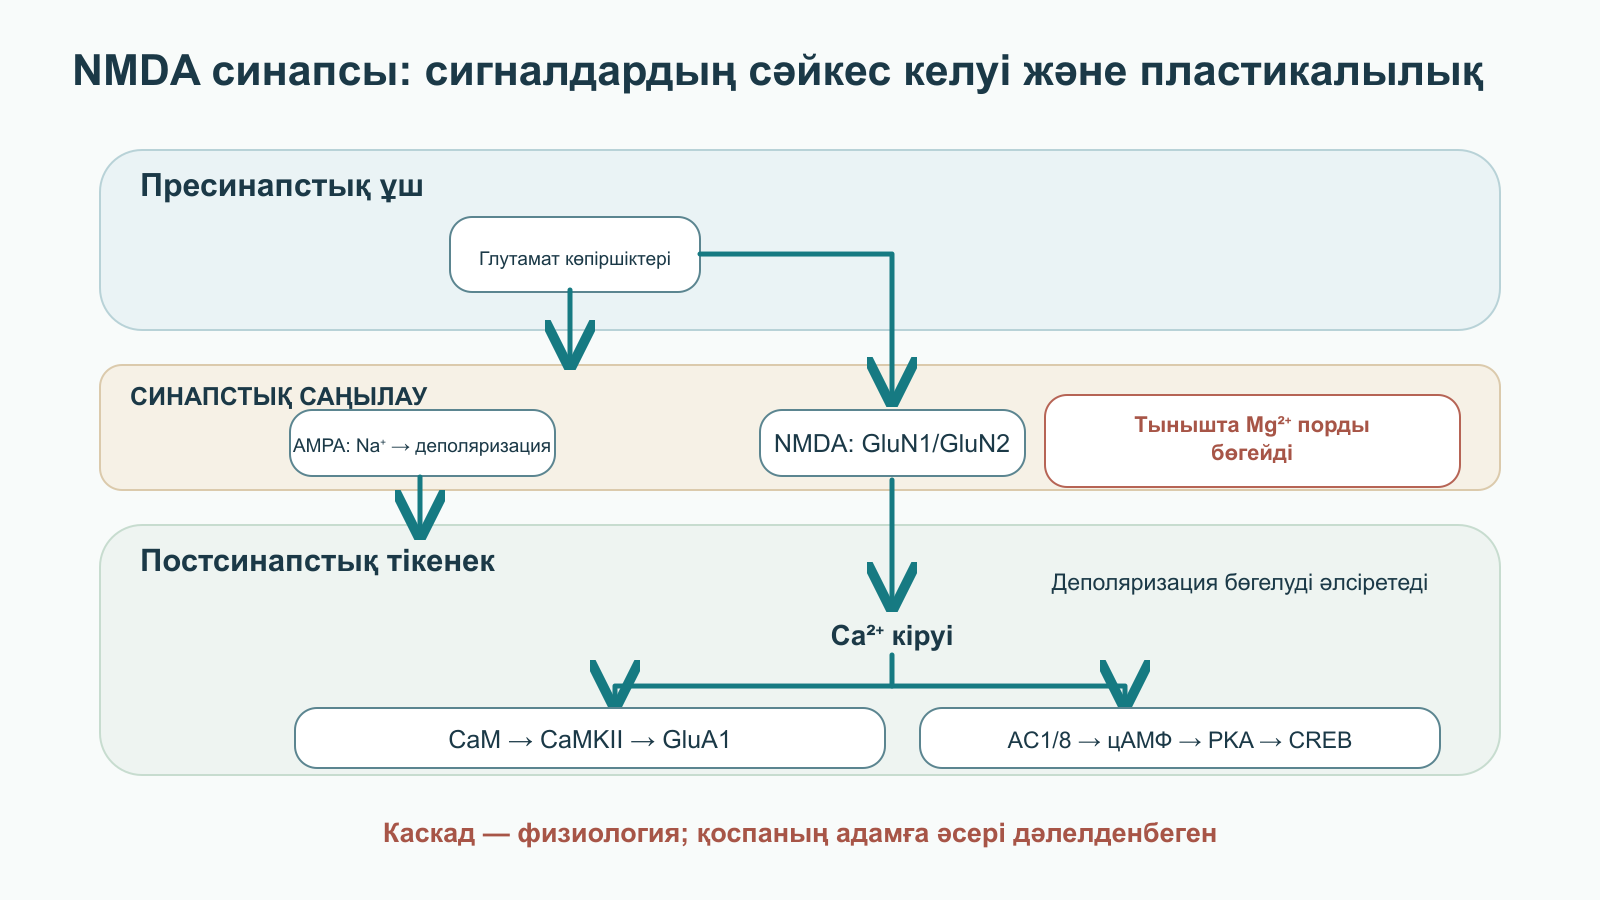
NMDA-рецепторы — гетеротетрамерлік иондық арна. Белсенуі үшін глутамат GluN2-ге, ал глицин немесе D-серин GluN1-ге байланысуы керек, бірақ мембраналық потенциал теріс болғанда арна арқылы өтетін токты Mg²⁺ шектейді. Кеуектің M2 бөлігіндегі сақталған аспарагин қалдықтары, көбіне N-site деп аталатын аймақ (бастапқы деректе Asn598 деп көрсетілген), кернеуге тәуелді бөгелуге қатысады; Nowak пен Mayer жүргізген классикалық тәжірибелер бұл тәуелділікті L-треонат қоспа ретінде пайда болғанға дейін-ақ көрсеткен. «Магний тығыны» деген атау — ыңғайлы теңеу, бірақ ол рецептор әр тыныштық потенциалында герметикалық жабылады немесе кальций тогы әрдайым нөлге тең дегенді білдірмейді.
Көршілес AMPA-рецепторлары Na⁺ өткізгенде мембрана деполяризацияланады, Mg²⁺ бөгетінің ықтималдығы азаяды, ал белсенген NMDA арнасы арқылы Ca²⁺ кіруі мүмкін. Бұл ион синапстық байланыстың күшін өзгерте алатын жасушаішілік сигналға айналады. «Сәйкестік детекторы» деген ұғым пресинапстық бөлініс пен постсинапстық деполяризацияның бірге болуын білдіреді. Электрофизиологияда бөгелу белгіленген сыртқы Mg²⁺ және агонист концентрацияларындағы ток–кернеу қисығымен сипатталады. Тәжірибеде Mg²⁺ өзгертілсе, мембрананың күйін, глицин не D-сериннің қолжетімділігін және әртүрлі суббірліктердің үлесін де ескеру керек; әйтпесе токтың өзгерісін тек «тығынға» телуге болмайды. Бұл механизм кальцийдің кіруін барынша арттыруға арналмаған: кальций сигналы тым ұзаққа созылса немесе орынсыз жерде пайда болса, жасушаны зақымдауы мүмкін, ал физиологиялық жауап уақытқа, орынға және белсенділік мәнмәтініне тәуелді.
Осыдан қолжетімді Mg²⁺ деңгейін өзгерту сигнал мен фон арақатынасын баптауы мүмкін деген гипотеза туындады. Мұны глутаматтың өздігінен бөлінуін міндетті түрде толық басады немесе кез келген эксайтотоксикалық әсерден қорғайды деп түсіндіруге болмайды. Кальций реттелуінің бұзылуы митохондриялық стресс туғызып, өткізгіштік ауысу порасының ашылуына және каспазалардың белсенуіне әкелсе, бұл — бөлек патологиялық жол, L-треонаттың клиникалық дәлелденген әсері емес. Рецепторлардың тікелей агонистері, ампакиндер мен рацетамдар да ортақ әрі бірдей қауіпі анықталған бір салыстыру тобын құрмайды: бастапқы мақала оларды магнийге тым үзілді-кесілді қарсы қойған.
GluN2A, GluN2B және LTP каскады
GluN2A мен GluN2B суббірліктері кинетикасы, реттелуі және дамып келе жатқан және жетілген мидағы таралуы бойынша ерекшеленеді. GluN2B бар рецепторлар көбіне баяуырақ деактивацияланады, сондықтан сигналды біріктіретін уақыт аралығы ұзағырақ болуы мүмкін. Бірақ оларды жай ғана «жасөспірімдік тип», ал GluN2A-ны жалғыз «ересек тип» деп атауға болмайды: екі суббірлік те күрделі құрамдарда қатар кездеседі. Бастапқы материалдағы 30–50 және 200–400 мс мәндері тәжірибеге тәуелді кинетиканың мысалы ғана; олар in vivo арналардың әмбебап ашылу ұзақтығы емес.
Жануар модельдерінде мидағы магнийдің көтерілуін GluN2B экспрессиясы мен қызметімен қатар зерттеген. Tang және әріптестерінің Grin2b генін генетикалық жолмен артық экспрессиялау туралы жұмысы бұл суббірліктің тышқандарды оқытудағы маңызын көрсетеді, бірақ генетикалық модель тағамдық қоспа қабылдаумен бірдей емес. Сондықтан L-треонат «Дуги тышқандарын» қайталайды немесе адамдарда GluN2B-ны 60–80%-ға арттырады деген тұжырым негізсіз. Онда әртүрлі араласулар, тіндер және соңғы көрсеткіштер біріктірілген.
Ca²⁺ кіргеннен кейін кальмодулин CaMKII-ді белсендіреді. CaMKIIα-ның Thr286 бойынша автофосфорлануы қысқа сигналдан кейін фермент белсенділігін сақтайды; GluA1-дің Ser831 бойынша фосфорлануы және AMPA-рецепторларының орналасуының өзгеруі берілісті күшейтуі мүмкін. Сонымен қатар кальцийге сезімтал AC1/AC8 аденилатциклазалары цАМФ-ты арттырады, ал PKA мен CREB ген экспрессиясының ұзақ мерзімді өзгерістеріне қатысады; бұл үдерістерге BDNF және c-Fos пен Egr1/Zif268 сияқты ерте жауап ақуыздары да кіреді. CREB-тің Ser133 бойынша фосфорлануы осы жолдағы жиі өлшенетін түйіндердің бірі, бірақ ол магний әсерінің бірегей белгісі емес. Ca2+/CaM→CaMKII→GluA1 тізбегі және Ca2+→AC1/8→cAMP→PKA→CREB тармағы пластикалылықтың жалпы физиологиясын сипаттайды; адамдарда L-треонат қабылдағаннан кейін осы буындардың барлығы бір уақытта белсенетіні көрсетілмеген.
Ұзақ мерзімді потенциация (LTP) — белгілі бір стимуляция үлгісінен кейін жауаптың тұрақты күшеюі; ұзақ мерзімді депрессия (LTD) — байланыстың тұрақты әлсіреуі. LTD «ескі естеліктерді өшіру» ғана емес: ол желіні дәл баптауға қатысады және, соның ішінде, кальциневрин тәрізді фосфатазаларға тәуелді. Гиппокамп кесінділері бұл үдерістерді бақыланатын жағдайда салыстыруға мүмкіндік береді, бірақ LTP амплитудасының көбеюін адамның жадының «жасаруына» тікелей айналдыруға болмайды. LTP-ның кеш фазасына транскрипция, ақуыз синтезі және тікенектің тұрақтануы қажет, ал индукция нақты уақыттық үлгіге, мысалы theta-burst stimulation-ға тәуелді. Әртүрлі амплитуда мен ұзақтықтағы кальций сигналдары киназалар мен фосфатазалар тепе-теңдігін өзгерте алады, сондықтан магнийдің артуы пластикалылықтың барлық түрін міндетті түрде күшейтпейді. Бастапқы мәтінде хаттама дәл көрсетілмей берілген LTP-ның 40–60% күшеюі жалпы клиникалық факт емес.
Адамдардағы сынақтар нақты нені айтуға мүмкіндік береді
MMFS-01: құрамы, мерзімі және өлшенген нәтижелері
Liu және әріптестері жүргізген қос соқыр рандомизацияланған зерттеуге когнитивтік қабілеті төмендеді деп шағымданған орта және егде жастағы 44 адам қатысты. Он екі апта бойы MMFS-01 мен плацебо когнитивтік тапсырмалар жиынтығы арқылы салыстырылды. Бастапқы хаттама сипаттамасында тәулігіне 1,5–2,0 г препарат, дене салмағына қарай 70 кг шегі және алтыншы мен он екінші аптадағы өлшеулер берілген. MMFS-01 магний L-треонатына негізделген препарат ретінде сипатталған; қосымша талдаусыз комбинация нәтижесін бір компонентке ғана телуге болмайды. Шағын іріктеме, зерттеу ұзақтығы және қатысушыларды іріктеу ерекшеліктері нәтижені деменцияның алдын алуға, Альцгеймер ауруына немесе дені сау жастарға қолдануды шектейді.
Авторлар плацебомен салыстырғанда кейбір жиынтық көрсеткіштердің жақсарғанын хабарлады. Бастапқы мәтінде TMT-B уақытының 22,4%-ға қысқаруы, жиынтық Z-балдың +0,66-ға дейін өсуі және «тоғыз жылға жасару» бөлек көрсетілген. Соңғы мән — тест нәтижелерін жас нормаларының қисығына қайта есептеу, биологиялық қартаюдың кері қайтуы емес. Сол түсіндіруде плацебомен салыстырғандағы шамамен 7,3 нормативтік жыл айырмасы да айтылады: бұл тесттерден алынған туынды шкала, нейрондардың қалпына келуінің клиникалық өлшемі емес. Нақты шамалар таңдалған талдауға байланысты; оларды 2 г тұздың кепілді әсері немесе ми құрылымының өзгерісі ретінде ұсынуға болмайды. Атқарушы функциялар мен жұмыс жадын өлшейтін жеке тапсырмаларды ең әсерлі нәтижені бөліп алмай, барлық соңғы көрсеткіштермен және сенімділік интервалдарымен бірге оқу қажет. Мысалы, Trail Making Test-тің B бөлігі кезектесетін реттіліктерді жалғау жылдамдығын өлшейді, бірақ орындау уақытына көру, қимыл-қозғалыс және рәсімге үйрену де ықпал етеді. Қайта тестілеуде жаттығу әсерін бақылау керек; жиынтық көрсеткіш қандай тесттер қосылғанына және олардың қалай салмақталғанына тәуелді. Бастапқы «22,4%-ға жылдамырақ» деген түсіндіру синапстық тығыздықтың өзгергенін өздігінен дәлелдемейді.
Кейінірек Magtein® негізіндегі формуланы дені сау ересектерде зерттеу адамдарға қатысты деректерді де кеңейтеді, бірақ онда нақты көпкомпонентті формула мен жеке тесттер қолданылған. Мұндай зерттеулер гипотезаны әрі қарай тексеруді қолдайды, алайда жеңіл когнитивтік бұзылысты емдеуге клиникалық көрсетілім орнатпайды. Ғылыми тұрғыдан түсіндіргенде қосылыстың мөлшері мен Mg²⁺ мөлшерін ажырату, басқа ингредиенттерді ескеру және соңғы көрсеткіштің алдын ала негізгі көрсеткіш ретінде белгіленген-белгіленбегенін анықтау маңызды.
Дерек деңгейі
Не байқалды
Негізгі шектеуі
Жасушалар мен тін кесінділері
Рецептор токтары, маркерлер, LTP/LTD
Тұтас ағзаны және күнделікті жадты қайталамайды
Кеміргіштер
Мінез-құлық, ми магнийі, синапс құрылымы
Доза, түр және тапсырмалар клиникалық жағдайдан өзгеше
Адамдардағы шағын сынақтар
Бірнеше аптадағы жеке когнитивтік тесттер
Деменцияның алдын алуды немесе синапстардың тұрақты өзгеруін растамайды
Қорқыныштың бәсеңдеуі мен ұйқы — дәлелдердің екі бөлек бағыты
Қорқыныштың бәсеңдеуі — бұрын қауіп туралы хабарлаған белгі енді қауіпті білдірмейтінін үйрену; бастапқы естелік міндетті түрде жойылмайды. Abumaria және әріптестерінің жануарлардағы жұмысында ми магнийінің жоғарылауы инфралимбиялық маңдайалды қыртыс пен латералды миндалина пластикалылығымен бірге зерттелген. Маңдайалды қыртыстың миндалинаның тежегіш кірістіруші жасушаларымен байланысы нейрондық желі үшін ықтимал негіз ұсынады. Қорқыныштың бәсеңдеуі медиалды маңдайалды қыртыстың инфралимбиялық және прелимбиялық аймақтарының, латералды миндалинаның және тежегіш кірістіруші нейрондардың өзара әрекетіне тәуелді; бір жерде пластикалылықты тіркеу тұтас желіні қамтымайды. Жануарлардағы шартты қорқыныш мінез-құлқы қайта бастан кешіру, қашқақтау және ұйқы өзгерістері болуы мүмкін күрделі клиникалық ПТСР-мен тең емес. Сондықтан бұл деректер адамдарда ПТСР не жайылған мазасыздықты емдеудің сынағы емес, қоспа патологиялық қорқынышты «сөндіреді» деп уәде беруге болмайды.
Ұйқы жадты бекіту үшін маңызды: N3 сатысы шамамен 0,5–4 Гц баяу кортикалық тербелістермен және басқа ырғақтармен үйлесуімен сипатталады. Магний нейрон қозғыштығына қатысады, бірақ берілген клиникалық деректер L-треонаттың GABAₐ-рецепторының белгілі бір орнына тікелей аллостериялық әсерін, таламустың міндетті түрде гиперполяризациялануын, АКТГ мен кортизолдың тежелуін немесе кешкі дозадан кейін N3-тің 15–20%-ға өсуін анықтамайды. Егде жастағы адамдардағы бастапқы ұйқысыздыққа кәдімгі магнийді зерттеу басқа тұзды қарастырды және Magtein® үшін дәл сондай әсерді дәлелдемейді. Түнгі гипоталамус–гипофиз–бүйрекүсті безі осінің белсенділігі, АКТГ мен кортизол төмендейді деген болжам осы нақты араласуға қатысты гипотеза күйінде қалады. Полисомнография N1, N2, N3 және REM сатыларын ЭЭГ және басқа сигналдар арқылы ажыратады; «тереңірек ұйықтадым» деген субъективті әсер N3 үлесін өлшеуді алмастырмайды. Бір саты пайызының өлшенген өзгерісін де ұйқының жалпы ұзақтығымен, ояну жиілігімен және күндізгі функциямен бірге қарастыру керек. Адам ұйқысында өзгеріс байқаса, оны «таңертең мең-зең болмай, дельта ұйқысы» деген жарнамалық уәдеден бөлек бағалау қажет.
Доза, біріктіріп қабылдау және қауіпсіздік шектері
Бір грамм тұздағы магний мөлшері
Сусыз формула бойынша есептегенде, 1000 мг L-треонатқа шамамен 82,5 мг элементтік Mg²⁺ келеді. Бұл шаманы ретімен бағалауға көмектеседі, алайда өндіруші бір үлестегі элементтік магнийдің нақты мөлшерін көрсетуі керек. Тұздың массасы мен катион массасы шамамен он екі есе ерекшеленеді. Төмендегі сандар — арифметикалық бағдар ғана; дене салмағына немесе когнитивтік шағымдардың дәрежесіне қарай тағайындалатын ем сатысы емес.
Магний L-треонатының массасы
Теориялық 8,25% үлестегі Mg²⁺
Мәнді қалай түсіндіру керек
1000 мг
шамамен 83 мг
Өнімнің нақты заттаңбасын тексеру
1500 мг
шамамен 124 мг
1500 мг-ды элементтік магний деп есептемеу
2000 мг
шамамен 165 мг
Жалпы тәуліктік мөлшермен салыстыру
2500 мг
шамамен 206 мг
Бір кестеге сүйеніп «жүктеме» хаттамасы ретінде тағайындамау
Бастапқы мәтінде 1500–2000 мг әртүрлі салмақ санаттарына арналған стандарт, ал 2500 мг ми жарақатынан кейінгі қысқа мерзімді режим ретінде аталған. Бұл — бекітілген әмбебап емдеу сызбалары емес. Зерттеуде ұқсас доза қолданылғанның өзінде оны бүйрек ауруы бар, рационында магнийдің басқа түрі бар немесе қатар дәрі қабылдайтын адамға автоматты түрде қолдануға болмайды. Расталған тапшылықты түзетуде «миға арналған» тұзды уәде етілген артықшылығы үшін таңдағаннан гөрі тапшылық себебін, жалпы түсуін және қауіпсіздігін бағалау маңызды.
Қабылдау уақыты және «нейронутрицевтикалық қоспалар»
Дозаны таңертең және кешке бөліп қабылдау тәсілі кездеседі; ол көтерімділік пен режимді сақтауға ыңғайлы болуы мүмкін. Қолда бар деректер таңертеңгі үлеске GluN2B-ның жоғары реттелуін, ал кешкі үлеске N3-тің міндетті түрде көбеюін телуге жеткіліксіз. Ұйқыға 60–90 минут қалғанда қабылдау немесе күндіз 500–1000 мг, кешке 1000 мг етіп бөлу — белгілі өнімнің тәжірибесінде сипатталған тәртіп, дәлелденген хронофармакологиялық заң емес. Ұйқы немесе зейін бұзылса, алдымен оның себептері мен қатар қабылданатын дәрілерді бағалау керек.
Бастапқы мәтіндегі бірінші ұсынылған жиынтыққа L-треонат, фосфатидилсерин, DHA және уридин-5′-монофосфат кірді. Бұл заттардың биологиялық рөлдері бөлек: фосфатидилсерин — мембраналық фосфолипид, DHA — полиқанықпаған май қышқылы, ал уридин пиримидин нуклеотидтері мен фосфолипидтердің синтезіне қатысады. Оларды фосфатидилсерин 200–300 мг, DHA 1000–1500 мг және уридин 250–500 мг дозаларында бірге қабылдау нейроинфекциядан кейін синапстарды қалпына келтіреді деуге бұл жеткіліксіз. Әр компонентті, өнім сапасын және ықтимал өзара әсерлерді жеке бағалау қажет; қоспаны бір ингредиенттің механизмі арқылы бағалауға болмайды.
Екінші жиынтық ұйқы үшін L-треонатты апигенинмен және L-теанинмен біріктірді. Апигенин рецепторлық және ферменттік жүйелерде, соның ішінде GABAₐ пен CD38 аясында зерттеледі, ал теанин субъективті стресс және электрофизиологиялық көрсеткіштер тұрғысынан қарастырылады. Бұл бөлек бағыттар комбинацияның таламокортикалық желіге, 8–12 Гц альфа-ырғағына немесе нақты адамның ұйқысыздығына әсер ететінін дәлелдемейді. Ұсынылған 50 мг апигенин мен 200–400 мг теанин мөлшері мұнда дәлелденген хаттама емес. Ұйықтататын немесе психотроптық дәрілердің үстіне бірнеше затты толық тізімді талдамай өз бетінше қосу әсіресе орынсыз.
Асқазан-ішек әсерлері және ерекше жағдайлар
Сіңбеген магний ішек саңылауында суды ұстап қалады, сондықтан кейбір тұздардың үлкен дозалары нәжісті сұйылтып, түйілу мен диарея туғызуы мүмкін. Қауіп ерігіштікке, бос Mg²⁺ мөлшеріне, дозаға және адамның ерекшеліктеріне байланысты; сіңбеген магнийдің әр грамына судың нақты 400 мл көлемін телуге болмайды. Бастапқы мәтінде тұтас хелаттың пассив диффузиясы және проксималды ішекте органикалық қышқыл тасымалдаушы ақуыздар арқылы өтуі ұсынылған. Адамда сіңудің негізгі дәлелденген механизмі дәл осы ретпен жүреді деуге деректер жеткіліксіз. L-треонат та асқазан-ішек шағымдарын туғызуы мүмкін. Шағын рандомизацияланған сынақ диспепсияның әмбебап жиілігі «2%-дан төмен» екенін дәлелдемейді әрі диарея болмайды деп уәде беруге құқық бермейді.
Бүйрек қызметі төмендесе, магнийдің шығарылуы бұзылады, сондықтан қоспа да гипермагниемия қаупін арттыруы мүмкін. Басқа клиникалық мақсаттарда MgSO₄ немесе MgCl₂-ні көктамыр ішіне енгізуді магнийді ауыз арқылы қабылдап мида арттыруды қолдайтын дәлел ретінде қолдануға болмайды: енгізу жолы, плазмалық концентрацияның өсу жылдамдығы және қауіптері бөлек. Жоғары дозалар орталық әсер бермей-ақ тамырларды кеңейтіп, әлсіздік және сіңір рефлекстерінің төмендеуін туғызуы мүмкін. Әлсіздік, рефлекстердің төмендеуі және жүрек ырғағының бұзылуы медициналық бағалауды қажет етеді, әсіресе магний бар бірнеше препарат не антацид қатар қолданылса. Магний кейбір дәрілермен бір уақытта қабылданғанда олардың сіңуін азайтуы мүмкін; бұған кейбір антибиотиктер мен қалқанша безге арналған дәрілер жатады. Қабылдау аралығы мен қоспаның қажеттілігін нақты дәріге қарай анықтайды. Жүктілік және бала емізу кезінде, балаларда немесе ми жарақатынан кейін когнитивтік мақсатпен L-треонат тағайындауға деректер жеткіліксіз.
Жалған иерархиясыз түрлерді салыстыру
Тұздарды салыстырудың мәні нақты сұраққа байланысты: тапшылықты толықтыру керек пе, ішек көтерімділігін өзгерту керек пе, әлде когнитивтік нәтиже туралы зерттеу гипотезасын тексеру керек пе? Ерігіштік пен элементтік магний мөлшері ұйқысыздыққа не деменцияға қарсы тиімділікпен бірдей емес. Бастапқы матрица әр қосылысқа жеке нысана тін берген: малатқа — бұлшықет, тауратқа — жүрек, цитратқа — ішек, L-треонатқа — гиппокамп. Мұндай айрықша нысаналануы дәлелденбеген: диссоциациядан кейін ортақ ион көптеген жүйелерге қатысады, ал лигандтар мен өнімдердің айырмашылығын тікелей салыстыру қажет.
Түрі
Іс жүзінде маңызды ерекшелігі
Әзірге нені тұжырымдауға болмайды
L-треонат
Элементтік Mg²⁺ үлесі аз; жануарлардағы пластикалылық зерттеулері және шағын когнитивтік сынақтар желісі бар
ПТСР, ұйқысыздық не деменцияны дәлелденген емдеу; ГЭБ арқылы ерекше тасымал
Бисглицинат
Кейбір адамдар жақсырақ көтеретін хелат
«Шеткері» таңдаулы әсерге немесе ерекше тыныштандыруға кепілдік
Малат
Органикалық анионы бар магний көзі
Кребс цикліне нысаналы жеткізу арқылы төзімділік артатынының дәлелі
Таурат
Тауратпен қосылған магний көзі
Бүкіл тұздың қасиеті ретінде расталған аритмияға қарсы көрсетілім
Цитрат
Ерігіш түр; үлкен дозалары іш жүргізуі мүмкін
Орталық әсерлердің мүлде болмауы
Оксид
Ерігіштігі басқа, Mg массалық үлесі жоғары; антацид ретінде де пайдаланылады
Сіңбеуі немесе әр адамда міндетті түрде «аса ауыр» диарея туғызуы
Мамандар үшін қорытынды — өлшеу тәртібін сақтау: тұзды элементтік магнийден, жұлын-ми сұйықтығын синапстан, молекулалық механизмді клиникалық соңғы көрсеткіштен ажырату. Оқырман үшін қарапайым ереже: қоспаның түрі жад, мазасыздық немесе ұйқы нашарлауының себебін анықтауды алмастырмайды. Магний L-треонаты нейробиологияның қызықты нысаны және алдағы клиникалық сынақтардың ықтимал тақырыбы болып қала береді. Әзірге оның ғылыми тарихы «миды жасартатын» дайын әмбебап хаттамадан гөрі, синапстық пластикалылық туралы тексеруге болатын гипотеза ретінде әлдеқайда нанымды.
Бұл шолу қалай дайындалды
Бұл — магний L-треонатының химиясы, магний тасымалы және синапстық физиология жөніндегі баяндау шолуы. Ол бұрын жиналған 20 жарияланымды қамтитын әдебиеттер топтамасына сүйенеді. Редакциялық жұмыс 2026 жылғы 4 қазанда аяқталды; алдын ала белгіленген хаттама бойынша жүйелі іздеу, мета-талдау және әр жұмыстың ығысу қаупін ресми бағалау жүргізілген жоқ. Сондықтан дереккөздер тізімін толық деп санауға болмайды.
Химиялық, жасушалық, жануарларға қатысты және клиникалық зерттеулердің нәтижелері бөлек қарастырылады. Тиімділік туралы қорытындылар зерттелген популяциялармен, араласу түрлерімен және соңғы көрсеткіштермен шектеледі. Жұлын-ми сұйықтығындағы немесе ми тініндегі магний өзгерісі сарысудағы өзгеріске тең емес, ал жануарларда байқалған нәтиже клиникалық әсерді растамайды. Формулалар мен сызбалар механизмдерді түсіндіреді; олардың болуы қоспаның тиімділігін немесе тұтас кешеннің гематоэнцефалдық бөгет арқылы тасымалдануын дәлелдемейді.
Жиі қойылатын сұрақтар
Magtein гематоэнцефалдық бөгеттен өте ме?
Жануарлардағы тәжірибелерде ми магнийін арттыру үшін L-треонат қолданылды. Алайда тұтас кешеннің ГЭБ-тегі нақты тасымалдағыш арқылы өтетін анықталған жолы белгісіз; қан, жұлын-ми сұйықтығы және синапс магнийінің деңгейлерін бірдей деп қарауға болмайды.
Адамдарда жадты жақсартатыны дәлелденген бе?
Шағын сынақтар кейбір когнитивтік көрсеткіштер бойынша жағымды нәтижелер хабарлады. Олар деменцияны емдеуді, ми қартаюын кері қайтаруды немесе құрамында L-треонат бар кез келген өнімнің бірдей әсерін дәлелдемейді.
NMDA-рецепторында магний не істейді?
Мембрана потенциалы теріс болғанда Mg²⁺ белсенген арнадағы токты шектейді. Деполяризация бөгелуді әлсіретіп, пластикалылыққа қатысуы мүмкін кальций сигналын өткізуге мүмкіндік береді. Бұл рецептор физиологиясы, капсуланың тиімділігінің дәлелі емес.
2000 мг L-треонатта қанша элементтік магний бар?
8,25% магний үлесі бар сусыз формула үшін теориялық мөлшері шамамен 165 мг. Нақты мөлшері өнімге байланысты және заттаңбада көрсетіледі.
Оны ұйқыға немесе ПТСР кезінде қабылдауға бола ма?
Берілген деректер L-треонатты ұйқысыздықты немесе ПТСР-ды емдеу құралы ретінде қолдамайды. Қорқыныштың бәсеңдеуі жануарларда зерттелген, ал осы түрдің ұйқы құрылымына әсері жөніндегі деректер шектеулі.
Қоспаны қашан медицина маманымен талқылаған жөн?
Бүйрек ауруы, магнийі бар бірнеше өнімді қабылдау, жүктілік, бала емізу, ықтимал өзара әсері бар дәрілер немесе жад пен ұйқыға қатысты тұрақты шағымдар болса, жеке бағалау қажет.