Гуперзин A: ацетилхолинэстераза және нейропротекция шегі
AChE қайтымды тежелуі, фармакокинетика, NMDA, митохондрия, Nrf2 және APP талдауы. Деменция сынақтары жасуша мен жануар деректерінен бөлінген; қауіп, әрекеттесу және жад шағымын бағалау түсіндіріледі.
Гуперзин A — ацетилхолинэстеразаны қайтымды тежейтін, фармакологиялық белсенді алкалоид. Бұл механизм оның адам миын нейродегенерациядан қорғау мүмкіндігіне қарағанда әлдеқайда жақсы зерттелген. Жасуша дақылдары мен жануарларда кальций сигналдары, митохондриялық алмасу, антиоксиданттық жауап және амилоид прекурсоры ақуызының өңделуі өзгергені сипатталған. Алайда осы нәтижелерді біріктіріп, әмбебап «нейропротекторлық қалқан» уәде етуге болмайды: әр әсер үшін модель, концентрация, енгізу жолы және клиникалық нәтиже маңызды.
Альцгеймер ауруында бұл затқа қызығушылық түсінікті. Алдыңғы мидың базальды бөлігінің, соның ішінде Мейнерт ядросының холинергиялық проекциялары қыртыс пен жад жүйелерінің жұмысына қатысады; осы желілер зақымданса, ацетилхолиннің қолжетімділігі азаяды. Қалған медиатордың ыдырауын баяулату жұмыс істейтін синапстардағы берілісті күшейтуі мүмкін. Ингибитор өлген нейрондарды автоматты түрде қалпына келтірмейді және когнитивтік төмендеудің барлық себебін жоймайды. Сондықтан симптомдық әсер, жасушалық маркерлердің өзгеруі және аурудың баяулауы бөлек қарастырылуы тиіс.
Молекула және өсімдік көзі
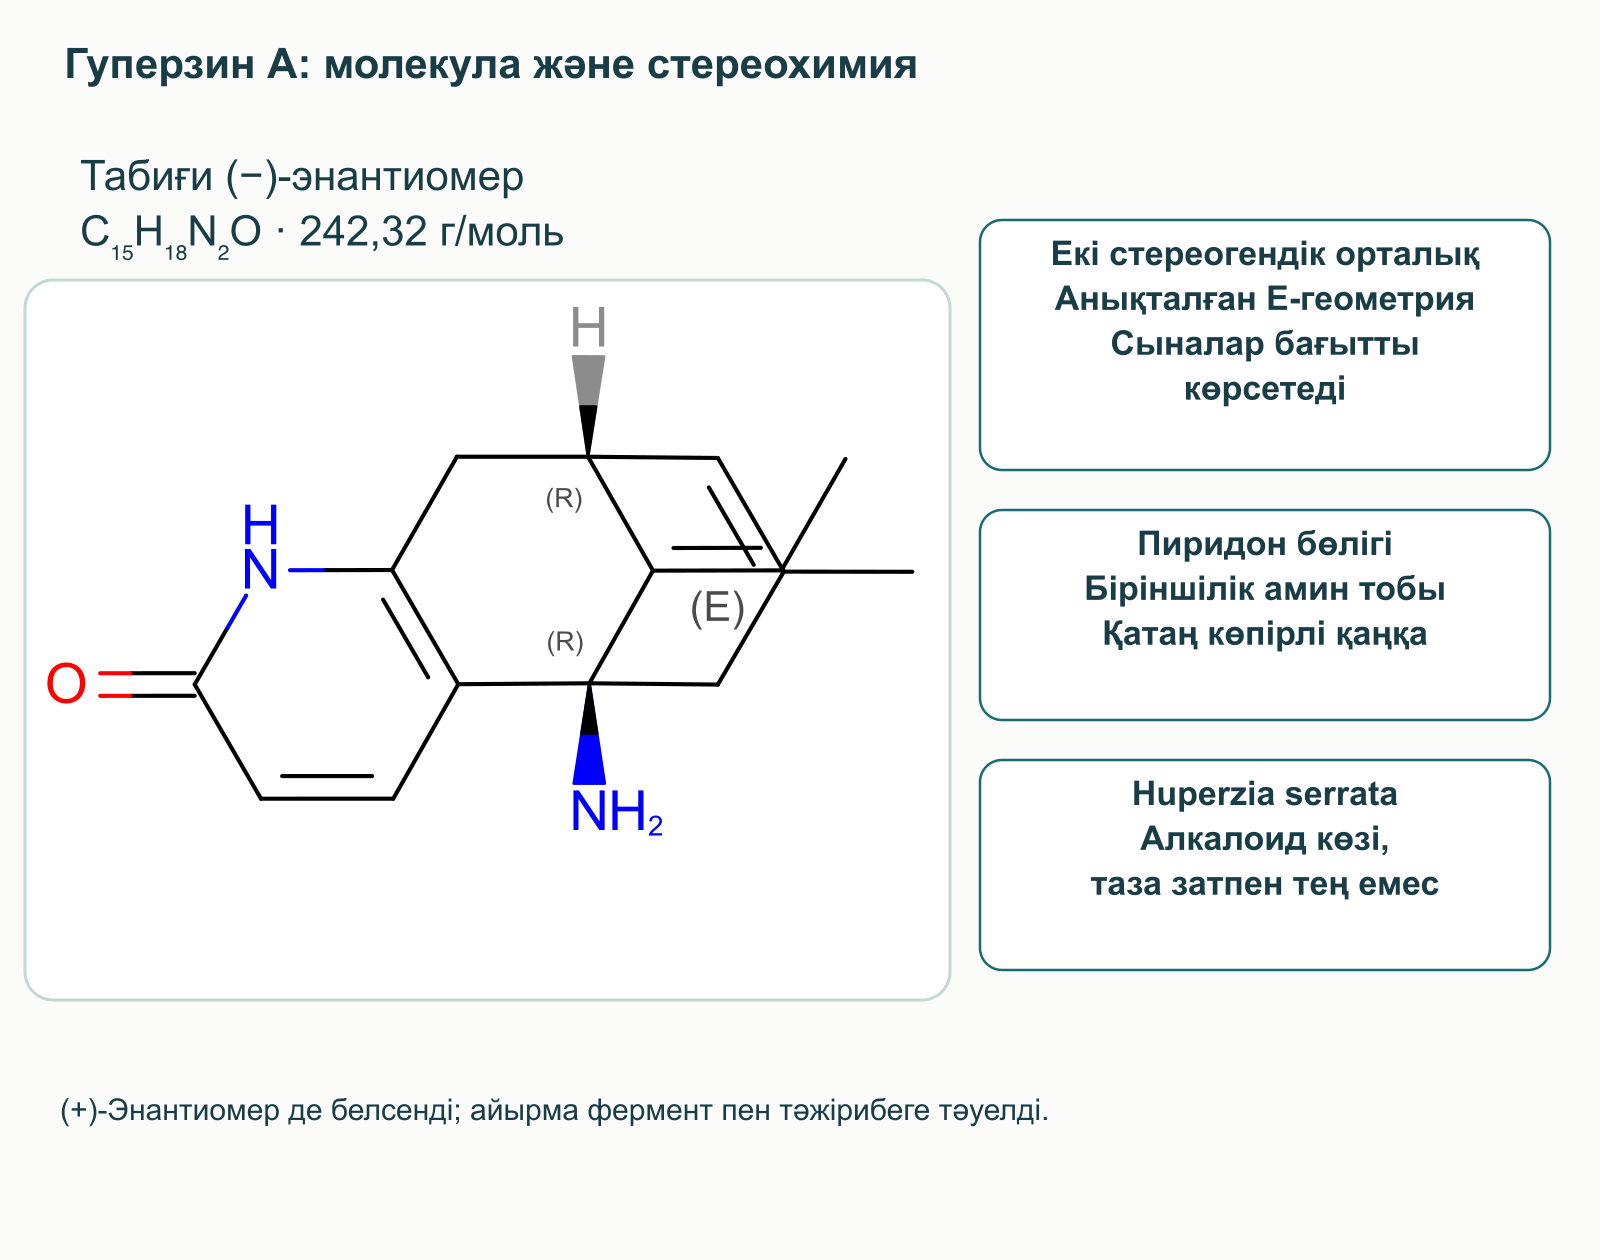
Гуперзин A Қытай дәстүрінде Qian Ceng Ta деп аталатын Huperzia serrata плаунтәрізді өсімдігінен бөлінген. Бұл — C₁₅H₁₈N₂O формулалы, молярлық массасы шамамен 242,32 г/моль болатын сесквитерпендік алкалоид. Оның қатаң көпірлі қаңқасында пиридон бөлігі, біріншілік амин тобы, екі стереогендік орталық және геометриясы анықталған экзоциклдік қос байланыс бар. Суретте шынайы құрылымдық формула қажет: шартты шаршылар тізбегі молекуланың құрылымын да, стереохимиясын да көрсетпейді.
Табиғи (−)-энантиомер бірқатар холинэстераза сынағында белсендірек, бірақ (+)-энантиомер толық белсенді емес деу дұрыс емес. Айырмашылық фермент пен тәжірибе жағдайларына тәуелді; басқа түрдің ферментімен алынған деректер екі пішінге әмбебап «адамдық» тұрақтылар тағайындамайды. Өсімдік сығындысы, тазартылған алкалоид және көпкомпонентті қоспа да өзара алмастырылмайды. Сығындыда өзге холинэстераза тежегіштері болуы мүмкін, ал алкалоидтың нақты мөлшері бөлек өлшенуге тиіс.
Ацетилхолинэстеразаның құрылысы
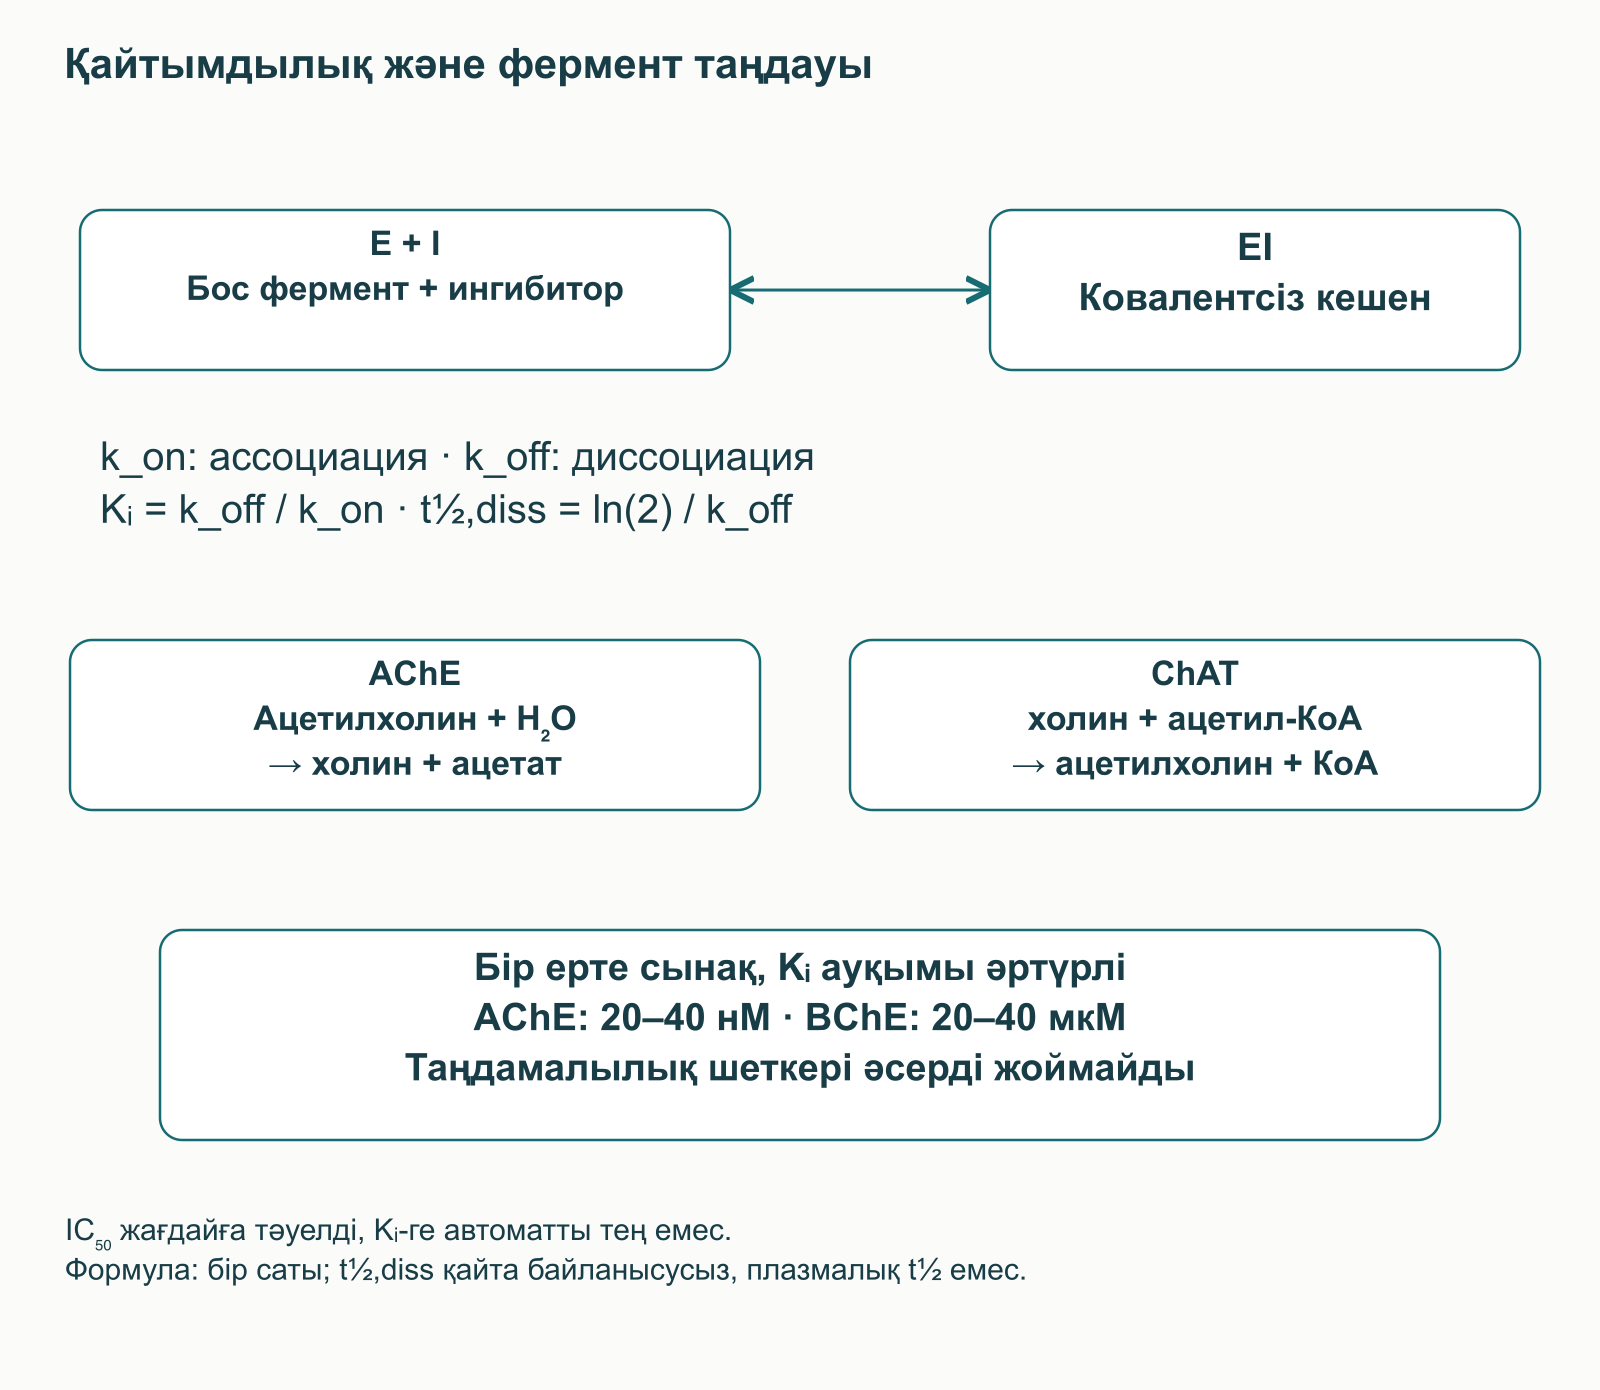
Ацетилхолинэстераза, немесе AChE, ацетилхолинді холин мен ацетатқа дейін гидролиздейді. Реакция медиатор әсерін тоқтатады, ал жүйке ұшына қайтқан холин қайта синтездеуге пайдаланылуы мүмкін. Холинацетилтрансфераза ацетил-КоА-дан ацетил тобын холинге өткізеді. Осы субстрат айналымының сақталуы қосымша холин гуперзиннің клиникалық әсерін міндетті түрде жақсартады дегенді білдірмейді.
Ацетилхолин + H₂O → холин + ацетат, фермент — AChE.
Холин + ацетил-КоА → ацетилхолин + КоА, фермент — холинацетилтрансфераза, ChAT.
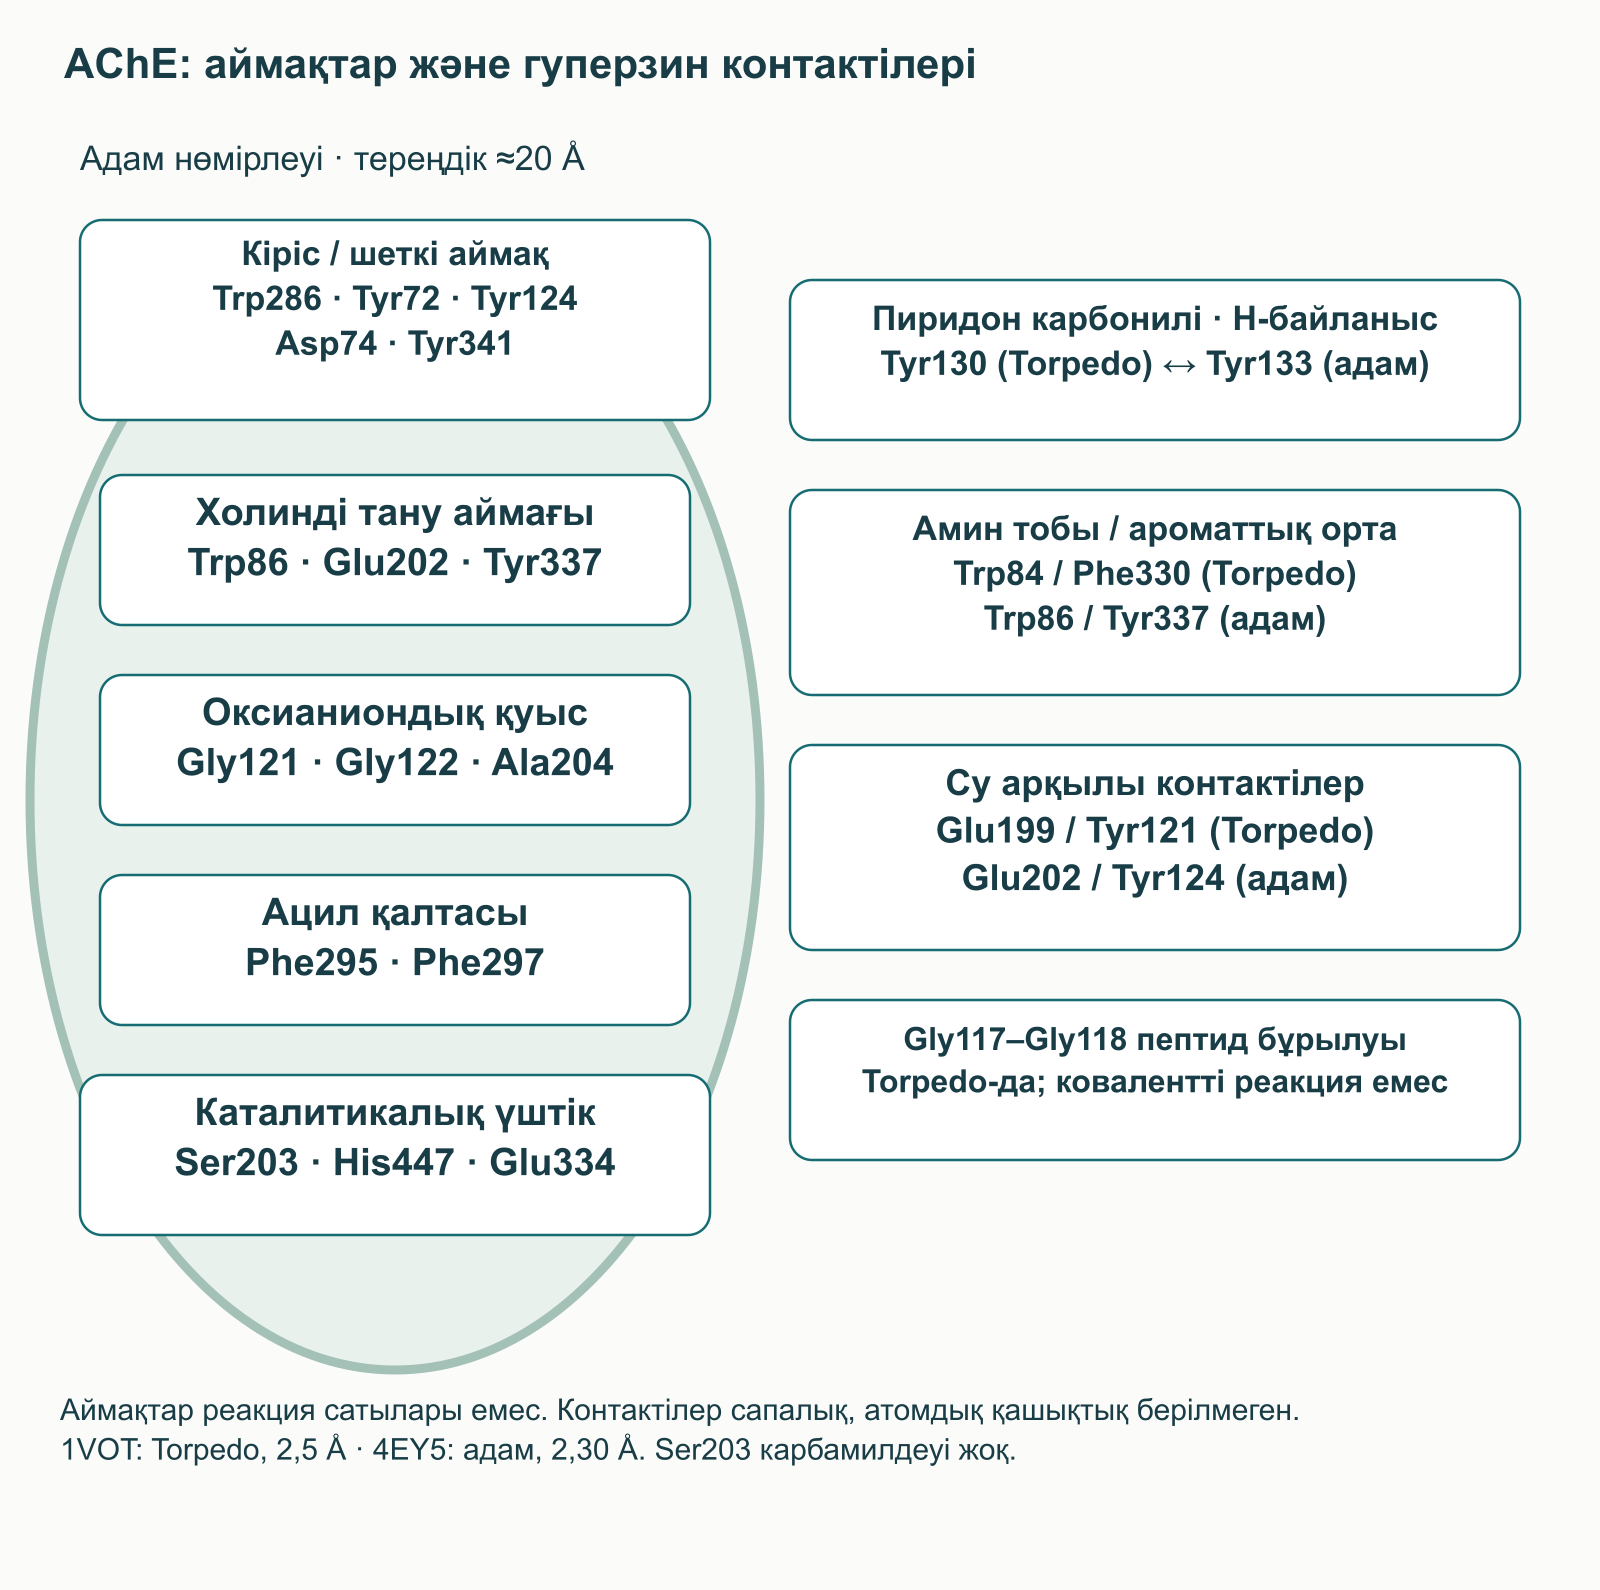
AChE белсенді орталығы тереңдігі шамамен 20 Å болатын тар ойыстың түбінде орналасқан. Адам ферментінде Ser203, His447 және Glu334 каталитикалық үштікті құрайды. Холин бөлігін тануға Trp86, Glu202 және Tyr337 қатысады; Gly121, Gly122 және Ala204 бар оксианиондық қуыс аралық күйді тұрақтандырады, ал Phe295 пен Phe297 ацил қалтасын шектейді. Кіреберістегі шеткі аймақта Trp286, Tyr72, Tyr124, Asp74 және Tyr341 орналасады. Тарихи «аниондық» атау тану тек теріс зарядталған қалдықтарға негізделеді деген сөз емес: ароматтық әрекеттесулер де маңызды.
Бұл аймақтардың міндеттері әртүрлі, олар метаболизм жолының кезекті сатылары емес. Бутирилхолинэстераза, BChE, AChE-нің жай шеткері пішіні емес, бөлек фермент. Оның кеңірек ацил қалтасы, өзге ерекшеліктермен қатар, AChE ароматтық қалдықтарына сәйкес орындардағы Leu286 және Val288-мен байланысты. Бұл субстраттар мен ингибиторлар ауқымын өзгертеді, бірақ BChE-ні кез келген затты залалсыздандыратын әмбебап жүйеге айналдырмайды.
Байланысу, қайтымдылық және тұрақтылардың мәні
Кристалдық құрылымдар гуперзиннің AChE ойысының терең бөлігінде ковалентсіз байланысатынын растайды. Torpedo californica ферментімен ерте кешен 2,5 Å ажыратымдылықпен зерттелген; кейін адам кешені 2,30 Å деңгейінде алынған. Түрлердің қалдық нөмірлеуі әртүрлі, сондықтан бірдей сан бірдей орынға кепіл емес. Байланыстарды сипаттағанда ферменттің қай түрге жататынын көрсету қажет.
Құрылымдық жұмыста пиридон карбонилінің Torpedo Tyr130-мен, яғни адам Tyr133-іне сәйкес қалдықпен жанасуы, протондалған амин тобының Torpedo Trp84/Phe330 ароматтық ортасымен әрекеттесуі және судың қатысуы маңызды. Адамдағы ароматтық сәйкес орындар — Trp86/Tyr337. Су арқылы байланысатын желі Torpedo Glu199 және Tyr121 ортасын қамтиды; олардың адамдағы сәйкестері — Glu202 және Tyr124. Оны амин тобының Glu202-мен ойдан шығарылған тікелей тұздық байланысымен алмастыруға немесе карбонилді оксианиондық қуыстың кәдімгі субстраты ретінде көрсетуге болмайды. Torpedo кешенінде Gly117–Gly118 пептидтік байланысының бұрылуы да сипатталған. Бұл ақуыздың қайта құрылуы, ингибитордың Ser203-ке ковалентті қосылуы емес.
Ең қарапайым модель — E + I ⇌ EI: E — бос фермент, I — ингибитор, EI — кешен. Ассоциация тұрақтысы k_on өлшемі концентрация⁻¹·уақыт⁻¹, диссоциация k_off өлшемі уақыт⁻¹. Бір сатылы модель үшін Kᵢ = k_off/k_on. Қайта байланысу тоқтағанда кешен мөлшерінің жартылай азаю уақыты t½,diss = ln(2)/k_off болады. Бұл формулалар таблетканың әсер ұзақтығын емес, молекулалық әрекеттесуді сипаттайды.
IC₅₀ — белгілі сынақта белсенділікті жартылай азайтатын концентрация. Ол субстрат пен фермент мөлшеріне, инкубация уақытына және өлшеуге тәуелді; оны шартсыз Kᵢ-ге теңестіруге болмайды. Тығыз байланысқанда ингибитордың едәуір бөлігі ферментпен байланысады, сондықтан бос концентрация қосылған мөлшерден өзгеше. Сүтқоректілер холинэстеразаларының ерте зерттеуінде AChE үшін шамамен 20–40 нМ, BChE үшін 20–40 мкМ Kᵢ көрсетілген. Бұл нақты тәжірибедегі таңдамалылықты көрсетеді, адам миындағы әмбебап белсенділікті анықтамайды.
| Зат | Химиялық және ферменттік сипат | Салыстыруда ескерілетін жайт |
|---|---|---|
| Гуперзин A | Сесквитерпендік алкалоид; қайтымды ковалентсіз тежегіш, бірнеше сынақта көбіне AChE-ге әсер етеді | Клиникалық дәлелдер мен қоспа сапасы тіркелген дәрілерден өзгеше; кей механизмдер жоғары концентрацияны қажет етеді |
| Донепезил | Пиперидин туындысы; AChE-ні қайтымды ковалентсіз тежеу | Ойыс бойымен кең байланысу барлық нәтижеде артықшылық бермейді; сынақтар мен көтерімділік маңызды |
| Ривастигмин | Карбамат; AChE және BChE-ні уақытша карбамилдеу | Қалпына келу декарбамилдеуді қажет етеді; ферменттік әсер тек плазмалық жартылай шығарылудан анықталмайды |
| Галантамин | Алкалоид; AChE-ні қайтымды тежеу | Никотиндік рецептор модуляциясы қоспалардың клиникалық пайдасын автоматты болжамайды |
| Такрин | Аминоакридин туындысы; холинэстеразаның қайтымды тежегіші | Тарихи маңызы бар, гепатоуыттылығы елеулі дәрі; онымен салыстыру басқа заттың қауіпсіздігін дәлелдемейді |
Салыстырылмайтын тәжірибелердің IC₅₀ сандары клиникалық тиімділік рейтингін жасамайды. AChE-ге таңдамалылық шеткері әсерлерді жоймайды: бұл фермент автономдық реттелу мен жүйке-бұлшықет берілісіне қатысады. Ацетилхолин сигналын күшейту танымға, ас қорытуға және жүрек ырғағына бір мезгілде әсер етуі мүмкін.
Сіңу, тосқауыл және шығарылу
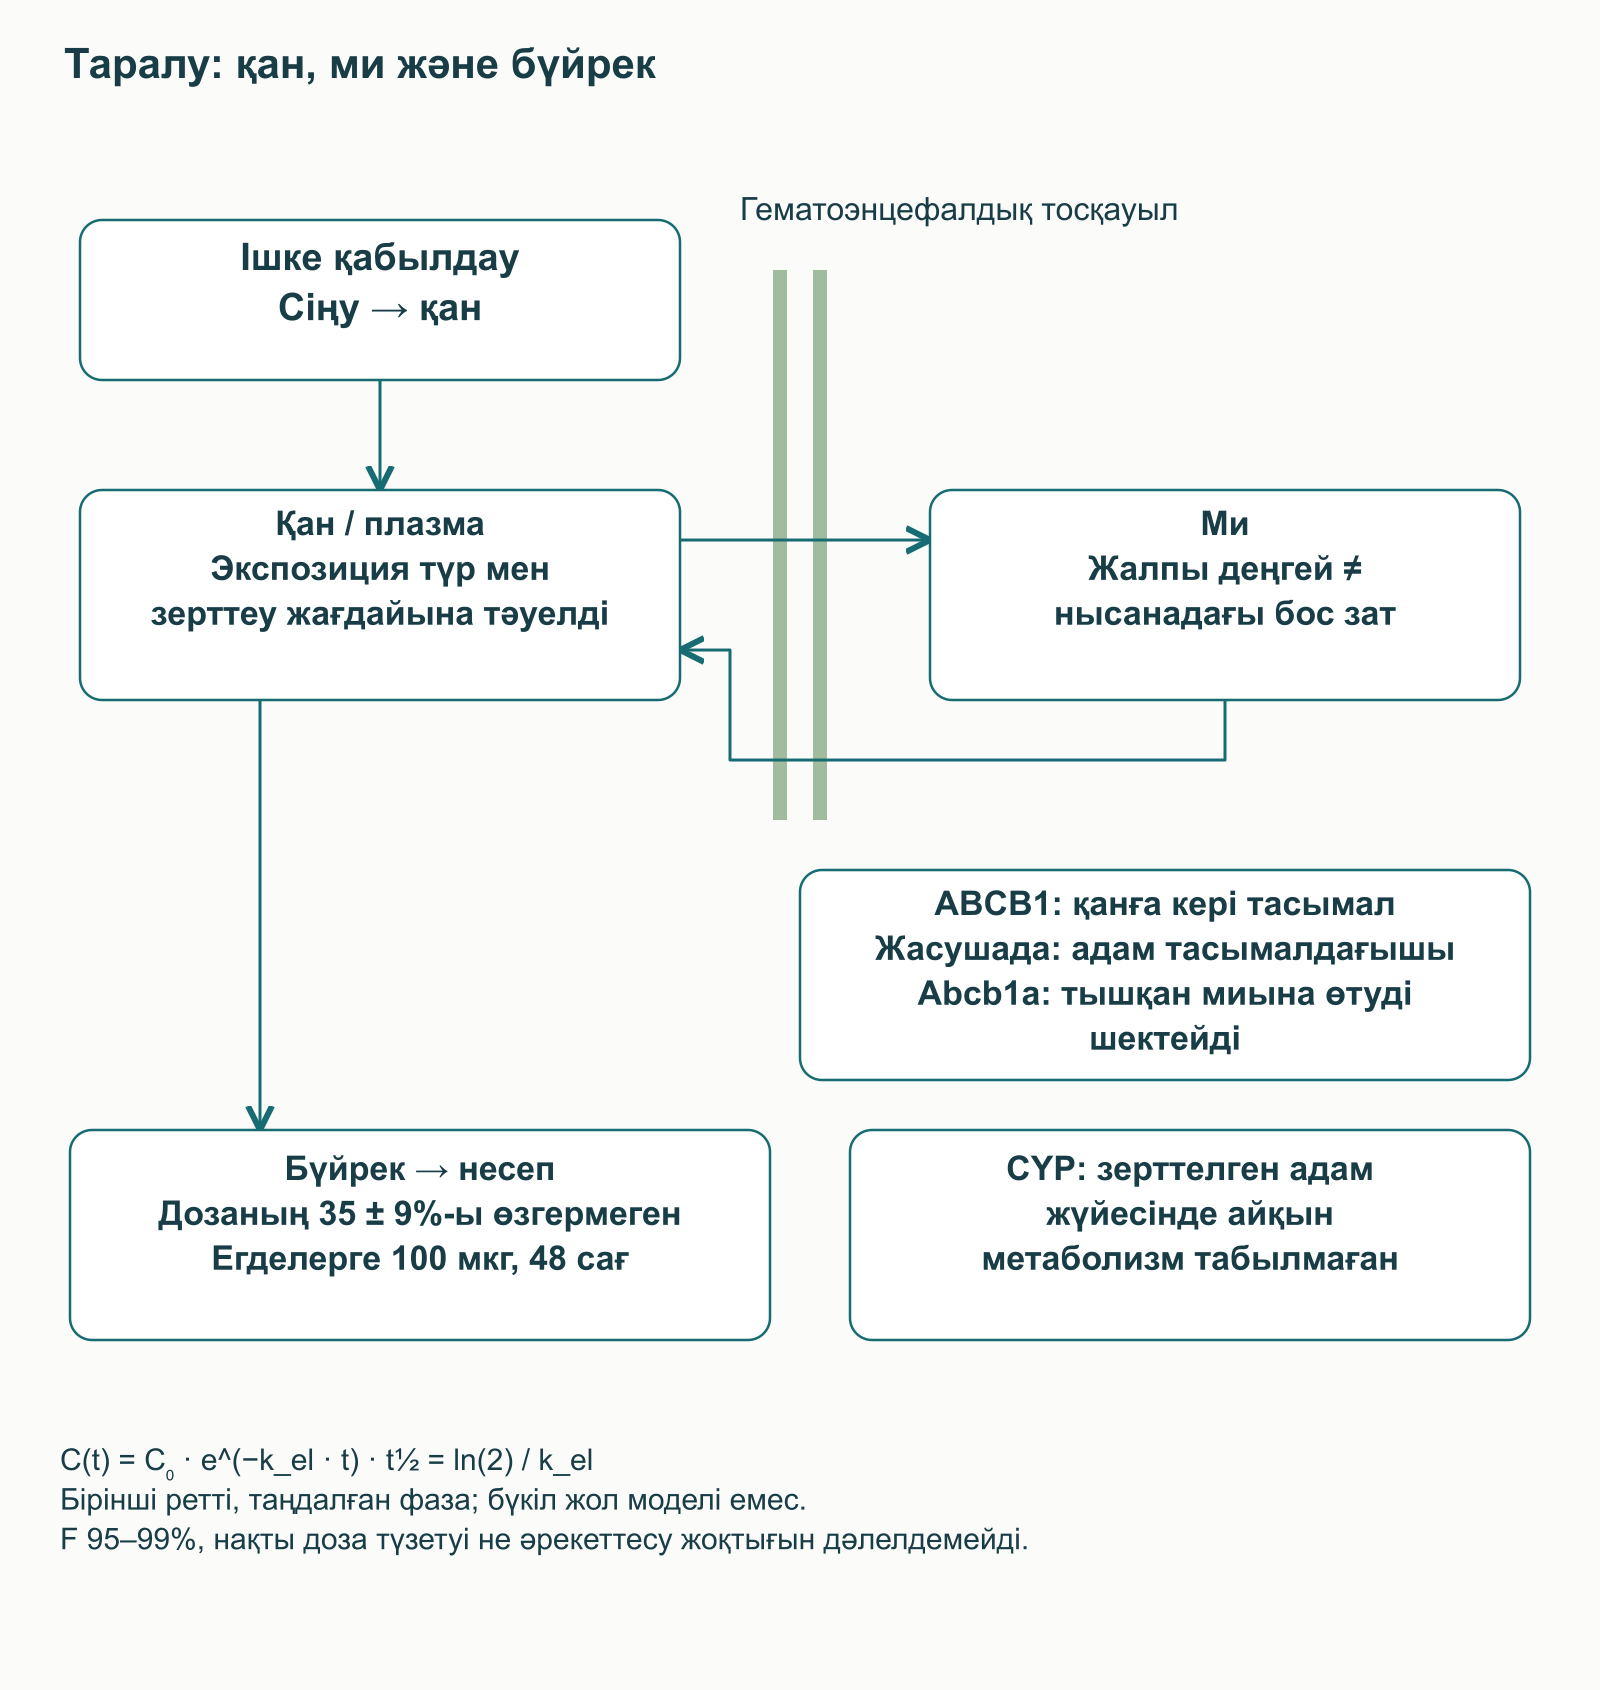
Ішке қабылдағаннан кейін гуперзин A қанда анықталады, бірақ ауыз арқылы қабылданатын түрлерді салыстыру абсолютті 95–99% сіңуді емес, салыстырмалы биожетімділікті көрсетеді. Алты еріктінің ерте зерттеуінде бір реттік 0,99 мг-нан кейін ең жоғары концентрация шамамен 80 минутта байқалып, элиминацияның жартылай кезеңі 4,8 сағаттай болған. Кейін дені сау қытайлық ерлерде референттік түр үшін шамамен 12,1 сағат хабарланған. Түрлі іріктемелерді, дозаларды, әдістер мен модельдерді бәріне міндетті бір сызбаға біріктіруге болмайды.
Гематоэнцефалдық тосқауыл тек өлшем мен липофильділікті сүзбейді. Адам ABCB1-ін экспрессиялайтын жасушаларда гуперзин оның субстраты болған; Abcb1a жоқ тышқандарда ми/плазма концентрация қатынасы артқан. Сол жұмыста ABCG2 салыстырмалы басым рөл атқармаған. Демек, гуперзин P-гликопротеинмен мүлде әрекеттеспейді деген пікір қате. Дегенмен жасушалар мен нокаут тышқандар адамдағы нақты дәрімен әрекеттесу мөлшерін анықтамайды.
Егде қатысушылар бір рет 100 мкг алған зерттеуде 48 сағатта дозаның шамамен 35 ± 9%-ы өзгермеген күйде несеппен шығарылған. Зерттелген адам микросомалары мен гепатоциттері жағдайында елеулі метаболизм, бірнеше CYP-ті айқын тежеу не индукциялау байқалмаған. Бұл адамның негізгі метаболизмі CYP1A2, CYP2D6 және CYP3A4 арқылы дәлелденген деген тұжырымға қайшы. Несептегі үлес дозаның толық теңгерімі емес, ал теріс зертханалық CYP сынағы барлық әрекеттесуді жоққа шығармайды. Бүйрек қызметі төмендегенде экспозиция назар аударуды қажет етеді, бірақ осы деректерден нақты дозалық түзету алынбайды.
Элиминацияны C(t) = C₀·e^(−k_el·t) және t½ = ln(2)/k_el арқылы түсіндіреді. C₀ — таңдалған фазаның бастапқы концентрациясы, k_el — төмендеу тұрақтысы. Қарапайым модель бірінші ретті кинетиканы болжайды және сіңуді, таралуды, бүйрек қызметінің өзгеруін автоматты сипаттамайды. Плазмалық t½ EI кешенінің диссоциациясынан, мидағы жалпы деңгей рецептор маңындағы бос концентрациядан өзгеше. Осы көрсеткіштердің ешқайсысы жеке өзі қабылдау жиілігін немесе «міндетті үзілісті» негіздемейді.
NMDA: тәжірибе және концентрациялар айырмасы
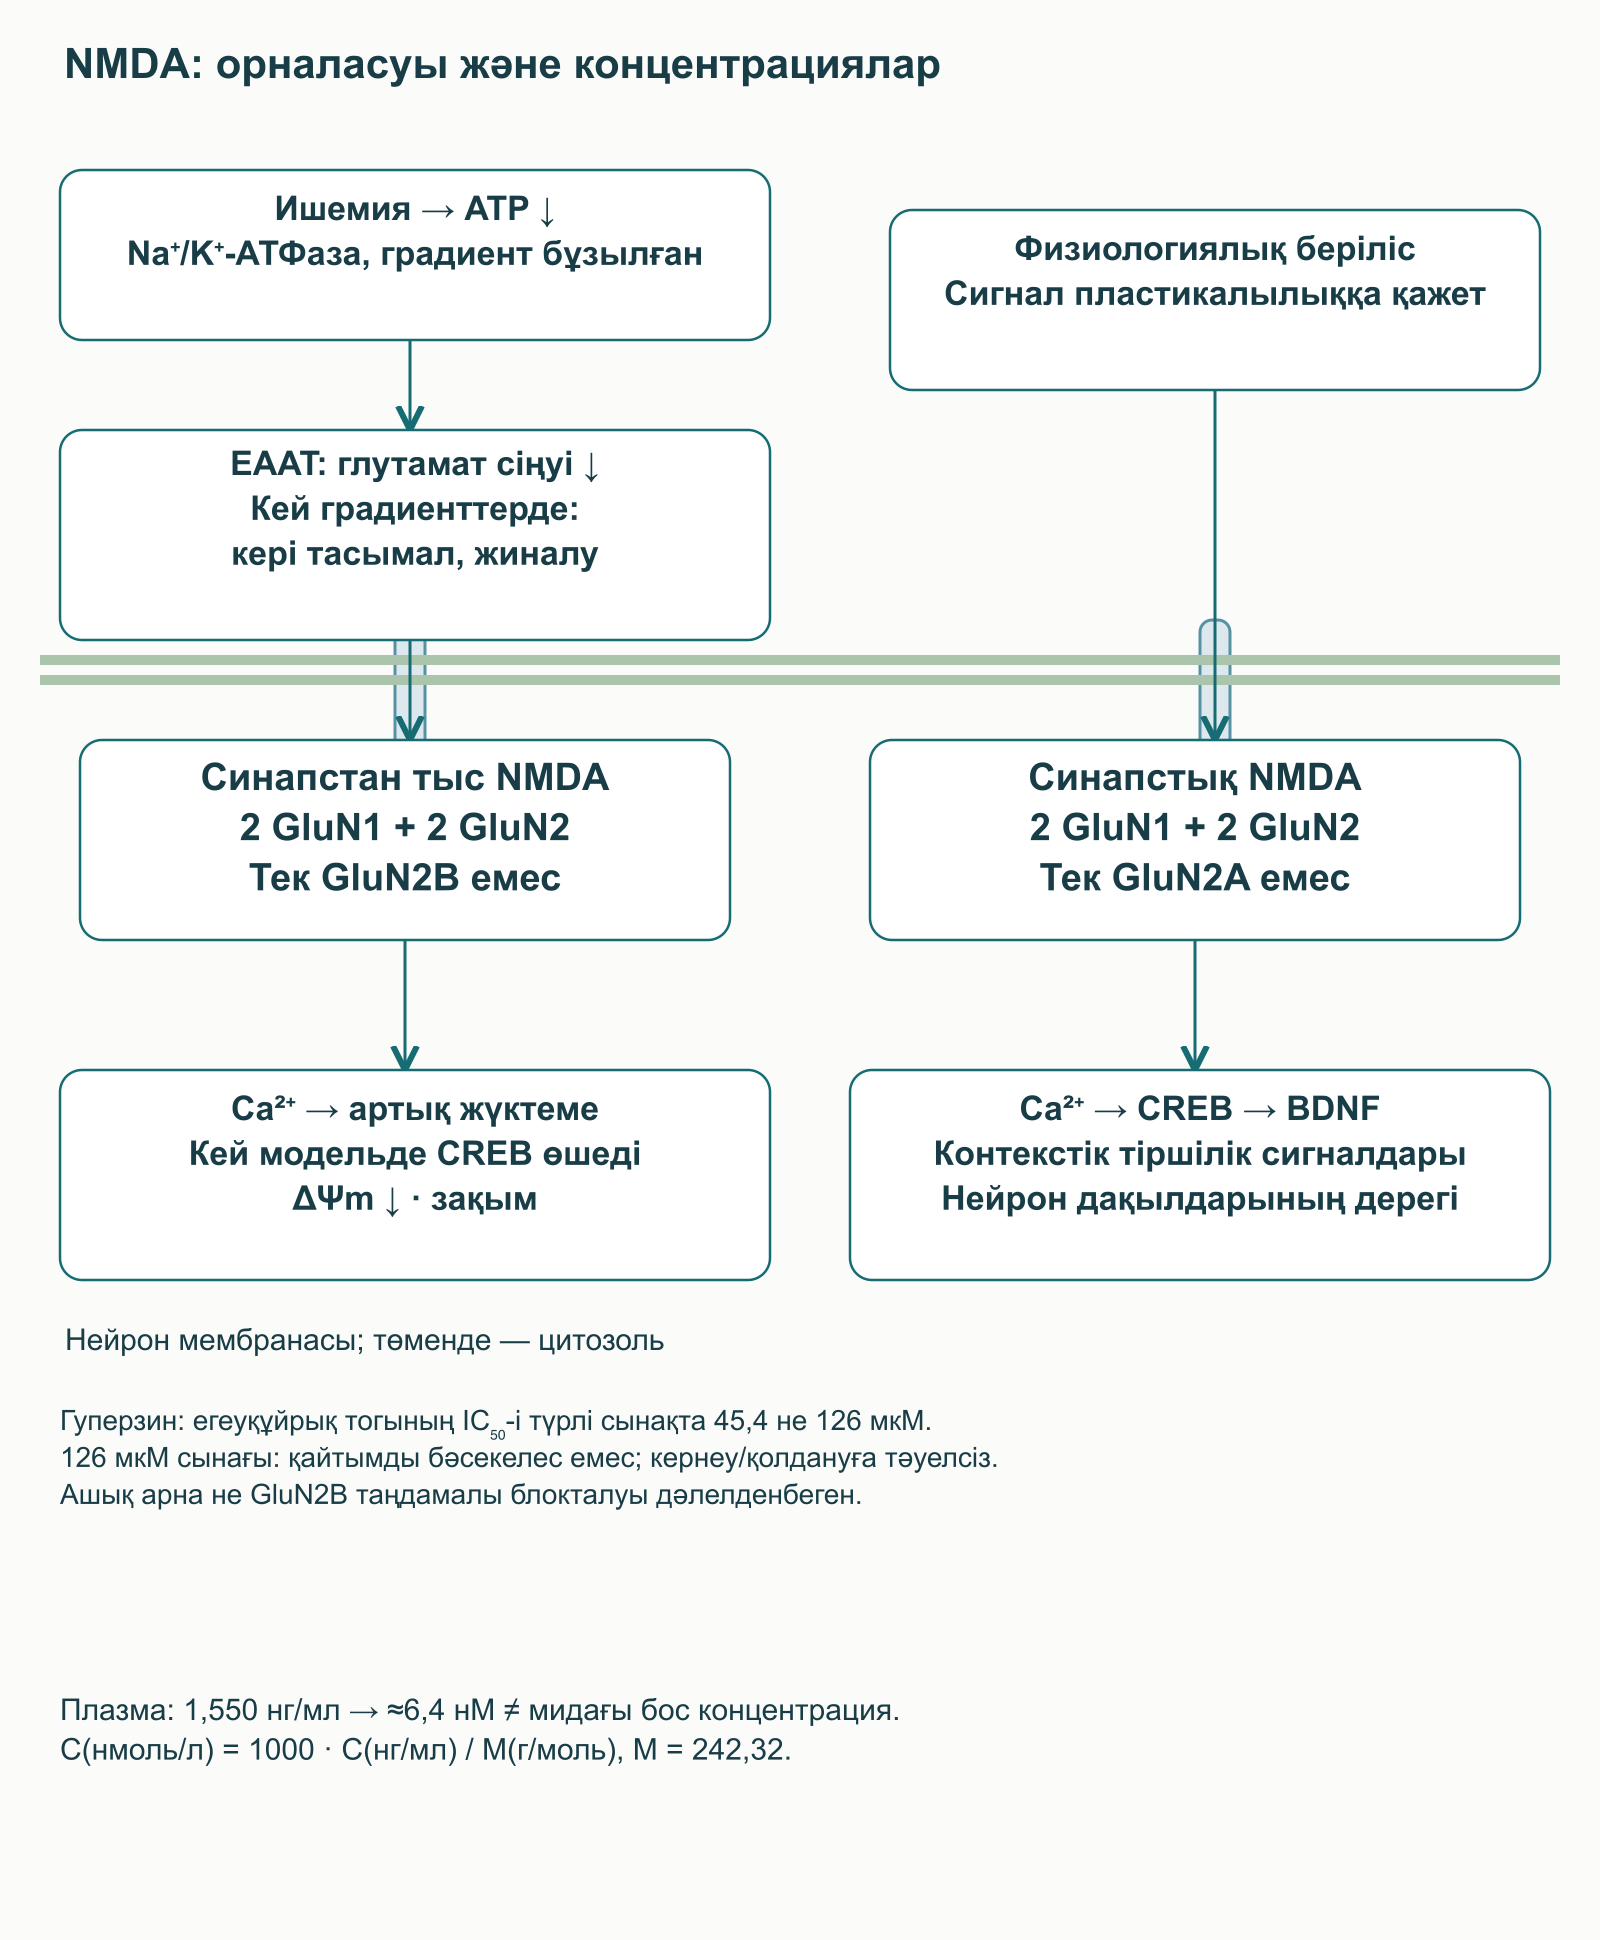
Ишемияда энергия тапшылығы Na⁺/K⁺-АТФаза жұмысын және иондық градиенттерді бұзады. EAAT арқылы глутаматты сіңіру жеткіліксіз болады, ал кей градиенттерде кері тасымал мүмкін. Ұзақ NMDA белсенуі мен Ca²⁺ кіруі зақымдаушы үдерістерді бастауы мүмкін. Бірақ физиологиялық NMDA сигналы пластикалылыққа қажет; мұндай берілістің бәрін тежеу өздігінен пайдалы емес.
Кәдімгі NMDA рецепторы екі GluN1 және екі GluN2-ден тұрады; бір кешенде әртүрлі GluN2 болуы да мүмкін. Синапстық және синапстан тыс сигналдарды «GluN2A әрдайым пайдалы, GluN2B әрдайым зиянды» ережесіне сыйғызуға болмайды. Нейрон дақылдарында синапстық стимуляция CREB пен BDNF-ті қолдаған, ал синапстан тыс белсенудің кей режимдері CREB-ті өшіріп, митохондриялық потенциал жоғалуымен байланысқан. Бұл — контекстке тәуелділік, адамның барлық рецепторының диагностикалық картасы емес.
Гуперзин егеуқұйрық нейрондарындағы NMDA тогын азайтқан, бірақ қажет концентрация AChE-ге тән наномолярлық деңгейден әлдеқайда жоғары болған. Бір тәжірибеде токтың IC₅₀-і 45,4 мкМ, екіншісінде 126 мкМ болған. Екінші жұмыста қайтымды бәсекелес емес тежеу байқалып, кернеуге немесе рецептордың қолданылуына тәуелділік табылмаған. Сондықтан тек ашық арнаны немесе тек GluN2B-ні таңдамалы тежеуді дәлелденген деп көрсетуге болмайды. Басқа жүйедегі MK-801 радиолиганд байланысуы токты тежеумен бірдей емес.
Ауыз арқылы қабылданатын түрлер зерттеуінде референт препараттың орташа ең жоғары плазмалық концентрациясы 1,550 нг/мл болған. Есептеу: C(нмоль/л) = 1000·C(нг/мл)/M(г/моль); M = 242,32 болғанда шамамен 6,4 нМ. 45,4–126 мкМ-мен салыстыру бірнеше реттік ондық дәрежелер айырмасын көрсетеді, бірақ мидағы бос затты өлшемейді. Практикалық қорытынды шектеулі: бұл NMDA тәжірибелері кәдімгі пероральды қабылдаудың пайда механизмін дәлелдемейді.
Митохондрия мен апоптоз: екі түрлі мембраналық оқиға
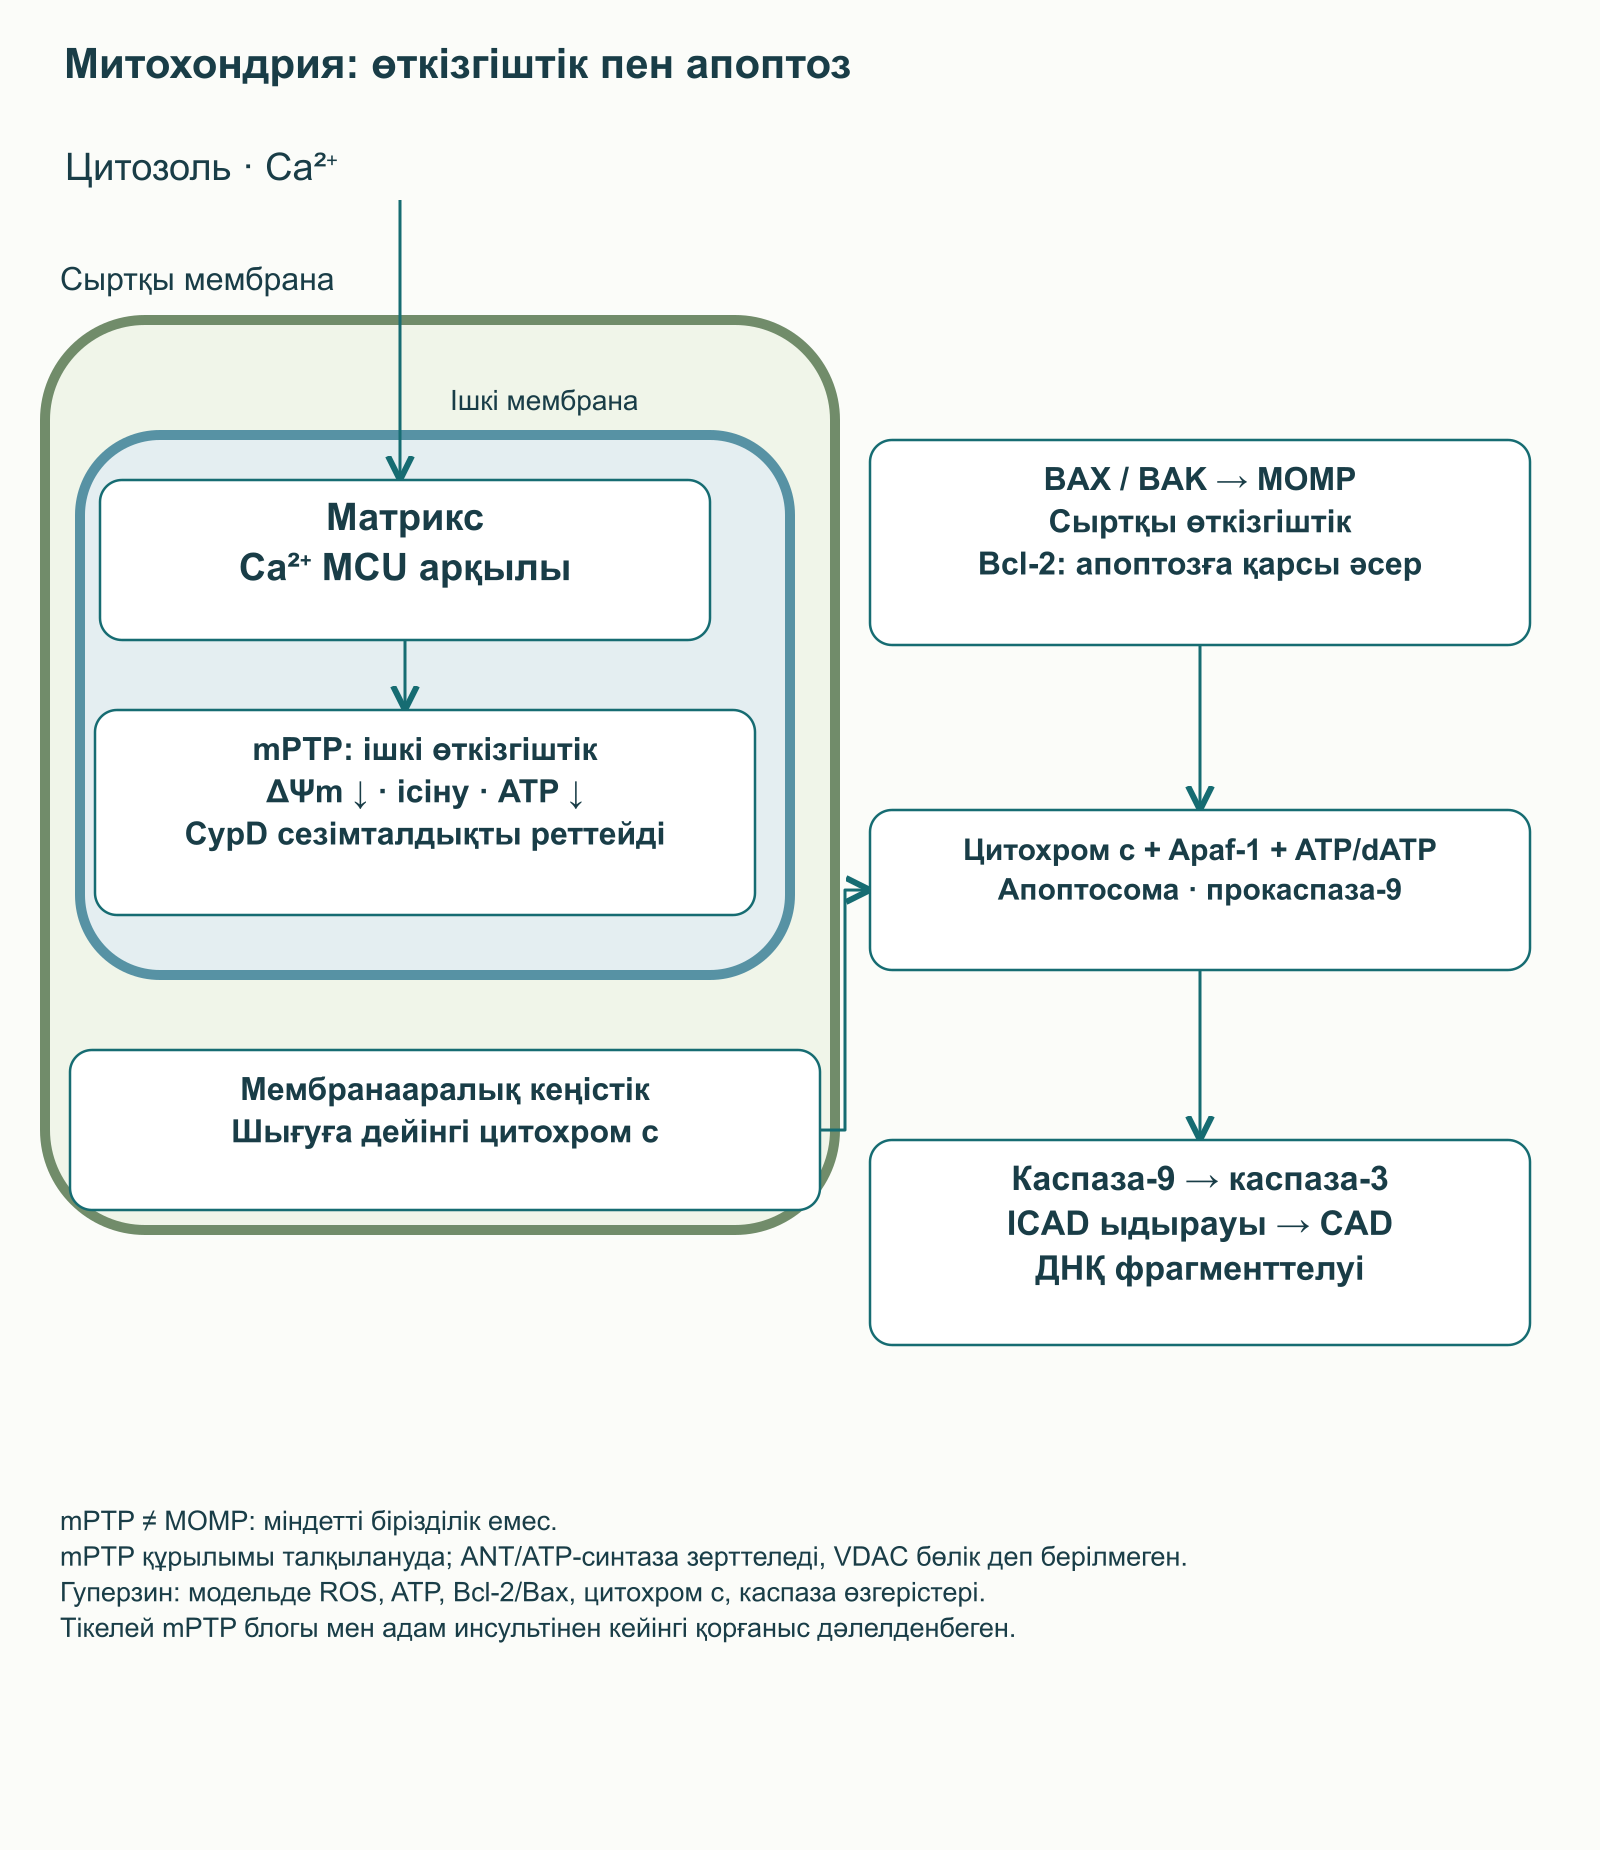
Ca²⁺ цитозольден матрикске ішкі мембранадағы MCU кешені арқылы өте алады. Орташа кіру алмасуды реттейді, ал кальцийдің шамадан тыс мөлшері мен тотығу стрессі энергетикалық байланысуды бұзуы мүмкін. Өткізгіштік ауысу саңылауының, mPTP, ашылуы ішкі мембранаға қатысты: таңдамалылық жоғалады, ΔΨm түседі, ісіну мен ATP тапшылығы болуы мүмкін. mPTP-ні VDAC, ANT және циклофилин D-ден тұратын түпкілікті анықталған құрылым ретінде көрсету дұрыс емес. CypD сезімталдықты реттейді; ANT пен ATP-синтаза бөліктері зерттелуде, ал саңылаудың нақты құрылысы әлі талқыланады.
Одан BAX және BAK қатысатын сыртқы мембрана өткізгіштігінің артуын, MOMP, ажырату керек. Цитохром c мембранааралық кеңістіктен цитозольге шығады. Apaf-1 және ATP/dATP-мен бірге апоптосома жиналуына және прокаспаза-9 белсенуіне қатысады, кейін каспаза-3 белсенеді. ICAD тежегішінің ыдырауы ДНҚ-ны фрагменттейтін CAD нуклеазасын босатады. Зақымдалған жасушада mPTP мен MOMP әрекеттесуі мүмкін, бірақ барлық апоптозда міндетті бірізділік құра алмайды.
Сарысусыз қалған егеуқұйрық қыртысы нейрондарында гуперзинмен алдын ала өңдеу Bcl-2/Bax өзгерістерімен, цитохром c шығуы мен каспаза-3 белсенуінің азаюымен байланысты болған. Aβ₂₅–₃₅ фрагменті әсер еткен PC12 жасушаларында белсенді оттек түрлері азайып, энергетикалық көрсеткіштер жақсарған. Егеуқұйрықтың ортаңғы ми артериясы бітелгеннен кейінгі митохондриялық зерттеулер де бар. Олар эксперименттік болжамды қолдайды, бірақ mPTP-ге тікелей байланысуды немесе адам инсультінен кейін мүгедектіктің азаюын дәлелдемейді.
Антиоксиданттық жауап және нейротрофиялық сигналдар
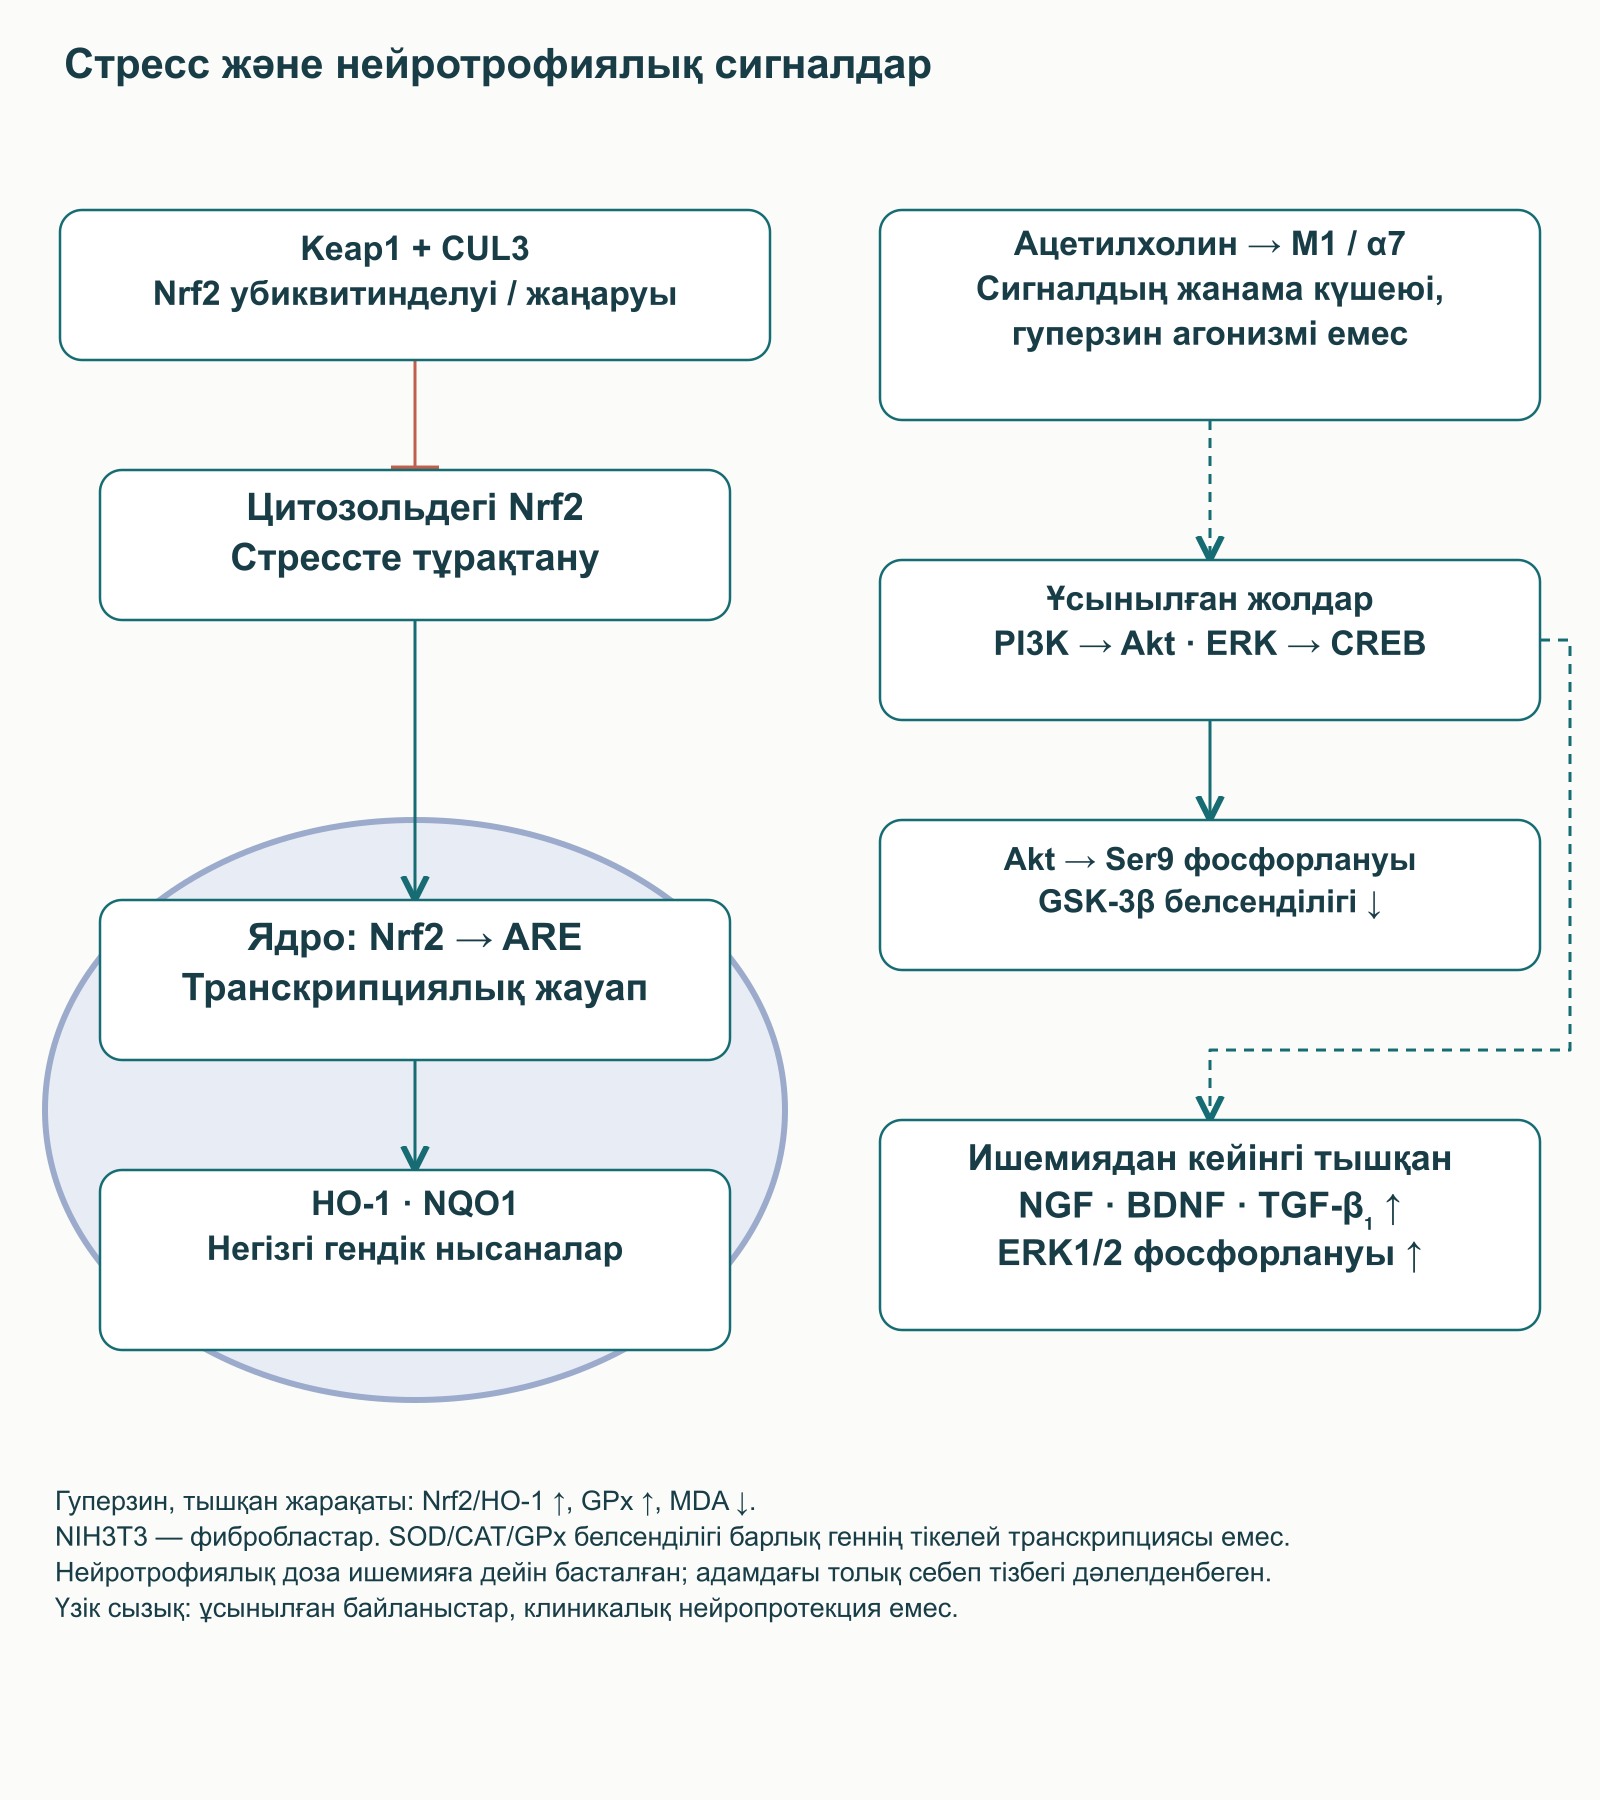
Nrf2 — жасушаның стреске жауабын басқаратын транскрипциялық реттеуші. Қалыптыда Keap1 және CUL3 жүйесі оның убиквитинделуі мен жаңаруына ықпал етеді; жауап белсенгенде Nrf2 ядрода жиналып, ARE элементтері арқылы гендерді реттейді. Негізгі нысаналарға HO-1 және NQO1 жатады. SOD, каталаза немесе глутатионпероксидаза белсенділігінің өзгеруі олардың бәрін Nrf2 тікелей транскрипциялық реттегені әр тәжірибеде дәлелденді дегенді білдірмейді.
Тышқан ми жарақаты моделінде гуперзинді құрсақ қуысына енгізгеннен кейін ядролық Nrf2 мен HO-1, глутатионпероксидаза белсенділігі артып, липидтік тотығу маркері MDA азайған. Өзге деректер сәулеленген NIH3T3 фибробластарынан алынған, олар адам нейрондары емес. Нәтижелер нақты модельге, енгізу жолы мен әсер ұзақтығына жатады. Олар қоспамен бас-ми жарақатын емдеуді немесе гуперзиннің Nrf2-ні тікелей әмбебап белсендіруін растамайды.
Нейротрофиялық әсерлер де осылай бағаланады. Тышқанның уақытша ишемиясынан кейін гуперзин NGF, BDNF, TGF-β₁ және ERK1/2 фосфорлануының артуымен байланысқан; енгізу операциядан бұрын басталған. M1/α7, PI3K–Akt, ERK және CREB жолдары сигналдар мен ақуыз экспрессиясы туралы болжам жасауға көмектеседі. Akt Ser9 фосфорлануы арқылы GSK-3β-ні тежей алады. Бірақ гуперзиннен әр рецептор мен киназа арқылы нейрон қалпына келуіне дейінгі толық тізбек адамда дәлелденбеген. Ацетилхолин сигналын күшейту M1 не α7-ге тікелей агонист болумен бірдей емес; BDNF немесе tau фосфорлануын өзгерту клиникалық функция нәтижесін алмастырмайды.
APP өңделуі және антиамилоидтық болжамның шегі
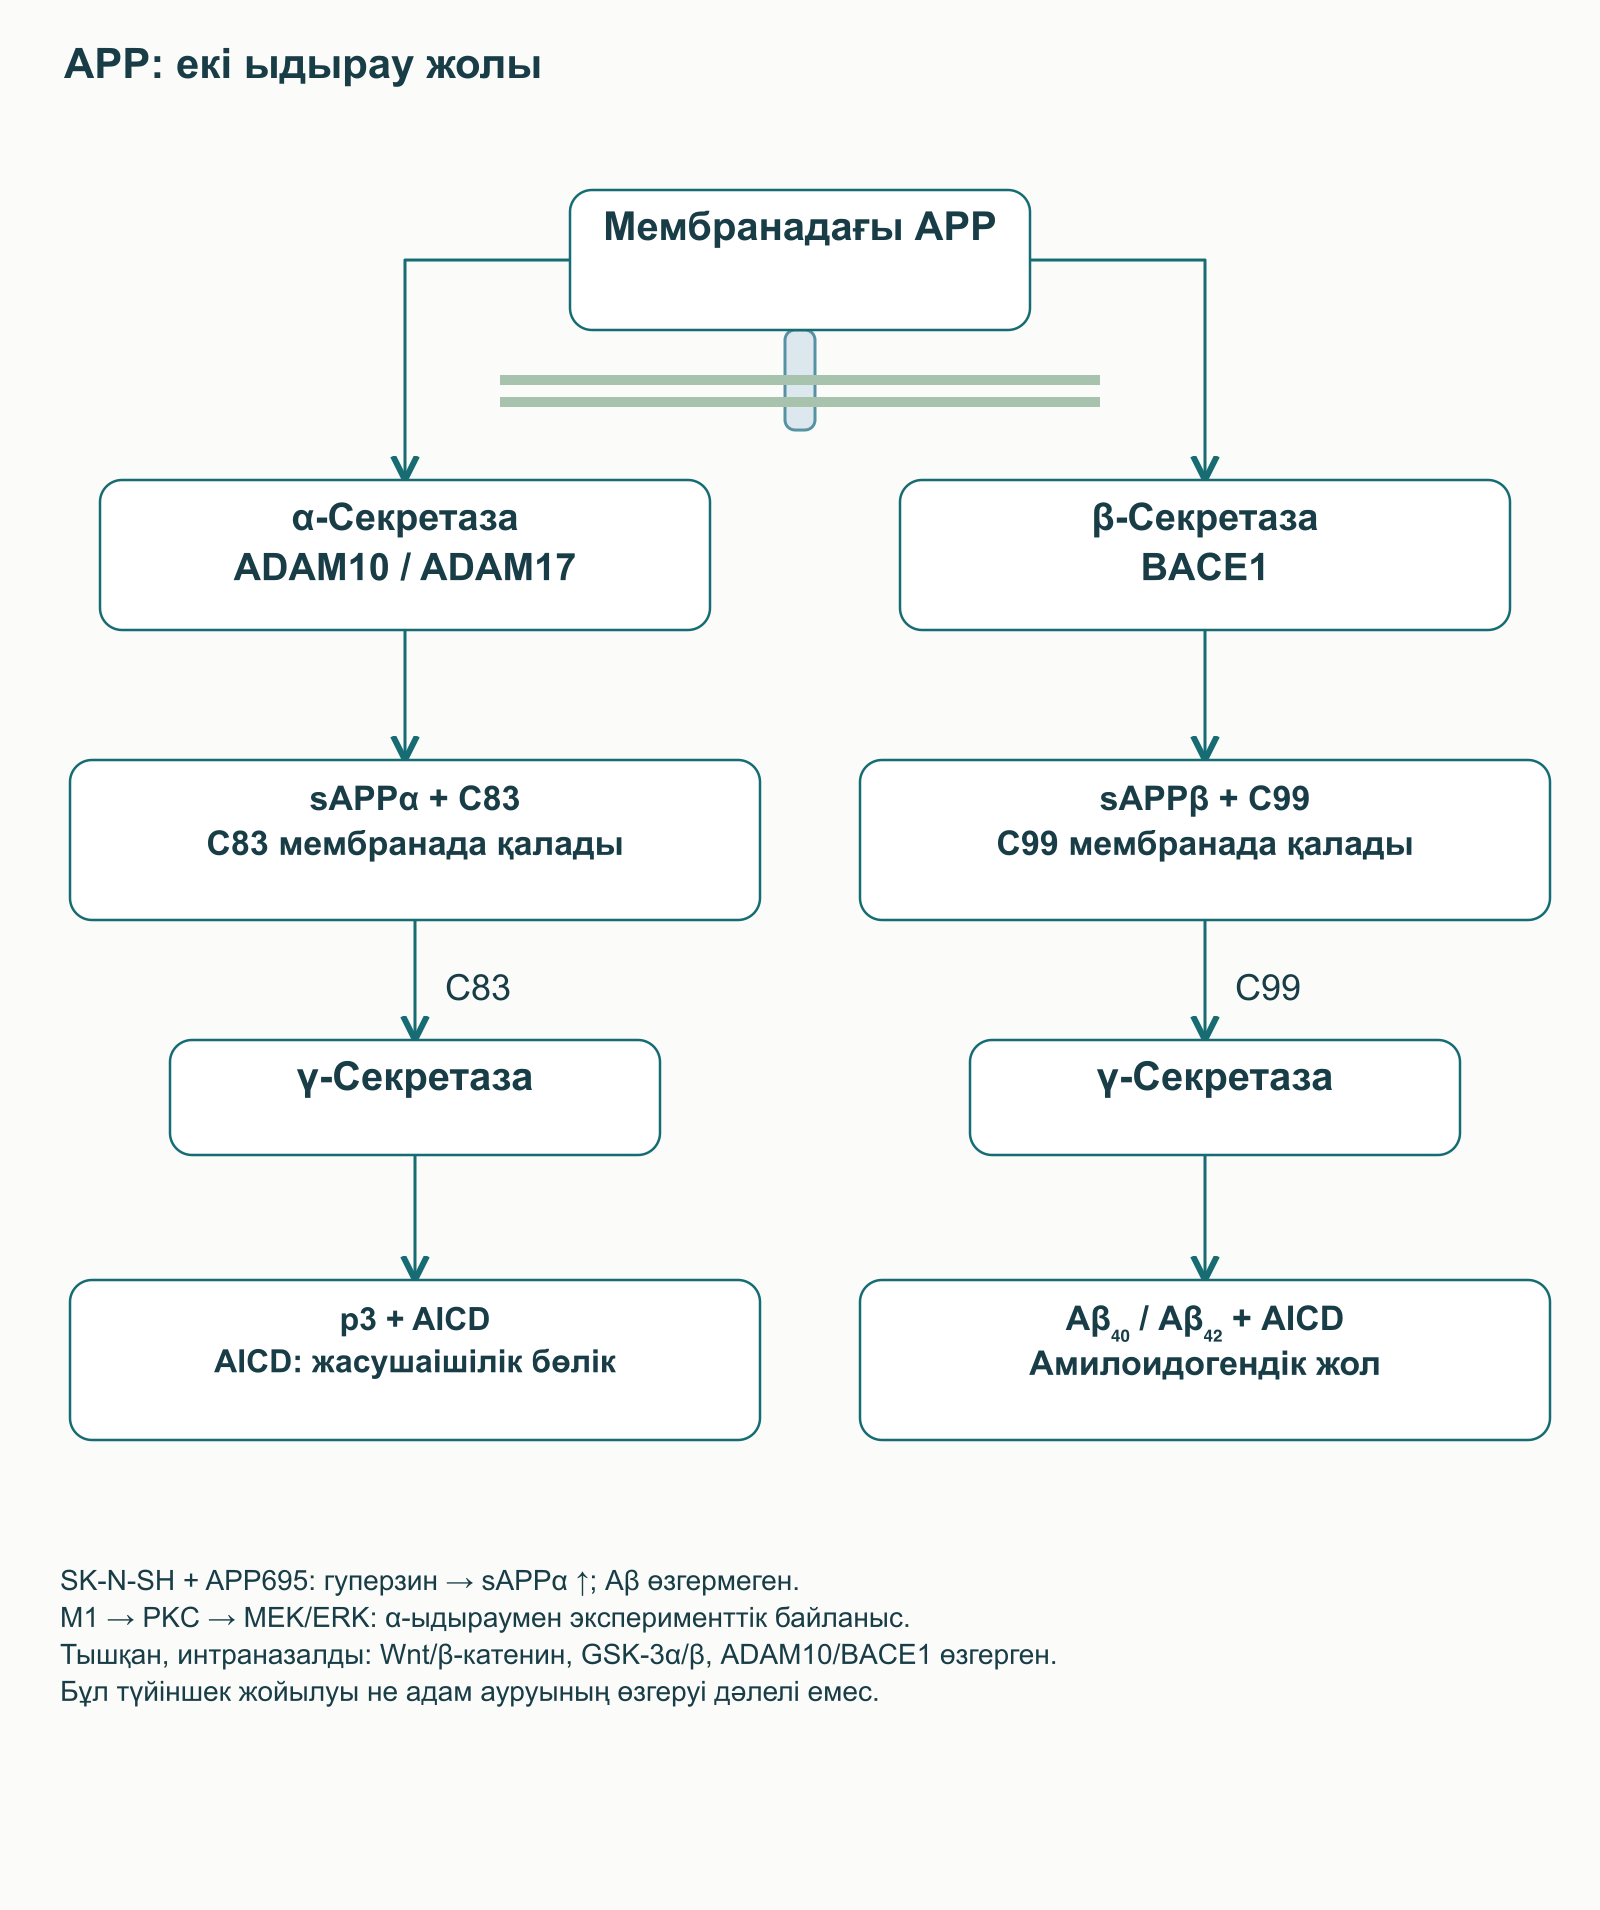
APP — мембраналық амилоид прекурсоры ақуызы, ол бірнеше жолмен ыдырайды. α-Секретаза Aβ тізбегінің ішін кесіп, еритін sAPPα мен мембраналық C83 түзеді; кейін γ-секретаза p3 пен жасушаішілік AICD береді. BACE1 арқылы sAPPβ және C99 пайда болып, γ-секретаза Aβ, соның ішінде Aβ₄₀ пен Aβ₄₂, және AICD бөледі. Екі жолды бөлек ферменттері мен өнімдерімен көрсету керек, бір «амилоид азаяды» жебесі жеткіліксіз.
APP695 көп экспрессиялайтын адам SK-N-SH нейробластома жасушаларында гуперзин sAPPα бөлінуін арттырған. Нәтиже M1, PKC және MEK/ERK сигналдарына тәуелді болып, ADAM10-ды қоса α-секретазалармен байланысқан; тиісті тәжірибелерде ADAM17 де қатысқан. Бұл жүйеде Aβ түзілуі өзгермеген. Сондықтан sAPPα артуы Aβ азаюын немесе науқаста түйіншектердің жоғалуын автоматты дәлелдемейді.
Трансгенді тышқандарға ұзақ интраназалды енгізілген басқа зерттеуде Wnt/β-катенин, GSK-3α/β, ADAM10, BACE1 және амилоид көрсеткіштері өзгерген. Өзге модель мен енгізу жолы өзге нәтиже беруі мүмкін, бірақ клиникалық мәселені шешпейді. Осы тәжірибе де, жасушалық APP өңделуі де адамның ауру ағымын пероральды гуперзин өзгертетінін дәлелдемейді.
Клиникалық зерттеулердің нәтижесі
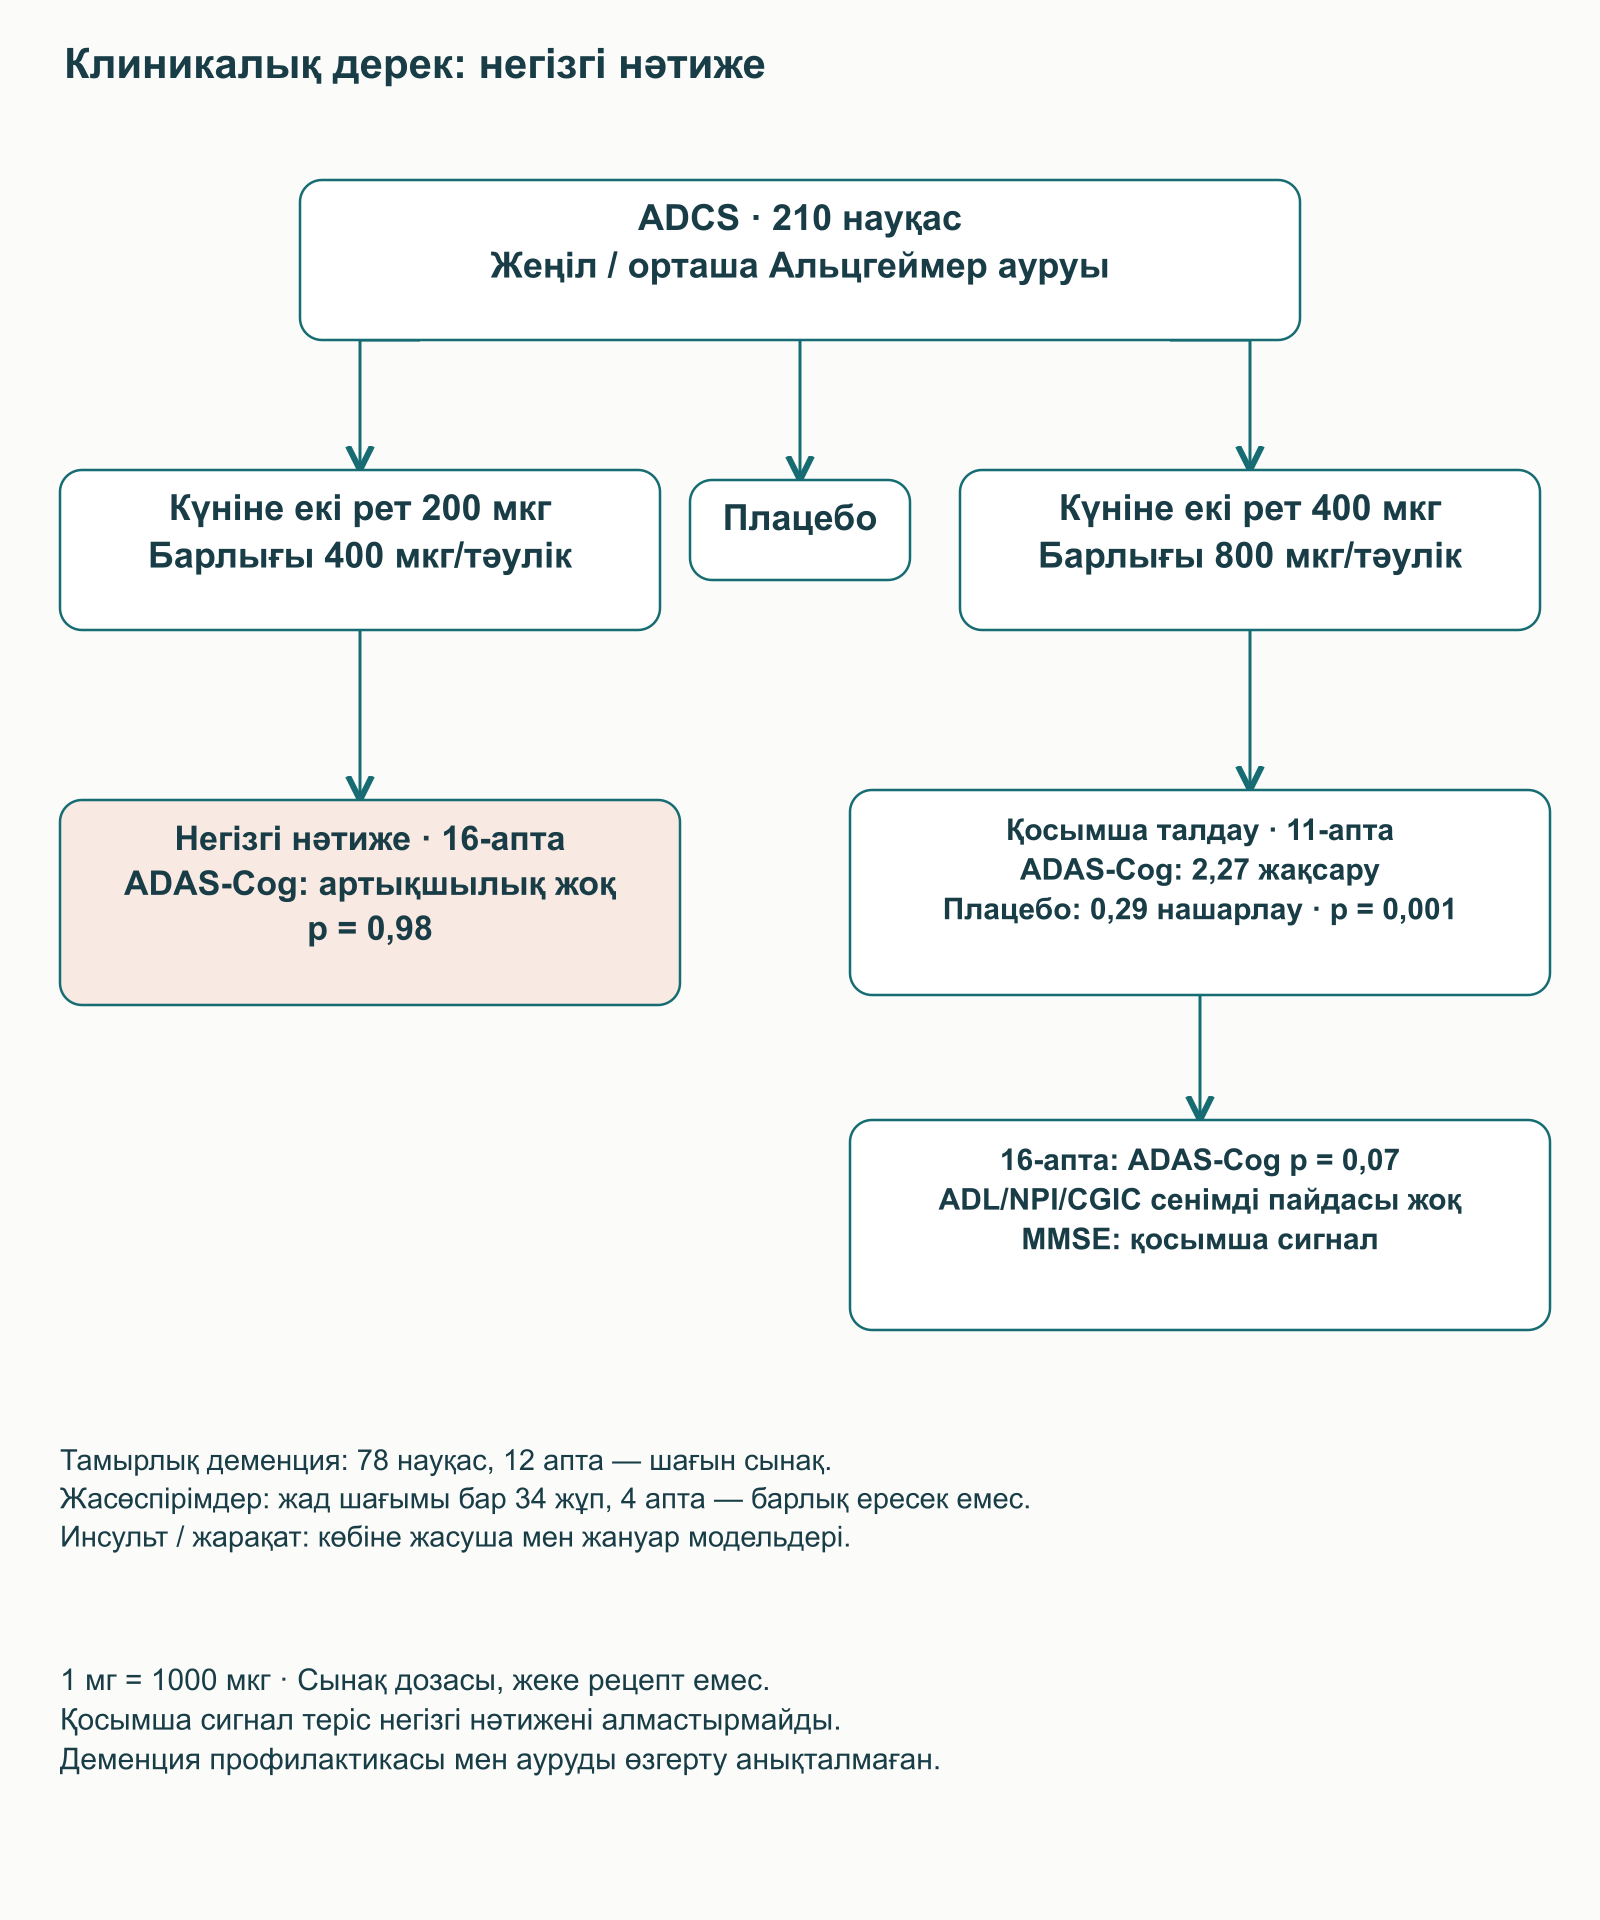
Ең ақпаратты америкалық плацебо-бақыланатын зерттеуге жеңіл не орташа Альцгеймері бар 210 науқас кірген. Негізгі сұрақ тәулігіне екі рет 200 мкг, яғни 400 мкг/тәулік, және 16-аптадағы ADAS-Cog өзгерісіне қатысты болған. Алдын ала таңдалған осы нәтижеде плацебодан елеулі артықшылық болмаған. Екінші топ біртіндеп көтерілген дозамен екі рет 400 мкг-ға, яғни 800 мкг/тәулікке дейін алған.
Осы топта 11-аптада ADAS-Cog 2,27 балға жақсаруы плацебодағы 0,29 бал нашарлаумен салыстырылған; 16-аптада айырмашылық әдеттегі маңыздылық шегіне жетпеген. MMSE бойынша қосымша сигнал болған, бірақ күнделікті әрекет, нейропсихиатриялық белгілер және жалпы клиникалық бағалауда сенімді пайда жоқ. Доза, нәтиже және мерзімді деректерден кейін таңдау асыра тұжырым қаупін арттырады. Бұл қосымша зерттеуге негіз, дозаны екі есе арттыру клиникалық пайданың кепілі емес.
Жүйелі шолулар жалпы оңырақ көрініс береді, бірақ әртекті және жиі әдістемелік әлсіз зерттеулерді біріктіреді. Ерте шолуда 454 қатысушысы бар алты сынақ, 2013 жылғы кең шолуда 1823 қатысушысы бар 20 сынақ болған. 2014 жылғы талдауда Альцгеймердің сегіз зерттеуі, 733 қатысушы кірген: бұл сандар 2013 шолуына жатпайды. Рандомизация, соқырлау, ұзақтық және жарияланым таңдауы шектеулері сенімділікті төмендетеді. Жад тестінің біріктірілген нәтижесі дербестік, өмір сапасы немесе нейродегенерация баяулауы дәлелі емес.
| Топ | Нақты зерттелгені | Практикалық қорытынды шегі |
|---|---|---|
| Альцгеймер ауруы | Қысқа сынақтар және негізгі нәтижесі теріс ірі зерттеу; кей қосымша когнитивтік сигналдар | Деменция профилактикасы мен ауру ағымын өзгерту анықталмаған; стандартты емді автоматты алмастырмайды |
| Тамырлық деменция | 78 науқастың шағын зерттеуі: 12 апта бойы күніне екі рет 0,1 мг, шкалалардағы оң өзгерістер | Бір шағын үлгі кез келген тамырлық зақымда әмбебап әсерді растамайды; ұзақ нәтижелер аз зерттелген |
| Инсульт пен ми жарақаты | Негізінен жасушалық және жануарлық модельдер | Жануар ошағының азаюын адамға көшіруге немесе шұғыл көмекті кешіктіруге болмайды |
| Деменция анықталмаған адамдар | Жадқа шағымы бар 34 жұп жасөспірімнің ескі төрт апталық шағын сынағы | Барлық дені сау ересектің интеллектін қауіпсіз арттыру дәлелі емес және балаларға ұсыныс емес |
Зерттеу дозалары және рецептор бейімделуі
Жарияланымдағы доза зерттеу араласуын сипаттайды, жеке рецепт емес. Өлшем бірлігін шатастыру ерекше қауіпті: 1 мг = 1000 мкг, демек 0,1 мг — 100 мкг. Америкалық сынақта дозаны хаттамамен көтеріп, қатысушылар мен көтерімділікті бақылаған. Одан «зейінге 50, жадқа 200, нейропротекцияға 800 мкг» деген әмбебап саты немесе дені сауға қауіпсіз сызба алынбайды. Холин донорымен міндетті біріктіру де негізделмеген.
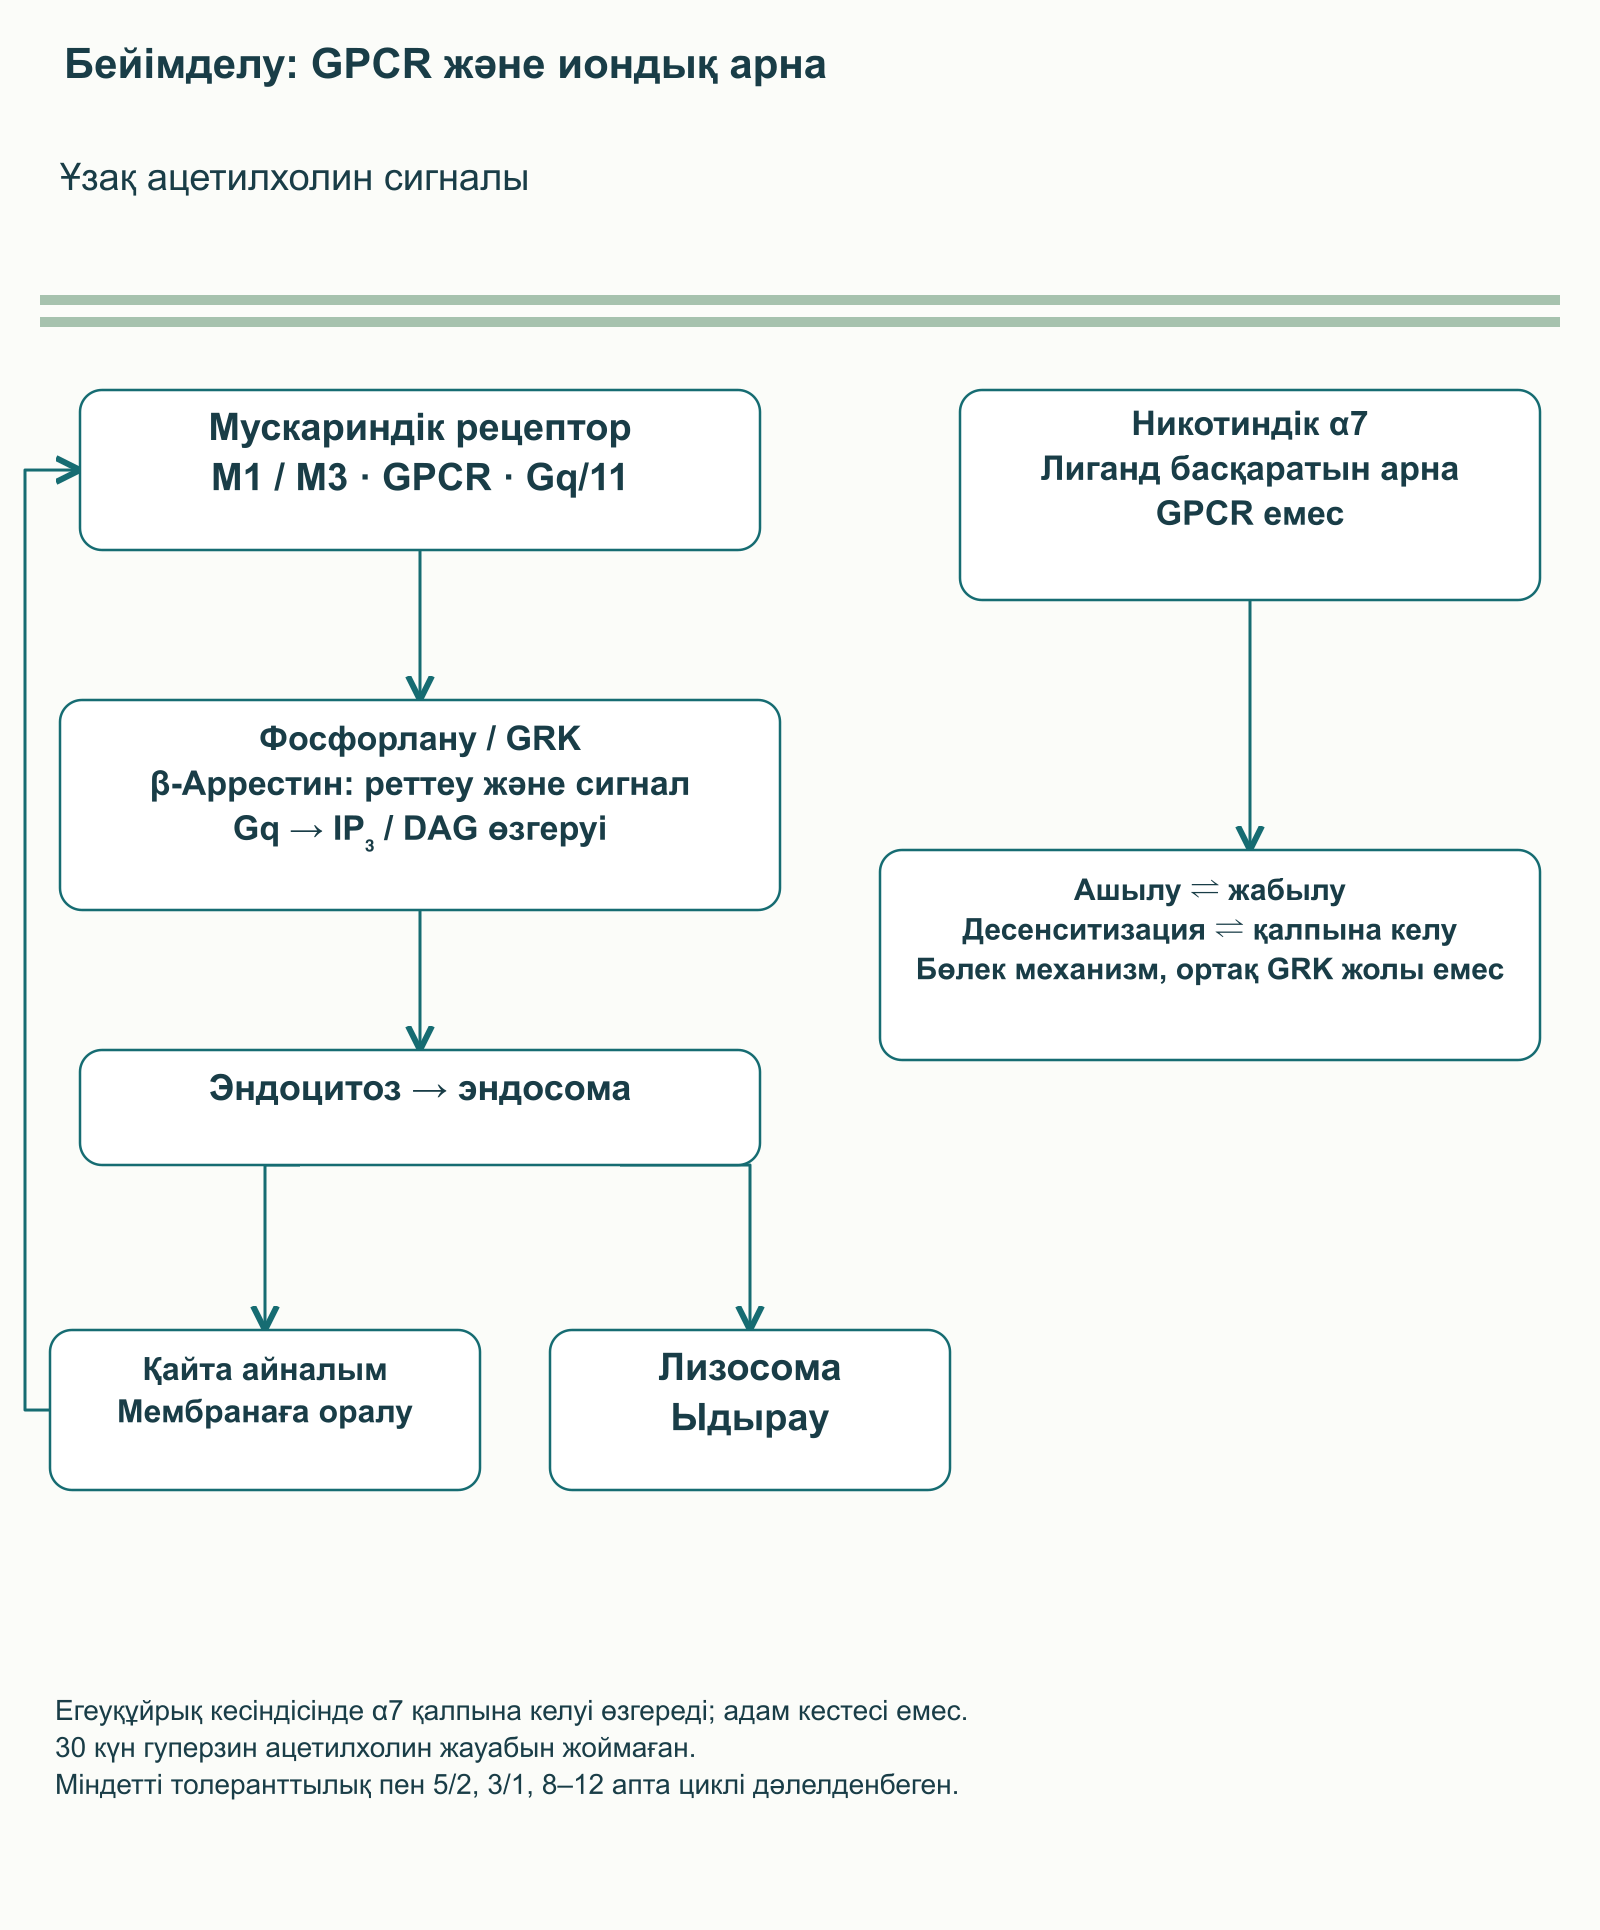
Холинергиялық сигналдың ұзақ өзгеруі рецептор сезімталдығын өзгертеді, бірақ әр отбасы әртүрлі бейімделеді. Мускариндік рецепторлар — GPCR: кей жағдайда фосфорлану, GRK және β-аррестинмен әрекеттесу сигнал өзгерісі мен эндоцитозға қатысады. Рецептор бетке қайта оралуы не ыдырауы мүмкін. Аррестиннің өз сигналдық міндеттері де бар, сондықтан оны жай өшіргіш деу жеткіліксіз.
Никотиндік α7 — лиганд басқаратын иондық арна, мускариндік GPCR емес. Оның десенситизациясын әмбебап GRK–аррестин тізбегімен көрсетуге болмайды. Егеуқұйрық гиппокампы кесінділерінде AChE тежегіштері ацетилхолин әсерінің ұзақтығы мен α7 қалпына келуін өзгерткен; бұл адамдағы тұрақты үзіліс кестесін дәлелдемейді. Оның үстіне егеуқұйрықта 30 күн гуперзин қабылдау байқалған жасушадан тыс ацетилхолин артуын жоймаған. Демек, міндетті клиникалық толеранттылық дәлелденген емес.
«Бес күн қабылдау, екі күн демалу», апталарды кезектеу немесе 8–12 аптадан кейін міндетті үзіліс жасау үшін тікелей негіз жеткіліксіз. Көтерімділік не болжанған пайда өзгерсе, маман диагнозды, қосымша дәрілерді, өнімді және бастапқы мақсатты қайта қарайды. Дозаны өздігінен арттыру не циклдеу тиімділік белгісіздігін шешпейді.
Қауіпсіздік және әрекеттесулер
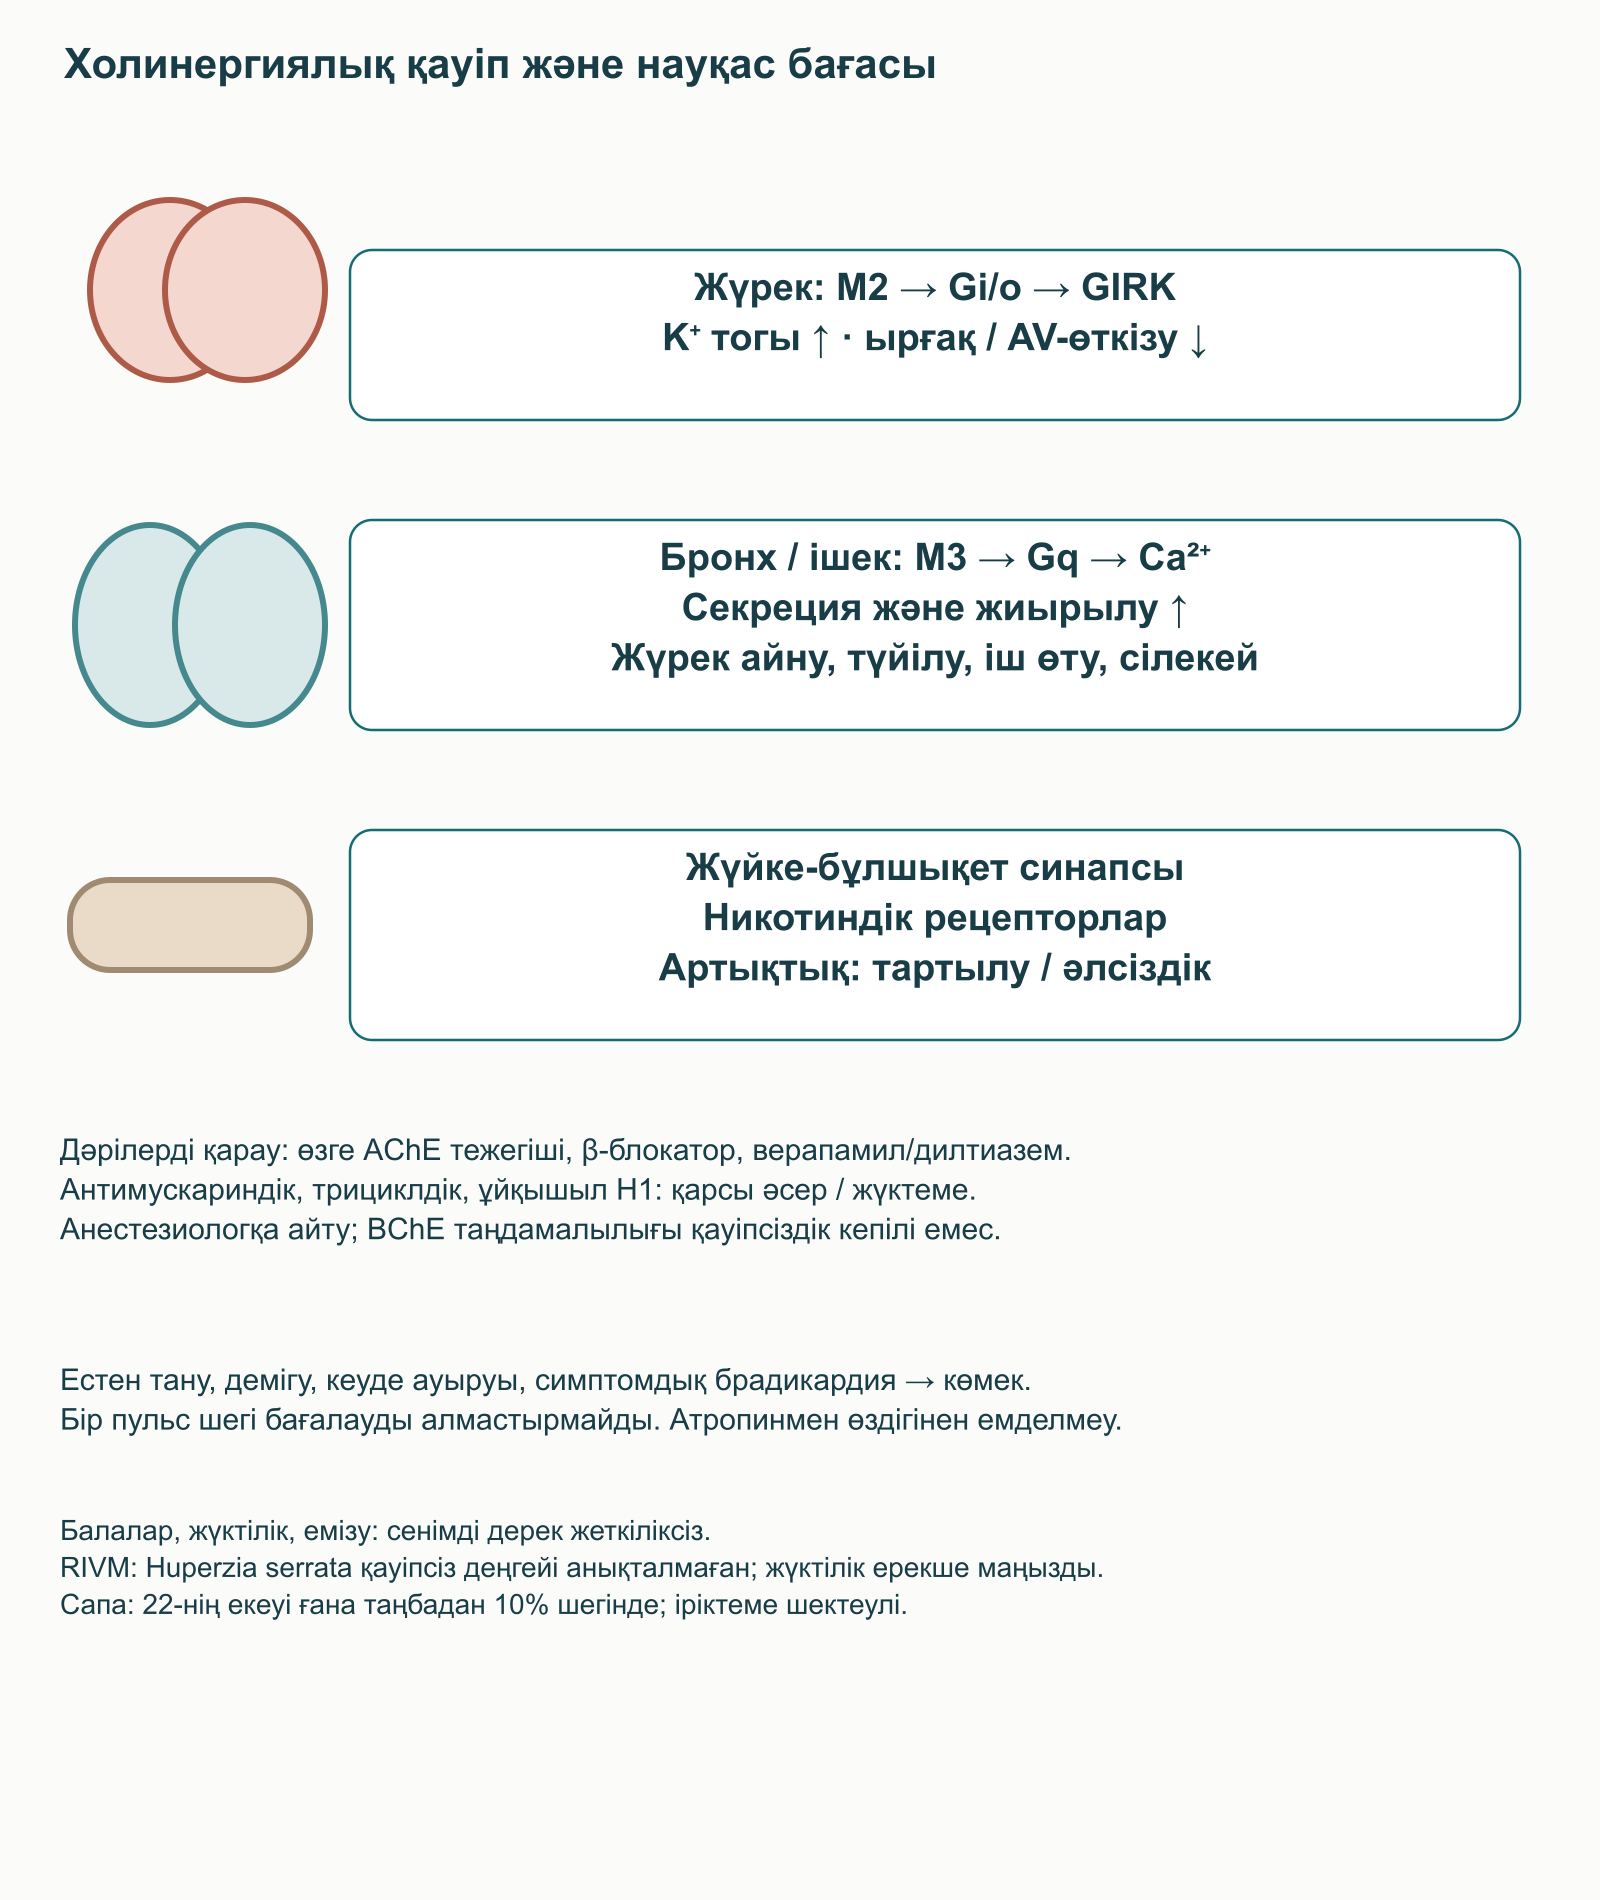
Жағымсыз әсерлер холинергиялық берілістің күшеюіне сай: жүрек айну, құсу, іш өту, түйілу, сілекей ағу, терлеу және ұйқы бұзылуы көтерімділікті шектеуі мүмкін. M2 және Gi/o арқылы ацетилхолин GIRK калий тогын арттырып, жүрек ырғағын және атриовентрикулярлық өткізуді баяулата алады. M3/Gq/Ca²⁺ секрецияны және тегіс бұлшықет, соның ішінде бронхтар, жиырылуын күшейтеді; айқын артықтық никотиндік жүйке-бұлшықет белгілерін де тудыруы мүмкін. AChE таңдамалылығы қауіптерді жоймайды.
| Біріктіру | Сақтық себебі | Маман анықтайтын жайт |
|---|---|---|
| Өзге холинэстераза тежегіштері | Холинергиялық әсердің қосылуы | Донепезил, ривастигмин не галантаминмен қайталану; дәрігер бағасынсыз қосу негізсіз |
| β-Блокаторлар | Жүрек ырғағының қосымша баяулауы | Метопролол, бисопролол, атенолол және басқалары; белгілер, бастапқы пульс пен өткізгіштік |
| Верапамил не дилтиазем | Ырғақ пен өткізуді баяулату әсерлерінің қосылуы | Көрсетілім, өзге баяулатушы дәрілер, клиникалық баға мен ЭКГ қажеттігі |
| Атропин, скополамин және антимускариндік дәрілер | Фармакодинамикалық қарсы әсер | Тағайындау себебі; улануда атропин — медициналық араласу, қоспаны үйде өтеу амалы емес |
| Трициклдік антидепрессанттар және ұйқышылдық беретін H1-антигистаминдер | Антихолинергиялық жүктеме танымды нашарлатуы мүмкін | Толық дәрі тізімі мен емді қайта қарау; гуперзин әмбебап «у қайтарғыш» емес |
| Сукцинилхолин және анестезия | Класс үшін анестезиялық әрекеттесулер сипатталған; гуперзиннің тікелей дерегі аз | Анестезиологқа өнімді, дозаны және соңғы қабылдауды айту; BChE сақталуы қауіп жоқтығына кепіл емес |
Бұл механизмдік және класс ескертулері әр біріктіруге бірдей қауіп шамасын белгілемейді. Брадикардия, синустық түйін әлсіздігі, AV-өткізу бұзылысы, астма не ӨСОА, ойық жара, несеп шығу қиындығы және құрысу жағдайларында ерекше баға қажет. Нақты тіркелген өнім нұсқаулығынсыз оларды абсолютті қарсы көрсетілімдердің бірыңғай халықаралық тізімі деуге болмайды. Жүктілік, емізу және балалардың өздігінен қолдануы үшін сенімді дерек жеткіліксіз. RIVM Huperzia serrata препараттарын, әсіресе жүктілікте, бөлек ескертеді және қауіпсіз тұтыну деңгейін анықтамаған.
Естен тану, айқын әлсіздік, демігу, кеуде ауыруы немесе симптомдық баяу ырғақ дер кезінде медициналық көмек қажет етеді. Мысалы, минутына 55 деген бір шек белгілерді, бастапқы жағдайды және ЭКГ-ны алмастырмайды. Шағын қысқа сынақта ауыр оқиға болмауы сирек не ұзақ мерзімді асқынуларды жоққа шығармайды. Өнім сапасы маңызды: талданған 22 қоспаның тек екеуінде мөлшер таңбадағыдан 10% шегінде болған. Іріктеме шектеулі, бірақ таңбаның доза өлшемі емес екенін көрсетеді.
Білімді маман тәжірибесінде қолдану
Жадқа шағым кезінде «ноотроптық» механизм тізімінен емес, клиникалық сұрақтан бастаған пайдалы. Маман өзгерістің басталуы мен қарқынын, күнделікті өмірге ықпалын, ұйқыны, көңіл күйді, алкоголь мен басқа заттарды, сезім мүшелері бұзылыстарын және антихолинергиялық дәрілерді анықтайды. Осы көрініс тексеру мен емді бағыттайды. Тұрақты немесе үдемелі төмендеу, жедел шатасу мен ошақтық белгілер тиісті медициналық жолды қажет етеді; қоспа оны кешіктірмеуге тиіс.
Науқас гуперзин қабылдап жүрсе, тазартылған затты, Huperzia serrata сығындысын және комбинацияны ажыратып, белсенді мөлшерді, бірлікті, өндірушіні, құрамды және дәрі қайталануын жазу маңызды. Пульс, белгілер, бүйрек қызметі және ЭКГ көрсетілімі ойдан шығарылған әмбебап хаттамамен емес, жағдайға сай бағаланады. Пайда туралы әңгіме күнделікті нақты функцияны сақтау сияқты мақсат пен алдын ала таңдалған бақылауға сүйенеді. Бір тест балының өзгеруі жаттығу әсері, күй ауытқуы немесе өлшеу ерекшелігін көрсетуі мүмкін.
Мақаланы оқығанда маман іріктеме адамнан ба, қандай өнім мен жол қолданылған, экспозиция салыстырыла ма, негізгі нәтиже қандай және функция жақсарды ма деп сұрайды. Гуперзинде бұл маңызды: сенімді AChE механизмі теріс негізгі клиникалық нәтижені жоймайды, ал NMDA, Nrf2, APP және митохондрия деректері дәлелденген ми қалпына келуіне айналмайды. Деменция жөніндегі қазіргі ұсыныстар өзге стандартты дәрілерді қамтиды; гуперзин шешімі дәлелді, өнім мәртебесін және жеке қауіпті бағалауды талап етеді. Негізді ұстаным — әмбебап нейропротекция уәдесінсіз және зертханалық концентрацияны адам рецептіне көшірмей, перспективалы механизмдерді зерттеу.
Жиі қойылатын сұрақтар
Адамда нейропротекция дәлелденген бе?
AChE қайтымды тежелуі анықталған. NMDA, Nrf2, APP және митохондрия деректері көбіне тәжірибелік; ірі сынақтың негізгі нәтижесі теріс.
Неге IC₅₀ таблетка дозасына тең емес?
IC₅₀ сынақ жағдайына жатады. Доза, плазмалық деңгей, мидағы бос концентрация мен пайда бөлек.
Міндетті циклдер мен холин керек пе?
Тұрақты үзіліс не міндетті холин доноры үшін тікелей дерек жеткіліксіз. Бейімделу әмбебап кесте бермейді.
Донепезилге қосуға бола ма?
Өздігінен біріктіру негізсіз: холинергиялық әсер қосылуы мүмкін. Дәрігер дәрілерді, белгілер мен баяу ырғақ қаупін бағалайды.
Қандай белгілер көмек қажет етеді?
Естен тану, айқын әлсіздік, демігу, кеуде ауыруы және симптомдық баяу ырғақ дер кезінде баға қажет етеді. Бір пульс шегі жеткіліксіз.
Дереккөздер
- RCSB PDB. HUP: Huperzine A, chemical component and stereochemical descriptors.
- Raves ML et al. Structure of acetylcholinesterase complexed with the nootropic alkaloid, (−)-huperzine A. Nature Structural Biology. 1997.
- RCSB PDB. 1VOT: Torpedo californica acetylcholinesterase complexed with huperzine A, 2.5 Å.
- Cheung J et al. Structures of human acetylcholinesterase in complex with pharmacologically important ligands. Journal of Medicinal Chemistry. 2012.
- RCSB PDB. 4EY5: human acetylcholinesterase complexed with huperzine A, 2.30 Å.
- Dvir H et al. X-ray structures of Torpedo californica acetylcholinesterase complexed with (+)-huperzine A and (−)-huperzine B: structural evidence for an active site rearrangement. Biochemistry. 2002.
- Ashani Y et al. Mechanism of inhibition of cholinesterases by huperzine A. Biochemical and Biophysical Research Communications. 1992.
- Ashani Y et al. Role of tyrosine 337 in the binding of huperzine A to the active site of human acetylcholinesterase. Molecular Pharmacology. 1994.
- Identification of amino acid residues involved in the binding of Huperzine A to cholinesterases. 1995.
- Sussman JL et al. Atomic structure of acetylcholinesterase from Torpedo californica: a prototypic acetylcholine-binding protein. Science. 1991.
- Pharmacokinetics of tablet huperzine A in six volunteers. Acta Pharmacologica Sinica.
- Pharmacokinetics and tolerability of oral dosage forms of huperzine a in healthy Chinese male volunteers: a randomized, single dose, three-period, six-sequence crossover study. 2017.
- Lin JH et al. Evaluation of the in vitro and in vivo metabolic pathway and cytochrome P450 inhibition/induction profile of Huperzine A. 2016.
- Abcb1a but not Abcg2 played a predominant role in limiting the brain distribution of Huperzine A in mice. Food and Chemical Toxicology. 2017.
- The scoop on brain health dietary supplement products containing huperzine A. Clinical Toxicology. 2020.
- Wang R et al. Modulation of NMDA receptor by huperzine A in rat cerebral cortex. Acta Pharmacologica Sinica. 1999.
- Zhang JM, Hu GY. Huperzine A, a nootropic alkaloid, inhibits N-methyl-D-aspartate-induced current in rat dissociated hippocampal neurons. Neuroscience. 2001.
- Hardingham GE et al. Extrasynaptic NMDARs oppose synaptic NMDARs by triggering CREB shut-off and cell death pathways. Nature Neuroscience. 2002.
- Zhou J, Tang XC. Huperzine A attenuates apoptosis and mitochondria-dependent caspase-3 in rat cortical neurons. FEBS Letters. 2002.
- Gao X et al. Huperzine A attenuates mitochondrial dysfunction in beta-amyloid-treated PC12 cells by reducing oxygen free radicals accumulation and improving mitochondrial energy metabolism. Journal of Neuroscience Research. 2006.
- Xiao XQ et al. Huperzine A attenuates amyloid beta-peptide fragment 25–35-induced apoptosis in rat cortical neurons via inhibiting reactive oxygen species formation and caspase-3 activation. Journal of Neuroscience Research. 2002.
- Zheng CY et al. Huperzine A attenuates mitochondrial dysfunction after middle cerebral artery occlusion in rats. Journal of Neuroscience Research. 2008.
- Karch J et al. Inhibition of mitochondrial permeability transition by deletion of the ANT family and CypD. Science Advances. 2019.
- Mei Z et al. Huperzine A protects against traumatic brain injury through anti-oxidative effects via the Nrf2-ARE pathway. Iranian Journal of Basic Medical Sciences. 2021.
- Protective properties of Huperzine A through activation Nrf2/ARE-mediated transcriptional response in X-rays radiation-induced NIH3T3 cells. 2018.
- Huperzine A regulates amyloid precursor protein processing via protein kinase C and mitogen-activated protein kinase pathways in neuroblastoma SK-N-SH cells over-expressing wild type human amyloid precursor protein 695. Neuroscience. 2007.
- Huperzine A activates Wnt/β-catenin signaling and enhances the nonamyloidogenic pathway in an Alzheimer transgenic mouse model. 2011.
- Wang ZF et al. Effects of huperzine A on memory deficits and neurotrophic factors production after transient cerebral ischemia and reperfusion in mice. Pharmacology Biochemistry and Behavior. 2006.
- Rafii MS et al. A phase II trial of huperzine A in mild to moderate Alzheimer disease. Neurology. 2011.
- Yang G et al. Huperzine A for Alzheimer’s Disease: A Systematic Review and Meta-Analysis of Randomized Clinical Trials. PLoS ONE. 2013.
- Li J et al. Huperzine A for Alzheimer’s disease. Cochrane Database of Systematic Reviews. 2008.
- Xing SH et al. Huperzine A in the Treatment of Alzheimer’s Disease and Vascular Dementia: A Meta-Analysis. 2014.
- Xu ZQ et al. Treatment with Huperzine A improves cognition in vascular dementia patients. Cellular and Molecular Neurobiology. 2012.
- Sun QQ et al. Huperzine-A capsules enhance memory and learning performance in 34 pairs of matched adolescent students. 1999.
- Liang YQ, Tang XC. Comparative studies of huperzine A, donepezil, and rivastigmine on brain acetylcholine, dopamine, norepinephrine, and 5-hydroxytryptamine levels in freely-moving rats. Acta Pharmacologica Sinica. 2006.
- Fayuk D, Yakel JL. Regulation of nicotinic acetylcholine receptor channel function by acetylcholinesterase inhibitors in rat hippocampal CA1 interneurons. Molecular Pharmacology. 2004.
- The M3-muscarinic receptor regulates learning and memory in a receptor phosphorylation/arrestin-dependent manner. 2010.
- DailyMed. Donepezil hydrochloride tablets: prescribing information; cholinergic class risks and interactions. Revised June 2025.
- RIVM. Risk assessment of herbal preparations containing Huperzia serrata. Letter report 2024-0028.
- NICE. Dementia: assessment, management and support for people living with dementia and their carers. NG97, recommendations.
- Tang XC, Han YF. Pharmacological profile of huperzine A, a novel acetylcholinesterase inhibitor from Chinese herb. CNS Drug Reviews. 1999.
- Wang R et al. Progress in studies of huperzine A, a natural cholinesterase inhibitor from Chinese herbal medicine. Acta Pharmacologica Sinica. 2006.
- Colovic MB et al. Acetylcholinesterase inhibitors: pharmacology and toxicology. Current Neuropharmacology. 2013.
- Giacobini E. Cholinesterase inhibitors: new roles and therapeutic alternatives. Pharmacological Research. 2004.
- Hardingham GE, Bading H. Synaptic versus extrasynaptic NMDA receptor signalling: implications for neurodegenerative disorders. Nature Reviews Neuroscience. 2010.
- M3 muscarinic acetylcholine receptor-mediated signaling is regulated by distinct mechanisms. 2008.
Байланысты материалдар
- Альфа-GPC және цитиколин: ацетилхолин, мембраналар және клиника
- Холин ағзада: бауыр, ацетилхолин, жад және TMAO
- Ағзадағы B5 дәрумені: коэнзим A, энергетикалық алмасу, тері, жүйке жүйесі және қоспалардың пайда шегі
- Кофеин: сергектік, ұйқы, спорт және тұтынудың қауіпсіз режимі
- Коэнзим Q10: митохондриялар, статиндер, убихинол және қоспалардың нақты дәлелдері