L-треонат магнію: ГЕБ, NMDA, синапси й дані в людей — NutriFit
L-треонат магнію: доступ до мозку, функція синапсів і межі клінічних доказів
Як L-треонат магнію пов’язаний із магнієм мозку, NMDA-рецепторами та синаптичною пластичністю. Хімія сполуки, транспорт крізь бар’єри, дослідження пам’яті у тварин і людей, дозування й безпека без перебільшення доказів.
Магній у нервовій системі виконує дві ролі, які легко сплутати. Він потрібен клітині для роботи з АТФ, нуклеїновими кислотами й ферментами, але водночас фізіологічно регулює збудливість: за негативного мембранного потенціалу йон Mg²⁺ блокує пору NMDA-рецептора. Тому одного вимірювання концентрації магнію в крові недостатньо, щоб відповісти, чи може добавка магнію впливати на пам’ять. Потрібно з’ясувати, чи змінюється доступний магній у мозку, як це пов’язано із синапсами та чи можна перенести експериментальні результати на людей.
L-треонат магнію привернув увагу після дослідів, у яких тривале підвищення рівня магнію в мозку тварин супроводжувалося змінами синаптичної пластичності та результатів виконання завдань на навчання. Magtein® — комерційна назва сировини цієї солі; це не назва нейромедіатора і не доказ особливого шляху доставки. У цій статті розглянуто хімію комплексу, транспорт через бар’єри, роботу синапсів і обмеження невеликих клінічних досліджень. Важливо розрізняти біофізику Mg²⁺, результати досліджень на гризунах і поки що обмежені результати в людей.
Від молекули в капсулі до магнію в мозку
Хімія L-треонату та походження ліганду
L-треонат магнію зазвичай описують як комплекс одного катіона з двома аніонами L-треонату: Mg(C4H7O5)2. За молярної маси близько 294,5 г/моль на елементарний магній припадає 24,305/294,5≈8,25% маси ідеалізованої безводної сполуки. Реальний продукт може містити воду та допоміжні речовини, тому дозу слід визначати за кількістю елементарного магнію на етикетці, а не лише за масою порошку. L-треонова кислота має два хіральні центри; у джерелі для 2,3,4-тригідроксибутанової кислоти вказано конфігурацію (2R,3S). Карбоксильні та сусідні гідроксильні групи можуть координувати Mg²⁺, змінюючи розчинність і рівновагу дисоціації. У воді вільний Mg²⁺ гідратований: у його першій оболонці зазвичай розглядають шість молекул води. Ці хімічні властивості допомагають обговорювати всмоктування, але не доводять, що неушкоджений комплекс проходить крізь гематоенцефалічний бар’єр (ГЕБ).
L-треонат пов’язаний із розпадом аскорбінової кислоти. Аскорбат окиснюється до дегідроаскорбату; розкриття лактонного кільця утворює 2,3-дикетогулонат, з якого серед інших продуктів може виникати треонат. Схематично цей шлях записують як L-аскорбат→дегідроаскорбат→2,3-дикето-L-гулонат→L-треонат. Проміжний 2,3-дикетогулонат може розпадатися кількома шляхами, зокрема з утворенням оксалату; наведене рівняння показує лише гілку, пов’язану з треонатом, і не є повним балансом вуглецю. Це походження пояснює наявність ліганду в біологічних системах, але не доводить ані безумовної безпеки за будь-якої дози, ані існування спеціального переносника цілого комплексу. Розпад аскорбату має й інші гілки; його не слід подавати як єдиний стехіометричний шлях до треонату.
Два бар’єри та відкрите питання механізму
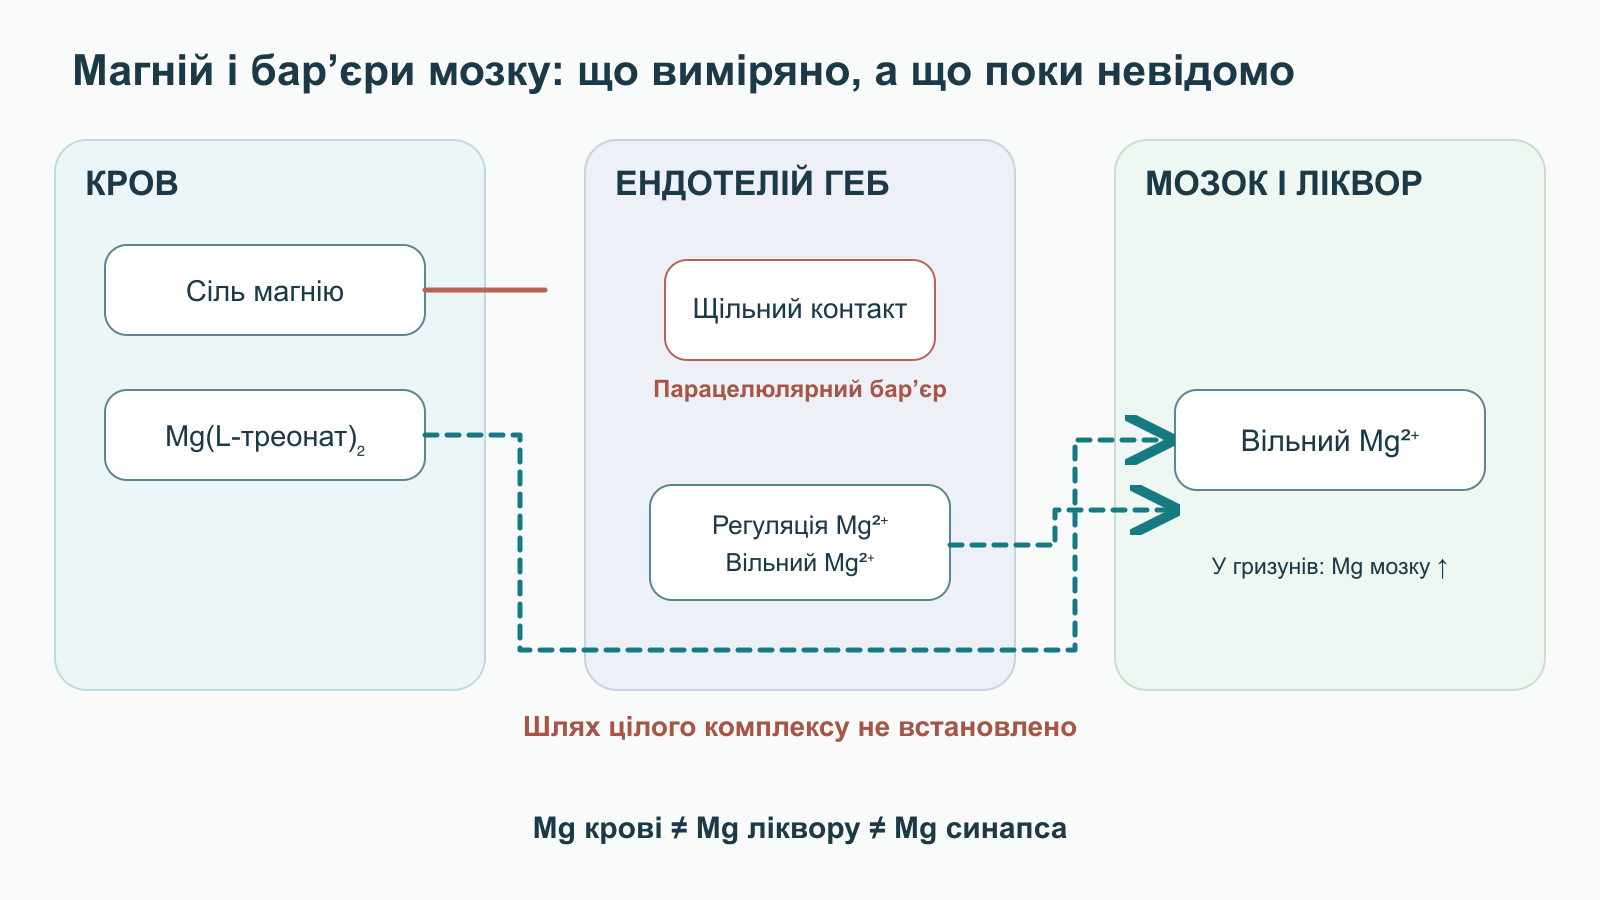
Ендотелій мозкових капілярів з’єднаний щільними контактами за участю claudin-5, occludin і білків ZO; разом із перицитами та відростками астроцитів він утворює нейросудинну одиницю. Щільні контакти різко обмежують проходження гідратованих йонів між клітинами. Другий інтерфейс — судинне сплетення, яке регулює склад ліквору. Отже, концентрації Mg²⁺ у плазмі, лікворі та тканині мозку — це три різні величини. Навіть зафіксована зміна в лікворі не є вимірюванням вільного магнію в кожному синапсі.
У регуляції клітинного магнію беруть участь канал-кіназа TRPM7, MagT1, обмінник SLC41A1 і білки родини CNNM, зокрема CNNM2 та CNNM4, які тут розглянуто. Саморегуляція входження йонів та їх виведення допомагає пояснити, чому значне підвищення Mg²⁺ у плазмі не обов’язково спричиняє пропорційне зростання його рівня в лікворі. В оригінальній схемі також названо CaSR і ARL15 як регуляторні кандидати. Їхні функції досліджували в різних тканинах і експериментальних системах, але з цього не випливає готовий ланцюг: «MCT1 переносить Mg(L-треонат)₂ крізь ГЕБ, а потім MagT1 вивільняє його в мозку». Наявні дані не доводять такого шляху для цілого комплексу; MCT1 і SMCT1 не слід називати підтвердженими переносниками Mg-треонату. Так само CaSR, ARL15 або CNNM2 не утворюють тут установленої послідовності транспортних кроків. Робоче питання полягає в тому, які концентрації вільного та зв’язаного магнію виникають після всмоктування і як змінюється їх обмін із центральною нервовою системою. Щоб обґрунтувати запропонований «троянський механізм», потрібно виміряти хімічні форми в крові та по обидва боки ендотелію, ідентифікувати переносник, конкурентно заблокувати транспорт і визначити потік. Самої зміни загального Mg у лікворі недостатньо. Судинне сплетення потребує окремої уваги: його епітелій взаємодіє з ліквором інакше, ніж капілярний ендотелій з інтерстиціальним простором, тому результати для цих двох інтерфейсів не можна поєднувати без додаткових вимірювань.
Експерименти Slutsky та співавторів показали, що підвищення магнію в мозку тварин за допомогою L-треонату супроводжувалося поліпшенням кількох показників пам’яті та синаптичної пластичності. Це підстава й надалі досліджувати цю форму, але не підстава приписувати будь-якій іншій сполуці рівно нульове проникнення в мозок. В оригінальній порівняльній таблиці відсотки біодоступності, значення Mg²⁺ у лікворі за днями та морфометричні ефекти для оксиду, хлориду, цитрату й бісгліцинату були наведені так, наче їх отримали в одному прямому досліді. Надані праці не встановлюють такої повної порівнюваної матриці; використовувати її для клінічного вибору з точністю до десятих часток відсотка було б помилкою.
Вимірюваний рівень
Що можна встановити
Чого показник не доводить
Елементарний магній у дозі
Кількість Mg²⁺, яку містить продукт
Скільки його досягне мозку
Магній крові
Системний стан і деякі питання безпеки
Концентрацію в синаптичній щілині
Магній ліквору
Зміщення в одному з центральних компартментів
Рівномірну зміну в усіх відділах мозку
Синаптичні маркери й поведінка гризунів
Зв’язок експозиції з біологічною відповіддю в моделі
Клінічне поліпшення пам’яті в людей
Коли змінюється структура синапсу
Гіпокамп і префронтальна кора
Гіпокамп — не однорідний «центр пам’яті». Вхідні сигнали проходять через зубчасту звивину та поля CA3 і CA1; ці мережі беруть участь у розрізненні подібних подій, поєднанні елементів досвіду та подальшій консолідації. Медіальна префронтальна кора підтримує активне утримання інформації, вибір дії та контроль емоційних реакцій. У дослідах із магнієм ці ділянки важливі як місця оцінювання пластичності, а не як доведені точки вибіркового накопичення добавки в людей. Відсутність виміряного ефекту в іншій ділянці також не доводить, що там його цілком немає.
Пресинаптичний запас і постсинаптичний каркас
Синаптофізин — білок мембрани синаптичних везикул, тому його забарвлення допомагає оцінювати пресинаптичні закінчення. PSD-95, закодований геном DLG4, організує білковий каркас постсинаптичної щільності й утримує сигнальні комплекси поблизу рецепторів AMPA та NMDA. У дослідженнях на тваринах підвищений рівень магнію в мозку зіставляли зі змінами цих маркерів і кількості функціональних контактів. Однак посилення забарвлення не дорівнює певному відсотку нових зрілих синапсів, а форма грибоподібного шипика не гарантує кращої поведінки. Заявлені в оригінальному тексті універсальні збільшення синаптофізину на 36–44% та PSD-95 на 32–41% не можна узагальнювати для всіх ділянок, термінів і доз.
В оригінальних експериментах застосовували морфометрію, імуномічення та електрофізіологічні відповіді; ці методи відповідають на різні запитання. Точка, позитивна на синаптофізин, може відображати наявність везикулярної мембрани, а PSD-95 — організацію постсинаптичної щільності. Натомість парний функціональний синапс потребує узгодженої локалізації пре- і постсинаптичних структур та відтворюваного струму. Тому навіть зростання двох маркерів не замінює підрахунку функціональних контактів із контролем розміру популяції нейронів і об’єму тканини.
Пресинаптичні везикули перебувають у різних функціональних станах. Резервний пул пов’язаний із цитоскелетом, пул повторного циклу бере участь у повторних циклах екзоцитозу, а пул швидкого вивільнення (readily releasable pool, RRP) охоплює пристиковані й підготовлені до швидкого викиду везикули. Коли Ca²⁺ входить у закінчення, комплекс SNARE, зокрема за участю везикулярного VAMP2/синаптобревіну, забезпечує злиття мембран і вивільнення глутамату. Наведений у джерелі приблизний поділ — резервний пул 80–90%, повторного циклу 10–15% і негайного вивільнення 1–2% — залежить від типу синапсу та методу вимірювання: це ілюстрація порядку величин, а не сталі частки в мозку людини. У модельних дослідженнях поєднання доступнішого пулу зі змінами ймовірності вивільнення розглядають як можливий спосіб посилити відповідь на серію імпульсів, зберігаючи низький фоновий шум. Розмір RRP зазвичай оцінюють серіями стимулів або гіпертонічною сахарозою та виводять із сумарного заряду вивільнення з поправкою на ймовірність викиду й повторний цикл. Стимуляція близько 40 Гц, згадана в оригінальному джерелі, дає змогу дослідити передачу за високої частоти, але результат залежить від протоколу й не є вимірюванням кількості везикул у живому мозку людини. Цю гіпотезу не слід перетворювати на твердження, що прийом певної капсули збільшить RRP людини на фіксований відсоток.
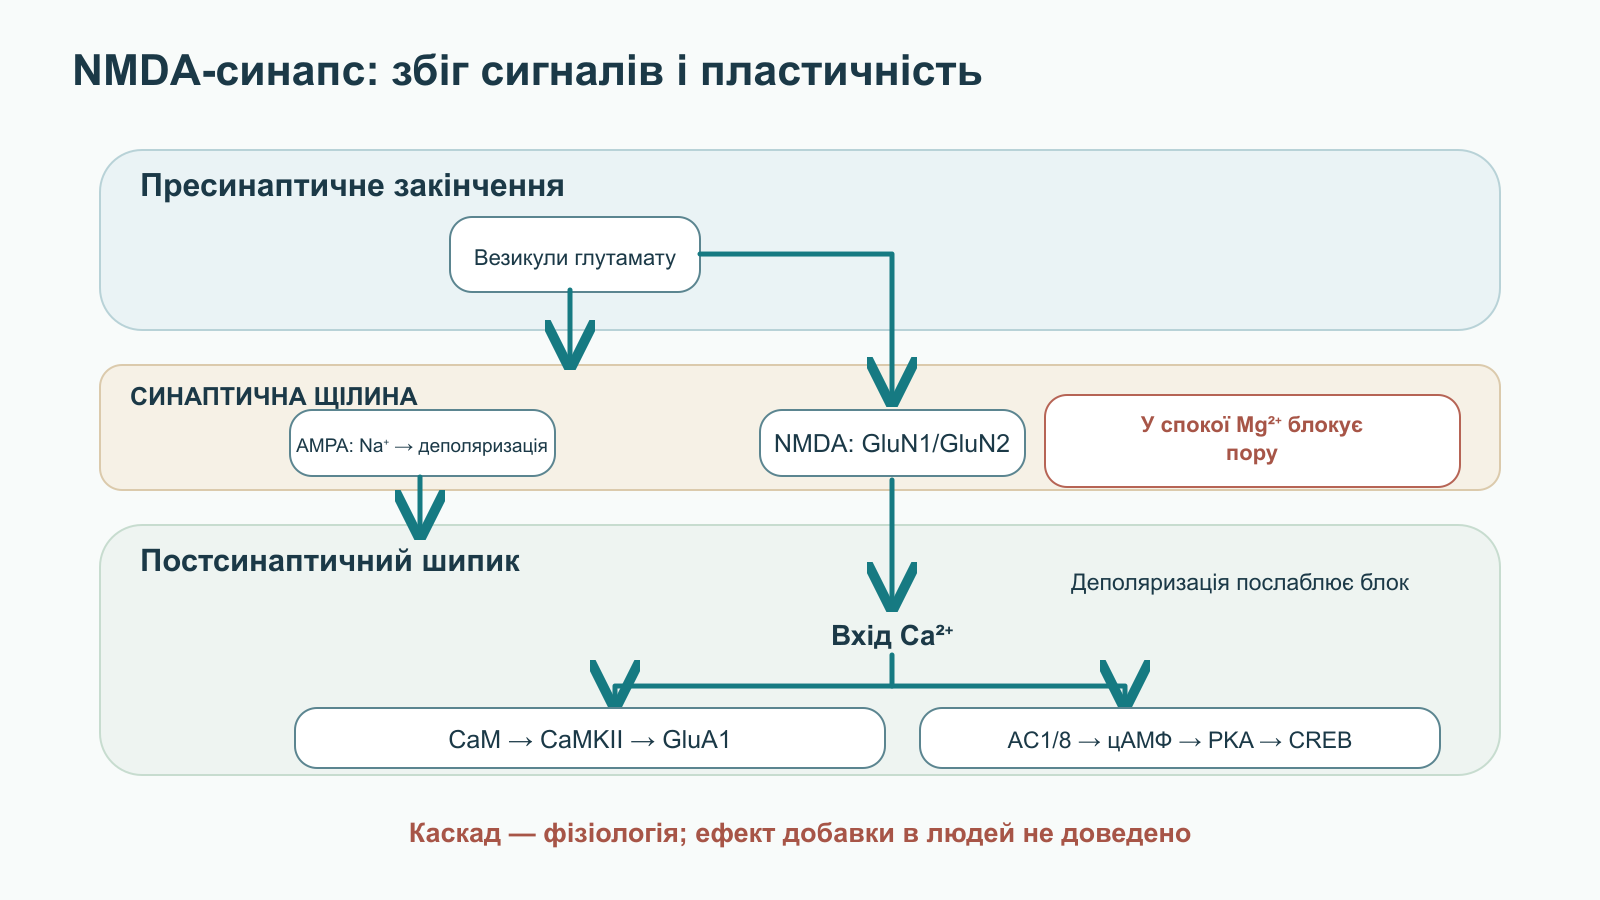
Зв’язок між пресинаптичним закінченням і шипиком найкраще розглядати як послідовність зі зворотним зв’язком: везикула вивільняє глутамат, рецептор AMPA змінює потенціал мембрани, рецептор NMDA пропускає Ca²⁺ за збігу необхідних умов, а внутрішньоклітинна сигналізація змінює організацію PSD-95 і доступність рецепторів. Саме ця послідовність пояснює, чому морфологію, електрофізіологію та поведінку потрібно вимірювати окремо. Вона також не зводить пам’ять до одного білка або одного типу шипиків.
Магнієва «пробка» і вікно пластичності
Як NMDA-рецептор розпізнає збіг сигналів
NMDA-рецептор — це гетеротетрамерний йонний канал. Для його активації глутамат має зв’язатися з GluN2, а гліцин або D-серин — із GluN1, однак за негативного мембранного потенціалу струм через канал обмежує Mg²⁺. Консервативні залишки аспарагіну в ділянці M2 пори, які часто обговорюють як N-site (у джерелі позначений Asn598), беруть участь у потенціалозалежному блокуванні; класичні досліди Nowak і Mayer показали цю залежність задовго до появи L-треонату як добавки. «Магнієва пробка» — зручний образ, але він не означає, що рецептор герметично закритий за кожного потенціалу спокою або що струм кальцію завжди дорівнює нулю.
Коли сусідні рецептори AMPA проводять Na⁺, мембрана деполяризується, імовірність блокування Mg²⁺ зменшується, а через активований канал NMDA може входити Ca²⁺. Цей йон стає внутрішньоклітинним сигналом, який може змінити силу синаптичного зв’язку. Поняття «детектора збігу» означає одночасну наявність пресинаптичного вивільнення та постсинаптичної деполяризації. В електрофізіології блок характеризують кривою струм–напруга за заданих позаклітинних концентрацій Mg²⁺ та агоністів. Якщо експеримент змінює Mg²⁺, потрібно також ураховувати стан мембрани, доступність гліцину або D-серину та частки різних субодиниць; інакше зміну струму не можна приписати лише «пробці». Механізм не зводиться до максимального входження кальцію: тривалий або просторово невідповідний кальцієвий сигнал може пошкодити клітину, а фізіологічна відповідь залежить від часу, місця та контексту активності.
Звідси виникла гіпотеза, що зміна доступного Mg²⁺ може переналаштовувати співвідношення сигналу й фону. Її не слід формулювати як гарантоване повне пригнічення спонтанного вивільнення глутамату або захист від будь-якої ексайтотоксичності. Якщо порушення регуляції кальцію спричиняє мітохондріальний стрес, відкриття пори проникності та активацію каспаз, це окремий патологічний шлях, а не доведений клінічний ефект L-треонату. Прямі агоністи рецепторів, ампакіни та рацетами також не утворюють одну порівняльну групу з однаковим відомим ризиком: оригінальна стаття протиставляла їх магнію надто категорично.
GluN2A, GluN2B і каскад LTP
Субодиниці GluN2A і GluN2B відрізняються кінетикою, регуляцією та розподілом у мозку, що розвивається, і зрілому мозку. Рецептори з GluN2B часто повільніше деактивуються, тому вікно інтеграції сигналу може бути довшим. Однак їх не можна просто назвати «ювенільним типом», а GluN2A — єдиним «дорослим»: обидві субодиниці співіснують у складних комбінаціях. Наведені в оригінальному джерелі значення 30–50 і 200–400 мс є лише прикладами кінетики, залежної від експериментальних умов, а не універсальним часом відкриття каналів in vivo.
У моделях на тваринах підвищений рівень магнію в мозку досліджували разом з експресією та функцією GluN2B. Праця Tang та співавторів про генетичну надекспресію Grin2b показує значення цієї субодиниці для навчання мишей, але генетична модель не еквівалентна харчовій добавці. Тому твердження, ніби L-треонат відтворює «мишенят Дуги» або підвищує GluN2B на 60–80% у людей, необґрунтоване. Воно змішує різні втручання, тканини та кінцеві точки.
Після входження Ca²⁺ кальмодулін активує CaMKII. Автофосфорилювання CaMKIIα за Thr286 підтримує активність ферменту після короткого сигналу; фосфорилювання GluA1 за Ser831 і зміни переміщення рецепторів AMPA можуть посилювати передачу. Паралельно чутливі до кальцію аденілатциклази AC1/AC8 збільшують цАМФ, а PKA і CREB беруть участь у тривалішій перебудові експресії генів, зокрема в процесах за участю BDNF і білків ранньої відповіді c-Fos та Egr1/Zif268. Фосфорилювання CREB за Ser133 — один із вузлів цього шляху, який часто вимірюють, але воно не є унікальним маркером дії магнію. Послідовність Ca2+/CaM→CaMKII→GluA1 і гілка Ca2+→AC1/8→cAMP→PKA→CREB описують загальну фізіологію пластичності; ніхто не показав, що прийом L-треонату одночасно активує всі ці ланки в людей.
Довготривала потенціація (LTP) — це стійке посилення відповіді після певного патерну стимуляції; довготривала депресія (LTD) — стійке ослаблення зв’язку. LTD не є простим «стиранням старих спогадів»: вона бере участь у тонкому налаштуванні мережі й залежить, зокрема, від фосфатаз, серед яких кальциневрин. Зрізи гіпокампа дають змогу порівнювати ці процеси в контрольованих умовах, але навіть більша амплітуда LTP не перетворюється безпосередньо на роки «омолодження» людської пам’яті. Пізня фаза LTP залежить від транскрипції, синтезу білка та стабілізації шипика, тоді як для індукції потрібен конкретний часовий патерн, наприклад стимуляція theta-burst. Кальцієві сигнали різної амплітуди й тривалості можуть зміщувати баланс між кіназами та фосфатазами, тому підвищення магнію не обов’язково посилює кожну форму пластичності. Наведений в оригінальному джерелі приріст LTP на 40–60% без точного зазначення протоколу не є загальним клінічним фактом.
Що насправді дозволяють сказати дослідження в людей
MMFS-01: склад, тривалість і вимірювані результати
У подвійному сліпому рандомізованому дослідженні Liu та співавторів брали участь 44 людини середнього та старшого віку зі скаргами на погіршення когнітивних функцій. Протягом 12 тижнів порівнювали MMFS-01 і плацебо, оцінюючи батарею когнітивних завдань. В описі протоколу в оригінальному джерелі зазначено 1,5–2,0 г препарату на добу з межею за масою тіла 70 кг і вимірювання на шостому та дванадцятому тижнях. MMFS-01 описано як засіб на основі L-треонату магнію; без додаткового аналізу результат комбінації не можна приписати лише одному компоненту. Невелика вибірка, тривалість і особливості відбору обмежують перенесення результатів на профілактику деменції, хворобу Альцгеймера чи здорових молодих людей.
Автори повідомили про поліпшення деяких інтегральних показників порівняно з плацебо. В оригінальному тексті окремо заявлено скорочення часу TMT-B на 22,4%, збільшення композитного Z-бала до +0,66 та «омолодження» на дев’ять років. Останній показник є перерахунком результатів тестів за віковою нормативною кривою, а не зворотним розвитком біологічного старіння. У тій самій інтерпретації згадується різниця з плацебо близько 7,3 нормативного року: це похідна шкала тестів, а не клінічний показник відновлення нейронів. Точні величини залежать від обраного аналізу; подавати їх як гарантований ефект 2 г солі або як зміну структури мозку не можна. Окремі завдання на виконавчі функції та робочу пам’ять слід розглядати разом із повним набором результатів і довірчими інтервалами, а не виокремлювати найефектніший результат. Наприклад, частина B Trail Making Test вимірює швидкість поєднання послідовностей, що чергуються, але на час виконання також впливають зір, моторика та знайомство з процедурою. За повторного тестування потрібно враховувати ефект практики; композитний показник залежить від того, які тести включено та як їх зважено. Початкова інтерпретація «на 22,4% швидше» сама по собі не доводить зміни щільності синапсів.
Пізніше дослідження формули на основі Magtein® у здорових дорослих також розширює дані про людей, однак у ньому використовували конкретну багатокомпонентну формулу й окремі тести. Такі дослідження підтримують подальшу перевірку гіпотези, але не встановлюють клінічне показання для лікування помірного когнітивного порушення. Для фахової інтерпретації особливо важливо розрізняти дозу сполуки й дозу Mg²⁺, ураховувати інші інгредієнти та з’ясувати, чи була кінцева точка заздалегідь визначена як первинна.
Рівень доказів
Що спостерігали
Головне обмеження
Клітини та зрізи тканин
Струми рецепторів, маркери, LTP/LTD
Не відтворюють цілий організм і повсякденну пам’ять
Гризуни
Поведінка, магній мозку, структура синапсів
Дози, вид і завдання відрізняються від клінічних
Невеликі дослідження в людей
Окремі когнітивні тести протягом кількох тижнів
Не підтверджують профілактику деменції або стійку зміну синапсів
Згасання страху й сон — дві різні лінії доказів
Згасання страху — це навчання тому, що сигнал, який раніше передбачав небезпеку, більше її не передбачає; початковий спогад при цьому не обов’язково зникає. У роботі Abumaria та співавторів на тваринах підвищення магнію мозку досліджували разом із пластичністю інфралімбічної префронтальної кори та латеральної мигдалини. Зв’язки префронтальної кори з гальмівними вставними клітинами мигдалини є правдоподібною нейромережевою рамкою. Згасання залежить від взаємодії інфралімбічної та прелімбічної ділянок медіальної префронтальної кори, латеральної мигдалини та гальмівних вставних нейронів; реєстрація пластичності в одній ділянці не охоплює всю мережу. Умовна реакція страху в тварин не тотожна складній клінічній картині ПТСР, яка може включати повторне переживання травми, уникання та порушення сну. Тому ці дані не є випробуванням лікування ПТСР або генералізованої тривоги в людей, і не можна обіцяти, що добавка «вимкне» патологічний страх.
Сон важливий для консолідації пам’яті: стадія N3 характеризується повільними корковими коливаннями приблизно 0,5–4 Гц та координацією з іншими ритмами. Магній впливає на збудливість нейронів, але надані клінічні дані не встановлюють прямої алостеричної дії L-треонату на специфічну ділянку GABAₐ-рецептора, обов’язкової гіперполяризації таламуса, пригнічення АКТГ і кортизолу чи зростання N3 на 15–20% після вечірньої дози. Дослідження звичайного магнію при первинному безсонні в людей старшого віку стосувалося іншої солі й не доводить такого самого ефекту Magtein®. Пригнічення нічної активності гіпоталамо-гіпофізарно-надниркової осі, АКТГ і кортизолу залишається гіпотезою для цього конкретного втручання. Полісомнографія розрізняє N1, N2, N3 і REM за ЕЕГ та іншими сигналами; суб’єктивне враження «спав глибше» не замінює оцінювання частки N3. Навіть зафіксовану зміну відсотка однієї стадії потрібно зіставляти із загальною тривалістю сну, пробудженнями та денним функціонуванням. Якщо людина помічає зміну сну, її слід оцінювати окремо від рекламної обіцянки «дельта-сну без ранкової сонливості».
Доза, поєднання та межі безпеки
Скільки магнію містить грам солі
Для безводної формули розрахунок дає близько 82,5 мг елементарного Mg²⁺ на 1000 мг L-треонату. Це допомагає перевірити порядок величини, але виробник має вказати фактичний вміст елементарного магнію в порції. Маса солі та маса катіона відрізняються приблизно в дванадцять разів. Наведені нижче цифри — арифметичні орієнтири, а не сходинки лікування залежно від маси тіла чи ступеня когнітивних скарг.
Маса L-треонату магнію
Mg²⁺ за теоретичної частки 8,25%
Як тлумачити число
1000 мг
близько 83 мг
Перевірити фактичне маркування продукту
1500 мг
близько 124 мг
Не вважати 1500 мг масою елементарного магнію
2000 мг
близько 165 мг
Зіставити із загальним добовим надходженням
2500 мг
близько 206 мг
Не призначати як «ударний» протокол на підставі однієї таблиці
В оригінальному тексті 1500–2000 мг названо стандартом для різних вагових категорій, а 2500 мг — короткостроковим режимом після черепно-мозкової травми. Це не встановлені універсальні схеми лікування. Навіть якщо подібну дозу застосовували в дослідженні, її не можна автоматично переносити на людину із захворюванням нирок, іншою формою магнію в раціоні або супутніми препаратами. Для корекції підтвердженого дефіциту важливіше оцінити його причину, загальне надходження та безпеку, ніж обирати «мозкову» сіль через обіцяну перевагу.
Час прийому та «нейронутрицевтичні комбінації»
Іноді дозу ділять на ранкову та вечірню частини: так може бути зручніше щодо переносимості й дотримання режиму. Наявних даних недостатньо, щоб пов’язувати ранкову порцію з підвищенням GluN2B, а вечірню — із гарантованим збільшенням N3. Прийом за 60–90 хвилин до сну або поділ на 500–1000 мг удень і 1000 мг увечері слід розуміти як практику, описану для конкретного продукту, а не як доведений хронофармакологічний закон. За порушень сну й уваги спершу потрібно оцінити їх причини та супутні ліки.
Перша запропонована в оригінальному тексті комбінація об’єднувала L-треонат, фосфатидилсерин, DHA та уридин-5′-монофосфат. Ці речовини мають різні біологічні ролі: фосфатидилсерин є мембранним фосфоліпідом, DHA — поліненасиченою жирною кислотою, а уридин бере участь у синтезі піримідинових нуклеотидів і фосфоліпідів. Цього недостатньо, щоб стверджувати, що їх одночасний прийом у дозах 200–300 мг фосфатидилсерину, 1000–1500 мг DHA та 250–500 мг уридину відновлює синапси після нейроінфекції. Кожен компонент, якість продукту та можливі взаємодії потребують окремої оцінки; суміш не можна оцінити за механізмом одного інгредієнта.
Друга комбінація поєднувала L-треонат з апігеніном і L-теаніном для сну. Апігенін досліджують у рецепторних та ферментних системах, зокрема GABAₐ і CD38, а теанін — у контексті суб’єктивного стресу й електрофізіологічних показників. З цих окремих напрямів досліджень не випливає доведений ефект комбінації на таламокортикальну мережу, альфа-ритм 8–12 Гц або безсоння конкретного пацієнта. Запропоновані дози 50 мг апігеніну та 200–400 мг теаніну тут не є доведеним протоколом. Самостійно додавати кілька речовин до снодійних або психотропних препаратів, не переглянувши весь склад схеми, особливо нерозумно.
Шлунково-кишкові ефекти та особливі ситуації
Магній, що не всмоктався, утримує воду в просвіті кишківника, тому великі дози деяких солей можуть послаблювати випорожнення, спричиняти спазми й діарею. Ризик залежить від розчинності, кількості вільного Mg²⁺, дози та особливостей людини; не можна приписувати кожному граму невсмоктаного магнію фіксовані 400 мл води. В оригінальному тексті припускали пасивну дифузію інтактного хелату й перенесення білками органічних кислот у проксимальному відділі кишківника. Даних недостатньо, щоб вважати саме цю послідовність доведеним основним механізмом всмоктування в людей. L-треонат також може спричиняти шлунково-кишкові скарги. Невелике рандомізоване дослідження не доводить універсальної частоти диспепсії «менше ніж 2%» і не дає підстав обіцяти відсутність діареї.
За зниженої функції нирок виведення магнію порушується, і навіть добавка може підвищити ризик гіпермагніємії. Внутрішньовенне введення MgSO₄ або MgCl₂ для інших клінічних завдань не можна використовувати як аргумент на користь перорального підвищення магнію в мозку: шлях введення, швидкість зростання концентрації в плазмі та ризики різняться. Високі дози можуть спричинити вазодилатацію, слабкість і зниження сухожильних рефлексів без бажаного центрального ефекту. Слабкість, зниження рефлексів і порушення серцевого ритму потребують медичної оцінки, особливо за поєднання кількох препаратів із магнієм або антацидів. За одночасного прийому магній може зменшувати всмоктування деяких ліків, зокрема окремих антибіотиків і препаратів для щитоподібної залози; інтервали та доцільність прийому визначають для конкретного препарату. Даних для призначення L-треонату з когнітивною метою вагітним, тим, хто годує грудьми, дітям або пацієнтам після травми мозку недостатньо.
Як порівнювати форми без хибної ієрархії
Порівнювати солі має сенс лише разом із запитанням: чи потрібно усунути дефіцит, змінити переносимість із боку кишківника або перевірити конкретну дослідницьку гіпотезу про когнітивний результат? Розчинність і вміст елементарного магнію не дорівнюють ефективності проти безсоння чи деменції. В оригінальній матриці кожній сполуці приписали окрему тканину-мішень: малату — м’язи, таурату — серце, цитрату — кишківник, L-треонату — гіпокамп. Така виняткова вибірковість не доведена: після дисоціації спільний йон бере участь у багатьох системах, а відмінності між лігандами й продуктами потребують прямого порівняння.
Форма
Практично важлива особливість
Чого поки не можна виснувати
L-треонат
Невелика частка елементарного Mg²⁺; є лінія досліджень пластичності на тваринах і невеликі когнітивні випробування
Доведене лікування ПТСР, безсоння чи деменції; виняткове перенесення крізь ГЕБ
Бісгліцинат
Хелат, який деяким людям легше переносити
Гарантована «периферична» вибірковість або особлива седативна дія
Малат
Джерело магнію з органічним аніоном
Доведене підвищення витривалості завдяки адресній доставці до циклу Кребса
Таурат
Джерело магнію в поєднанні з тауратом
Підтверджене антиаритмічне призначення як властивість усієї солі
Цитрат
Розчинна форма; великі дози можуть послаблювати випорожнення
Повна відсутність центральних ефектів
Оксид
Висока масова частка Mg за іншої розчинності; також використовується як антацид
Нульове всмоктування або неминуча «екстремальна» діарея в кожної людини
Для фахівців висновок полягає в дисципліні вимірювання: відокремлювати сіль від елементарного магнію, ліквор від синапсу, молекулярний механізм від клінічної кінцевої точки. Для користувачів простіше правило таке: форма добавки не замінює діагностику причини погіршення пам’яті, тривоги чи сну. L-треонат магнію залишається цікавим об’єктом нейробіології та можливим предметом подальших клінічних випробувань. Поки що його наукова історія значно переконливіша як історія перевірюваної гіпотези про синаптичну пластичність, ніж як готовий універсальний протокол «омолодження мозку».
Як підготовлено цей огляд
Це наративний огляд хімії L-треонату магнію, транспорту магнію та синаптичної фізіології. Він спирається на раніше зібрану добірку літератури з 20 публікацій. Редакційну роботу завершено 4 жовтня 2026 року; систематичного пошуку за заздалегідь визначеним протоколом, метааналізу та формального оцінювання ризику упередженості для кожної праці не проводили. Тому список джерел не слід вважати вичерпним.
Результати хімічних, клітинних, тваринних і клінічних досліджень розглядаються окремо. Висновки про ефективність обмежені вивченими популяціями, формами втручання та кінцевими точками. Зміна магнію в лікворі або тканині мозку не дорівнює його зміні в сироватці, а спостереження на тваринах не підтверджує клінічного ефекту. Формули й схеми пояснюють механізми; їх наявність не встановлює ефективності добавки чи перенесення цілого комплексу крізь гематоенцефалічний бар’єр.
Часті питання
Чи проходить Magtein крізь гематоенцефалічний бар’єр?
У дослідах на тваринах L-треонат застосовували для підвищення магнію мозку. Однак установленого шляху перенесення цілого комплексу через конкретний переносник ГЕБ не визначено; рівні магнію в крові, лікворі та синапсі не можна ототожнювати.
Чи доведене поліпшення пам’яті в людей?
Невеликі випробування повідомляли про сприятливі результати за окремими когнітивними показниками. Вони не доводять лікування деменції, зворотного розвитку старіння мозку або однакового ефекту для кожного продукту з L-треонатом.
Що робить магній у NMDA-рецепторі?
За негативного мембранного потенціалу Mg²⁺ обмежує струм через активований канал. Деполяризація послаблює блок, і сигнал кальцію може брати участь у пластичності. Це фізіологія рецептора, а не доказ ефективності капсули.
Скільки елементарного магнію міститься у 2000 мг L-треонату?
Теоретично близько 165 мг для безводної формули з часткою магнію 8,25%. Фактична кількість залежить від продукту й зазначається на етикетці.
Чи можна приймати його для сну або при ПТСР?
Наведені дані не підтверджують L-треонат як лікування безсоння або ПТСР. Досліди зі згасання страху проводили на тваринах, а дані про архітектуру сну для цієї форми обмежені.
Коли особливо важливо обговорити добавку з медичним фахівцем?
Індивідуальне оцінювання потрібне за хвороби нирок, прийому кількох засобів із магнієм, вагітності, годування грудьми, прийому ліків із можливими взаємодіями або стійких скарг на пам’ять чи сон.