L-treonato de magnesio: BHE, NMDA, sinapsis y evidencia en personas — NutriFit
L-treonato de magnesio: acceso al cerebro, función sináptica y límites de la evidencia clínica
Cómo se relaciona el L-treonato de magnesio con el magnesio cerebral, los receptores NMDA y la plasticidad sináptica. Revisión de su química, el transporte a través de barreras, estudios de memoria en animales y personas, dosis y seguridad sin exagerar la evidencia.
El magnesio cumple dos funciones en el sistema nervioso que se confunden con facilidad. La célula lo necesita para el funcionamiento del ATP, los ácidos nucleicos y las enzimas, pero también actúa como regulador fisiológico de la excitabilidad: a un potencial de membrana negativo, el ion Mg²⁺ bloquea el poro del receptor NMDA. Por eso, una medición de la concentración en sangre por sí sola no permite responder si un suplemento de magnesio podría afectar a la memoria. Hay que determinar si cambia el magnesio disponible en el cerebro, cómo se relaciona con las sinapsis y si los resultados experimentales pueden trasladarse a las personas.
El L-treonato de magnesio despertó interés tras experimentos en los que una elevación sostenida del magnesio cerebral en animales se acompañó de cambios en la plasticidad sináptica y en el desempeño de tareas de aprendizaje. Magtein® es el nombre comercial de la materia prima de esta sal; no es el nombre de un neurotransmisor ni demuestra que exista una vía especial de transporte. Este artículo examina la química del complejo, el transporte a través de barreras, la función sináptica y los límites de los pequeños estudios clínicos. Una distinción esencial separa la biofísica del Mg²⁺, los hallazgos en roedores y los resultados todavía limitados obtenidos en seres humanos.
De la molécula en una cápsula al magnesio cerebral
Química del L-treonato y origen del ligando
El L-treonato de magnesio suele describirse como un complejo de un catión con dos aniones de L-treonato: Mg(C4H7O5)2. Con una masa molar de aproximadamente 294,5 g/mol, el magnesio elemental representa 24,305/294,5≈8,25% del compuesto anhidro idealizado. El producto real puede contener agua y excipientes; por ello, la dosis debe basarse en la cantidad de magnesio elemental que indica la etiqueta, no solo en la masa del polvo. El ácido L-treónico tiene dos centros quirales; la fuente indica la configuración (2R,3S) para el ácido 2,3,4-trihidroxibutanoico. Los grupos carboxilo e hidroxilo adyacentes pueden coordinar Mg²⁺ y modificar la solubilidad y el equilibrio de disociación. En el agua, el Mg²⁺ libre está hidratado: suele considerarse que su primera capa incluye seis moléculas de agua. Estas características químicas ayudan a plantear preguntas sobre la absorción, pero no demuestran que el complejo intacto atraviese la barrera hematoencefálica (BHE).
El L-treonato se relaciona con la degradación del ácido ascórbico. El ascorbato se oxida a deshidroascorbato; la apertura del anillo de lactona genera 2,3-dicetogulonato, del que puede formarse treonato entre otros productos. De forma esquemática, esta ruta se expresa como L-ascorbato→deshidroascorbato→2,3-diceto-L-gulonato→L-treonato. El intermediario 2,3-dicetogulonato puede degradarse por varias vías, incluida la formación de oxalato; la ecuación anterior muestra solo la rama relacionada con el treonato y no constituye un balance completo del carbono. Este origen explica por qué el ligando aparece en sistemas biológicos, pero no demuestra ni una seguridad incondicional a cualquier dosis ni la existencia de un transportador específico para el complejo intacto. La degradación del ascorbato tiene otras ramas; no debe presentarse como una única ruta estequiométrica hacia el treonato.
Dos barreras y una pregunta mecanística abierta
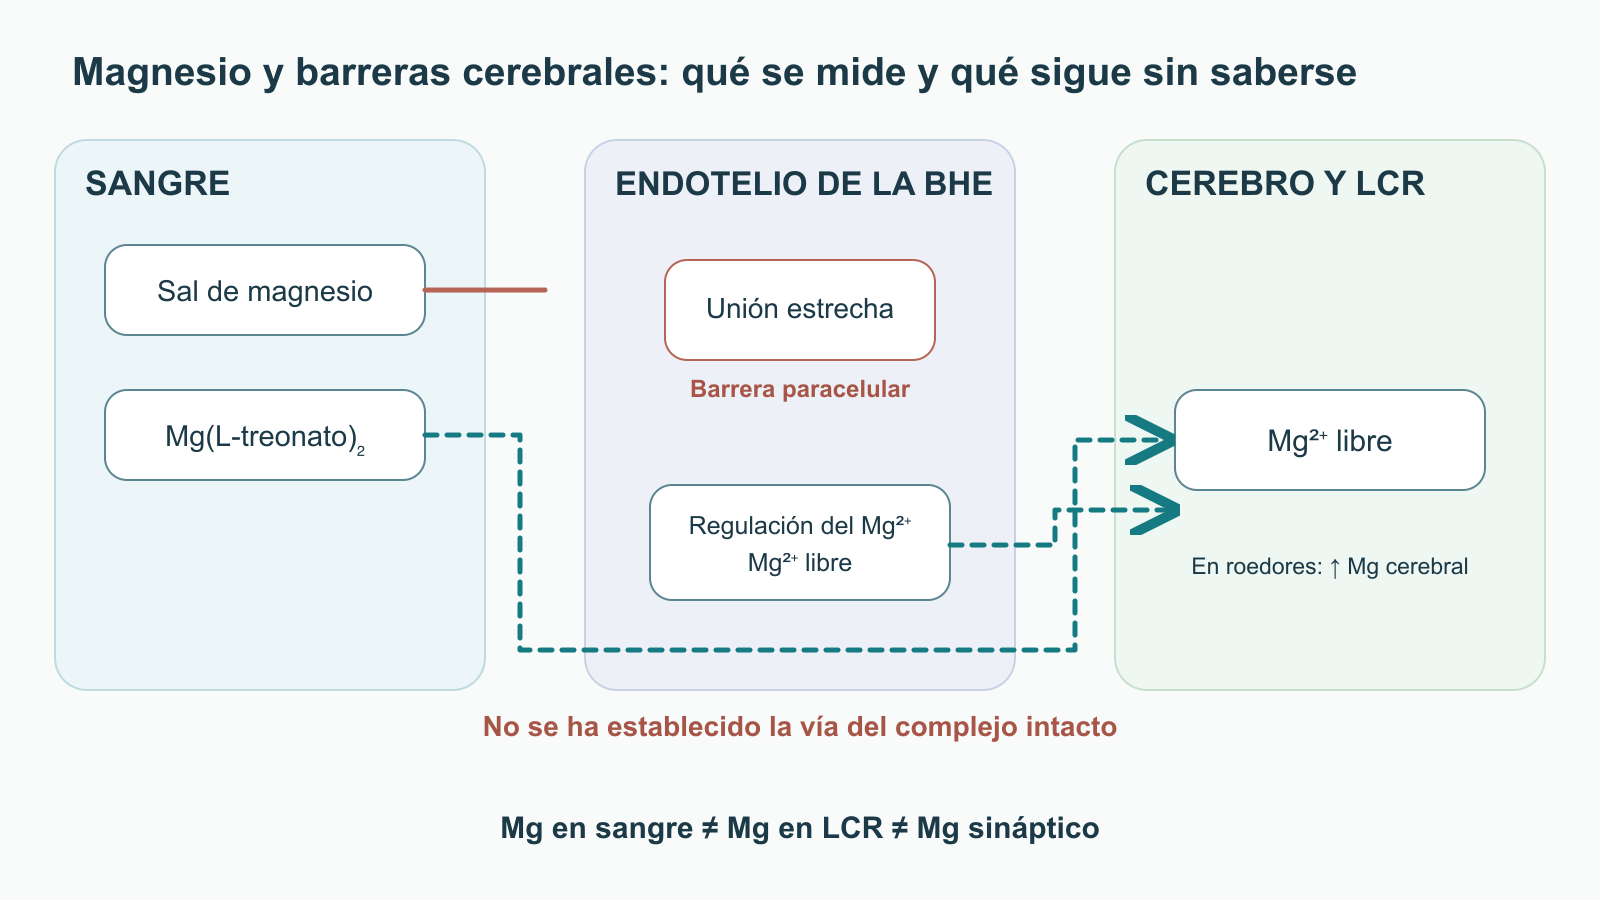
El endotelio de los capilares cerebrales está unido por uniones estrechas en las que participan claudin-5, occludin y proteínas ZO; junto con los pericitos y las prolongaciones de los astrocitos forma la unidad neurovascular. Las uniones estrechas limitan marcadamente el paso de iones hidratados entre las células. El plexo coroideo es una segunda interfaz y regula la composición del líquido cefalorraquídeo (LCR). Por tanto, las concentraciones de Mg²⁺ en plasma, LCR y tejido cerebral son tres magnitudes distintas. Incluso un cambio observado en el LCR no equivale a medir el magnesio libre en cada sinapsis.
En la regulación del magnesio celular intervienen la cinasa de canal TRPM7, MagT1, el intercambiador SLC41A1 y proteínas de la familia CNNM, incluidas CNNM2 y CNNM4, que se analizan aquí. La autorregulación de la entrada y la salida de iones ayuda a explicar por qué un aumento grande del Mg²⁺ plasmático no tiene por qué producir un aumento proporcional en el LCR. El esquema original también menciona CaSR y ARL15 como posibles reguladores. Sus funciones se han estudiado en distintos tejidos y sistemas experimentales, pero esos resultados no establecen una secuencia ya demostrada según la cual «MCT1 transporta Mg(L-treonato)₂ a través de la BHE y después MagT1 lo libera en el cerebro». La evidencia disponible no demuestra esa ruta para el complejo intacto; MCT1 y SMCT1 no deben describirse como transportadores confirmados de Mg-treonato. Tampoco forman CaSR, ARL15 o CNNM2 una secuencia establecida de pasos de transporte en este caso. La pregunta de trabajo es qué concentraciones de magnesio libre y unido aparecen después de la absorción y cómo cambia su intercambio con el sistema nervioso central. Para respaldar el mecanismo propuesto de «caballo de Troya» habría que medir las especies químicas en sangre y a ambos lados del endotelio, identificar un transportador, bloquear competitivamente el transporte y cuantificar el flujo. Un cambio del Mg total en el LCR no bastaría. El plexo coroideo requiere atención por separado: su epitelio está en contacto con el LCR de manera distinta a la relación del endotelio capilar con el espacio intersticial, por lo que no se pueden combinar los resultados de ambas interfaces sin mediciones adicionales.
Los experimentos de Slutsky y sus colaboradores mostraron que elevar el magnesio cerebral con L-treonato en animales se acompañó de mejoras en varias medidas de memoria y plasticidad sináptica. Esto justifica seguir estudiando la forma, pero no permite atribuir exactamente cero penetración cerebral a todos los demás compuestos. La tabla comparativa original presentaba porcentajes de biodisponibilidad, valores de Mg²⁺ en el LCR por día y efectos morfométricos del óxido, cloruro, citrato y bisglicinato como si procedieran de un único experimento directo. Los trabajos proporcionados no establecen una matriz completa y comparable de ese tipo; utilizarla para tomar decisiones clínicas con una precisión de décimas de punto porcentual sería un error.
Nivel medido
Qué puede establecer
Qué no demuestra
Magnesio elemental en una dosis
La cantidad de Mg²⁺ que aporta el producto
Cuánto llegará al cerebro
Magnesio en sangre
El estado sistémico y algunas cuestiones de seguridad
La concentración en la hendidura sináptica
Magnesio en el LCR
Un cambio en uno de los compartimentos centrales
Un cambio uniforme en todas las regiones cerebrales
Marcadores sinápticos y conducta en roedores
Una asociación entre la exposición y una respuesta biológica en un modelo
Una mejoría clínica de la memoria en personas
Cuando cambia la estructura de una sinapsis
Hipocampo y corteza prefrontal
El hipocampo no es un «centro de la memoria» homogéneo. Las señales entrantes pasan por la circunvolución dentada y los campos CA3 y CA1; estas redes contribuyen a separar acontecimientos parecidos, vincular elementos de una experiencia y consolidarla después. La corteza prefrontal medial ayuda a mantener información activa, elegir acciones y regular las respuestas emocionales. En los experimentos con magnesio, estas regiones son lugares importantes para evaluar la plasticidad, no puntos demostrados de acumulación selectiva del suplemento en las personas. La ausencia de un efecto medido en otra región tampoco demuestra que allí esté completamente ausente.
Reservas presinápticas y andamiaje postsináptico
La sinaptofisina es una proteína de la membrana de las vesículas sinápticas, por lo que su tinción puede ayudar a evaluar las terminales presinápticas. PSD-95, codificada por DLG4, organiza el andamiaje proteico de la densidad postsináptica y mantiene complejos de señalización cerca de los receptores AMPA y NMDA. En estudios con animales, el aumento del magnesio cerebral se ha comparado con cambios en estos marcadores y en el número de contactos funcionales. Sin embargo, una mayor intensidad de tinción no equivale a un porcentaje definido de nuevas sinapsis maduras, y la forma de una espina dendrítica en hongo no garantiza una mejor conducta. Los aumentos universales de 36–44% en sinaptofisina y de 32–41% en PSD-95 afirmados en el texto original no pueden generalizarse a todas las regiones, duraciones y dosis.
Los experimentos originales utilizaron morfometría, inmunomarcaje y respuestas electrofisiológicas; estos métodos responden a preguntas distintas. Un punto positivo para sinaptofisina puede reflejar la presencia de membrana vesicular; PSD-95 puede reflejar la organización de la densidad postsináptica, mientras que una sinapsis funcional pareada requiere una localización coordinada de las estructuras pre- y postsinápticas y una corriente reproducible. Por eso, ni siquiera el aumento de dos marcadores reemplaza el recuento de contactos funcionales con control del tamaño de la población neuronal y del volumen de tejido.
Las vesículas presinápticas se encuentran en distintos estados funcionales. El reservorio de reserva se asocia con el citoesqueleto, el reservorio de reciclaje participa en ciclos repetidos de exocitosis y el conjunto de liberación rápida (readily releasable pool, RRP) comprende vesículas acopladas y preparadas para liberarse con rapidez. Cuando entra Ca²⁺ en la terminal, el complejo SNARE, que incluye la VAMP2 vesicular/sinaptobrevina, facilita la fusión de membranas y la liberación de glutamato. La división aproximada de la fuente original —80–90% de reserva, 10–15% de reciclaje y 1–2% de liberación inmediata— depende del tipo de sinapsis y del método de medición; ilustra el orden de magnitud, no proporciones fijas en el cerebro humano. En estudios de modelos, se analiza la combinación de un reservorio más disponible y cambios en la probabilidad de liberación como una posible forma de reforzar la respuesta a una serie de impulsos manteniendo bajo el ruido de fondo. El tamaño del RRP suele estimarse con trenes de estímulos o sacarosa hipertónica y se infiere a partir de la carga total liberada, ajustada por la probabilidad de liberación y el reciclaje. La estimulación cercana a 40 Hz mencionada en la fuente original permite examinar la transmisión a alta frecuencia, pero el resultado depende del protocolo y no equivale a medir el número de vesículas en el cerebro humano vivo. Esta hipótesis no debe convertirse en la afirmación de que tomar una cápsula concreta aumentará el RRP de una persona en un porcentaje fijo.
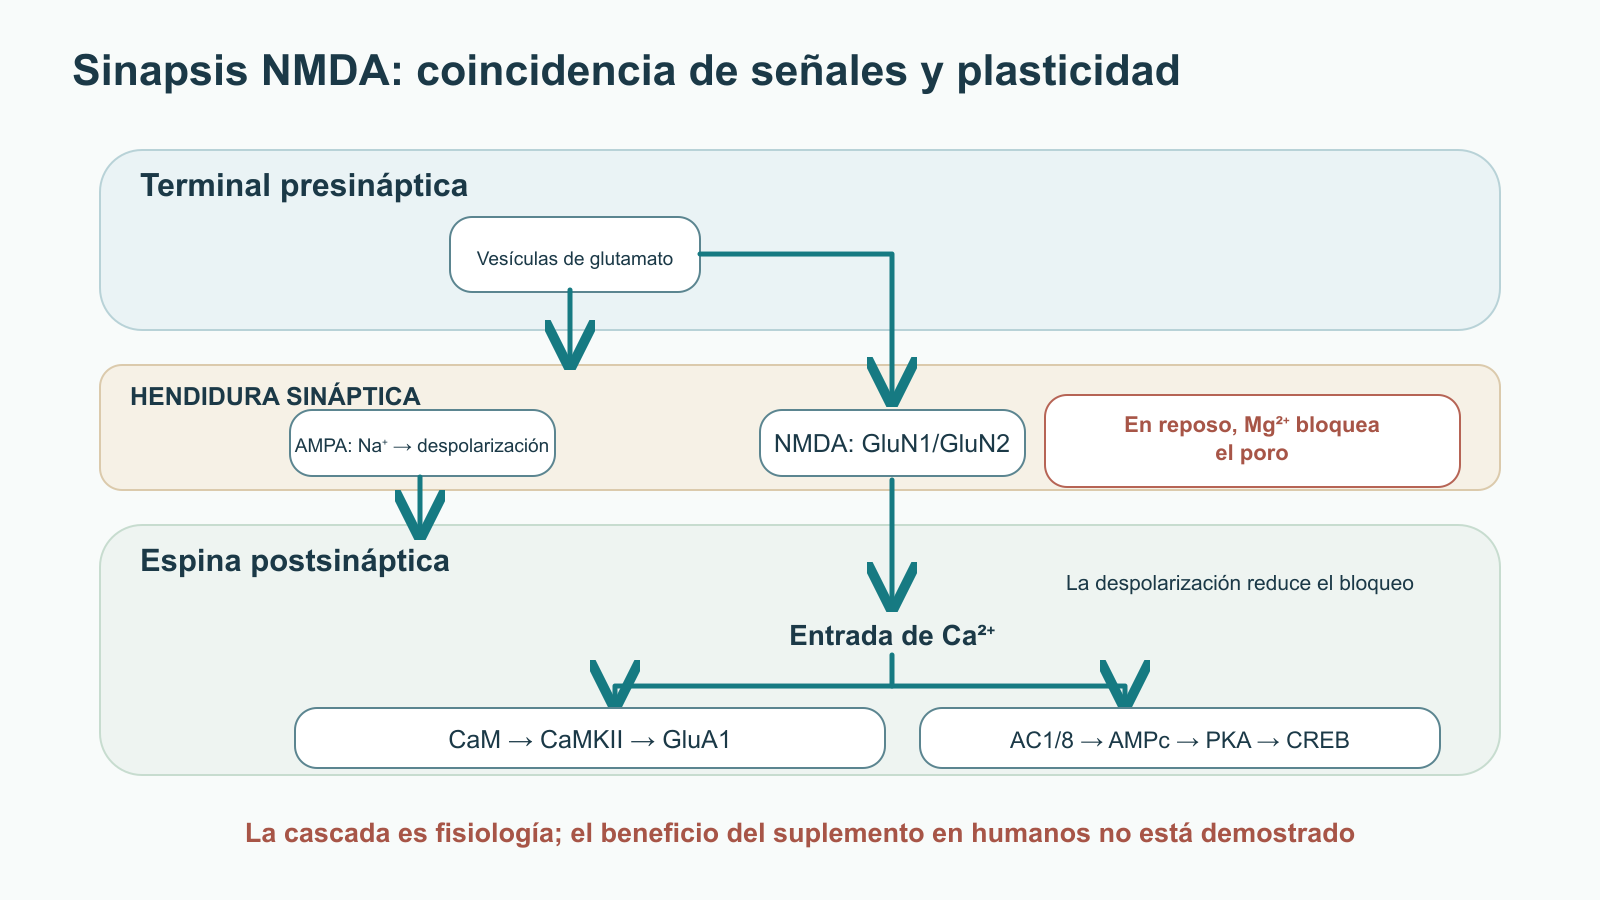
La conexión entre la terminal presináptica y la espina se entiende mejor como una secuencia con retroalimentación: una vesícula libera glutamato, un receptor AMPA modifica el potencial, un receptor NMDA deja pasar Ca²⁺ cuando coinciden las condiciones necesarias y la señalización intracelular cambia la organización de PSD-95 y la disponibilidad de receptores. Esta secuencia explica por qué la morfología, la electrofisiología y la conducta deben medirse por separado. También evita reducir la memoria a una sola proteína o a un único tipo de espina.
El «tapón» de magnesio y la ventana para la plasticidad
Cómo el receptor NMDA detecta la coincidencia de señales
El receptor NMDA es un canal iónico heterotetramérico. Para activarlo, es necesario que el glutamato se una a GluN2 y la glicina o la D-serina a GluN1; sin embargo, a potenciales de membrana negativos, el Mg²⁺ limita la corriente a través del canal. Residuos conservados de asparagina en la región M2 del poro, que suelen analizarse como sitio N (identificado como Asn598 en la fuente), contribuyen al bloqueo dependiente del voltaje; los experimentos clásicos de Nowak y Mayer demostraron esta dependencia mucho antes de que el L-treonato apareciera como suplemento. «Tapón de magnesio» es una metáfora útil, pero no significa que el receptor quede sellado a todos los potenciales de reposo ni que la corriente de calcio sea siempre cero.
Cuando los receptores AMPA vecinos conducen Na⁺, la membrana se despolariza, disminuye la probabilidad del bloqueo por Mg²⁺ y puede entrar Ca²⁺ por un canal NMDA activado. Este ion se convierte en una señal intracelular capaz de modificar la fuerza sináptica. La idea de «detector de coincidencias» alude a la presencia simultánea de liberación presináptica y despolarización postsináptica. En electrofisiología, el bloqueo se caracteriza mediante una curva corriente–voltaje con concentraciones extracelulares especificadas de Mg²⁺ y agonistas. Si un experimento modifica el Mg²⁺, también debe tener en cuenta el estado de la membrana, la disponibilidad de glicina o D-serina y las proporciones de las distintas subunidades; de lo contrario, no puede atribuirse un cambio de corriente únicamente al «tapón». El mecanismo no consiste en maximizar la entrada de calcio: una señal de calcio prolongada o situada en el lugar inadecuado puede dañar la célula, y la respuesta fisiológica depende del momento, el lugar y el contexto de actividad.
De ahí surge la hipótesis de que cambiar el Mg²⁺ disponible podría reajustar la relación entre la señal y el fondo. No debe formularse como una supresión completa garantizada de la liberación espontánea de glutamato ni como protección frente a toda excitotoxicidad. Si una regulación alterada del calcio provoca estrés mitocondrial, apertura del poro de transición de permeabilidad y activación de caspasas, se trata de una vía patológica aparte, no de un efecto clínico demostrado del L-treonato. Los agonistas directos de receptores, los ampakines y los racetamos tampoco forman un único grupo comparativo con un riesgo común conocido: el artículo original los contrapuso al magnesio de forma demasiado categórica.
GluN2A, GluN2B y la cascada de LTP
Las subunidades GluN2A y GluN2B difieren en cinética, regulación y distribución en el cerebro en desarrollo y maduro. Los receptores que contienen GluN2B suelen desactivarse más lentamente, por lo que su ventana de integración de señales puede ser más larga. Sin embargo, no se pueden etiquetar simplemente como el «tipo juvenil» y a GluN2A como el único tipo «adulto»: ambas subunidades coexisten en combinaciones complejas. Los valores de 30–50 y 200–400 ms que aparecen en la fuente original sirven solo como ejemplos de cinética dependiente del experimento, no como tiempos universales de apertura de canales in vivo.
En modelos animales, el aumento del magnesio cerebral se ha estudiado junto con la expresión y la función de GluN2B. El trabajo de Tang y sus colaboradores sobre la sobreexpresión genética de Grin2b muestra la importancia de esta subunidad para el aprendizaje en ratones, pero un modelo genético no equivale a un suplemento alimentario. Por tanto, no está justificado afirmar que el L-treonato reproduce a los «ratones Doogie» o eleva GluN2B un 60–80% en las personas. Esa afirmación mezcla intervenciones, tejidos y desenlaces distintos.
Tras la entrada de Ca²⁺, la calmodulina activa CaMKII. La autofosforilación de CaMKIIα en Thr286 mantiene la actividad enzimática después de una señal breve; la fosforilación de GluA1 en Ser831 y los cambios en el tráfico de receptores AMPA pueden fortalecer la transmisión. En paralelo, las adenilil ciclasas sensibles al calcio AC1/AC8 aumentan el AMPc; PKA y CREB participan en cambios más duraderos de la expresión génica, incluidos procesos en los que intervienen BDNF y las proteínas de respuesta temprana c-Fos y Egr1/Zif268. La fosforilación de CREB en Ser133 es un nodo que se mide con frecuencia en esta vía, pero no constituye una firma exclusiva de la acción del magnesio. La secuencia Ca2+/CaM→CaMKII→GluA1 y la rama Ca2+→AC1/8→cAMP→PKA→CREB describen la fisiología general de la plasticidad; nadie ha demostrado que tomar L-treonato active simultáneamente todos estos pasos en las personas.
La potenciación a largo plazo (LTP) es un aumento persistente de la respuesta tras un patrón específico de estimulación; la depresión a largo plazo (LTD) es un debilitamiento sostenido de una conexión. La LTD no consiste simplemente en «borrar recuerdos antiguos»: contribuye al ajuste fino de las redes y depende, entre otros factores, de fosfatasas como la calcineurina. Los cortes de hipocampo permiten comparar estos procesos en condiciones controladas, pero ni siquiera una mayor amplitud de LTP se traduce directamente en años de «rejuvenecimiento» de la memoria humana. La fase tardía de la LTP requiere transcripción, síntesis de proteínas y estabilización de espinas, mientras que la inducción depende de un patrón temporal concreto, como la estimulación en ráfagas theta. Las señales de calcio de distinta amplitud y duración pueden desplazar el equilibrio entre cinasas y fosfatasas; por eso, un aumento del magnesio no tiene por qué potenciar todas las formas de plasticidad. El aumento de LTP del 40–60% citado en la fuente original, sin referencia precisa al protocolo, no es un hecho clínico general.
Qué permiten afirmar realmente los ensayos en personas
MMFS-01: composición, duración y desenlaces medidos
El estudio aleatorizado y doble ciego de Liu y sus colaboradores incluyó a 44 adultos de mediana edad y mayores que referían deterioro cognitivo. Durante 12 semanas se compararon MMFS-01 y placebo mediante una batería de tareas cognitivas. La descripción original del protocolo indica una dosis diaria de 1,5–2,0 g, con un límite de peso corporal de 70 kg, y evaluaciones en las semanas seis y doce. MMFS-01 se describió como un producto basado en L-treonato de magnesio; sin un análisis adicional, el resultado de la combinación no puede atribuirse a un solo componente. El tamaño reducido de la muestra, la duración y la selección de participantes limitan la extrapolación a la prevención de la demencia, la enfermedad de Alzheimer o los adultos jóvenes sanos.
Los autores comunicaron mejoras en algunas medidas compuestas frente al placebo. El texto original afirma por separado una reducción del 22,4% en el tiempo de TMT-B, un aumento de la puntuación Z compuesta hasta +0,66 y un «rejuvenecimiento» de nueve años. Esta última cifra convierte los resultados de pruebas mediante una curva normativa por edad; no implica que se haya revertido el envejecimiento biológico. En la misma interpretación se menciona una diferencia frente al placebo de unos 7,3 años normativos: es una escala derivada de las pruebas, no una medida clínica de recuperación neuronal. Las magnitudes exactas dependen del análisis elegido; no pueden presentarse como un efecto garantizado de 2 g de la sal ni como un cambio en la estructura cerebral. Las pruebas individuales de función ejecutiva y memoria de trabajo deben leerse junto con el conjunto completo de desenlaces y sus intervalos de confianza, en vez de destacar el resultado más llamativo. Por ejemplo, la parte B del Trail Making Test mide la velocidad para conectar secuencias alternas, pero el tiempo también depende de la visión, la motricidad y la familiaridad con el procedimiento. En las pruebas repetidas hay que controlar los efectos de práctica; una medida compuesta depende de las pruebas incluidas y de cómo se ponderen. La interpretación original de «un 22,4% más rápido» no demuestra por sí sola un cambio en la densidad sináptica.
Un estudio posterior de una fórmula basada en Magtein® en adultos sanos también amplía los datos en personas, pero utilizó una fórmula multicomponente específica y pruebas propias. Estos estudios respaldan que se siga comprobando la hipótesis; no establecen una indicación clínica para tratar el deterioro cognitivo leve. Para interpretar los resultados es especialmente importante distinguir la dosis del compuesto de la dosis de Mg²⁺, considerar los demás ingredientes y determinar si el desenlace estaba preespecificado como principal.
Nivel de evidencia
Qué se observó
Limitación principal
Células y cortes de tejido
Corrientes de receptores, marcadores, LTP/LTD
No reproducen el organismo completo ni la memoria cotidiana
Roedores
Conducta, magnesio cerebral, estructura sináptica
Las dosis, la especie y las tareas difieren del contexto clínico
Ensayos pequeños en personas
Pruebas cognitivas individuales durante varias semanas
No demuestran prevención de la demencia ni cambios sinápticos sostenidos
Extinción del miedo y sueño: dos líneas de evidencia distintas
La extinción del miedo consiste en aprender que una señal que antes anunciaba peligro ya no predice una amenaza; el recuerdo original no necesariamente desaparece. En el trabajo de Abumaria y sus colaboradores con animales, el aumento del magnesio cerebral se estudió junto con la plasticidad de la corteza prefrontal infralímbica y la amígdala lateral. Las conexiones de la corteza prefrontal con las células intercaladas inhibitorias de la amígdala ofrecen un marco verosímil de red neuronal. La extinción depende de las interacciones entre las regiones infralímbica y prelimbica de la corteza prefrontal medial, la amígdala lateral y las neuronas intercaladas inhibitorias; registrar la plasticidad en un solo lugar no abarca toda la red. La conducta de miedo condicionado en animales no equivale al cuadro clínico complejo del TEPT, que puede incluir reexperimentación, evitación y alteraciones del sueño. Por ello, estos datos no constituyen un ensayo de tratamiento del TEPT o de la ansiedad generalizada en personas, ni permiten prometer que un suplemento «apagará» el miedo patológico.
El sueño es importante para la consolidación de la memoria: la fase N3 se caracteriza por oscilaciones corticales lentas de aproximadamente 0,5–4 Hz y su coordinación con otros ritmos. El magnesio participa en la excitabilidad neuronal, pero los datos clínicos aportados no demuestran una acción alostérica directa del L-treonato en un sitio específico del receptor GABAₐ, una hiperpolarización talámica obligatoria, una supresión de ACTH y cortisol ni un aumento del 15–20% en N3 tras una dosis nocturna. Un estudio de magnesio convencional para el insomnio primario en adultos mayores evaluó otra sal y no demuestra el mismo efecto para Magtein®. La supresión de la actividad nocturna del eje hipotálamo-hipófisis-suprarrenal, de ACTH y de cortisol sigue siendo una hipótesis para esta intervención concreta. La polisomnografía distingue N1, N2, N3 y REM mediante EEG y otras señales; la impresión subjetiva de haber «dormido más profundamente» no sustituye la medición de la proporción de N3. Incluso un cambio medido en el porcentaje de una fase debe interpretarse junto con la duración total del sueño, los despertares y el funcionamiento diurno. Si una persona nota un cambio en el sueño, debe evaluarse por separado de la promesa comercial de «sueño delta sin somnolencia matutina».
Dosis, combinaciones y límites de seguridad
Cuánto magnesio hay en un gramo de sal
Para la fórmula anhidra, el cálculo da aproximadamente 82,5 mg de Mg²⁺ elemental por cada 1.000 mg de L-treonato. Sirve para comprobar el orden de magnitud, pero el fabricante debe indicar el contenido real de magnesio elemental por porción. La masa de la sal y la del catión difieren aproximadamente doce veces. Las cifras siguientes son referencias aritméticas, no pasos de tratamiento determinados por el peso corporal o el grado de las quejas cognitivas.
Masa de L-treonato de magnesio
Mg²⁺ con la fracción teórica del 8,25%
Cómo interpretar la cifra
1.000 mg
alrededor de 83 mg
Comprobar la etiqueta real del producto
1.500 mg
alrededor de 124 mg
No contar 1.500 mg como magnesio elemental
2.000 mg
alrededor de 165 mg
Comparar con la exposición diaria total
2.500 mg
alrededor de 206 mg
No prescribir como protocolo de «carga» basándose en una sola tabla
El texto original presenta 1.500–2.000 mg como estándar para distintas categorías de peso y 2.500 mg como pauta de corta duración después de una lesión cerebral traumática. No son pautas terapéuticas universales establecidas. Aunque una dosis parecida se haya utilizado en un estudio, no debe extrapolarse automáticamente a una persona con enfermedad renal, otra fuente alimentaria de magnesio o medicación concomitante. Para corregir una deficiencia confirmada, es más importante evaluar la causa, la ingesta total y la seguridad que elegir una sal «para el cerebro» por una ventaja prometida.
Horario y «combinaciones neuronutricionales»
A veces se divide la dosis entre la mañana y la tarde-noche; puede resultar práctico para la tolerabilidad y la adherencia. Los datos disponibles no bastan para atribuir una regulación al alza de GluN2B a la dosis matutina y un aumento garantizado de N3 a la nocturna. Tomarla 60–90 minutos antes de acostarse o dividir 500–1.000 mg durante el día y 1.000 mg por la noche debe entenderse como una práctica descrita para un producto concreto, no como una regla cronofarmacológica demostrada. Ante problemas de sueño o atención, primero hay que valorar las causas y los medicamentos concomitantes.
La primera combinación propuesta en el texto original reunía L-treonato, fosfatidilserina, DHA y monofosfato de uridina-5′. Estas sustancias tienen funciones biológicas distintas: la fosfatidilserina es un fosfolípido de membrana, el DHA es un ácido graso poliinsaturado y la uridina participa en la síntesis de nucleótidos de pirimidina y fosfolípidos. Esto no basta para afirmar que tomarlas juntas, en dosis de 200–300 mg de fosfatidilserina, 1.000–1.500 mg de DHA y 250–500 mg de uridina, restaure sinapsis después de una neuroinfección. Cada componente, la calidad del producto y las interacciones requieren evaluación independiente; la mezcla no puede valorarse a partir del mecanismo de un solo ingrediente.
La segunda combinación asociaba L-treonato con apigenina y L-teanina para el sueño. La apigenina se estudia en sistemas receptores y enzimáticos, incluidos GABAₐ y CD38, mientras que la teanina se estudia en relación con el estrés subjetivo y las medidas electrofisiológicas. Estas líneas por separado no demuestran que la combinación afecte a la red talamocortical, al ritmo alfa de 8–12 Hz o al insomnio de una persona concreta. Las dosis propuestas de 50 mg de apigenina y 200–400 mg de teanina no constituyen aquí un protocolo basado en evidencia. Añadir por cuenta propia varias sustancias a hipnóticos o psicofármacos sin revisar el régimen completo es especialmente poco prudente.
Efectos gastrointestinales y situaciones especiales
El magnesio no absorbido retiene agua en la luz intestinal; por eso, las dosis altas de algunas sales pueden ablandar las heces, producir cólicos y causar diarrea. El riesgo depende de la solubilidad, la cantidad de Mg²⁺ libre, la dosis y las características individuales; no se deben atribuir 400 ml fijos de agua a cada gramo de magnesio no absorbido. El texto original proponía difusión pasiva del quelato intacto y transporte mediante proteínas de ácidos orgánicos en el intestino proximal. No hay evidencia suficiente para considerar esa secuencia exacta como el mecanismo principal demostrado de absorción en personas. El L-treonato también puede causar molestias gastrointestinales. Un ensayo aleatorizado pequeño no demuestra una frecuencia universal de dispepsia «inferior al 2%» ni permite prometer que no habrá diarrea.
Cuando la función renal está reducida, se altera la excreción de magnesio y hasta un suplemento puede aumentar el riesgo de hipermagnesemia. La administración intravenosa de MgSO₄ o MgCl₂ para otras necesidades clínicas no sirve como argumento a favor de elevar por vía oral el magnesio cerebral: difieren la vía, la velocidad de aumento de la concentración plasmática y los riesgos. Las dosis altas pueden causar vasodilatación, debilidad y disminución de los reflejos tendinosos sin producir el efecto central deseado. La debilidad, los reflejos reducidos y los trastornos del ritmo cardíaco requieren valoración médica, sobre todo si se combinan varios productos con magnesio o antiácidos. El magnesio puede reducir la absorción simultánea de algunos medicamentos, incluidos ciertos antibióticos y fármacos tiroideos; los intervalos y la decisión de tomarlo deben determinarse para cada medicamento. No hay datos suficientes para recomendar L-treonato con fines cognitivos durante el embarazo o la lactancia, en niños o después de una lesión cerebral.
Comparar las formas sin establecer una jerarquía falsa
Comparar sales solo tiene sentido junto con una pregunta concreta: ¿se busca corregir una deficiencia, mejorar la tolerabilidad intestinal o poner a prueba una hipótesis de investigación específica sobre un desenlace cognitivo? La solubilidad y el contenido de magnesio elemental no equivalen a eficacia contra el insomnio o la demencia. La matriz original asignaba a cada compuesto un tejido diana exclusivo: el malato al músculo, el taurato al corazón, el citrato al intestino y el L-treonato al hipocampo. Esa exclusividad no está demostrada: tras disociarse, el ion compartido participa en numerosos sistemas, y las diferencias entre ligandos y productos requieren una comparación directa.
Forma
Característica de relevancia práctica
Qué no puede inferirse todavía
L-treonato
Baja proporción de Mg²⁺ elemental; existe una línea de investigación sobre plasticidad en animales y pequeños ensayos cognitivos
Tratamiento demostrado del TEPT, el insomnio o la demencia; transporte exclusivo a través de la BHE
Bisglicinato
Quelato que algunas personas toleran mejor
Selectividad «periférica» garantizada o un efecto sedante especial
Malato
Fuente de magnesio con un anión orgánico
Aumento demostrado de la resistencia por transporte dirigido al ciclo de Krebs
Taurato
Fuente de magnesio combinada con taurato
Indicación antiarrítmica confirmada como propiedad de la sal completa
Citrato
Forma soluble; las dosis mayores pueden ablandar las heces
Ausencia completa de efectos centrales
Óxido
Alta proporción másica de Mg con solubilidad distinta; también se usa como antiácido
Absorción nula o diarrea «extrema» inevitable en todas las personas
Para profesionales, la conclusión es mantener disciplina en las mediciones: distinguir la sal del magnesio elemental, el LCR de la sinapsis y el mecanismo molecular del desenlace clínico. Para los usuarios, la regla más sencilla es que la forma del suplemento no sustituye el diagnóstico de la causa de los problemas de memoria, ansiedad o sueño. El L-treonato de magnesio sigue siendo un tema interesante de neurobiología y un posible objeto de nuevos ensayos clínicos. Hasta ahora, su historia científica resulta mucho más convincente como hipótesis comprobable sobre plasticidad sináptica que como protocolo universal listo para «rejuvenecer el cerebro».
Cómo se preparó esta revisión
Esta es una revisión narrativa de la química del L-treonato de magnesio, el transporte de magnesio y la fisiología sináptica. Se basa en una recopilación bibliográfica reunida anteriormente que contiene 20 publicaciones. El trabajo editorial concluyó el 4 de octubre de 2026; no se realizó una búsqueda sistemática con un protocolo preespecificado, un metanálisis ni una evaluación formal del riesgo de sesgo de cada estudio. Por tanto, la lista de referencias no debe considerarse exhaustiva.
Los resultados de los estudios químicos, celulares, en animales y clínicos se examinan por separado. Las conclusiones sobre eficacia se limitan a las poblaciones, formas de intervención y desenlaces estudiados. Un cambio del magnesio en el LCR o en el tejido cerebral no equivale a un cambio en el suero, y una observación en animales no confirma un efecto clínico. Las fórmulas y los esquemas explican mecanismos; su inclusión no demuestra la eficacia del suplemento ni el transporte del complejo intacto a través de la barrera hematoencefálica.
Preguntas frecuentes
¿Magtein atraviesa la barrera hematoencefálica?
En experimentos con animales se utilizó L-treonato para elevar el magnesio cerebral. Sin embargo, no se ha identificado una vía establecida de transporte del complejo intacto a través de un transportador concreto de la BHE; los niveles de magnesio en sangre, LCR y sinapsis no son intercambiables.
¿Se ha demostrado que mejora la memoria en personas?
Pequeños ensayos han comunicado resultados favorables en algunas medidas cognitivas. No demuestran el tratamiento de la demencia, la reversión del envejecimiento cerebral ni el mismo efecto con todos los productos que contienen L-treonato.
¿Qué hace el magnesio en el receptor NMDA?
A potenciales de membrana negativos, el Mg²⁺ limita la corriente por un canal activado. La despolarización debilita el bloqueo y permite una señal de calcio que puede contribuir a la plasticidad. Es fisiología del receptor, no prueba de la eficacia de una cápsula.
¿Cuánto magnesio elemental hay en 2.000 mg de L-treonato?
La cantidad teórica es de unos 165 mg para la fórmula anhidra con una fracción de magnesio del 8,25%. La cantidad real depende del producto y figura en su etiqueta.
¿Se puede tomar para dormir o para el TEPT?
Los datos presentados no respaldan el L-treonato como tratamiento del insomnio o del TEPT. Los experimentos sobre extinción del miedo se realizaron en animales y la evidencia sobre la arquitectura del sueño para esta forma es limitada.
¿Cuándo es especialmente importante consultar con un profesional de salud antes de tomarlo?
Se requiere una valoración individual si hay enfermedad renal, uso de varios productos con magnesio, embarazo o lactancia, medicamentos con posibles interacciones o problemas persistentes de memoria y sueño.