
Гліцин, NMDA і сон: терморегуляція, синапси та системний обмін
Глибока монографія про GlyR, коагонізм NMDA й L/D-серин, SCN і людські дослідження сну, GSH/GlyNAC, GLYAT/GNMT, фармакокінетику та практичні межі.
Глибока монографія про GlyR, коагонізм NMDA й L/D-серин, SCN і людські дослідження сну, GSH/GlyNAC, GLYAT/GNMT, фармакокінетику та практичні межі.
Гліцин — невелика амінокислота, функції якої не можна описати одним словом «заспокійливий». Він входить до білків і метаболічних продуктів, бере участь у швидкому гальмуванні через гліцинові рецептори та водночас підтримує роботу збуджувальних NMDA-рецепторів. Напрям нейрональної відповіді визначають рецептор, іонні градієнти й локальна доступність коагоністів. Тому властивості синаптичного гліцину та наслідки вживання порошку потребують різних пояснень.
Інтерес до гліцину для поліпшення сну виник із невеликих досліджень за участю людей та експериментів із терморегуляції у тварин. Дані дають підстави обговорювати можливе полегшення засинання й окремі зміни самопочуття наступного дня, але не доводять лікування хронічного безсоння, збільшення глибокого сну чи відновлення мозку за скорочену ніч. Біохімічні ролі в синтезі глутатіону, кон'югації органічних кислот та обміні метильних груп встановлені надійніше, ніж універсальна користь додаткового приймання. Монографія розглядає механізми разом із межами їх перенесення в клінічну практику.
Гліцин, або аміноетанова кислота, має формулу C₂H₅NO₂ і молярну масу приблизно 75,07 г/моль. Біля його α-атома вуглецю розташовані два однакові замісники — атоми водню, тому серед двадцяти стандартних протеїногенних амінокислот він єдиний не утворює пару D- і L-енантіомерів. Це не робить молекулу біологічно «нейтральною»: ферменти та рецептори розпізнають розташування аміногрупи й карбоксильної групи. Проте «L-гліцин» і «D-гліцин» не позначають різні стереохімічні форми звичайного гліцину.
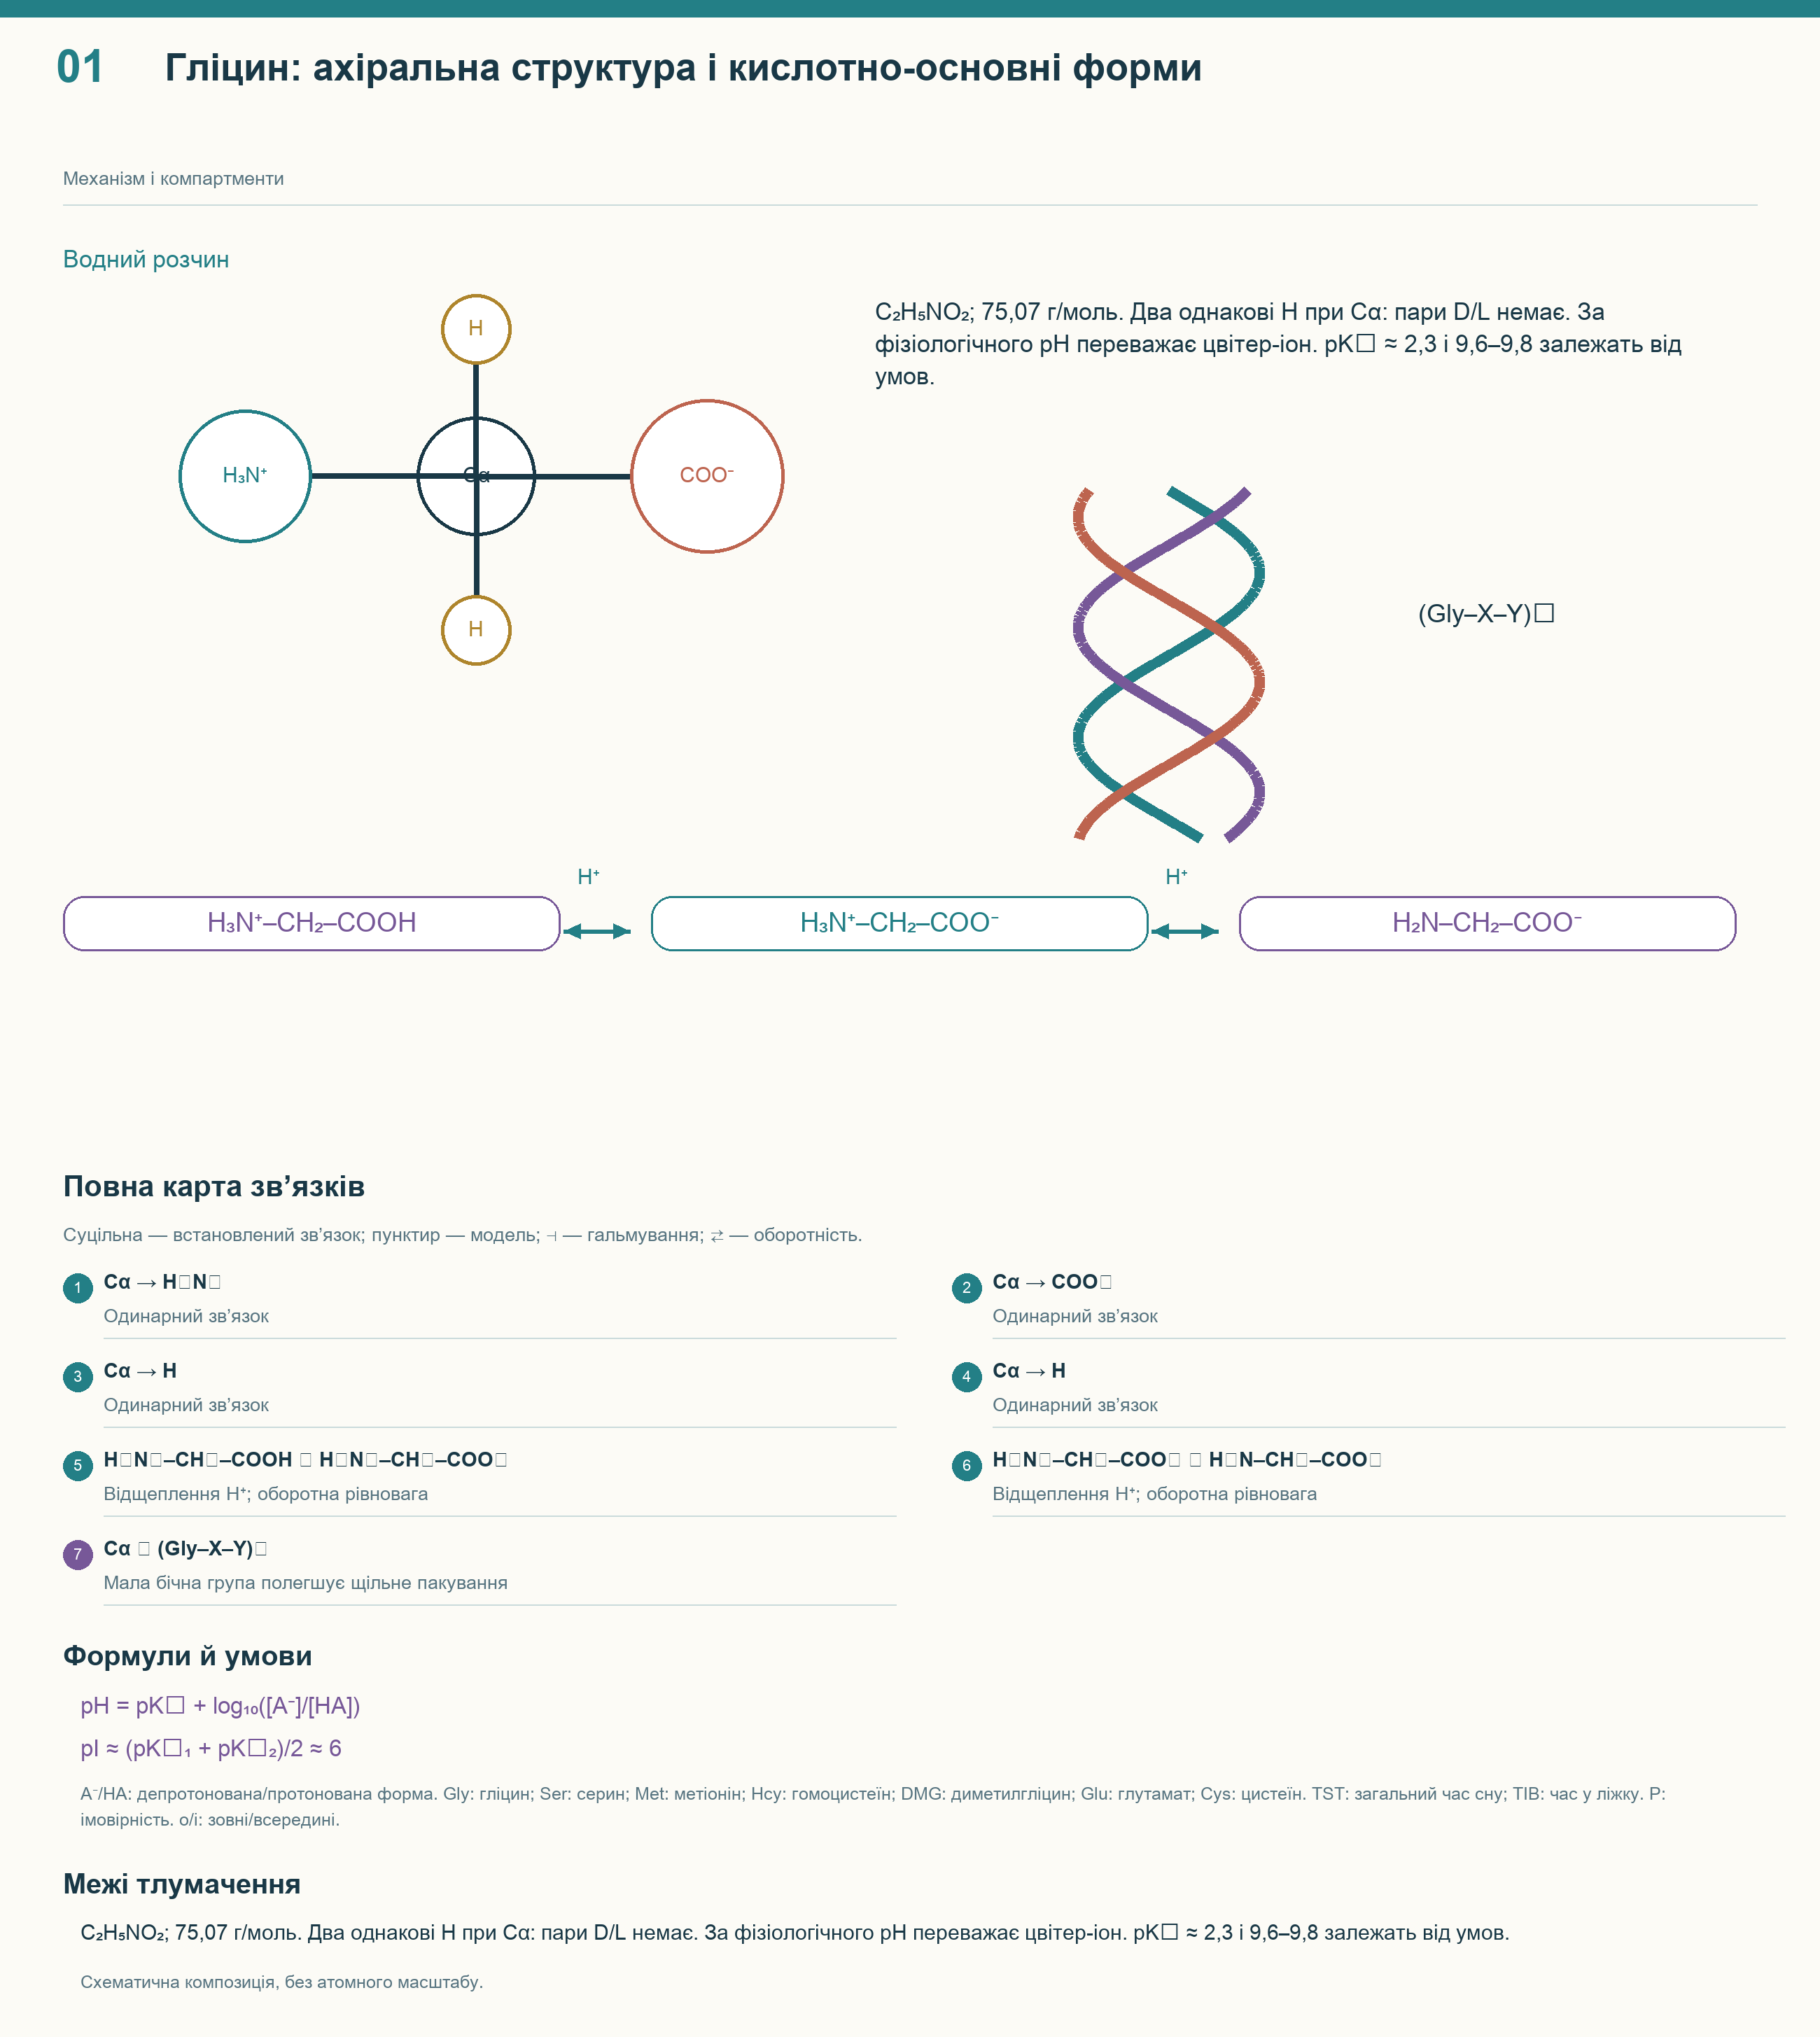
У водному розчині співіснують декілька кислотно-основних форм, співвідношення яких залежить від pH. Поблизу фізіологічних значень переважає цвітер-іон H₃N⁺–CH₂–COO⁻ із позитивним і негативним зарядами на різних групах. «Переважає» точніше за «існує виключно», адже рівновага не зникає у фізіологічному середовищі. pKₐ також залежать від температури, іонної сили та способу опису розчину, тому не є незмінними параметрами крові й ліквору.
H₃N⁺–CH₂–COOH ⇄ H₃N⁺–CH₂–COO⁻ + H⁺
H₃N⁺–CH₂–COO⁻ ⇄ H₂N–CH₂–COO⁻ + H⁺
pH = pKₐ + log₁₀([депротонована форма]/[протонована форма])
У навчальному наближенні використовують pKₐ карбоксильної групи близько 2,3, а амонійної — 9,6–9,8. Для простої амінокислоти без іонізованого бічного ланцюга pI ≈ (pKₐ₁ + pKₐ₂)/2, тобто приблизно 6. Це pH середнього нульового сумарного заряду, а не стан, у якому обидві групи неодмінно втрачають свої заряди. Рівняння Гендерсона—Гассельбаха пояснює розподіл форм, але не замінює опис активностей у справжній біологічній рідині.
Мала бічна група зменшує стеричні обмеження торсійних кутів φ і ψ білкового остова. Дозволені ділянки карти Рамачандрана для гліцину ширші, ніж для більшості інших амінокислот, але не всі конформації однаково ймовірні. Це полегшує деякі повороти та щільне пакування ланцюгів. У колагені повтор (Gly–X–Y)ₙ розміщує гліцин у кожній третій позиції, де більша група заважала б потрійній спіралі; сам повтор не означає, що будь-яка добавка прискорює її утворення.
Гліцин належить до замінних амінокислот, оскільки організм може його синтезувати. Основний шлях пов'язаний із серином і серингідроксиметилтрансферазами: SHMT1 працює переважно в цитозолі, SHMT2 — у мітохондріях. Реакція використовує піридоксальфосфат і переносить одновуглецеву групу на тетрагідрофолат, THF. Зворотність важлива: сама наявність ферменту не визначає напрям потоку в тканині.
Серин + THF ⇄ гліцин + 5,10-CH₂-THF + H₂O
5,10-CH₂-THF — метилентетрагідрофолат, носій одновуглецевої одиниці для подальших реакцій. Мітохондріальний і цитозольний фолатні пули не слід малювати як одну ємність, що вільно перемішується. Досліди з редагуванням генів та ізотопними мітками в культивованих клітинах показують перерозподіл потоків після порушення мітохондріального шляху. Результат пояснює клітинну пластичність, але не задає добової норми гліцину для людини.
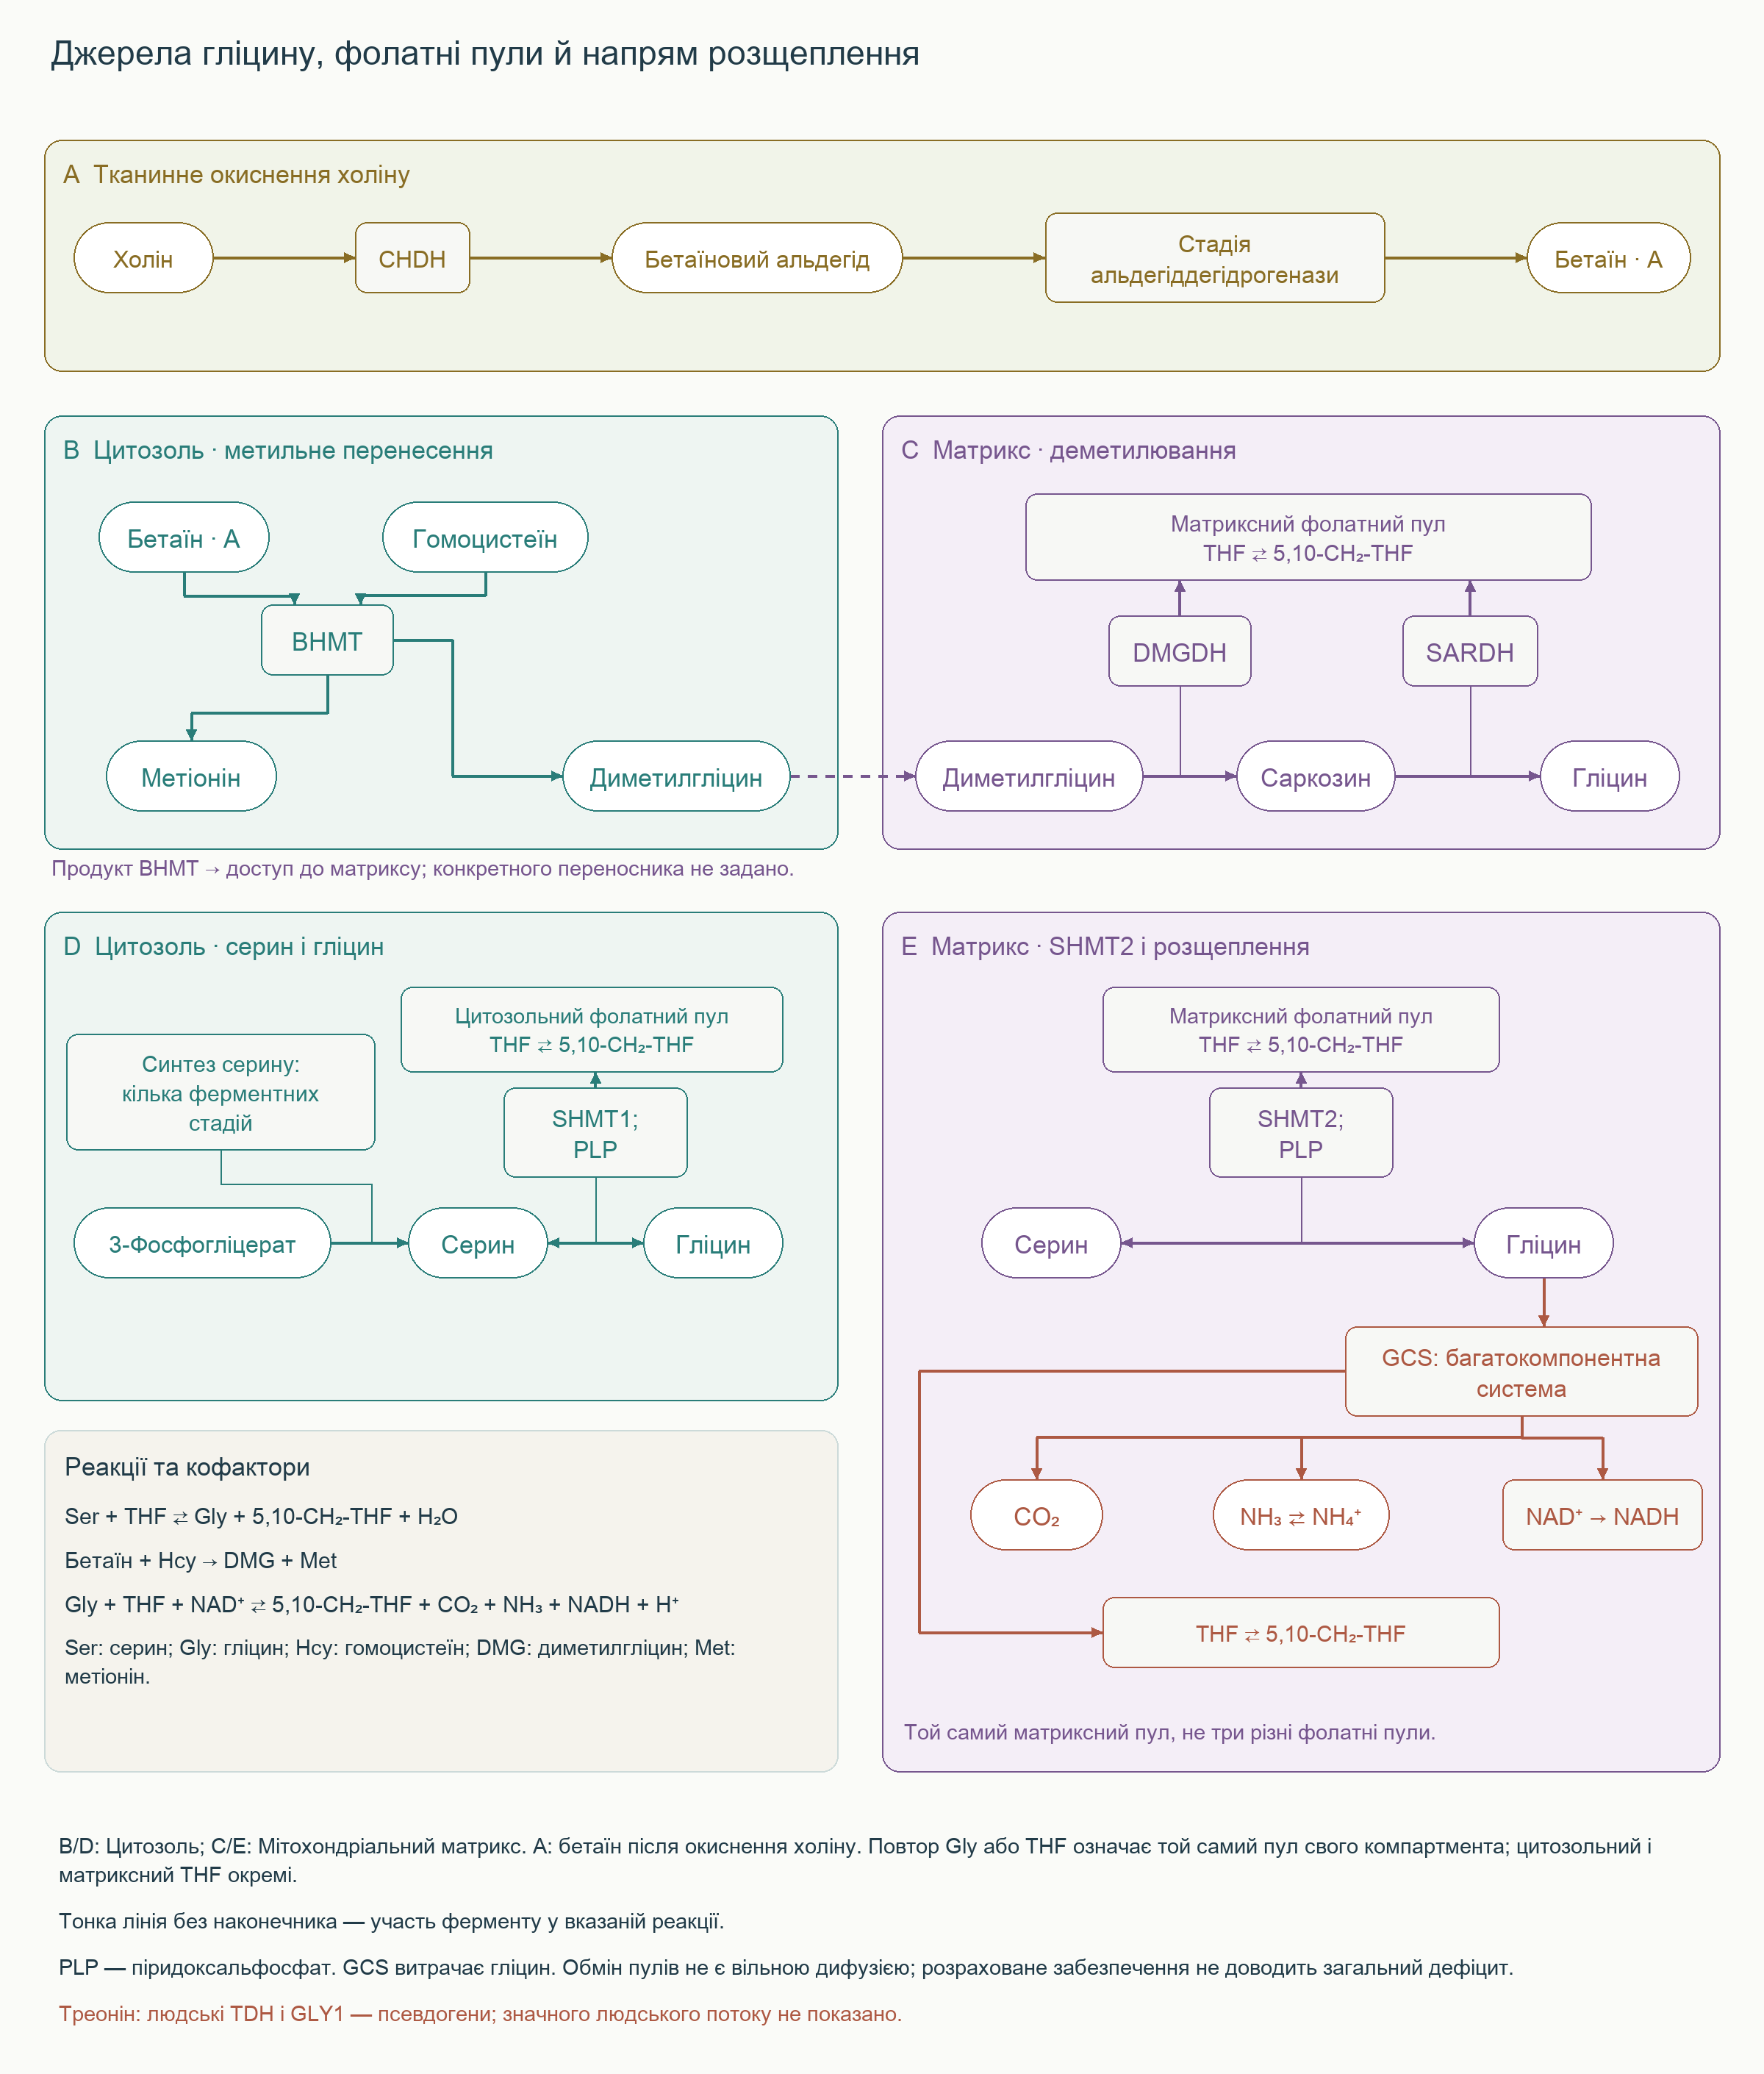
Інший маршрут пов'язує гліцин з окисненням холіну та обміном метильних груп. Холін послідовно переходить у бетаїновий альдегід і бетаїн; BHMT переносить метильну групу бетаїну на гомоцистеїн із появою метіоніну та диметилгліцину. Мітохондріальні DMGDH і SARDH утворюють саркозин і далі гліцин, поєднуючи окисне деметилювання з одновуглецевим обміном. Шлях має тканинну організацію та не є однаково активним у кожному нейроні.
Бетаїн + гомоцистеїн → диметилгліцин + метіонін
Гліцин-розщеплювальна система GCS, навпаки, витрачає гліцин у мітохондріях. Білкові компоненти забезпечують декарбоксилювання, перенесення амінометильної групи й відновлення окисненої форми кофактора; вуглець надходить до CO₂ та фолатного пулу, азот вивільняється як аміак, переважно наявний у розчині у формі NH₄⁺. Катаболічну стрілку спрямовують від гліцину до продуктів, а не показують ще одним джерелом амінокислоти. Порушення комплексу доводять, що недостатнє видалення може бути не менш істотним за недостатню доступність.
Гліцин + THF + NAD⁺ ⇄ 5,10-CH₂-THF + CO₂ + NH₃ + NADH + H⁺
Це сумарна біохімічна реакція GCS, не дія одного ферменту. NH₃ відображає прийнятий запис балансу; для фізіологічного розчину треба враховувати NH₃ + H⁺ ⇄ NH₄⁺. Механічна заміна NH₃ на NH₄⁺ без зміни протонного балансу була б неточною. NAD⁺ і NADH — окиснена та відновлена форми нікотинамідаденіндинуклеотиду.
Треонінові шляхи потребують видової примітки. Дослідження людських генів показали, що TDH, який відповідає треоніндегідрогеназі, є експресованим псевдогеном; людський гомолог самостійної треонінальдолази GLY1 теж утратив функціональність. Це не виключає побічних активностей, але не дає підстав установлювати універсальний внесок «менше 5%» без вимірювань. Активний шлях у миші чи невелика альдолазна активність екстракту не дорівнюють кількісній оцінці людського синтезу.
Розрахунки синтезу колагену поставили питання, чи завжди власна продукція гліцину покриває всі потреби. Одна модель зіставляла близько 3 г синтезу на добу, харчове надходження та припущені витрати на структурні й метаболічні функції. Це корисна гіпотеза можливого обмеження, але вона залежить від припущень про білковий обіг, повторне використання амінокислот і швидкості синтезу. Вона не доводить щоденного дефіциту в кожного дорослого масою 70 кг.
Валові витрати на збирання білків відрізняються від кількості, яку треба заново одержати з їжі чи синтезувати. Розпад білків повертає амінокислоти в обмін; сума потоків без цього повернення завищує чисту потребу. Низька концентрація в певній групі пацієнтів також не встановлює універсальної дози добавки. Забезпечення слід пов'язувати з раціоном, станом людини й вимірюваним завданням, а не обов'язковою компенсацією різниці «3 проти 15 г».
Гліцин підтримує гальмівну та збуджувальну передачу, взаємодіючи з принципово різними комплексами. GlyR проводить переважно аніони, тоді як звичайний NMDA-рецептор проводить катіони й потребує коагоніста разом із глутаматом. У спинному мозку та стовбурі багато гліцинергічних гальмівних ланцюгів, але поділ на «гальмівний низ» і «збуджувальний верх» спрощує анатомію. Важливі конкретна синаптична ділянка, вік, субодиниці та стан клітини.
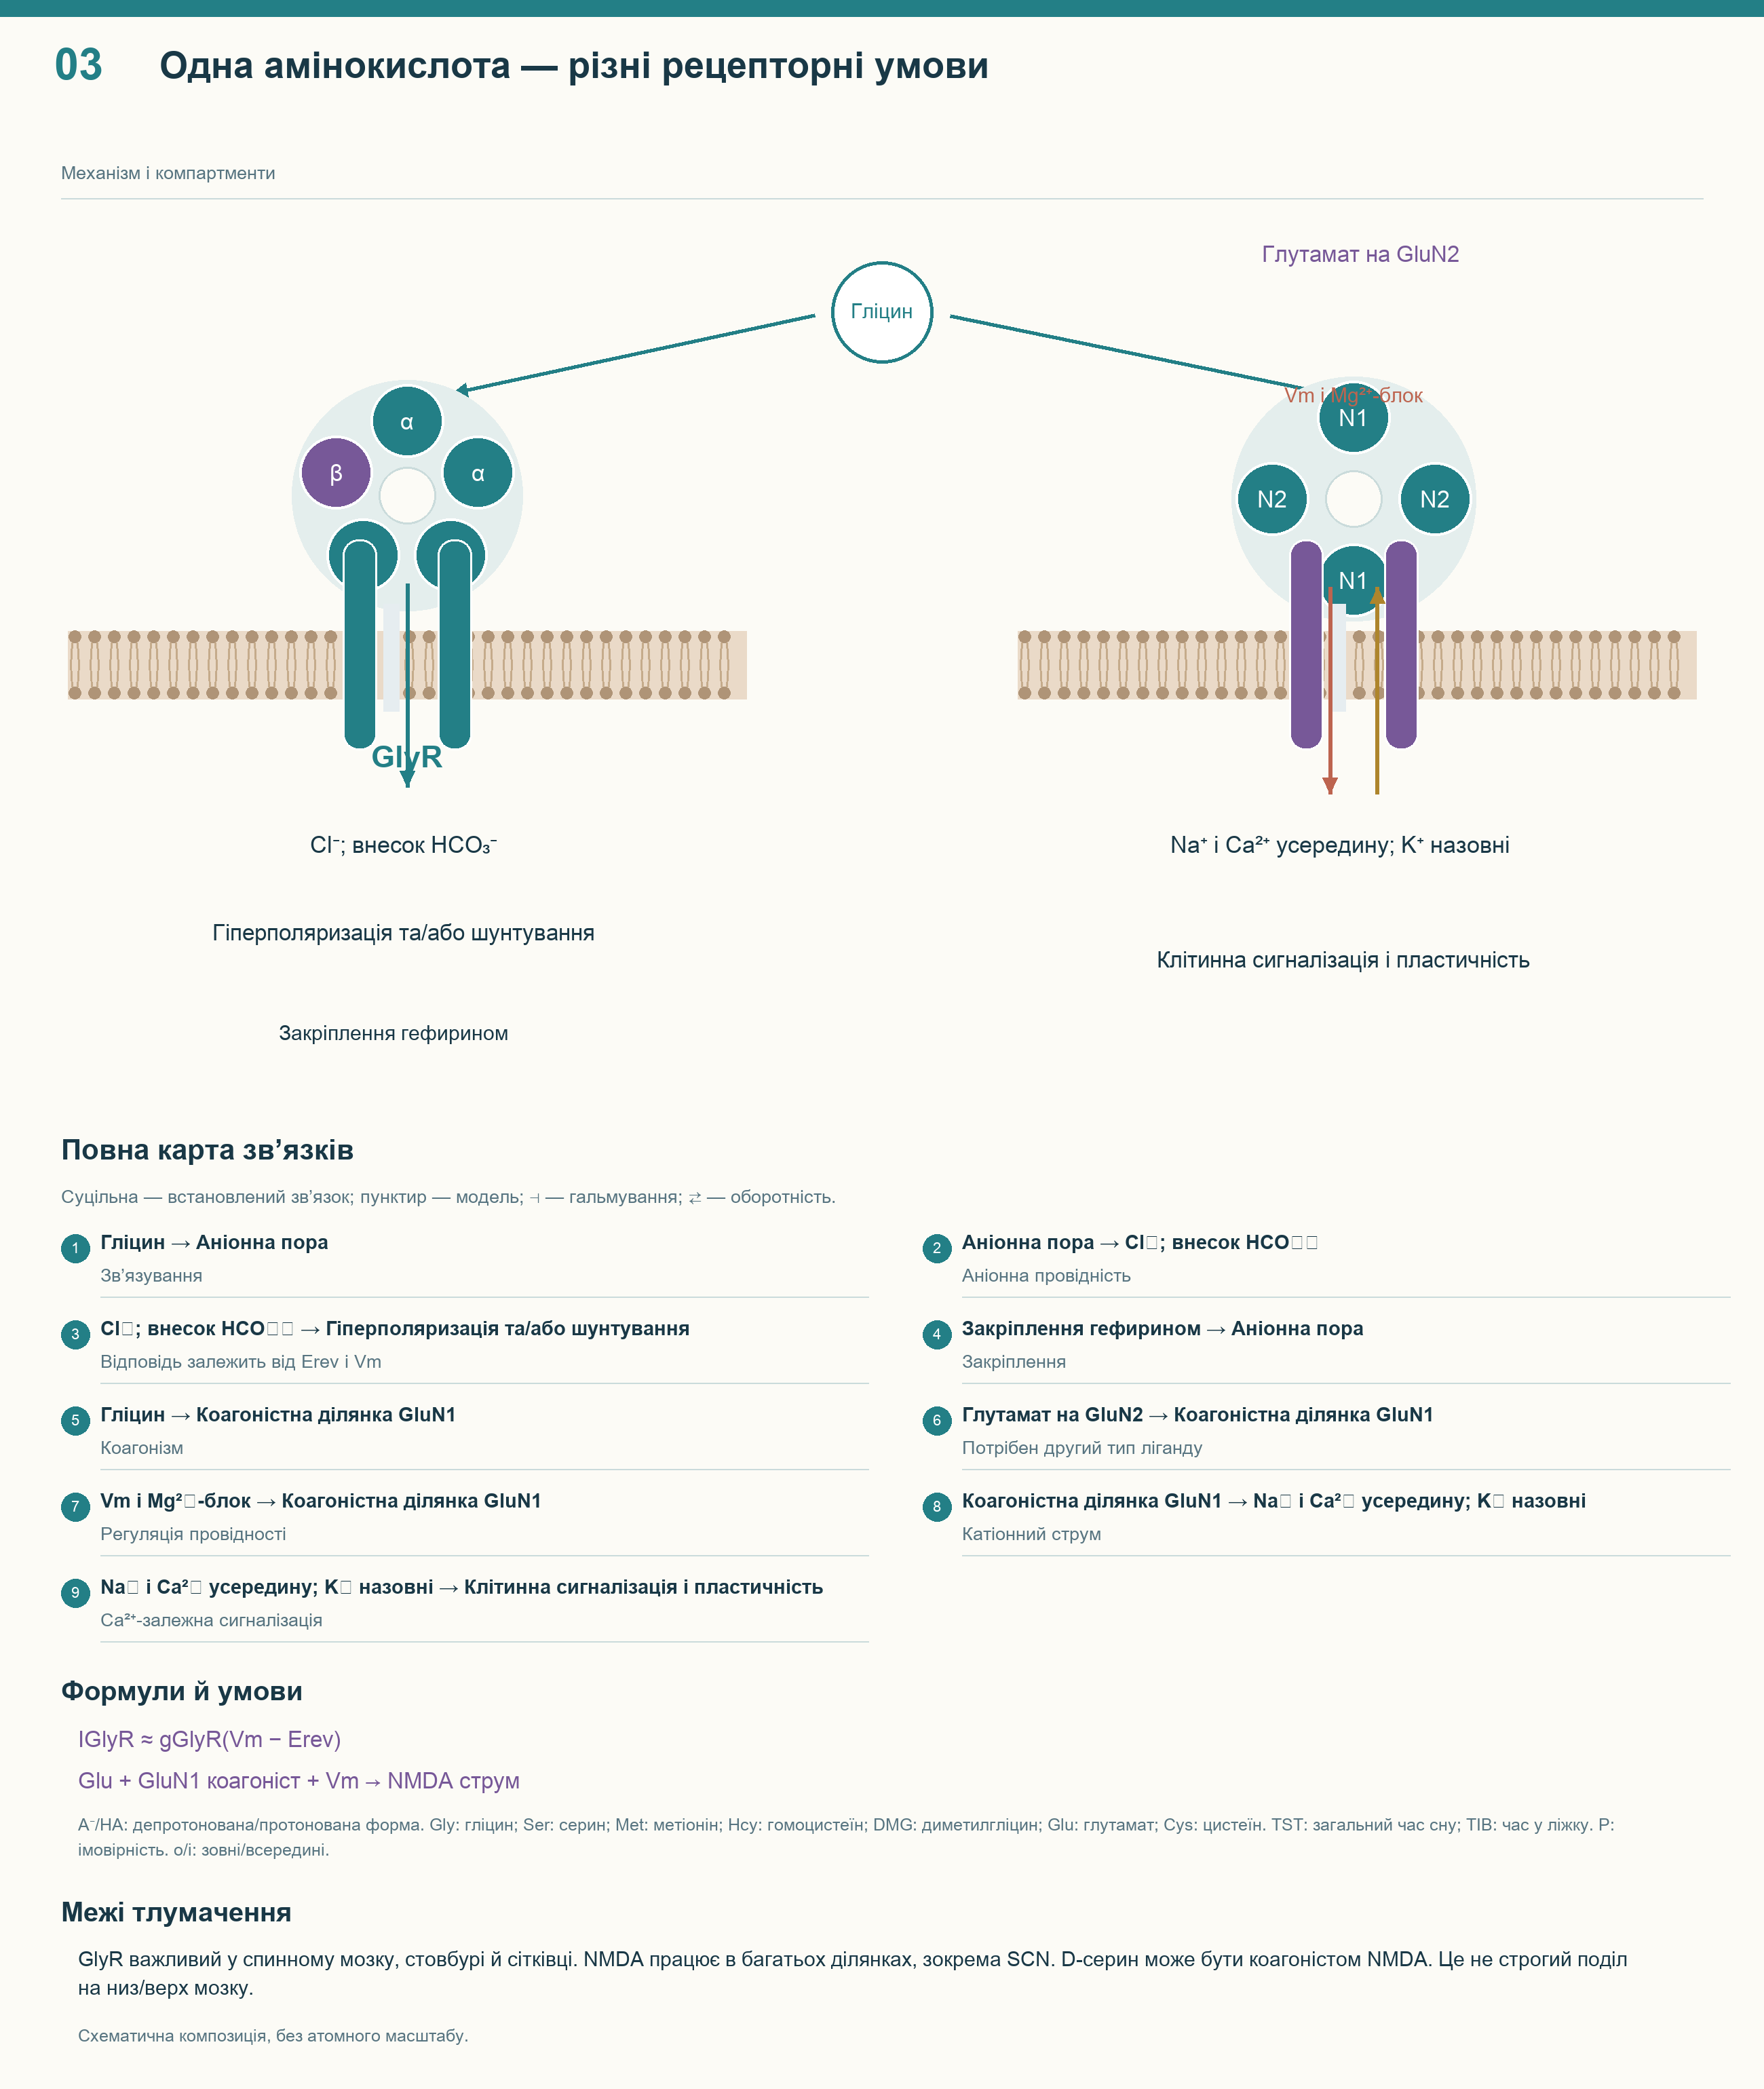
GlyR належить до пентамерних Cys-петльових каналів, керованих лігандом. П'ять субодиниць оточують центральну пору, а позаклітинне зв'язування гліцину змінює конформацію та ймовірність відкриття. α-субодиниці розпізнають ліганд і формують канал; β теж бере участь у функціональній структурі й забезпечує зв'язок із постсинаптичним каркасом. Називати її лише нерухомою опорою неточно.
Структурні дослідження нативних і людських рекомбінантних комплексів підтримують склад 4α:1β для досліджених гетеромерних GlyR. Старі моделі 3α:2β не мають подаватися як настільки ж надійна універсальна архітектура зрілого рецептора. α1, α2 та α3 різняться розподілом і властивостями; людський GLRA4 — псевдоген, тож перелік чотирьох α-ізоформ інших хребетних потребує видової примітки. Гомомерні α-рецептори також існують, особливо в експериментах і під час розвитку тканини.
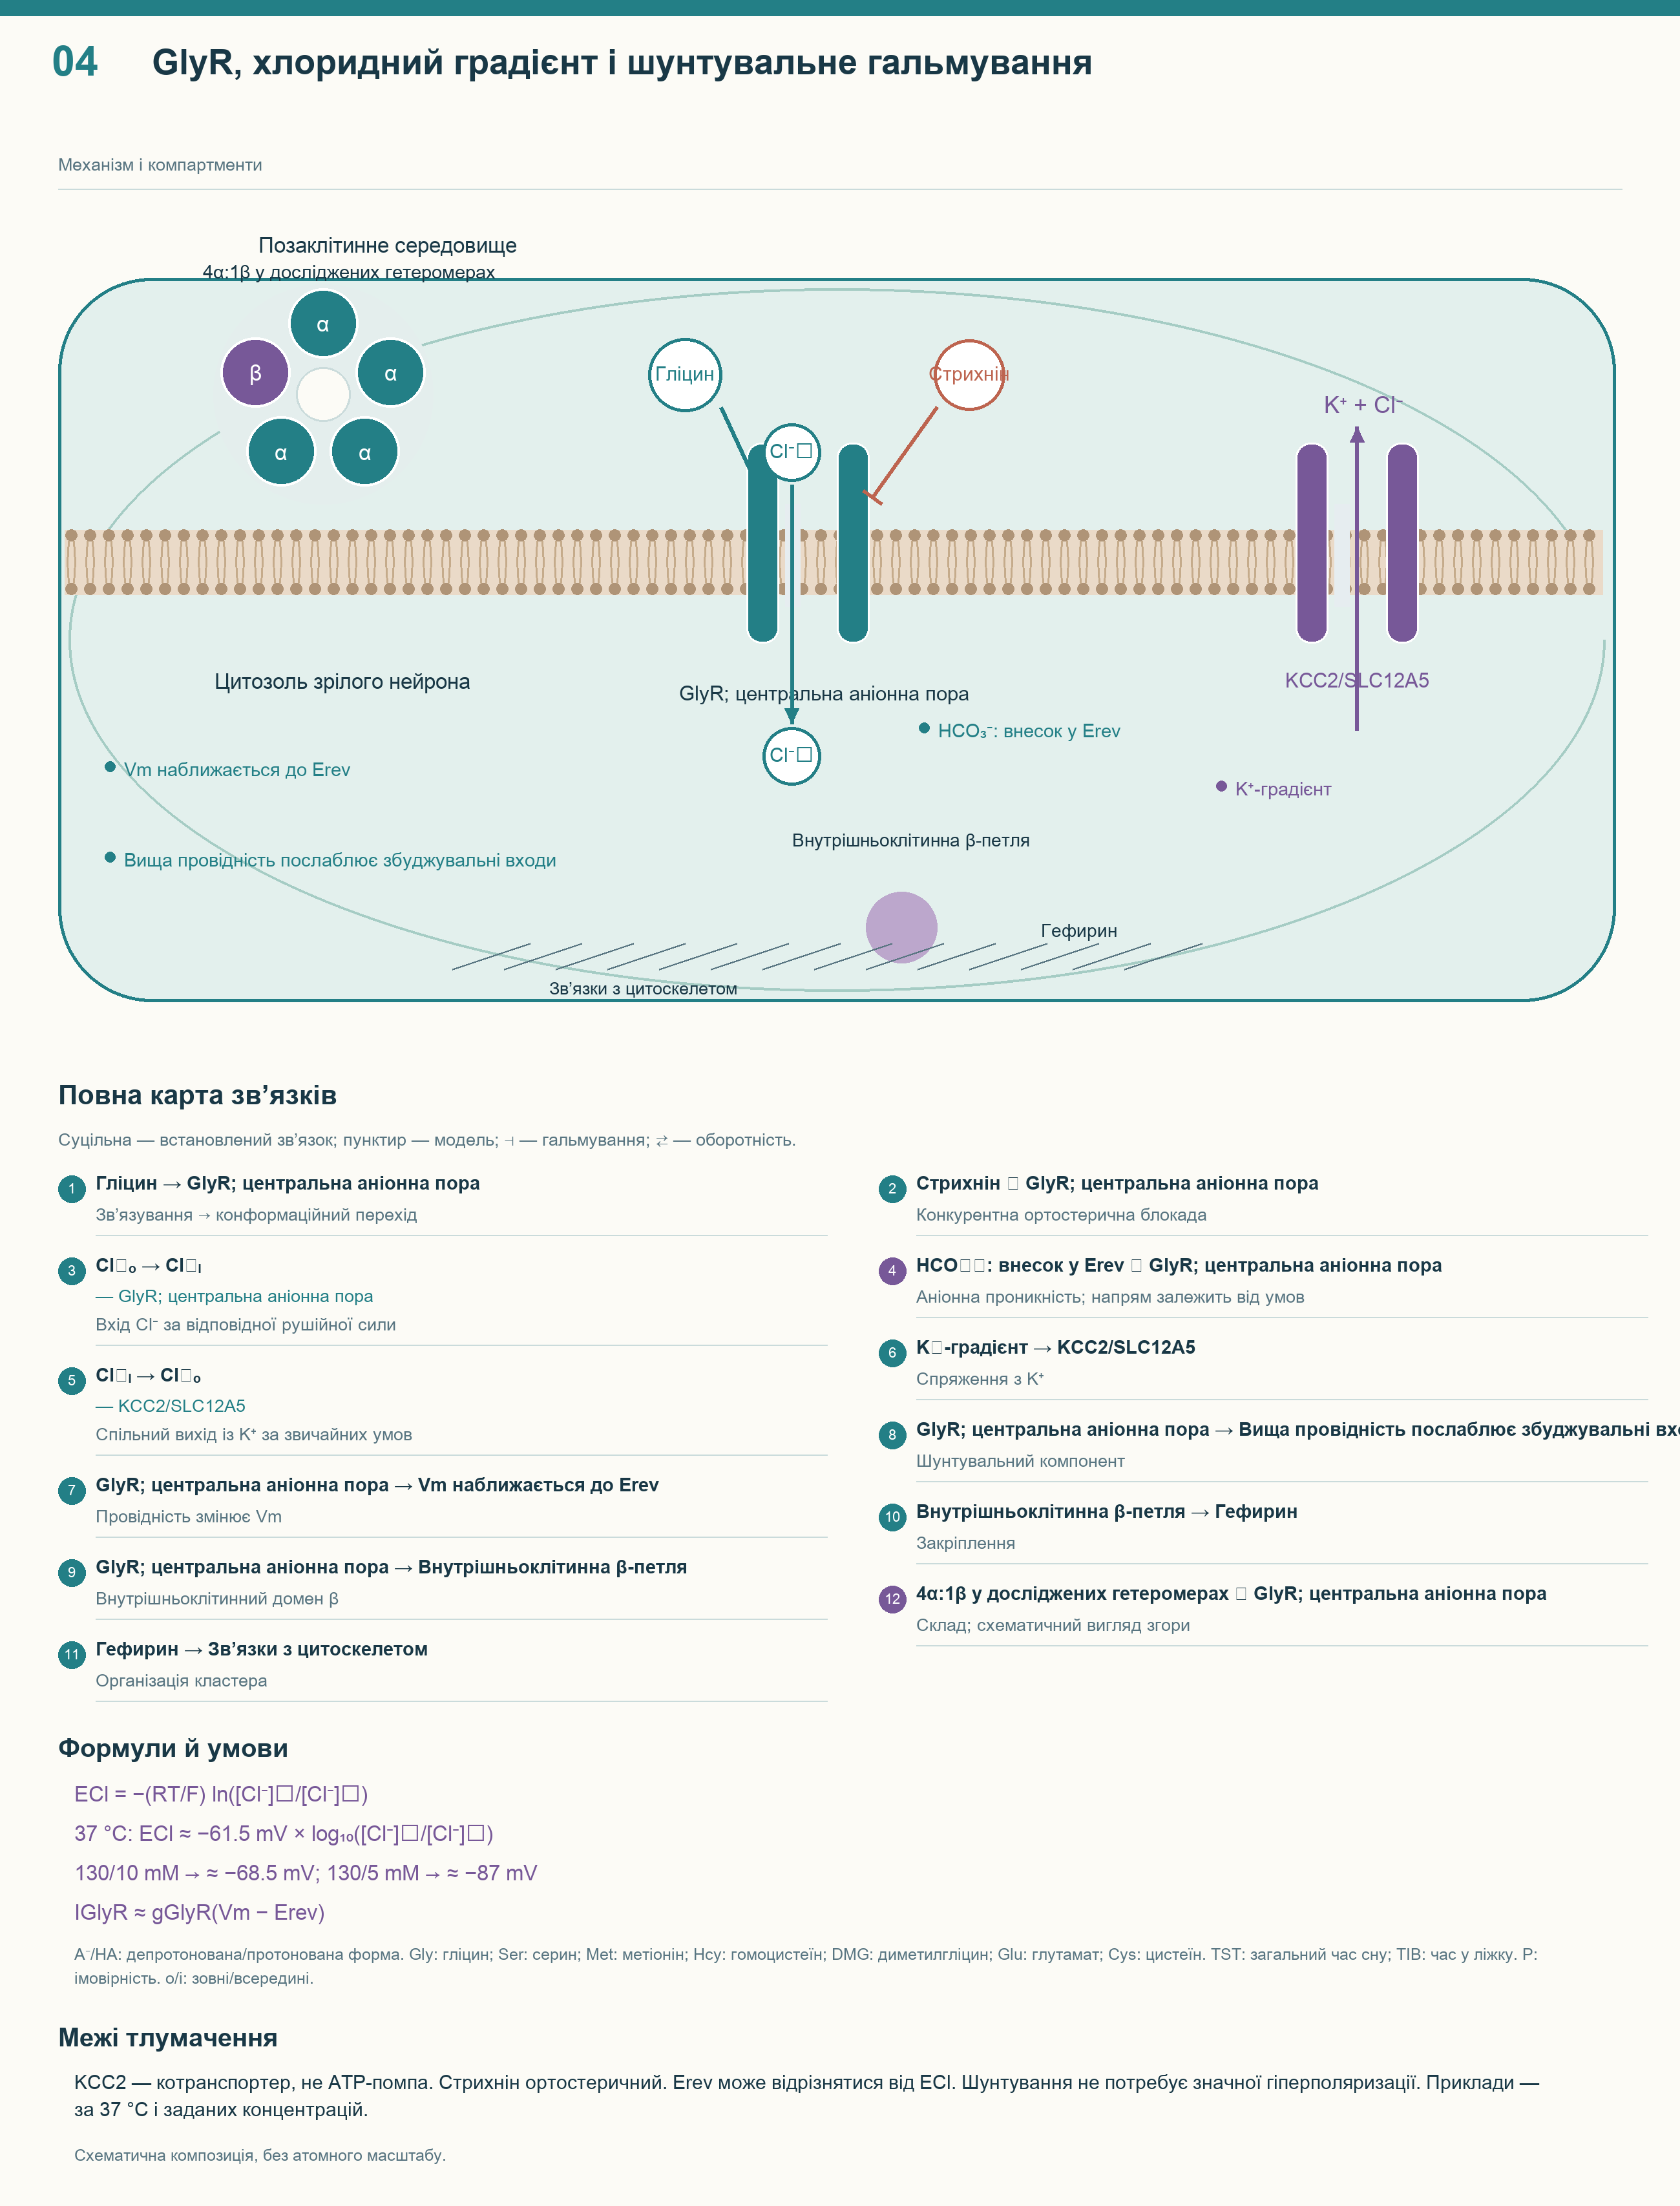
Гефірин зв'язується з внутрішньоклітинною ділянкою β і допомагає втримувати рецептори у постсинаптичних кластерах. Організація динамічна, з обміном молекул, а не обов'язкова ідеальна шестикутна решітка з фіксованим числом каналів. Цитоскелет та інші білки підтримують просторове налаштування гальмівного синапсу. Тому схема показує закріплення без універсальних розмірів кластера чи числа мікротрубочок.
Стрихнін займає ортостеричну ділянку й діє як конкурентний антагоніст. Не можна одночасно називати його конкурентним і поміщати в окрему обов'язкову «алостеричну кишеню». EC₅₀ описує концентрацію половинної функціональної відповіді в конкретному досліді, Kᵢ — інакше визначений параметр інгібування; обидва залежать від системи. 20–50 мкМ і 5–10 нМ без складу рецептора та умов — не паспортні константи всіх GlyR людини.
Струм відкритого каналу визначає електрохімічна рушійна сила. У зрілому нейроні KCC2, або SLC12A5, зазвичай підтримує низький внутрішньоклітинний Cl⁻, спільно переносячи K⁺ та Cl⁻. Це вторинно активний котранспортер, а не хлорна АТФаза. Створення градієнтів потребує енергії клітини, але KCC2 не гідролізує ATP у кожному циклі.
ECl = (RT/zF) ln([Cl⁻]ₒ/[Cl⁻]ᵢ), де z = −1
За 37 °C: ECl ≈ −61,5 мВ × log₁₀([Cl⁻]ₒ/[Cl⁻]ᵢ)
IGlyR ≈ gGlyR × (Vm − Erev)
У Нернста R — газова стала, T — абсолютна температура, F — стала Фарадея; «o» й «i» означають зовнішнє та внутрішнє середовище. Для умовних 130 мМ зовні й 10 мМ усередині ECl ≈ −68,5 мВ; для 5 мМ усередині — близько −87 мВ. Приклади пояснюють залежність, не норму кожного нейрона. У струмовому рівнянні gGlyR — провідність, Vm — мембранний потенціал, Erev — потенціал реверсії всього аніонного струму, який може відрізнятися від ECl через HCO₃⁻.
Якщо Erev негативніший за Vm, відкриття GlyR наближає мембрану до негативнішого рівня. Зростання провідності водночас послаблює збуджувальні входи: шунтувальне гальмування не вимагає великої видимої зміни потенціалу. За інших градієнтів відповідь буває деполяризувальною, але не кожна деполяризація досягає порога спайка. «Cl⁻ неодмінно входить, Vm переходить із −65 до −75 мВ» — лише умовний приклад із заданими параметрами.
Порушення гліцинергічного гальмування важливе клінічно, але харчовий гліцин не лікує будь-яке таке порушення. Патогенні варіанти GLRA1, GLRB і SLC6A5 пов'язані зі спадковою гіперекплексією — надмірним переляком і епізодами скутості, а не просто іншою назвою епілепсії. Правцевий токсин розщеплює синаптобревін/VAMP, порушуючи виділення гальмівних медіаторів, і діє ширше одного гліцинового ланцюга клітин Реншоу. Приклади стосуються рецептора й синаптичного апарату, не доводячи побутової користі більшої дози.
Типовий GluN1/GluN2 містить дві GluN1 та дві GluN2, іноді різних ізоформ. Гліцин чи D-серин займає коагоністну ділянку GluN1, глутамат — ділянки GluN2. Вони взаємодіють функціонально, але гліциновий сайт є місцем коагоніста, не довільним бічним перемикачем. Комплекси з GluN3 додатково обмежують перенесення цієї моделі на всю родину.
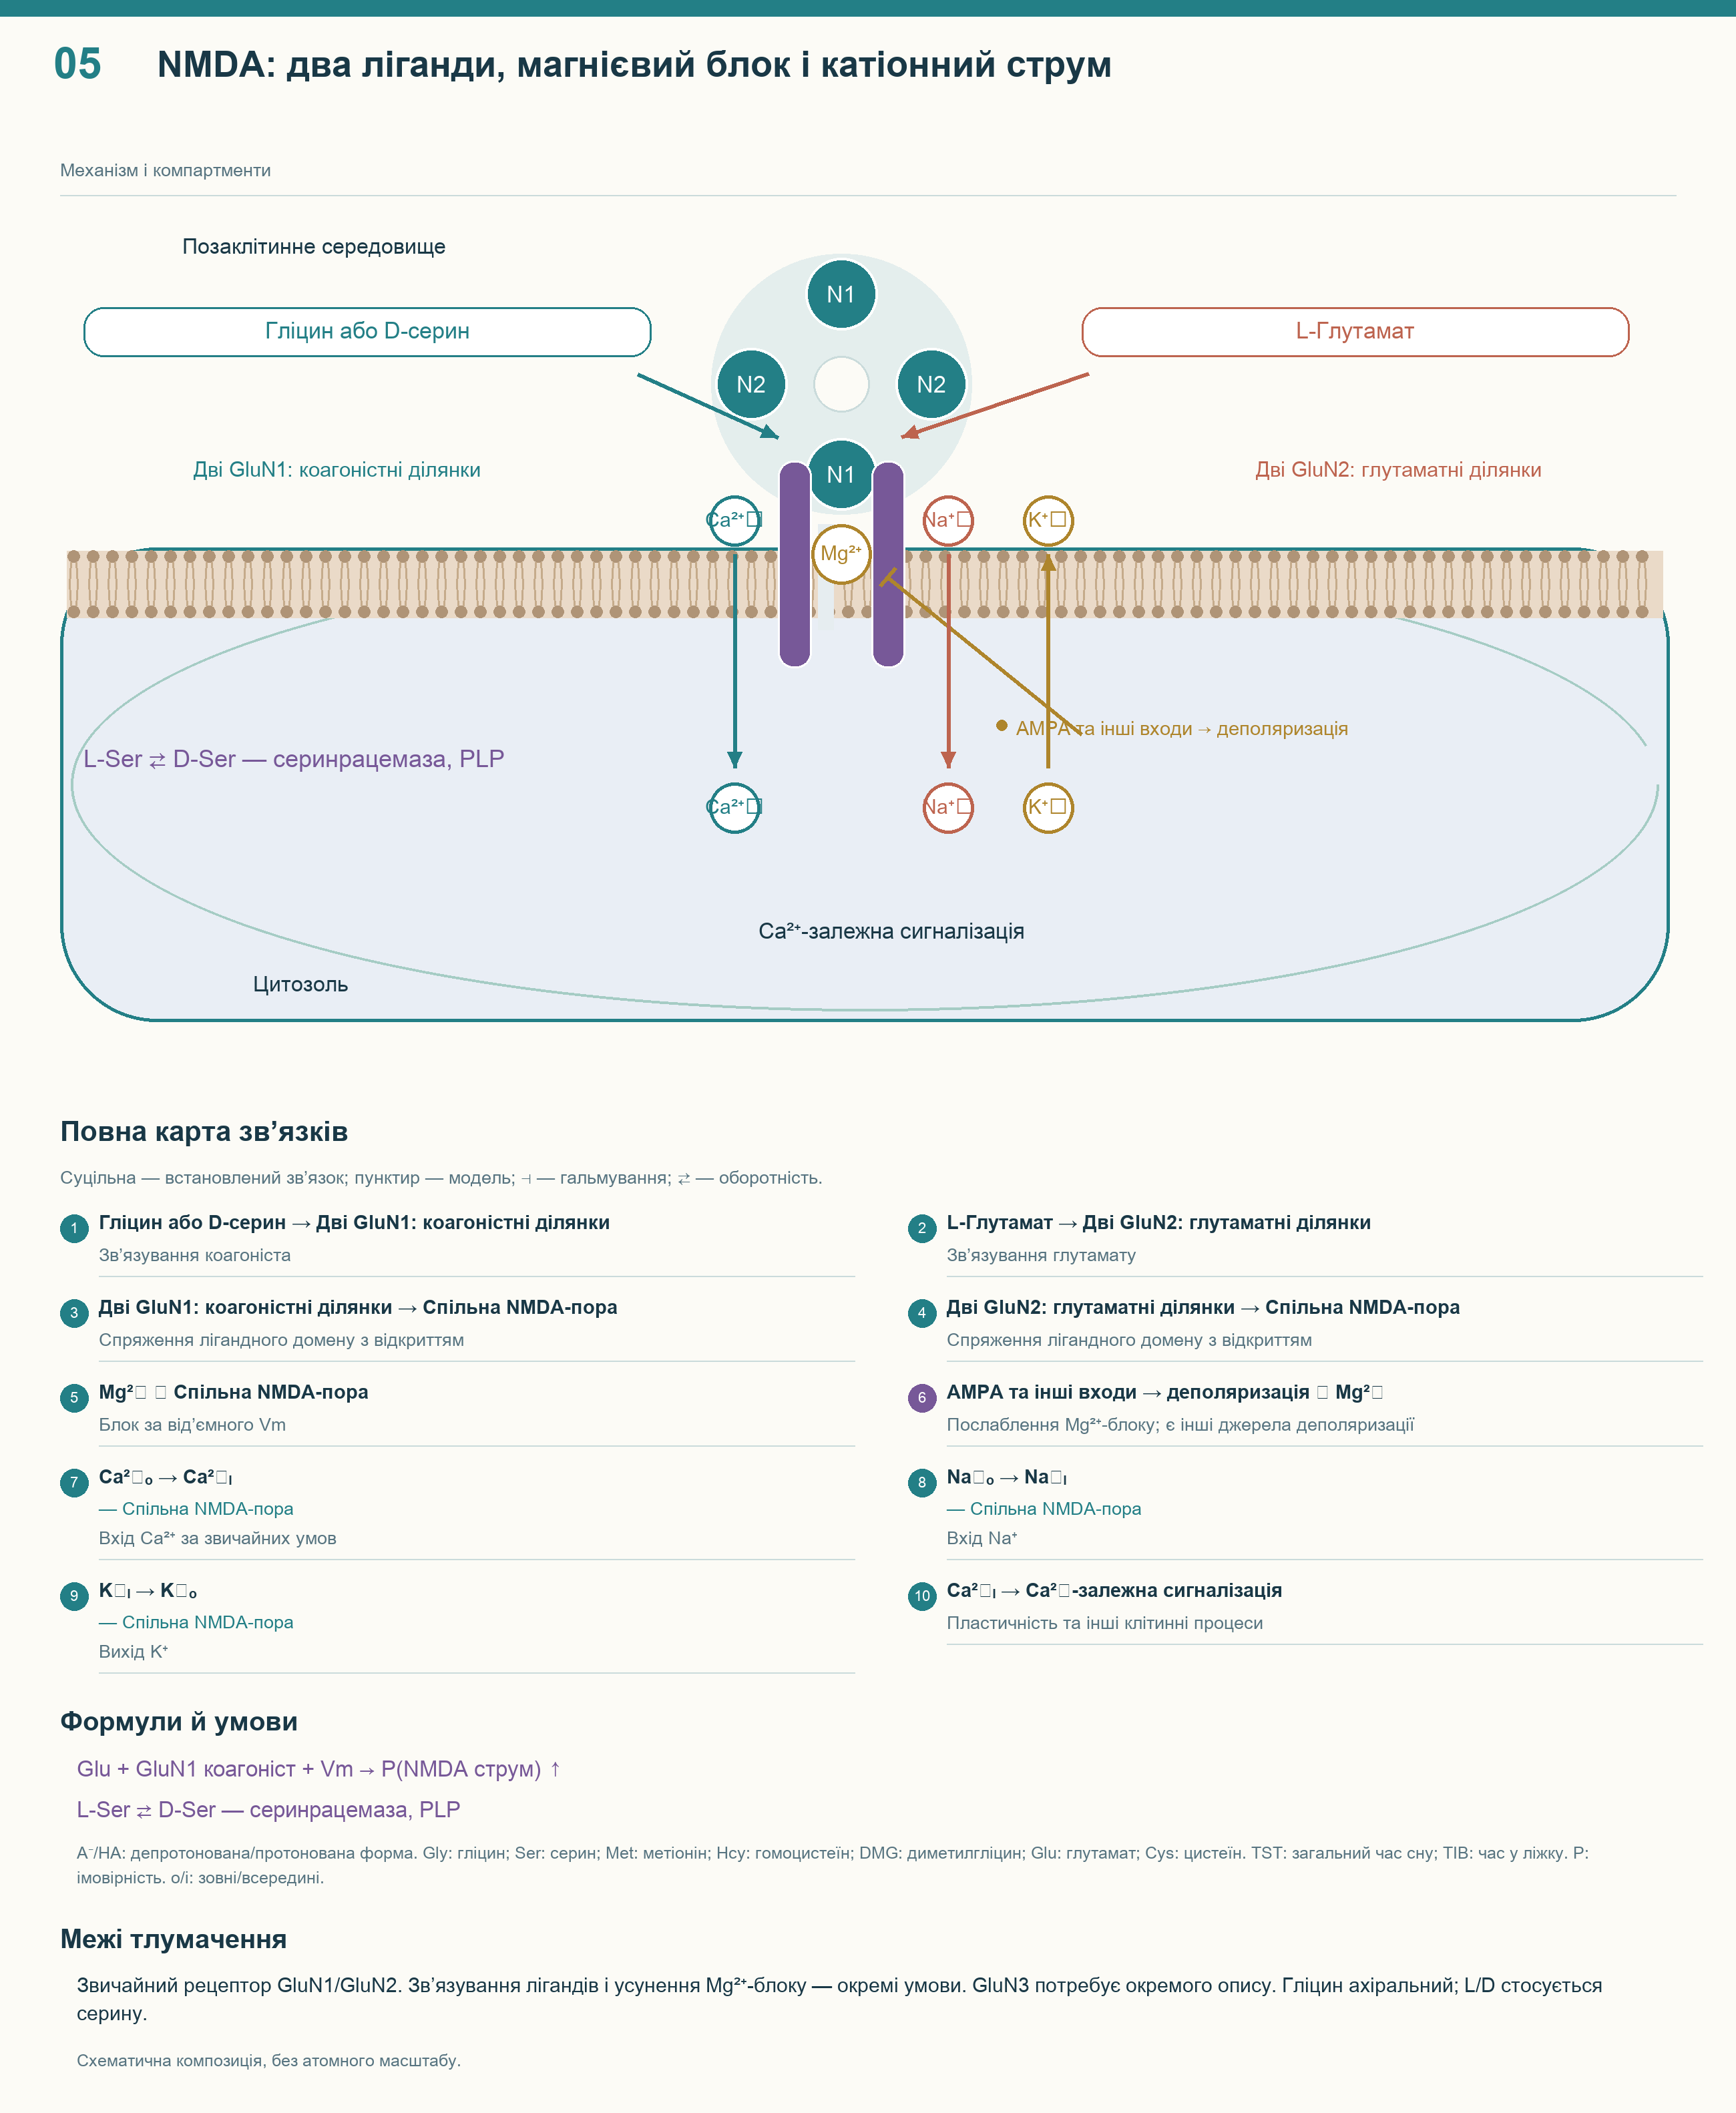
У класичних дослідах Джонсона й Ашера на культивованих нейронах миші гліцин посилював NMDA-відповідь незалежно від стрихнін-чутливих GlyR. Це допомогло встановити власний коагоністний механізм збуджувального каналу. За фізіологічного Mg²⁺ двох типів лігандів замало для великого струму в клітині спокою, адже магнієвий блок залежить від Vm. Деполяризація, часто створена AMPA та іншими входами, полегшує проведення з входом Na⁺/Ca²⁺ і виходом K⁺.
Глутамат + коагоніст GluN1 + відповідний Vm → вища ймовірність NMDA-струму
Це функціональна схема умов, не реакція з трьома витраченими субстратами. Коагоніст не визначає момент збудження самостійно й не скасовує потреби в глутаматному сигналі. Ca²⁺ пов'язує рецептор із сигналізацією та пластичністю, але надмірний чи неправильно локалізований потік може сприяти ушкодженню. «Посилення NMDA завжди безпечне» так само неточно, як «гліцин завжди гальмує».
D-серин — ендогенний коагоніст NMDA, що показано ферментативним видаленням та відновленням відповіді після додавання. Гіпокампальні препарати також виявляли переважну участь D-серину в синаптичних, а гліцину в певних позасинаптичних відповідях. Спостереження описують конкретні препарати, оточення й стимуляцію. Вони не встановлюють правила «всі GluN2A — лише D-серин, усі GluN2B — виключно гліцин» для кожного віку й ділянки.
На відміну від ахірального гліцину, серин має L- та D-форми з різною просторовою конфігурацією. Серинрацемаза перетворює L-серин на D-серин; реакцію показали при виділенні ферменту з мозку гризунів і молекулярній характеристиці. Тому «D-серин» має біохімічний зміст, а «D-гліцин» та «L-гліцин» не означають дві стандартні молекули. L-серин як попередник не можна безумовно прирівнювати до локального коагоніста D-серину.
L-Серин ⇄ D-серин — серинрацемаза, піридоксальфосфат
Серинрацемаза й обмін серину пов'язують регуляцію з взаємодією нейронів та глії. Внесок джерел, транспортера й ізоформ змінюється, тому середня тканинна концентрація не встановлює насичення сайту. EC₅₀ рекомбінантного досліду теж не визначає дозу порошку для сну. Плазму, міжклітинну рідину й оточення рецептора розділяють транспорт, метаболізм і геометрія синапсу.
GlyT1 і GlyT2 — SLC6-переносники, спряжені з Na⁺ та Cl⁻. GlyT1, кодований SLC6A9, контролює позаклітинний гліцин у глії та деяких нейрональних популяціях. GlyT2, SLC6A5, накопичує його у гліцинергічних пресинаптичних закінченнях. Виділення потім потребує везикулярного пакування й екзоцитозу, тож не можна малювати прямий перехід із крові у везикулу.
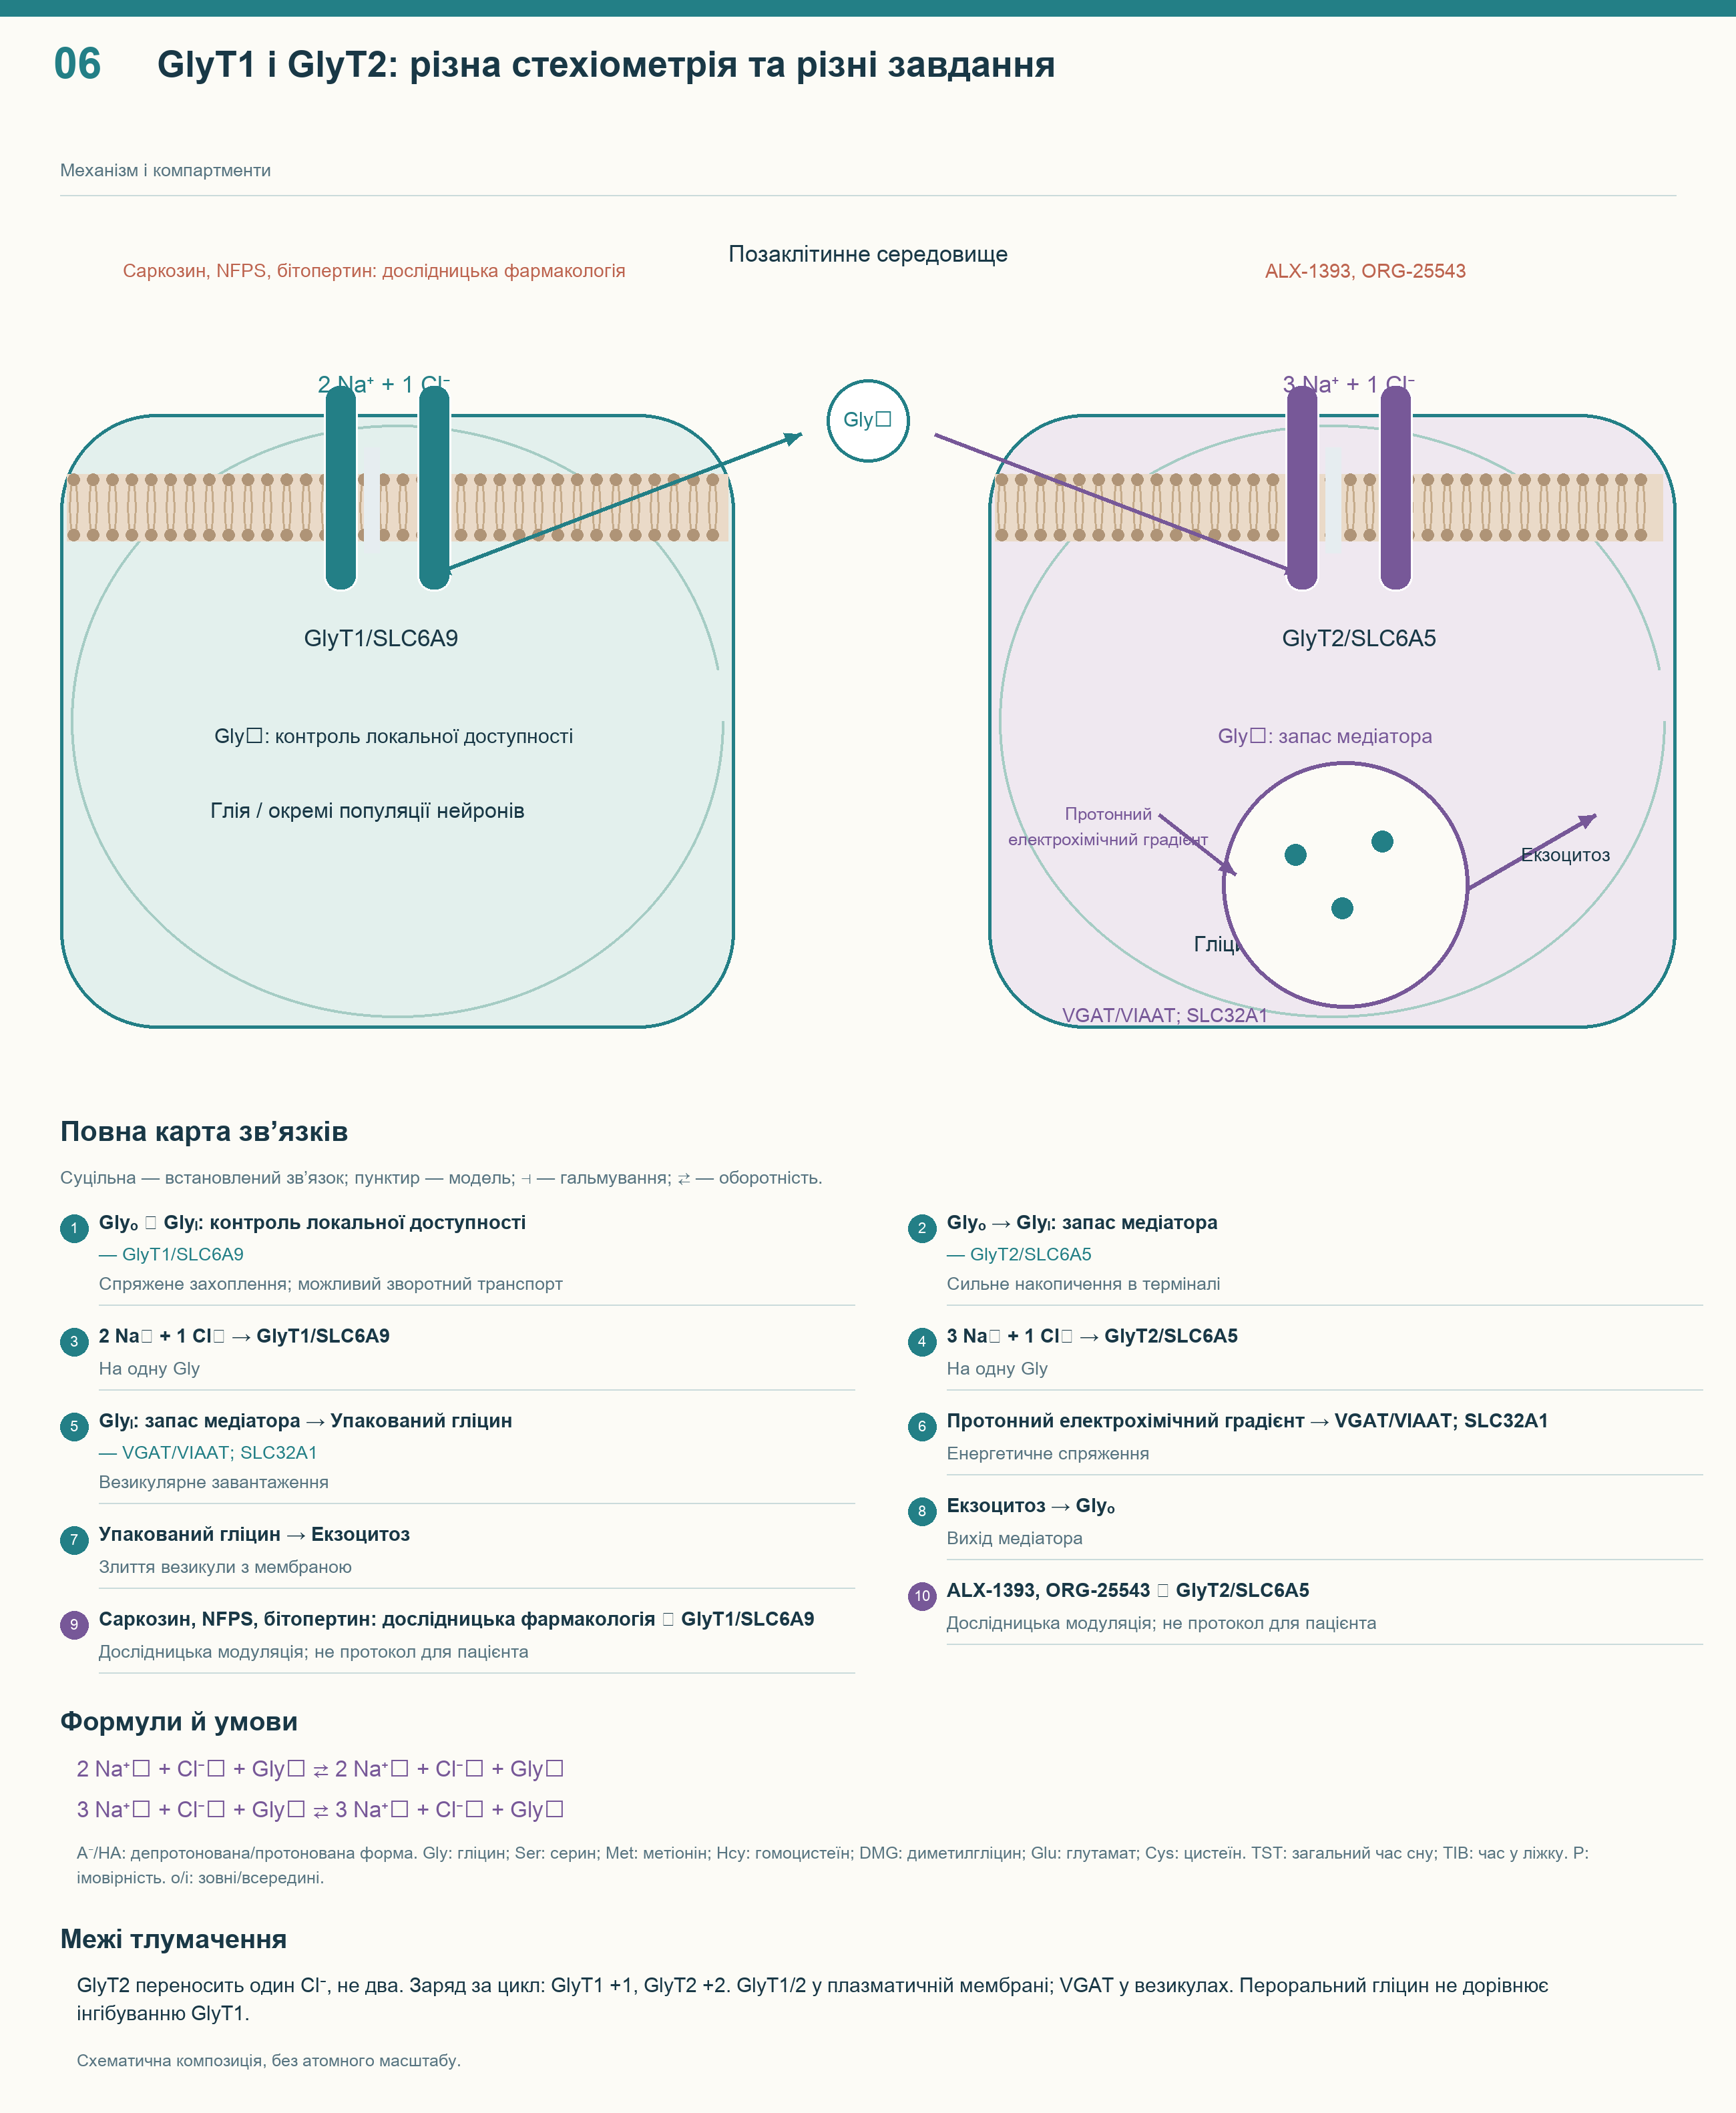
| Властивість | GlyT1 | GlyT2 |
|---|---|---|
| Ген | SLC6A9 | SLC6A5 |
| Типова локалізація | Глія та окремі нейрональні популяції | Гліцинергічні пресинаптичні закінчення |
| Спряження на молекулу | 2 Na⁺ : 1 Cl⁻ : 1 Gly | 3 Na⁺ : 1 Cl⁻ : 1 Gly |
| Основне завдання | Контроль локальної позаклітинної доступності | Накопичення внутрішньоклітинного медіаторного пулу |
| Зв'язок із везикулами | Непрямий, через позаклітинний обмін | Субстрат для VGAT/VIAAT, SLC32A1 |
| Експериментальна модуляція | Саркозин, NFPS, бітопертин; дослідницька фармакологія | ALX-1393, ORG-25543 та інші дослідні речовини |
Первинні транспортні досліди встановили один, не два Cl⁻ для GlyT2. Додатковий Na⁺ дає сильніший градієнт накопичення, ніж у GlyT1. Напрям визначають концентрації та електричні умови; для GlyT1 особливо важливий зворотний транспорт. «Кліренс» не означає, що обидва білки завжди тільки прибирають гліцин із середовища.
2 Na⁺ₒ + Cl⁻ₒ + Glyₒ ⇄ 2 Na⁺ᵢ + Cl⁻ᵢ + Glyᵢ — GlyT1
3 Na⁺ₒ + Cl⁻ₒ + Glyₒ ⇄ 3 Na⁺ᵢ + Cl⁻ᵢ + Glyᵢ — GlyT2
Цвітер-іон не робить перенесення електронейтральним: цикл GlyT1 переносить сумарно +1, GlyT2 — +2. VGAT/VIAAT працює на іншій мембрані з іншим джерелом енергії, протонним електрохімічним градієнтом везикули. Порушення GlyT2 тому виснажує медіаторний запас навіть за гліцину навколо клітини. Інгібітор, пероральна добавка й підвищення гліцину біля NMDA — різні втручання, які не є тотожними.
Бітопертин показує недостатність самої рецепторної гіпотези для клінічного висновку. У великих рандомізованих подвійних сліпих FlashLyte і DayLyte додавання інгібітора GlyT1 до антипсихотиків на 24 тижні не дало значущої переваги над плацебо за основною оцінкою стійких негативних симптомів шизофренії. Це конкретна популяція й фармакологія, не випробування гліцину перед сном. Результат відділяє зміну коагоністної доступності від доведеної користі пацієнтові.
Засинання супроводжують зміни температури шкіри, внутрішніх тканин і судинного тонусу. Супрахіазматичне ядро SCN бере участь у циркадіанній організації, взаємодіючи з іншими гіпоталамічними та стовбуровими системами. Тепловіддача може полегшувати засинання за належних умов, але сон не зводиться до одного температурного порога. Гліцин цікавий як учасник регуляції, хоча людські докази кожного етапу обмежені.
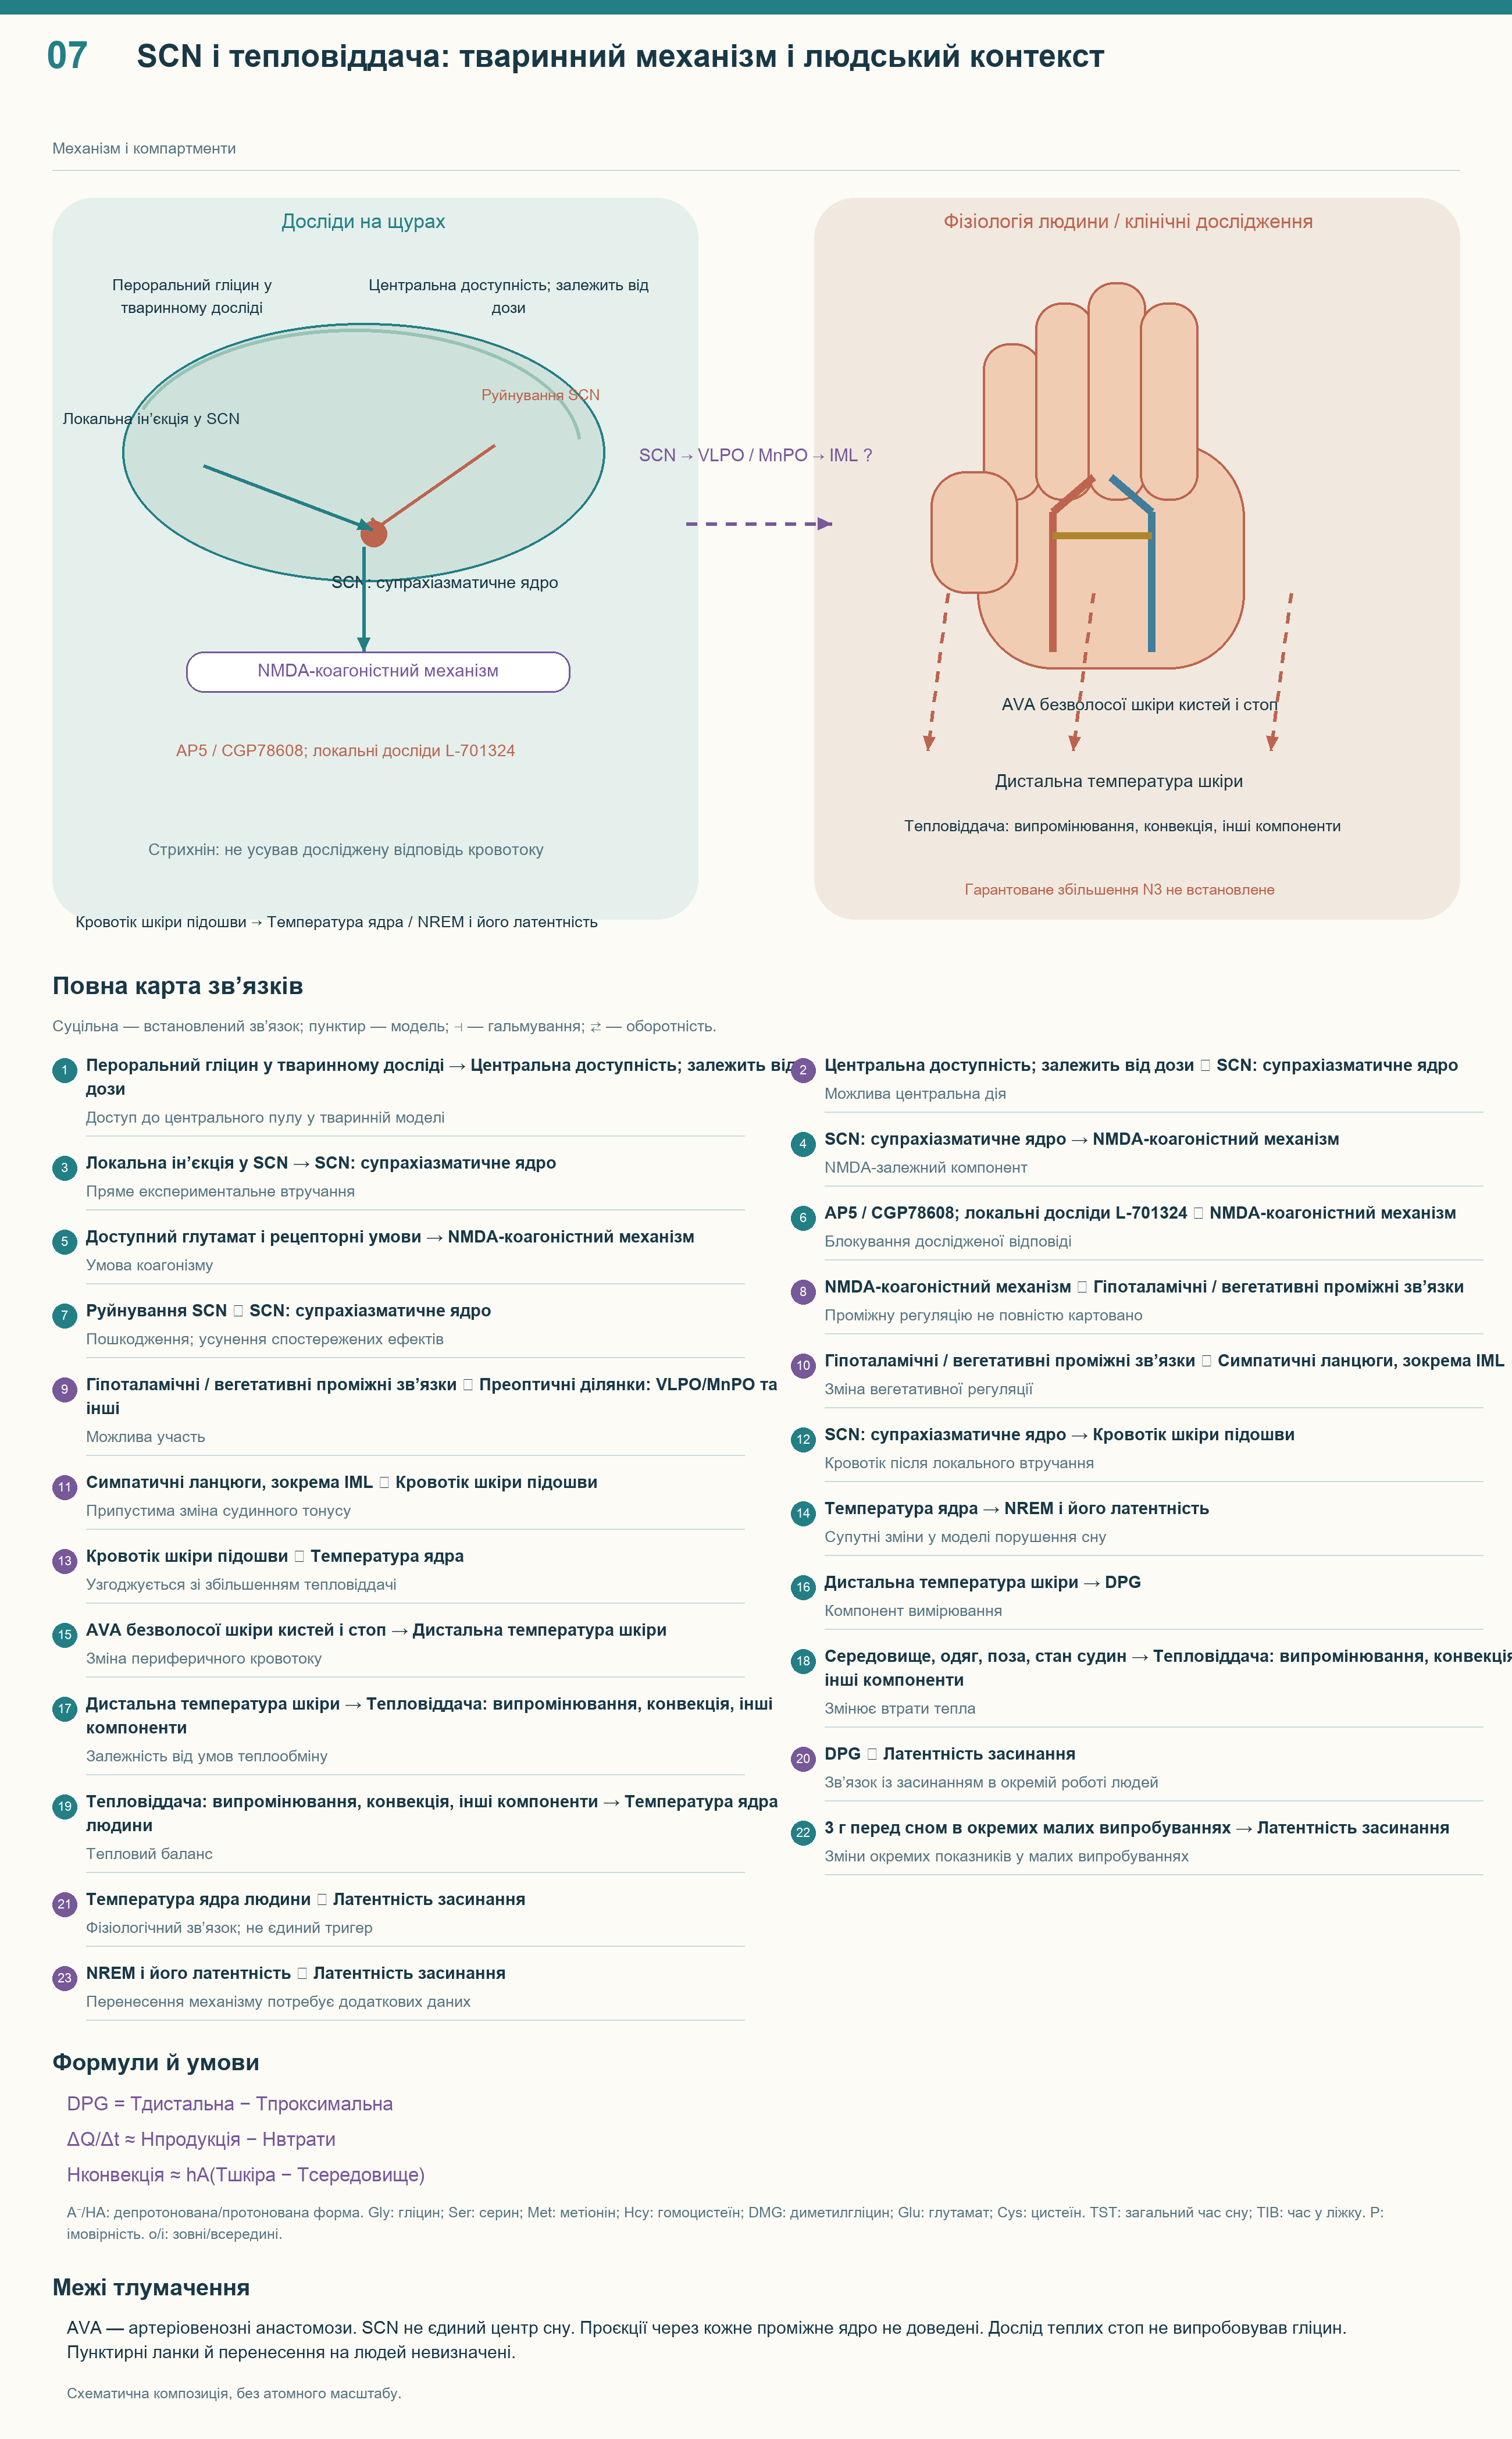
Каваї досліджував щурів, зокрема модель гострого порушення сну. Пероральний гліцин супроводжувався змінами NREM і температури, центральне введення дозволяло вивчати шкірний кровотік. Мікроін'єкції в SCN підвищували кровотік підошовної поверхні; руйнування ядра усувало спостережувані ефекти сну й температури. Це підтримує участь SCN у моделі, не визначаючи частки зайнятих людських рецепторів після 3 г.
Фармакологічні досліди застосовували AP5 і CGP78608 для NMDA-компонента, стрихнін для GlyR і L-701324 у локальних дослідах коагоністного сайту. Заміна їх на L-689,560 та MK-801 змінює опис експерименту. Зростання кровотоку після D-серину узгоджувалося з коагонізмом. Але навіть ці дані не доводять, що всі людські ефекти «на 100%» проходять єдиним маршрутом.
SCN доречний у карті терморегуляції без приписування роботі повного анатомічного шляху. Активність, судинна відповідь і зникнення ефекту після ушкодження не встановлюють кожної проєкції на VLPO, MnPO та симпатичні нейрони IML. Преоптичні ділянки важливі для сну й температури, але послідовність «гліцин → конкретна клітина → аксон → AVA» потребує окремого підтвердження. Інфографіка тому відділяє досліджені зв'язки від моделі проміжного вегетативного каскаду.
Артеріовенозні анастомози з'єднують артеріальне та венозне русло, оминаючи звичайні капіляри. У безволосій шкірі кистей і стоп вони змінюють розподіл кровотоку й теплоперенесення. Симпатична регуляція істотна, проте «завжди закриті під час неспання й повністю відкриті перед сном» надто категорично. Температура середовища, положення тіла, активність та індивідуальна реакція змінюють картину.
DPG = Tдистальна − Tпроксимальна
DPG — дистально-проксимальний градієнт шкірної температури, у °C або, як різниця, у K. Його обчислюють за визначеними ділянками: наприклад, середні кисті й стопи відносно проксимальних ділянок тулуба. Рух до менш негативних або позитивніших значень може показувати дистальне зігрівання. Перетин нуля не обов'язковий діагностичний поріг, а порівняння потребує однакових датчиків.
Робота Крёйхі про теплі стопи пов'язувала вазодилатацію та швидке засинання в людей. Вона не випробовувала 3 г гліцину й не доводить прискорення DPG на 30–45 хвилин після добавки. Мерфі й Кемпбелл також вивчали зв'язок падіння внутрішньої температури із початком сну, а не дозу амінокислоти. Публікації дають контекст, зберігаючи окремість від дослідів SCN.
ΔQ/Δt ≈ Hпродукція − Hвтрати
Hконвекція ≈ hA(Tшкіра − Tсередовище)
Це спрощені рівняння балансу тепла та одного компонента його втрати, а не результати гліцинового дослідження. Q — запас тепла, H — потужність продукції або втрат, h — коефіцієнт конвективного обміну, A — площа. Випромінювання, випаровування, одяг і контакт із поверхнями додають складові. Тепліша шкіра сприяє охолодженню внутрішніх тканин лише за потрібного градієнта й не обґрунтовує універсального падіння температури ядра на 0,2–0,5 °C.
SCN організує добову поведінку, а гостра судинна відповідь не обов'язково зсуває фазу годинника. Зміна засинання не доводить корекції джетлагу, змінної роботи чи секреції мелатоніну. Деякі тваринні досліди вивчали циркадіанні показники, але не гарантують перебудови ритму в людини. Практично слід розрізняти полегшення одного вечора та лікування сталого порушення часу сну.
Полісомнографія окремо вимірює початок, переходи стадій, неспання після засинання й нічний розподіл. Суб'єктивна легкість пробудження не замінює ЕЕГ, а зміна одного показника не покращує автоматично всю архітектуру. Невеликі дослідження дозволяють розглядати їх окремо. Порівняння ліків потребує конкретного препарату, дози й популяції, не протиставлення «кожне снодійне руйнує, кожна амінокислота відновлює».
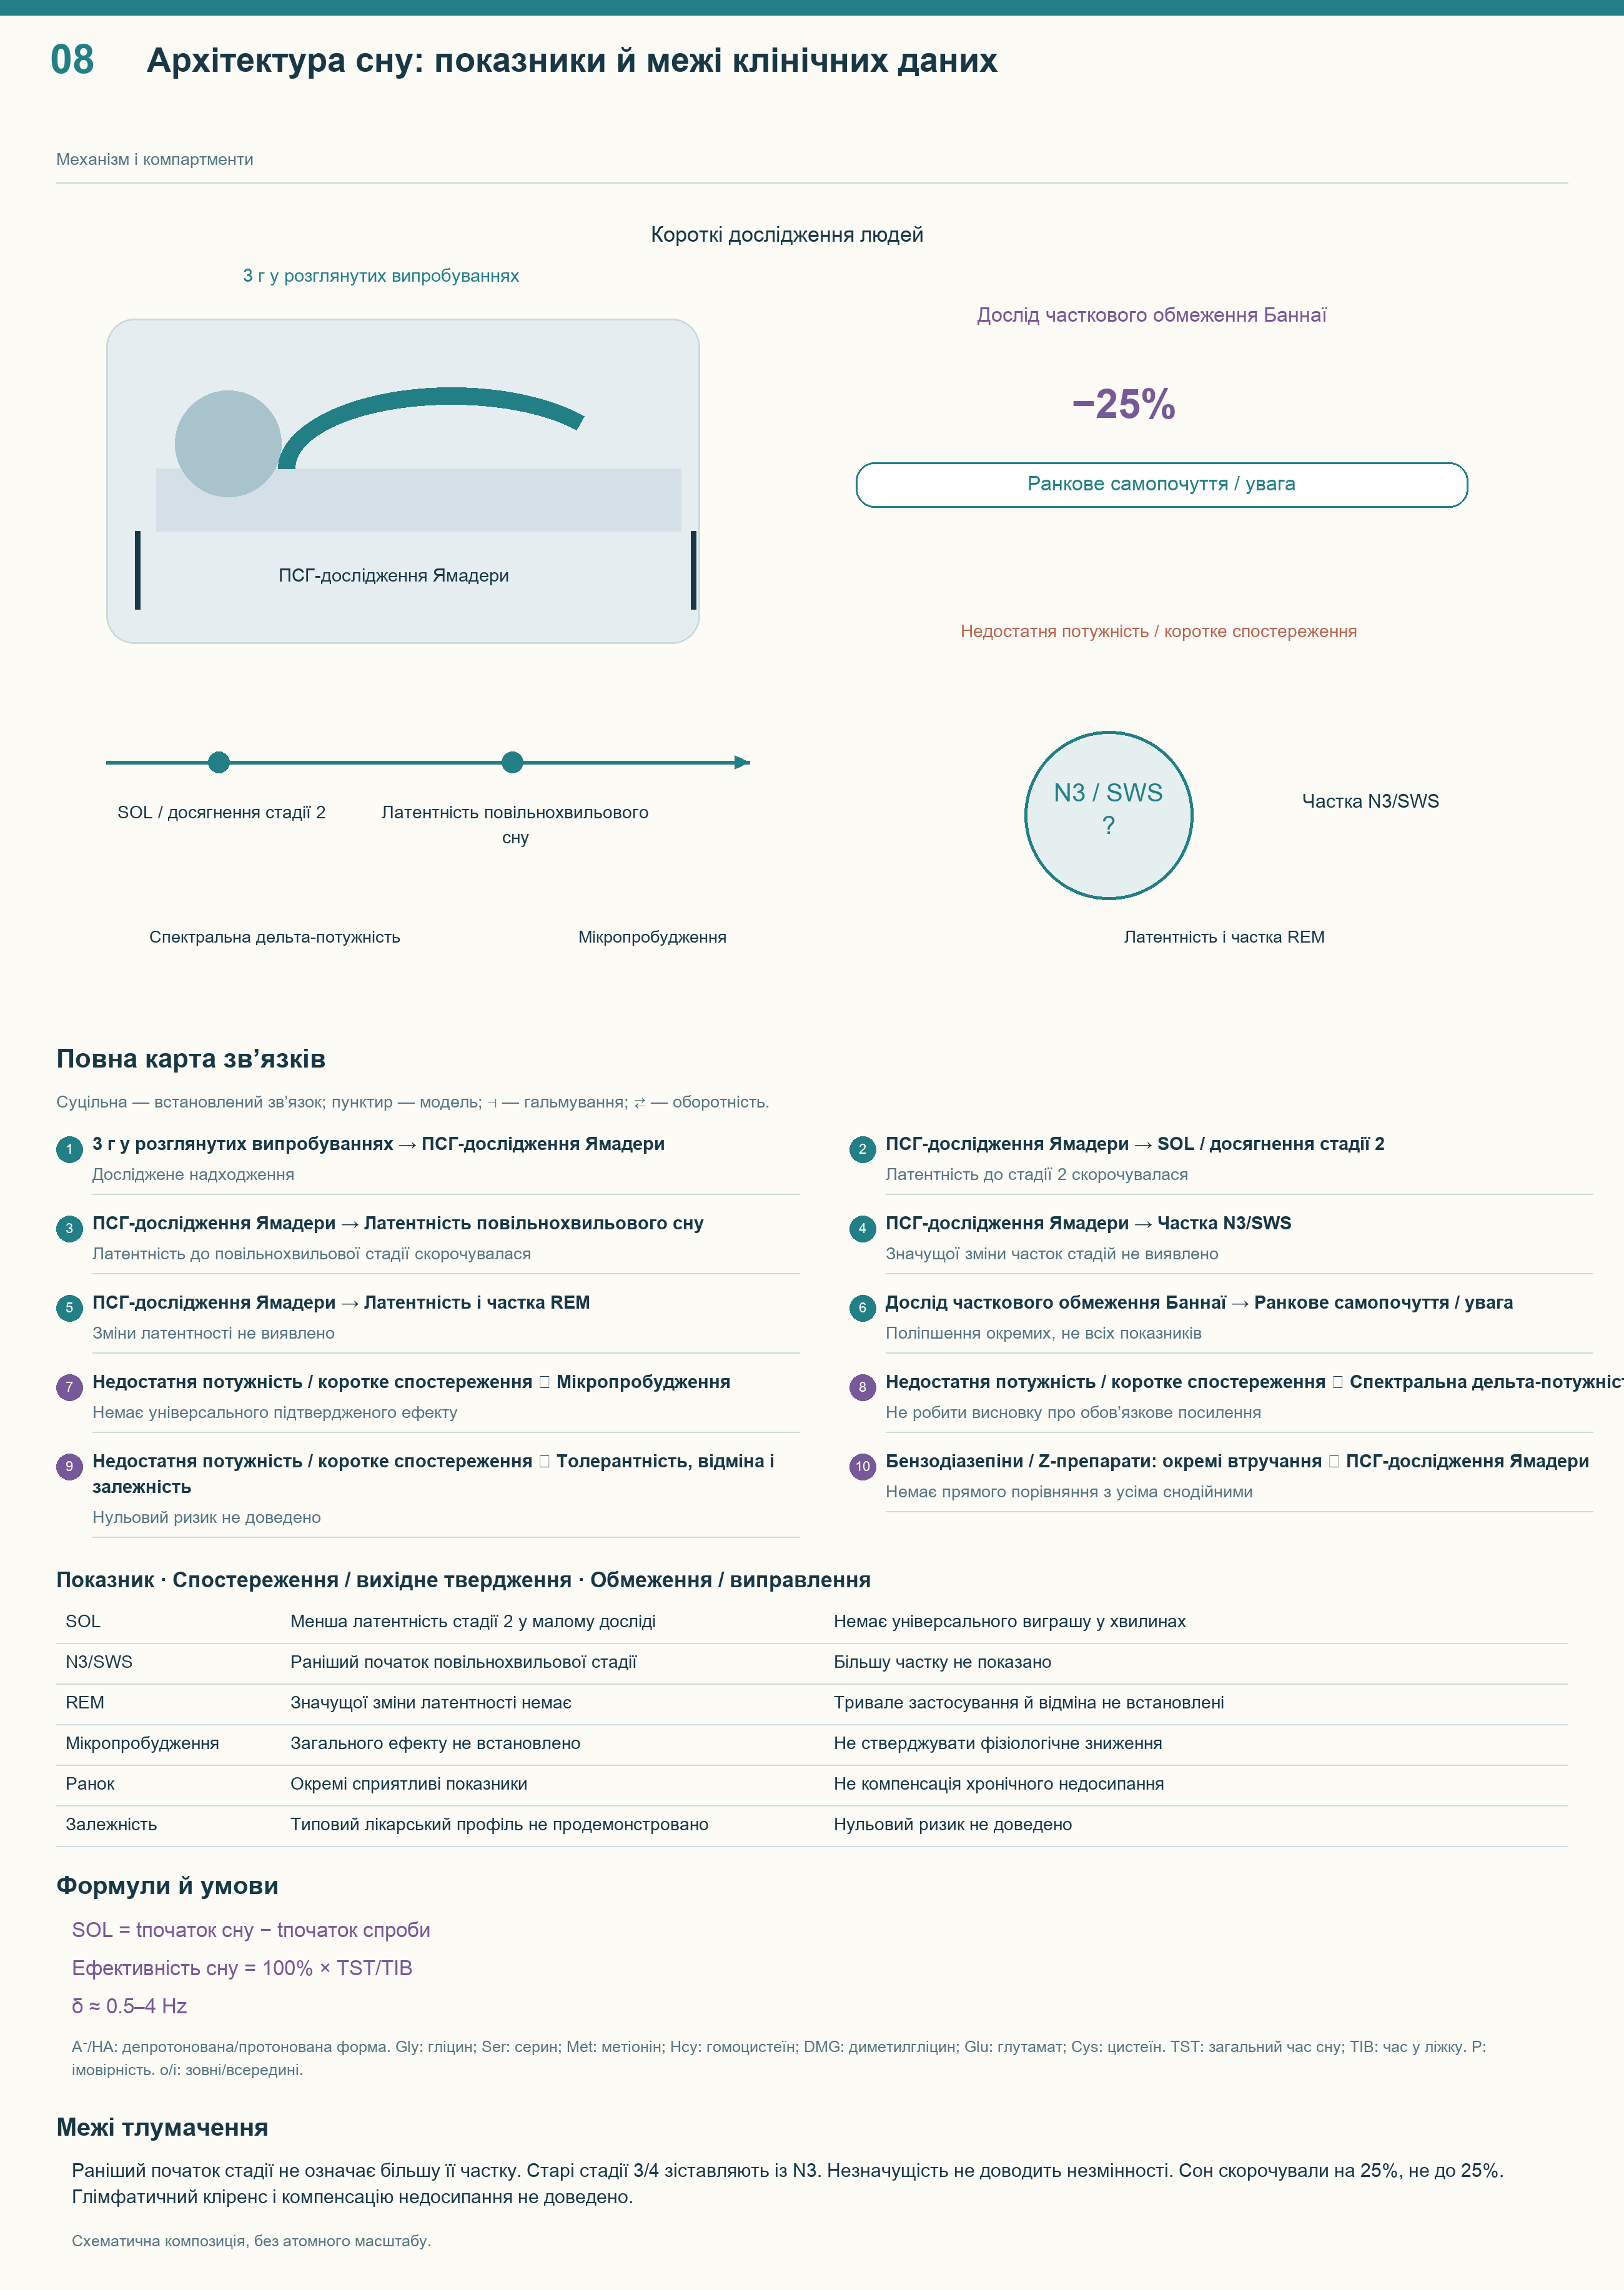
| Показник | Дані про гліцин | Межа висновку |
|---|---|---|
| Латентність, SOL | У невеликій ПСГ скорочувалася латентність до стадії 2 | Немає універсального скорочення на 15–30 хвилин |
| Досягнення повільнохвильового сну | Стадія 3 виникала раніше за використаною класифікацією | Початок не дорівнює більшій загальній частці N3 |
| Частки стадій | Значущих змін розподілу не виявлено | Це не доводить незмінності за всіх доз і курсів |
| REM | Латентність у цьому досліді не змінювалася | REM-рикошет після тривалого курсу окремо не встановлений |
| Ранкова втома й увага | Деякі невеликі роботи показали поліпшення окремих оцінок | Не доведена компенсація хронічного недосипання |
| Мікропробудження й дельта-потужність | Універсального ефекту не встановлено | Не можна приписувати доведену глімфатичну дію |
| Толерантність і залежність | Типовий бензодіазепіновий профіль не продемонстрований | Даних замало для математичного нульового ризику |
Ямадера поєднував суб'єктивні оцінки з ПСГ у невеликій групі незадоволених сном. За 3 г скорочувався час до першої стадії 2 і повільнохвильової стадії за тодішньою системою. Частки тривалості за ніч значущо не змінилися. Окремий приклад гіпнограми з глибшим раннім сном не є груповим доказом збільшення N3.
Старі стадії 3 та 4 потребують обережного зіставлення з сучасною N3. Латентність описує появу, відсоток N3 — частку всього періоду. Спектральна дельта-активність приблизно 0,5–4 Гц — ще один показник, залежний від аналізу. Зміна одного не дає підстав переносити її на два інші.
SOL = час першого сну за обраним критерієм − початок спроби заснути
Ефективність сну = 100% × загальний час сну / час у ліжку
Обидва показники потребують визначених правил. Щоденникова SOL може відрізнятися від часу до першої зареєстрованої стадії 2; суб'єктивна ефективність не тотожна ПСГ. Людина тому може відчувати поліпшення за малого об'єктивного зсуву. Без співставних методик немає єдиного очікуваного виграшу у хвилинах.
Відновні процеси мозку й повільнохвильовий сон — окремий напрям. Зв'язок не доводить підвищення виведення β-амілоїду або тау від гліцину в людей. Ці кінцеві точки тут не вимірювалися. Тому профілактика нейродегенерації через «посилений нічний кліренс» виходить за межі результатів.
Відсутність виявленої зміни REM корисна, але не визначає, які нейрони моста не були зачеплені. LDT/PPT та інші структури організують сон; їхню активність не відтворити з таблиці часток. Емоційна обробка, процедурна пам'ять і сновидіння теж потребують вимірювань. «Повністю збережений REM за будь-якої схеми» сильніше за дозволений висновок.
Бензодіазепіни й Z-препарати різняться впливом на стадії, залишковою сонливістю та ризиками. Важливі речовина, виведення, доза і характеристики людини. Ці дослідження гліцину не були повноцінними прямими випробуваннями переваги над усіма ліками. Схема зберігає клінічні питання, не присуджуючи перемоги в кожному рядку.
У Баннаї час у ліжку скорочували на 25% звичного, приблизно з 7,3 до 5,5 години. Це не сон до 25% норми. Аналіз охопив сімох чоловіків у рандомізованому однобічно сліпому перехресному дизайні, з кількома ночами приймання 3 г за 30 хвилин. Мала група та коротке спостереження обмежують перенесення на хронічне безсоння й різні клінічні популяції.
Автори знайшли кращу психомоторну пильність і меншу втому в окремі моменти. Суб'єктивна сонливість була менш визначеною, не всі зміни трималися до третього дня. Це не означає відсутності всіх помилок уваги чи поліпшення кожної когнітивної функції. Не доводиться й «охолодження мозку з прискореною регенерацією» або універсально коротке напіввиведення.
| Людське дослідження | Оцінка | Інтерпретація |
|---|---|---|
| Перехресне Інагави | Суб'єктивні враження після вечірніх 3 г | Кращі ранкові оцінки не є ПСГ-доказом більшого глибокого сну |
| ПСГ Ямадери | Початок стадій, архітектура й денні показники | Відділяти зміни латентності від незмінних виявлених часток |
| Обмеження Баннаї | Втома, сонливість, психомоторна пильність | Короткий дослід із малою вибіркою, не заміна достатньому сну |
Роботи переважно належать до невеликої програми за участю виробника амінокислот. Це не скасовує результатів, але робить незалежне відтворення особливо важливим. Декілька споріднених публікацій не дорівнюють багатьом великим незалежним випробуванням. Практичний висновок — можлива користь для окремих показників із невизначеністю величини, сталості й застосовності.
Гліцин потрібний для структурних білків, пуринів, порфіринів, креатину й кон'югатів. Це частина загального обміну вуглецю та азоту, не лише медіаторного пулу. Синтез GSH, ацилгліцини та GNMT демонструють три окремі напрямки. Їхня наявність доводить необхідність амінокислоти, не обов'язково користь надлишку.
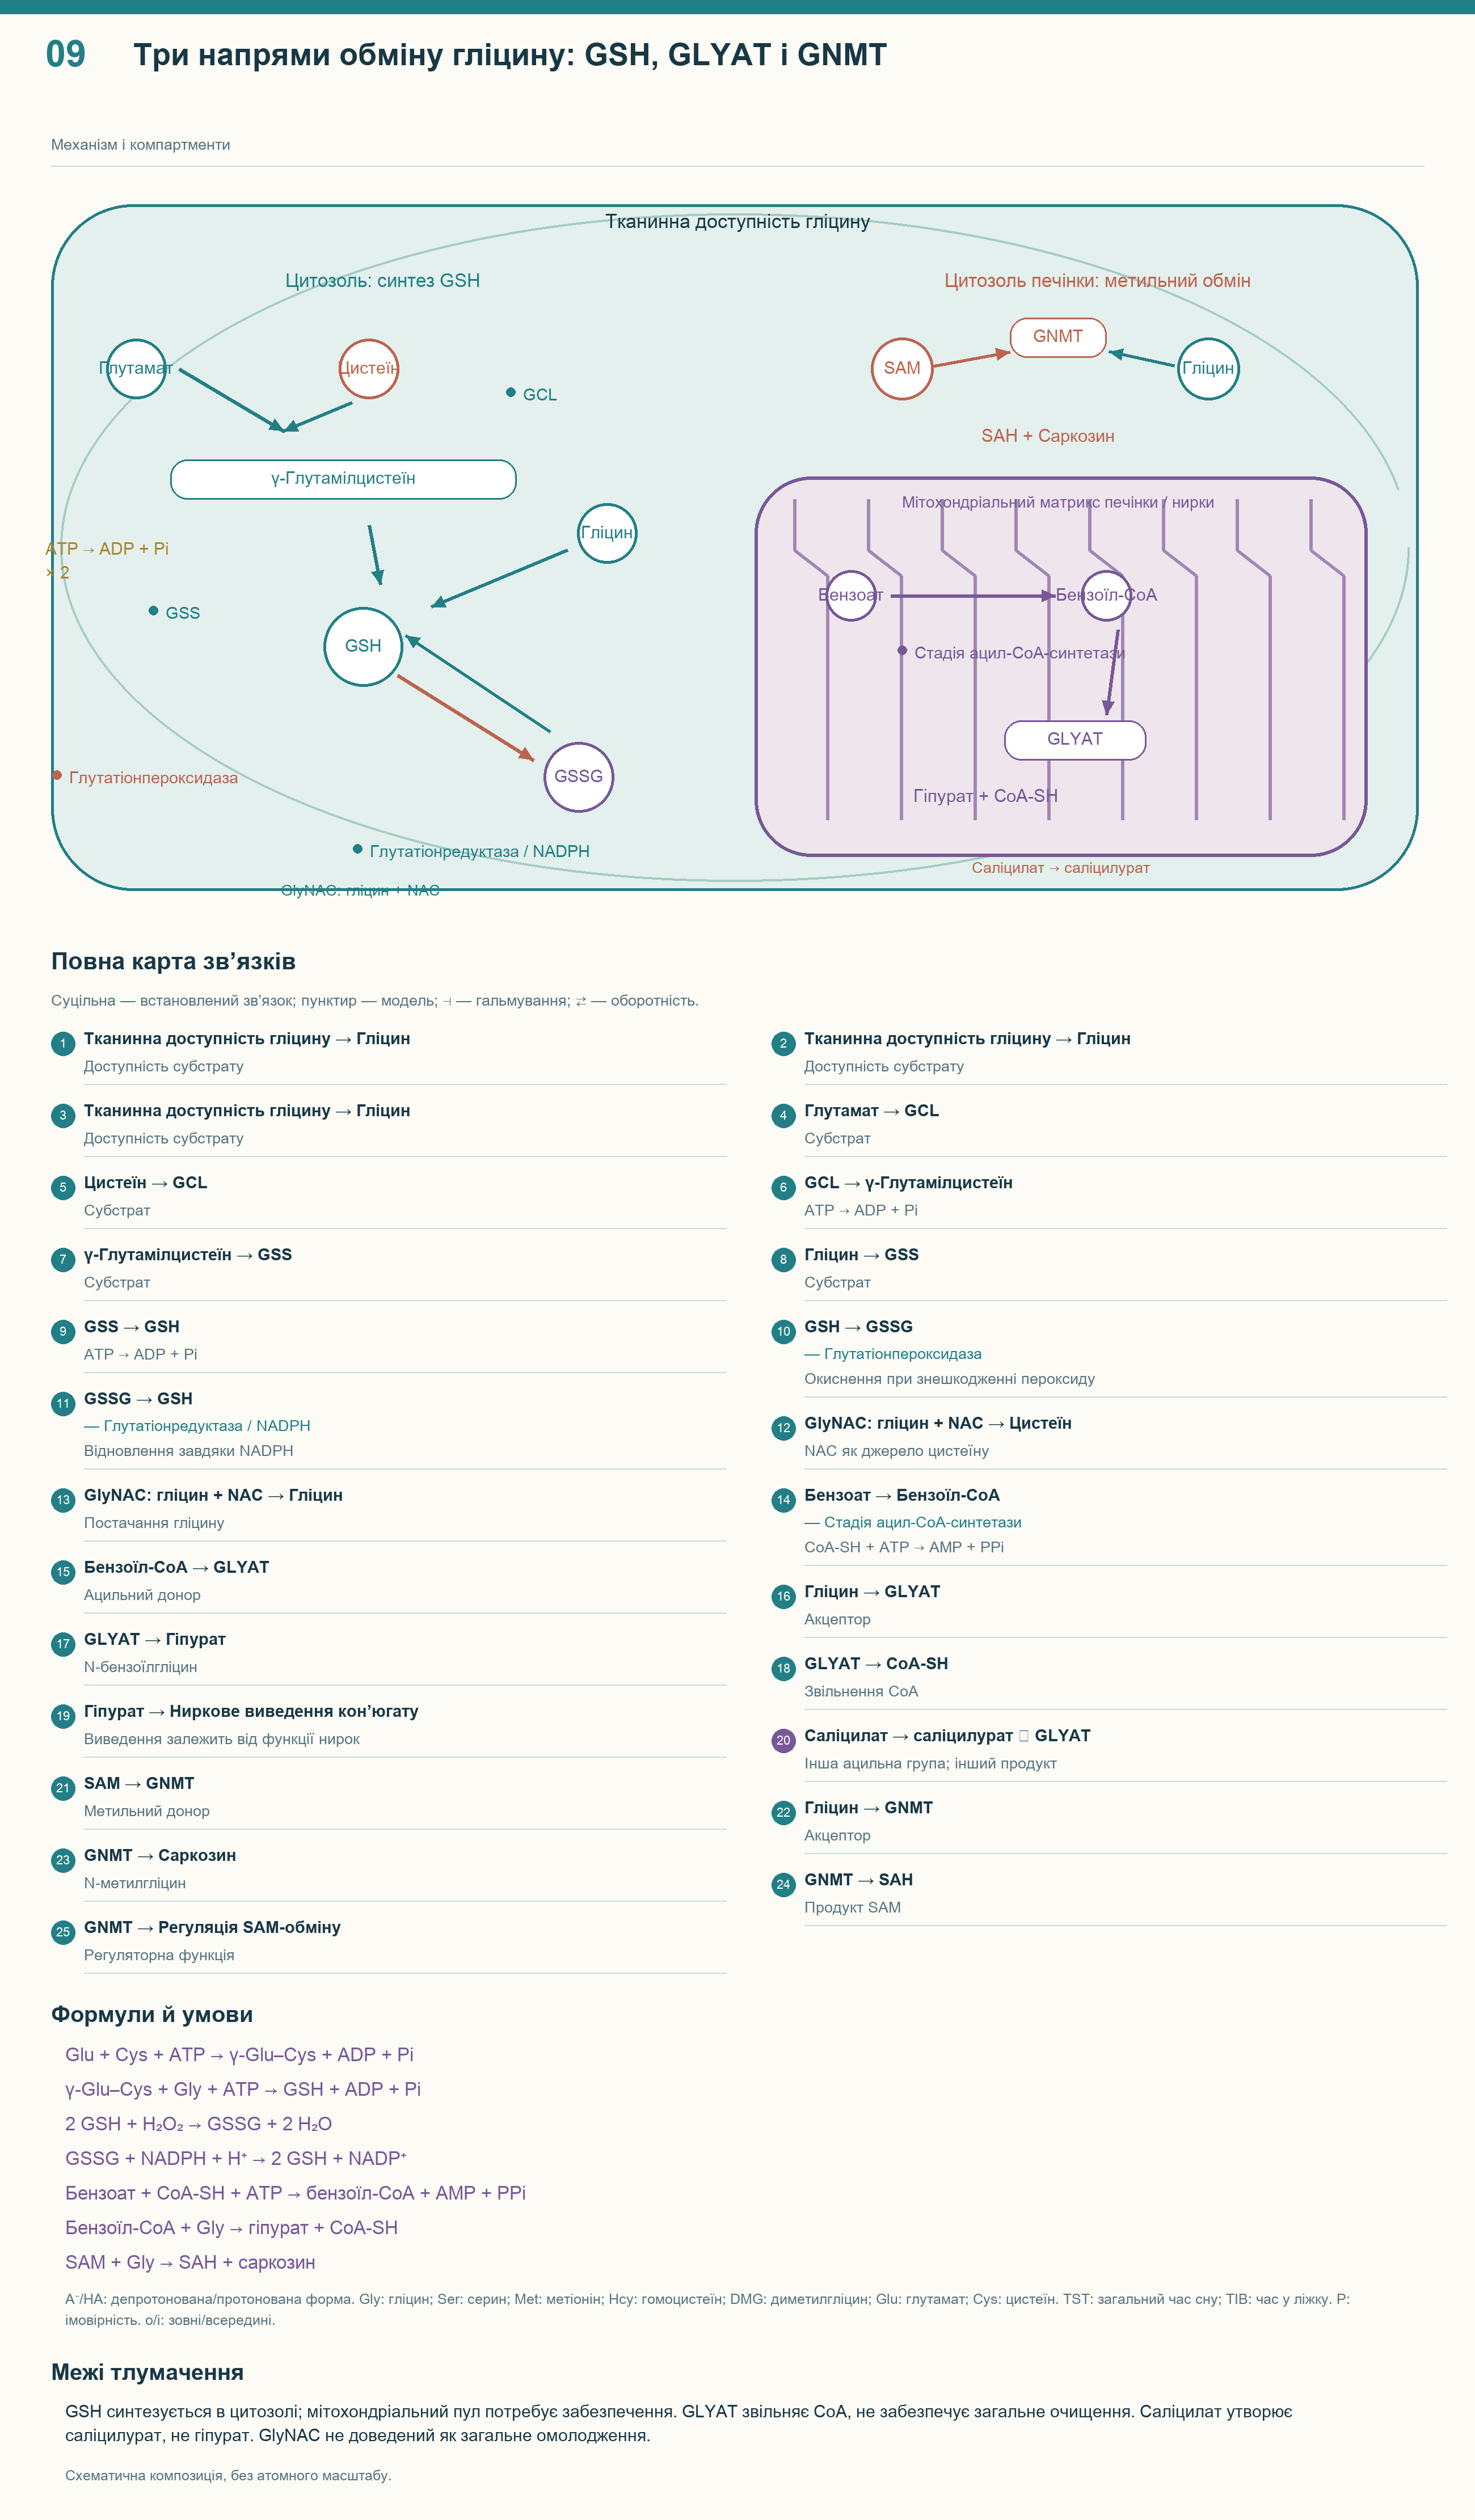
Відновлений GSH — трипептид γ-глутамілцистеїнілгліцин. GCL з'єднує глутамат і цистеїн, потім GSS приєднує гліцин. Обидві стадії витрачають ATP і відбуваються переважно в цитозолі. Мітохондріальний захист потребує забезпечення окремого пулу; весь GSH не слід малювати автоматично синтезованим усередині мітохондрій.
Глутамат + цистеїн + ATP → γ-глутамілцистеїн + ADP + Pi — GCL
γ-Глутамілцистеїн + гліцин + ATP → GSH + ADP + Pi — GSS
ATP і ADP — аденозинтрифосфат та аденозиндифосфат, Pi — неорганічний фосфат. На одну молекулу припадають дві реакції ATP → ADP. Ця вартість синтезу відмінна від відновлення окисненого GSH. Навіть за більшого гліцину потрібні всі три амінокислоти та ферментна активність.
2 GSH + H₂O₂ → GSSG + 2 H₂O — глутатіонпероксидаза
GSSG + NADPH + H⁺ → 2 GSH + NADP⁺ — глутатіонредуктаза
GSSG — дисульфідна форма двох залишків глутатіону. NADPH дає відновні еквіваленти; цикл не збирає новий трипептид із амінокислот. Співвідношення форм залежить від компартмента й вимірювання. Загальний GSH, швидкість синтезу й редокс-відношення відповідають на різні питання.
Цистеїн часто обмежує синтез, але за певних умов обмеженням буває гліцин. Це обґрунтовує дослідження GlyNAC — гліцину та N-ацетилцистеїну як джерела цистеїну. Не доводиться однаковий подвійний дефіцит за будь-якого старіння, діабету чи запалення. Ефект комбінації теж не приписується лише гліцину без окремого порівняння.
Ранній дослід Секхара вимірював синтез глутатіону в літніх людей ізотопними методами. Після короткого спільного поповнення попередників змінювалися еритроцитарний GSH та окисний стрес. Пізніший пілот розширив тривалість і функціонально-метаболічні оцінки. Вони підтримують дослідження субстратної недостатності, але не доводять обов'язкової неефективності одного NAC, якщо такого порівняння не було.
Рандомізована робота Кумара включала 24 літніх учасників, розподілених між GlyNAC та аланіновим плацебо на 16 тижнів. Знайдено сприятливі зміни низки біохімічних і функціональних показників, молода група дала додатковий орієнтир. Масштаб відповідає перевірці концепції, не доведенню довголіття чи універсальному «поверненню молодості». Численні точки й додаткові аналізи потребують більших випробувань.
Інший рандомізований дослід зі 114 здоровими літніми добровольцями не поліпшив основного загального глутатіону після двох тижнів порівняно з плацебо. Можлива відповідь з'явилася в подальшому виділеній підгрупі з несприятливими вихідними показниками. Дози, час і учасники відрізнялися, тому не спростовано всіх гіпотез. Але однакову користь для всіх здорових людей обмежено чітко.
Практично важливі початковий стан і клінічні наслідки, а не лише слово «антиоксидант». Зміна маркера пероксидації не дорівнює меншій кількості інфарктів, кращому сну чи нижчій смертності. Нормальне забезпечення обмежує відповідь, а тканинні пули не завжди відображені одним аналізом крові. GlyNAC залишається досліджуваним втручанням із конкретними умовами та різницею механізму й користі.
Кон'югація гліцином обробляє окремі органічні кислоти в печінці та нирках. Бензоат активується до бензоїл-CoA, GLYAT переносить ацильну групу на гліцин. Вивільняється CoA-SH, гіпурат може виходити із сечею. Варіанти ферменту й обидва субстрати змінюють швидкість, не даючи універсальної «детоксикаційної потужності».
Бензоат + CoA-SH + ATP → бензоїл-CoA + AMP + PPi — ацил-CoA-синтетазна стадія
Бензоїл-CoA + гліцин → гіпурат + CoA-SH — GLYAT
CoA-SH — вільний коензим A, AMP — аденозинмонофосфат, PPi — пірофосфат. ATP тут переходить до AMP, а не ADP, як у GSH. ACSM2B бере участь у відповідній активації, але обробку всіх кислот не зводять до однієї ізоформи. Саліцилат дає саліцилурат, не гіпурат: продукт залежить від ацилу.
Виведення залежить від нирок, зокрема канальцевого транспорту. Гіпурат не зникає завжди миттєво й без наслідків. Порушений ацил-CoA-обмін та зв'язування CoA важливі в окремих станах, але звичний консервант не доводить виснаження пулу. Шлях не стає порадою «очищатися» гліцином від добавок, аспірину або всіх токсинів.
Метіонін — попередник S-аденозилметіоніну SAM. Численні метилтрансферази використовують його метильні групи, утворюючи S-аденозилгомоцистеїн SAH. GNMT переносить групу на гліцин із появою саркозину. Реакція регулює SAM, особливо в печінці, але не є простим видаленням надлишку без подальшого обміну.
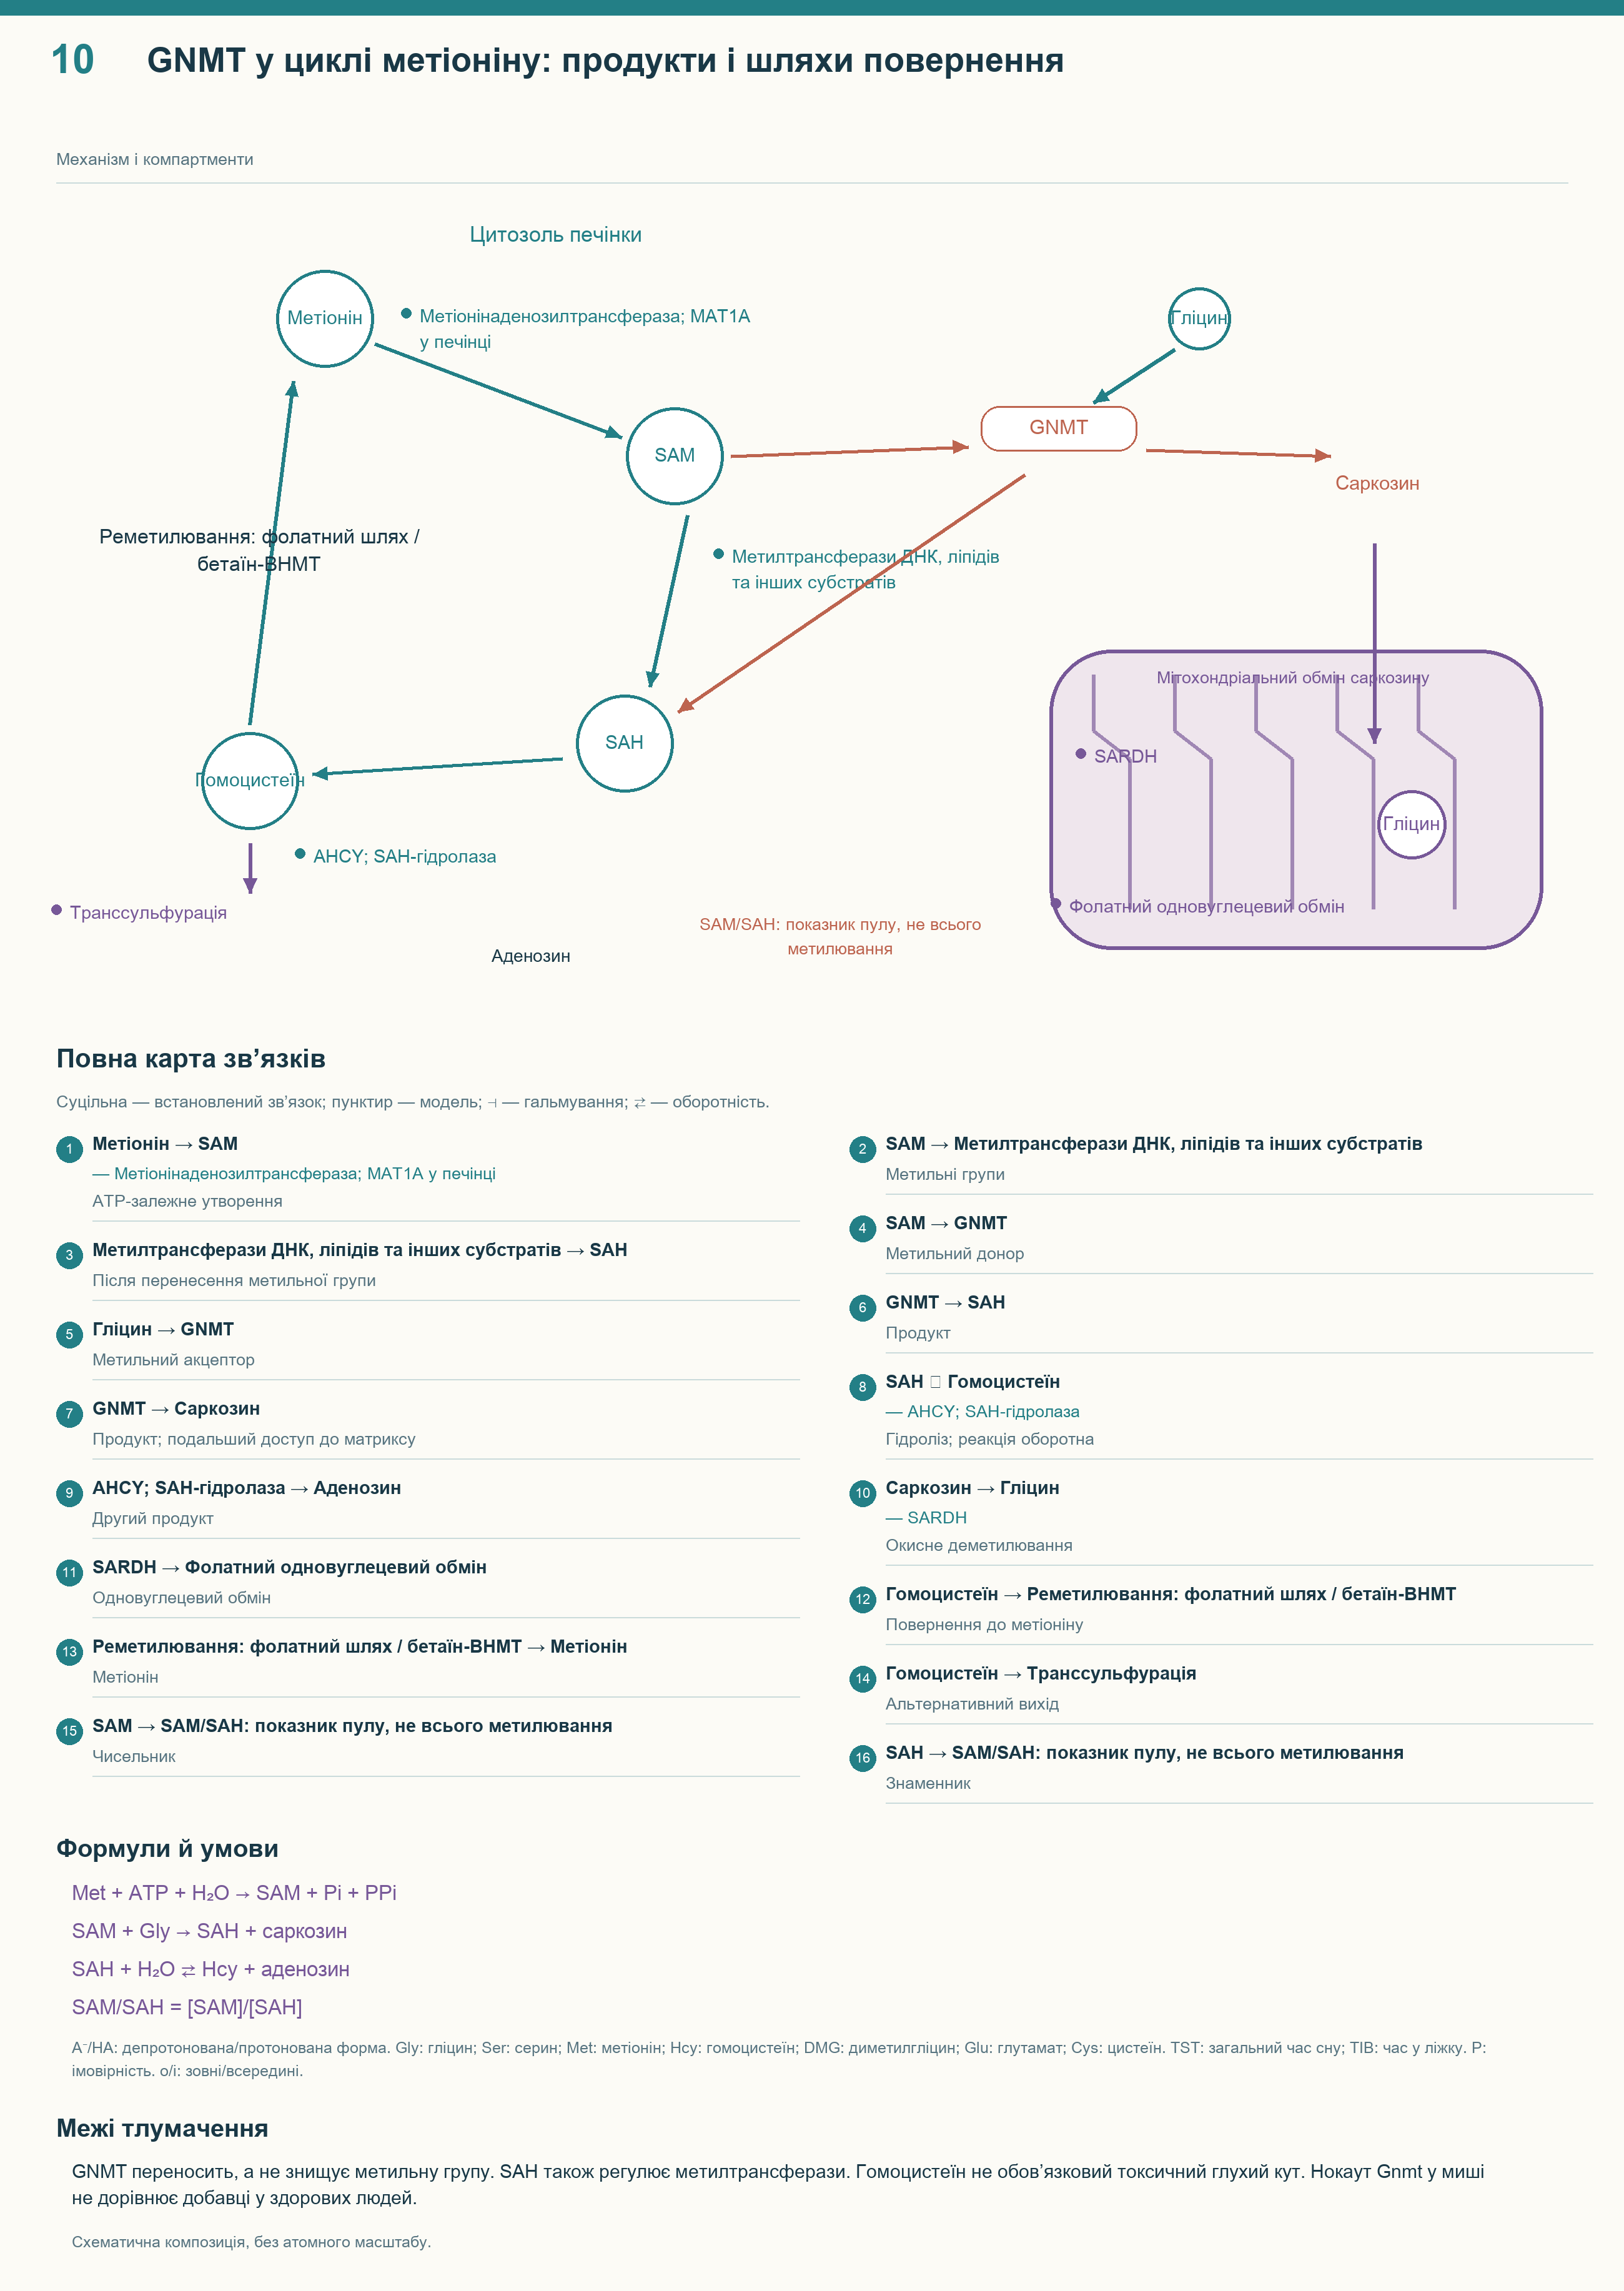
Метіонін + ATP + H₂O → SAM + Pi + PPi — метіонінаденозилтрансфераза
SAM + гліцин → SAH + саркозин — GNMT
SAH + H₂O ⇄ гомоцистеїн + аденозин — AHCY
SAM/SAH = [SAM]/[SAH]
SAM/SAH — один показник, адже SAH гальмує багато метилтрансфераз. Він не є реальною метиляцією кожної ділянки ДНК і залежить від матеріалу. Саркозин повертається до гліцину через SARDH; гомоцистеїн реметилюється чи входить у транссульфурацію. Єдиний термінальний гомоцистеїн на схемі приховав би ці виходи.
У мишей без Gnmt порушувалися SAM-обмін, метилювання та стан печінки. Генетична втрата регулятора доводить його необхідність, не профілактичний ефект добавки в здорової людини. Багато метіоніну в їжі теж не означає автоматичної тотальної гіперметиляції. «3–5 г нейтралізують серцево-судинні ризики м'ясного раціону» потребує окремих клінічних даних.
Гліцин солодкий, але відносна солодкість залежить від концентрації й сенсорного порівняння. «70% солодкості сахарози» не є універсальною характеристикою. Рецепторні роботи пов'язують солодкі амінокислоти з T1R, зокрема T1R2/T1R3. Видові й клітинні умови не дозволяють без структури визначити точну позу гліцину в домені «венериної мухоловки» людського рецептора.
«Стереоспецифічне зв'язування» потребує уточнення: гліцин не має власних D/L-енантіомерів. Просторове розпізнавання існує, але солодкість не пояснюється перевагою неіснуючої форми. Кишкове сприйняття поживних речовин — інший рівень регуляції. Смаковий рецептор і солодке відчуття не доводять клінічно значущого GLP-1 після вечірньої дози.
У Геннона дев'ятеро здорових учасників одержували гліцин, глюкозу, обидва чи воду. Доза амінокислоти — 1 ммоль/кг безжирової маси, глюкози — 25 г, не універсальні 5 г для діабету. Комбінація зменшувала площу глікемічної відповіді без значущого зростання площі інсулінової. Кишковий гормон був інтерпретацією, не доказом T1R2/T1R3 → GLP-1 → інсулін.
Площа за період і максимальна висота кривої — різні показники. Зменшення першої більш ніж наполовину не означає універсального зниження піка на 50%. Гліцин бере участь в амінокислотному обміні, не є інертним підсолоджувачем. Смак і гострий експеримент не замінюють лікування діабету та не гарантують відсутності гіпоглікемії в будь-яких поєднаннях.
Після приймання плазмовий гліцин може швидко зростати, але це не встановлює абсолютної біодоступності 95–100%. Потрібний порівняльний дизайн з урахуванням ендогенного пулу. Малий розмір сам по собі не доводить вільного проходження гематоенцефалічного бар'єра. Важливі структури бар'єра, локалізація транспортера, концентрація та градієнт.
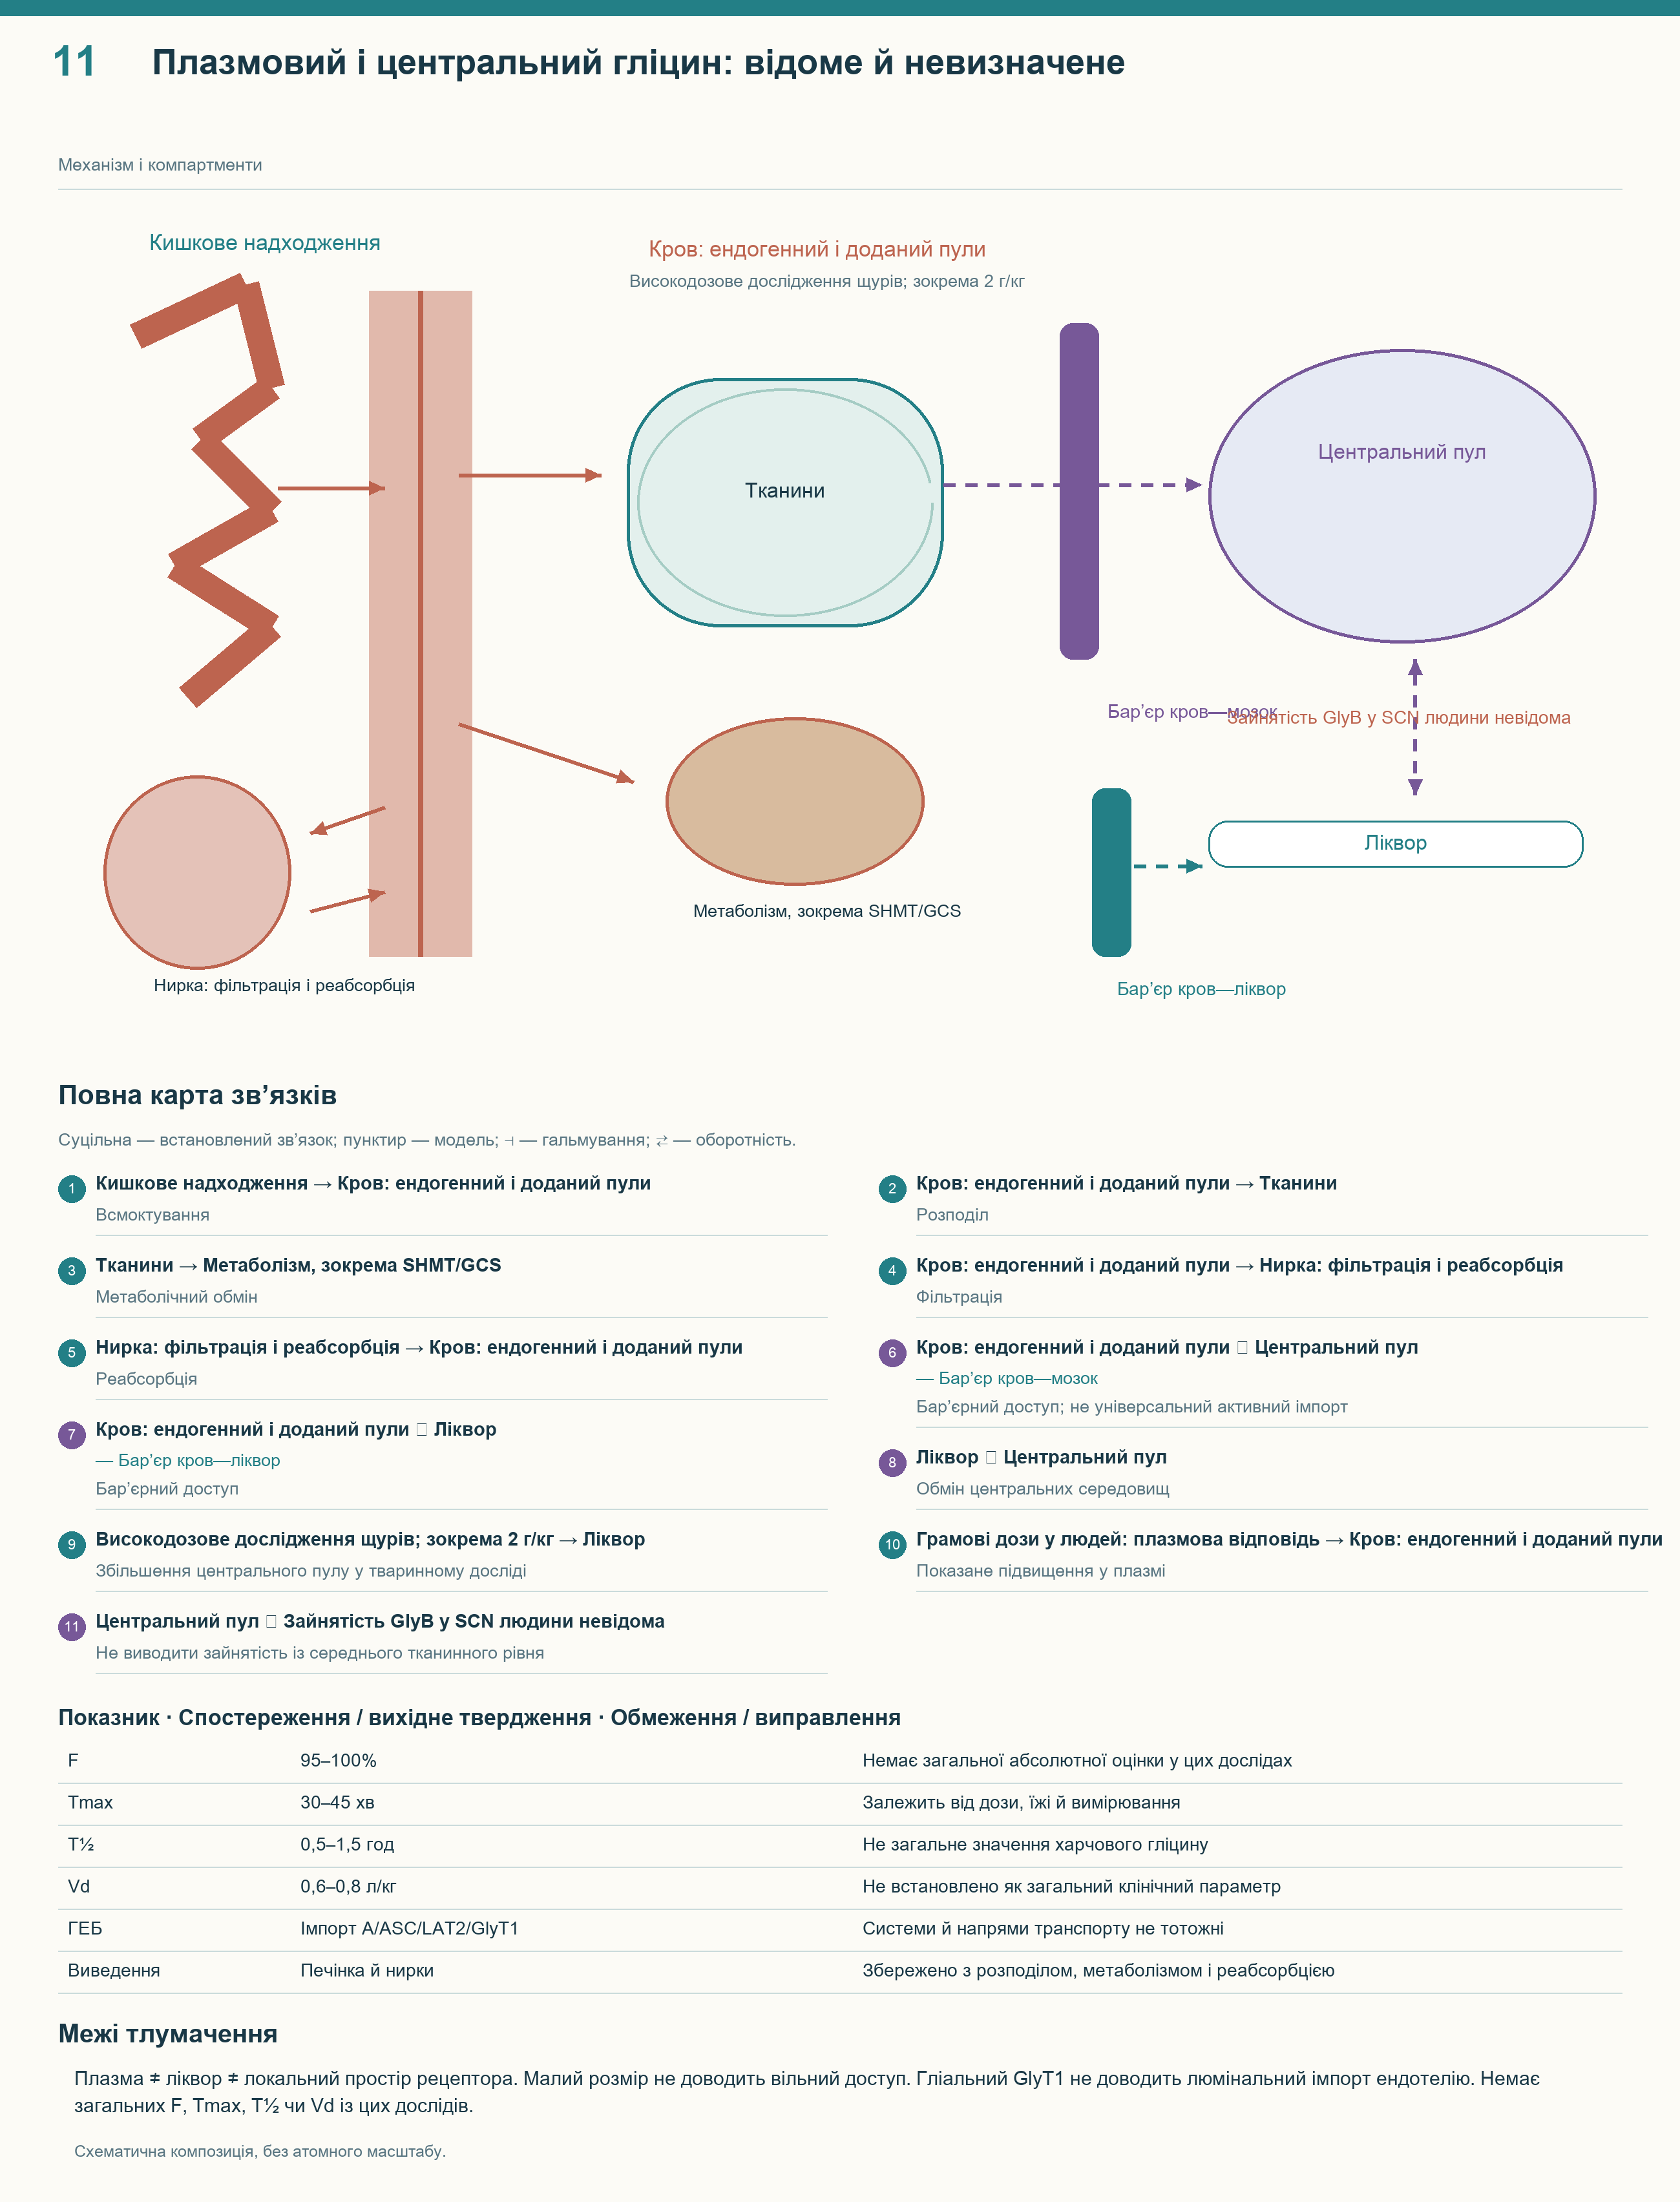
| Параметр | Обґрунтований опис | Невстановлене твердження |
|---|---|---|
| Всмоктування | У людей показане плазмове зростання після приймання | Універсальна F = 95–100% |
| Tmax | Залежить від дози, форми, їжі та відбору проб | Однакові 30–45 хвилин |
| T½ | Окрема фаза зміни за конкретної моделі | Універсальні 0,5–1,5 години й відсутність усього післяефекту |
| Vd | Потребує придатної моделі | Обов'язкові 0,6–0,8 л/кг для добавки |
| Доступ до мозку | Високі дози у щурів підвищують центральний пул | Гарантоване зайняття GlyB у SCN людини після 3 г |
| Видалення із плазми | Метаболізм, розподіл, фільтрація та реабсорбція | Повне припинення ефектів у момент зниження концентрації |
Розподіл у щурів Каваї досліджував за значно більших відносних доз, зокрема 2 г/кг. Розглядали бар'єр кров—ліквор і простір біля шлуночків, не просто швидкий активний вхід через список переносників. Ці дані не дають людського «вікна SCN» після кількох грамів без проміжних вимірювань. Гліальний GlyT1 також не можна автоматично прирівняти до люмінального імпорту ендотелієм мозку.
За ендогенного пулу концентрацію змінюють декілька процесів. Частина входить у білки й метаболіти, перетворюється на серин або розщеплюється; нирки регулюють фільтрацію й повернення. Єдина експонента часто не описує всю траєкторію. Практично точніше назвати досліджені умови, ніж приписати невизначені цими роботами константи.
Невеликі дослідження сну здебільшого не відзначали тяжких явищ, але розмір і тривалість обмежують рідкісні події. Короткий дослід 9 г описав травні симптоми без серйозних гострих порушень. Це корисна оцінка для конкретної групи. Вона не доводить багатомісячної безпеки для всіх.
Психіатричні роботи справді використовували вищі дози, близько 0,8 г/кг на добу. Учасників відбирали, давали супутню терапію й спостерігали за протоколом. Це не дозвіл підвищувати приймання для сну чи заперечувати будь-який вплив на печінку та нирки. Нудота й інші травні симптоми теж не мають універсальної межі «20 г за раз».
LD₅₀ — експериментальна летальність у певній тваринній моделі. Пропорційне перенесення мг/кг на людину 70 кг не визначає безпечної чи смертельної дози й тут виключене. Харчовий регуляторний статус стосується умов використання, не ефективності проти безсоння. Американські правила технологічного застосування в продуктах не схвалюють будь-яку добавку та курс.
Коротка відсутність ознак типової залежності не дорівнює нульовому ризику всіх проблем скасування. Не встановлено, що гліцин ніколи не змінює чутливості чи кількості рецепторів. У клітинах коагоністна сигналізація бере участь у NMDA-трафіку. Це не доводить клінічного звикання, але спростовує абсолютну незмінність рецепторів.
Високодозний гліцин із клозапіном вивчали окремо без переконливої додаткової користі. Відсутність поліпшення не доводить зменшення ефективності клозапіну за кожної дози. Потенціювання снодійних чи послаблення гліцину мемантином, кетаміном і декстрометорфаном переважно виводять із фармакології. Не можна подавати це як виміряну взаємодію в пацієнтів зі сном без відповідної роботи.
Для дітей, вагітності, годування та виражених хвороб органів даних менше. Дорослі добровольці не є моделлю кожної групи. Спадкові порушення гліцинового обміну особливо важливі, адже підвищення доступності не завжди відповідає простому поповненню нутрієнта. Обмеження визначають застосовність, не замінюючи індивідуальної оцінки.
Людські роботи найчастіше використовували 3 г перед сном. У досліді з коротшим часом у ліжку — за 30 хвилин, але це не доводить єдиного оптимального вікна. 5 г, місяці безперервного приймання й джетлаг не можна оголосити однаково вивченими. Цифри залишаються характеристиками досліду, не рекомендаціями кожному.
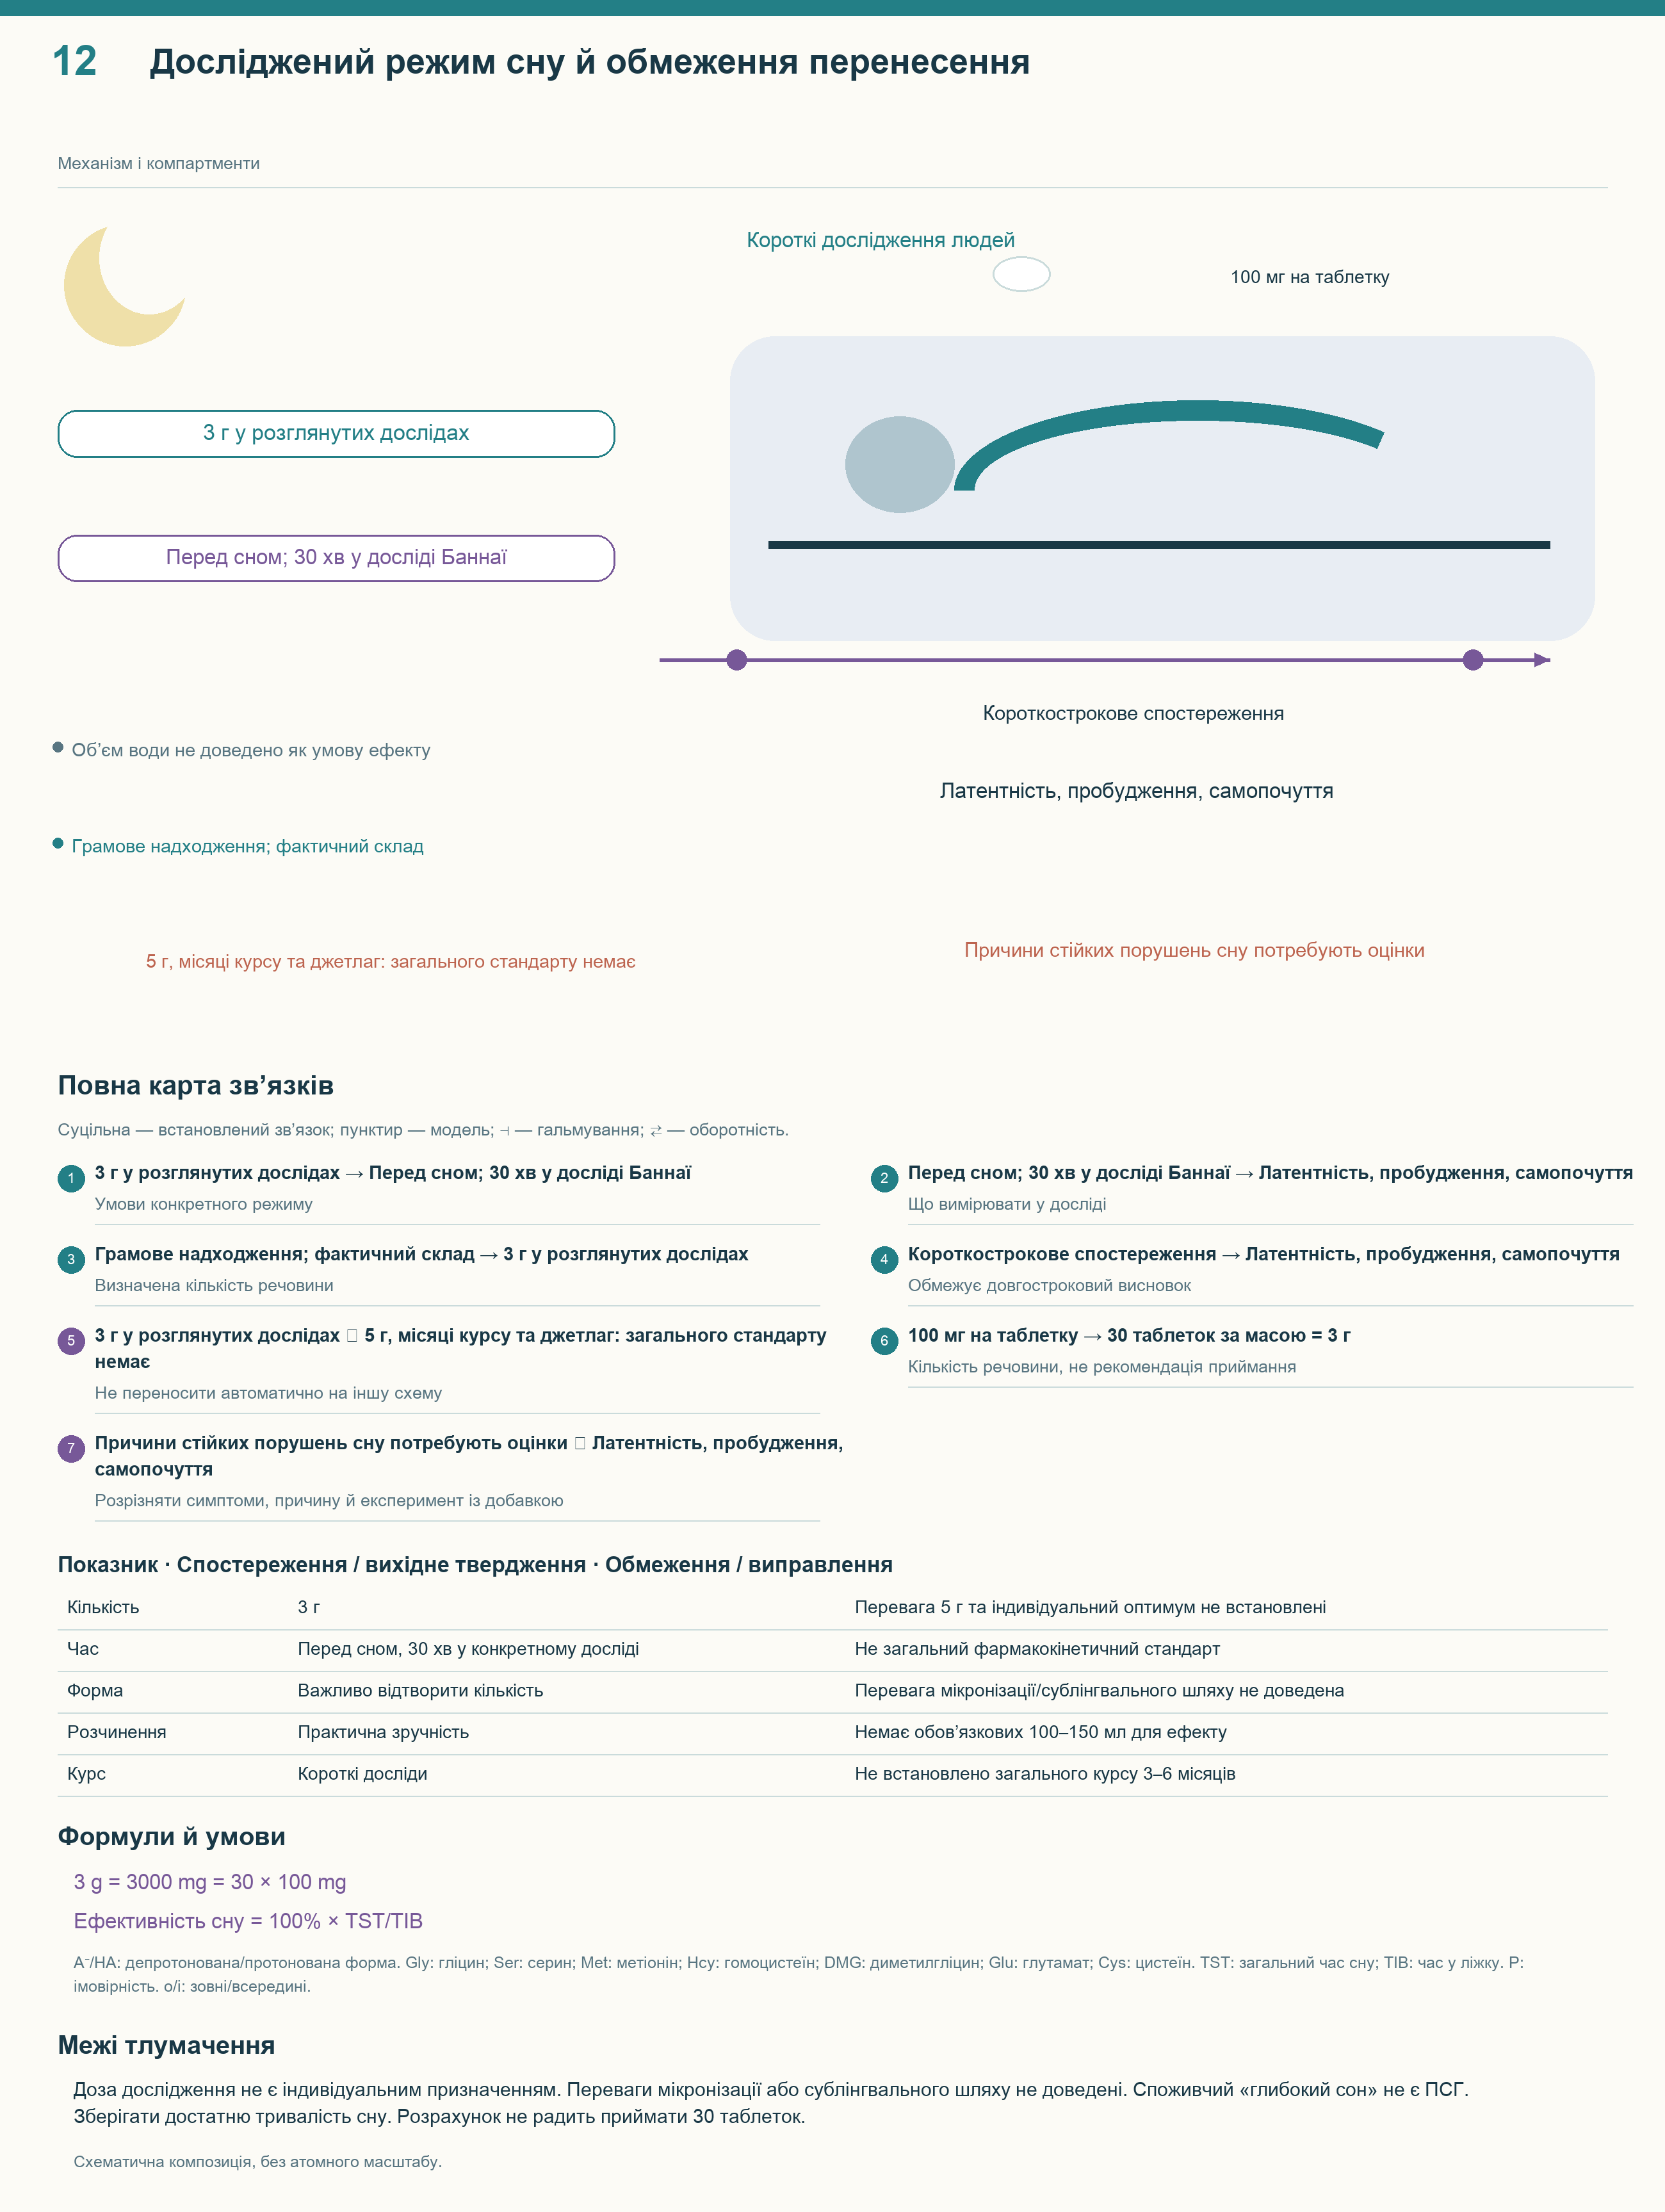
| Практичне питання | Що показують роботи | Невизначеність |
|---|---|---|
| Кількість | 3 г часто використовували в малих дослідах | Індивідуальний оптимум і перевага 5 г |
| Час | Перед сном; у Баннаї — 30 хвилин | Єдині 30–60 хвилин для всіх |
| Форма | Вміст, чистота й переносимість | Перевага мікронізації чи сублінгвального шляху |
| Розчинення | Порошок дозволяє відміряти грами | Обов'язкові 100–150 мл води |
| Тривалість | Переважно короткі дані | Ефективність і безпека 3–6 місяців |
| Результат | Латентність, пробудження, самопочуття й тривалість | Гарантований N3 на споживчому пристрої |
Таблетка 100 мг означає, що 3 г дорівнюють вмісту тридцяти таблеток. Це арифметика, не порада одночасно розсмоктувати тридцять. Мала доза не повторює грамове надходження; «біохімічна неможливість» вимагала б окремого порівняння. Форма й додаткові інгредієнти впливають на придатність продукту.
Особисте враження корисно зіставляти з послідовним щоденником: час сну, затримка, пробудження та денна сонливість. Вдала ніч на тлі інших змін не встановлює причинності. Побутовий «глибокий сон» не замінює ПСГ-класифікації. Мета — якісніший сон достатньої тривалості, не заміна його частини добавкою.
Стійке безсоння, значна сонливість і ознаки розладу дихання потребують встановлення причини. Випробування гліцину не дозволяють обходити діагностику й краще досліджене лікування. Розклад, середовище, світло, поведінка та захворювання діють разом. Можливий ефект одного показника не є універсальним рішенням.
Кумар застосував по 100 мг/кг на добу гліцину й NAC. За 70 кг це по 7 г, сумарно 14 г. Це режим зі спостереженням, не профілактичне призначення здоровій людині. Ранні ммоль/кг цистеїну також не дорівнюють такій самій числовій масі NAC через різні молярні маси.
Досліджений режим: Dречовини = 100 мг/кг/добу × маса тіла
За 70 кг: Dгліцину = 7 г/добу; DNAC = 7 г/добу
Розрахунок пояснює публікацію, не обирає дозу читачеві. У двотижневій роботі з іншими дозами загальну кількість ділили порівну між компонентами; це суттєво для упаковки й таблиці. Різна тривалість і кількість ускладнюють прямі порівняння. «2–3 г і 1200–1800 мг NAC усім здоровим» не підтверджені готовим стандартом.
Клінічна мета має передувати вибору. Глутатіон, переносимість, фізична функція та сон не взаємозамінні. Друга речовина змінює втручання й можливі взаємодії. GlyNAC позначає комбінацію, а не доказ кожної самостійної добавки.
Обмін гліцину та метіоніну пов'язаний, але обов'язкове співвідношення добавок не випливає з клінічного випробування. 2 г/кг білка не встановлюють надлишку SAM або дефіциту гліцину. Важливі склад раціону, загальний обмін і стан. Назви «кетогенний» чи «м'ясний» не передбачають метиляції ДНК.
3–5 г із м'ясом не доведені як профілактика судинних подій чи пригнічення патологічної MAT1A. Функція GNMT і генетичні моделі відповідають на інше питання. Практично корисніша повноцінність раціону та клінічні ризики, ніж компенсація їжі добавкою. Гліцин можна вивчати окремо, не призначаючи «антидотом метіоніну».
Рецепторна подвійність і метаболічні ролі мають надійну основу. GlyR створює аніонну провідність залежно від градієнтів; GluN1/GluN2 використовує гліцин чи D-серин разом із глутаматом і деполяризацією. Транспортери, компартменти й реакції визначають доступність. Це пояснює відсутність єдиної універсальної нейрональної дії молекули.
Терморегуляцію сну найдетальніше досліджено у щурів; людські роботи підтримують вужчі висновки про засинання й самопочуття. Не доведені обов'язковий приріст N3, швидше видалення патологічних білків, заміна достатнього сну або однакова безпека будь-якого тривалого курсу. GlyNAC — окрема комбінація з різними результатами в групах. Практична цінність — точно сформулювати завдання та межі, відділяючи переконливий механізм від доведеного лікувального результату.
Він діє на різні рецептори. GlyR створює аніонну провідність, що зазвичай гальмує зрілі нейрони. У звичайному NMDA гліцин — коагоніст глутамату, тому назва речовини не визначає напрям відповіді.
Мала ПСГ показала ранніше досягнення повільнохвильової стадії, не значущий приріст часток за ніч. Початок N3, його тривалість і спектральна дельта-активність різні. Обіцянка обов’язкового приросту сильніша за дані.
Детальні втручання в SCN і NMDA зроблено у щурів. Людська терморегуляція дає контекст, не підтвердження кожної ланки після гліцину. Фіксоване зниження температури всім не встановлене.
Це параметри коротких робіт, не універсальне призначення. Індивідуального оптимуму та ефективності багатомісячного курсу не встановлено. Більша доза не означає автоматично більшого доведеного ефекту.
Таких доказів немає. Малий дослід скоротив час у ліжку на чверть і поліпшив окремі денні оцінки, але не усунув хронічного недосипання. Достатню тривалість слід зберігати.
Ні, комбінація містить NAC та інші кінцеві точки. Сприятливі дані поєднуються з відсутністю основного поліпшення в іншій групі здорових літніх. Омолодження й однакова користь усім не доведені.
Гострий дослід у здорових зменшив площу відповіді разом із глюкозою. Кишковий гормон був гіпотезою, а клінічний GLP-1-шлях не доведений. Це не підстава заміняти лікування діабету.
Універсальне призначення не обґрунтоване. GNMT не доводить профілактики судинних подій добавкою. Розрахункові потреби теж не встановлюють дефіциту в кожного.
Є ендогенний пул, крива залежить від дози, розподілу й обміну. Тваринні досліди та плазмове зростання не задають універсальних людських констант. Вони не доводять точного зайняття SCN після 3 г.
Він стосується визначених умов. Короткі досліди не охоплюють усі хвороби, ліки та курси. Травні явища описані навіть у малому дослідженні 9 г.
Звичайний гліцин має два однакові водневі замісники на α-вуглеці, тому ахіральний і не має цих енантіомерів. L/D існує у серину: серинрацемаза утворює D-серин, коагоніст NMDA. Маркування «L-гліцин» не дає окремої рецепторної форми або переваги добавки.