L-теанін: альфа-ритми, глутамат, стрес і кофеїн
Докладний розбір хімії, транспорту, синаптичних моделей і людських випробувань L-теаніну: увага, тривога, сон, дози й безпека та механізми, які ще не можна переносити у клінічну практику.
Докладний розбір хімії, транспорту, синаптичних моделей і людських випробувань L-теаніну: увага, тривога, сон, дози й безпека та механізми, які ще не можна переносити у клінічну практику.
L-теанін часто описують як засіб для «спокійної концентрації»: людина нібито менше реагує на стрес, але зберігає ясність мислення. Це формулювання має експериментальне підґрунтя, проте об’єднує різні явища — суб’єктивне напруження, виконання завдань, електричну активність кори та сон. Зміна одного з них не дає змоги автоматично передбачити решту. Щоб зрозуміти місце теаніну в практиці, корисно пройти весь шлях від хімічної структури й транспорту до результатів конкретних випробувань.
Теанін справді цікавий як невелика молекула, подібна до звичайних амінокислот, але не включена до білків під час їхнього рибосомного синтезу. Ця особливість пов’язує його з транспортерами амінокислот і дослідженнями глутаматної передачі, а наявність у чаї — зі звичним впливом кофеїну. Водночас чай, ізольований L-теанін і комбінація двох речовин є різними втручаннями. Стаття розглядає кожен із цих рівнів, зокрема ситуації, коли фізіологічно правдоподібне пояснення поки випереджає клінічні дані.
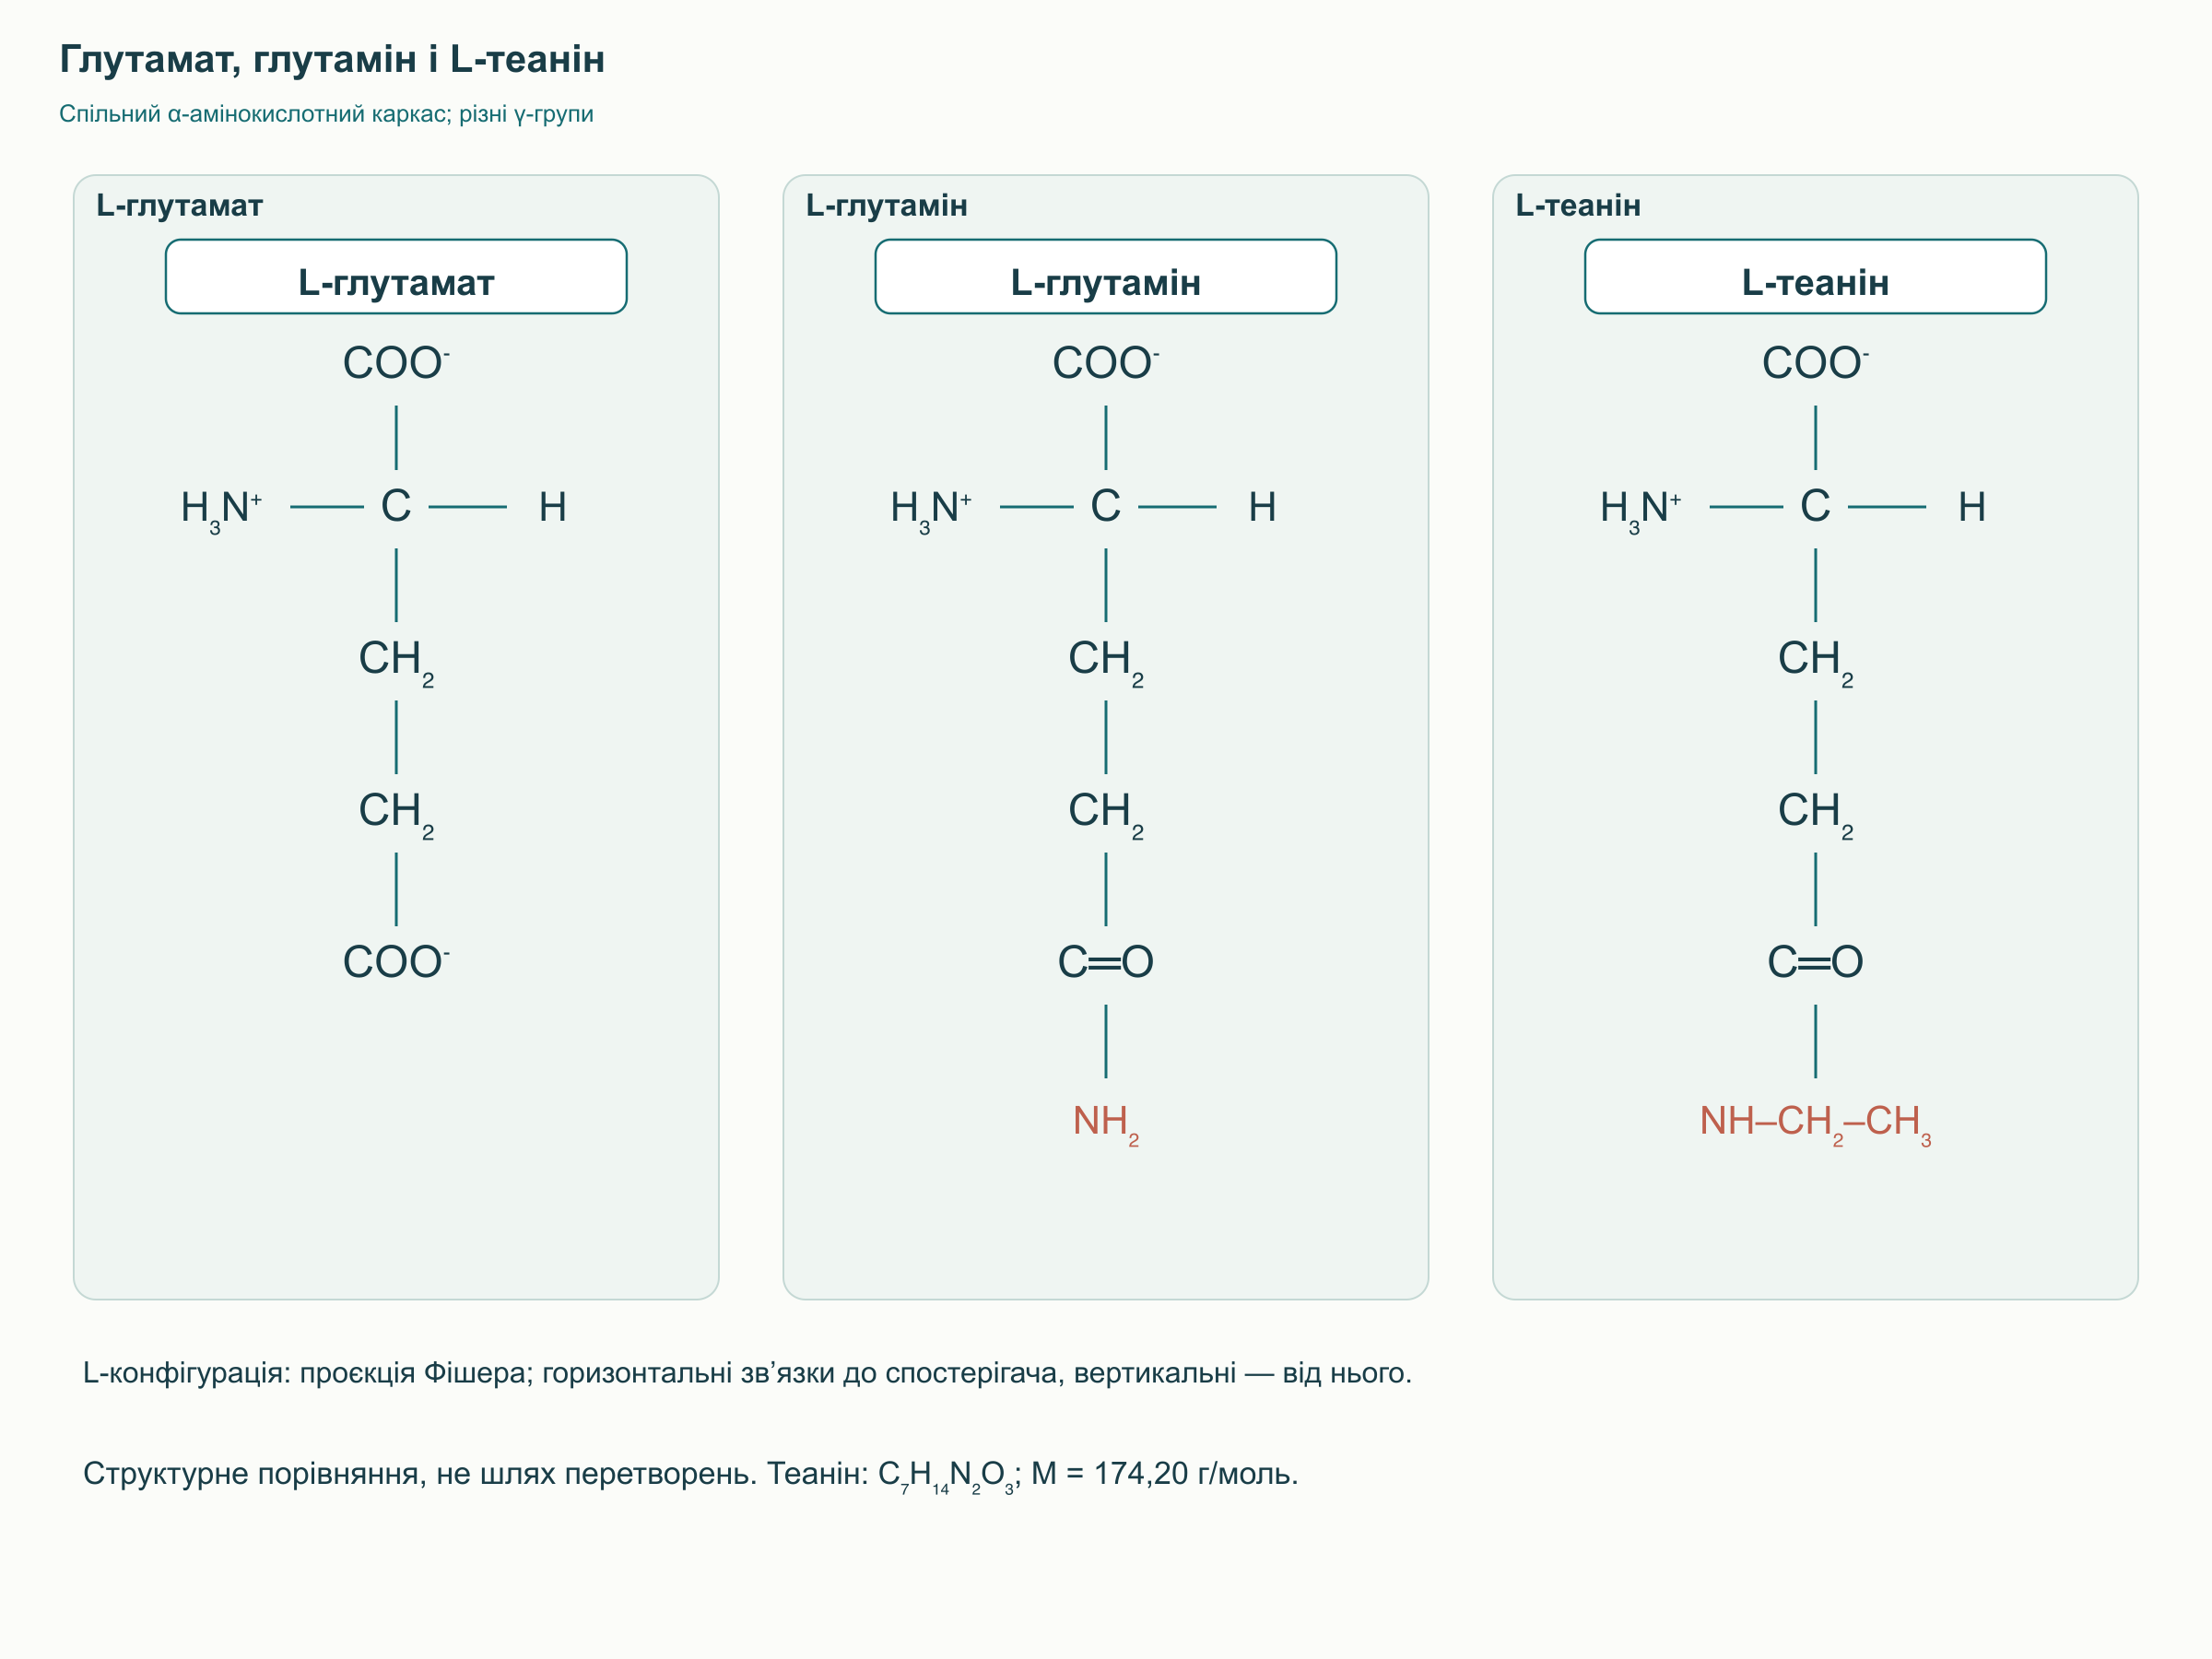
L-теанін — γ-глутамілетиламід, також відомий як N-етил-L-глутамін, із формулою C₇H₁₄N₂O₃ та молярною масою 174,20 г/моль. Його зручно порівнювати з глутаматом і глутаміном: усі три молекули мають амінокислотний каркас, але різний дальній кінець бічного ланцюга. У глутамату це карбоксильна група, у глутаміну — амідна, а в теаніну до азоту аміду приєднана етильна група. Ця невелика зміна впливає на заряд бічного ланцюга й розпізнавання білками, але сама не визначає, чи активуватиме речовина рецептор, чи пригнічуватиме його.
Основне харчове джерело — листя Camellia sinensis; чайні напої містять теанін разом із кофеїном і численними поліфенолами. Вміст у чашці залежить від сорту, обробки, кількості листя та заварювання, тому масу сухого листя не можна прямо перетворювати на дозу добавки. У дослідженнях уваги зазвичай використовували фіксовані кількості очищеної речовини, тоді як чай — змінна суміш. Наведені в літературі десятки міліграмів на чашку є орієнтиром для конкретного напою, а не універсальною характеристикою будь-якого чаю.
Літера L означає просторову конфігурацію молекули, а не ступінь її чистоти чи «силу» препарату. Для білків-переносників і ферментів розташування груп справді важливе, тому результати з L-формою не слід автоматично переносити на D-форму чи суміш ізомерів. Однак точного людського правила про десятикратну різницю проникнення цих форм у мозок немає. Практично потрібно знати склад дослідженого й придбаного продукту, а не приписувати однакову фармакокінетику будь-якій речовині з написом «теанін».
За фізіологічного pH аміногрупа теаніну переважно протонована, а вільна карбоксильна група депротонована. Утворюється цвітер-іон: молекула має позитивний і негативний заряди, хоча сумарний близький до нуля. Етильний фрагмент не робить цю структуру жиророзчинною речовиною, що вільно проходить усі мембрани. Тому обговорення центральної дії слід починати з переносників, а не з твердження, що теанін «легко розчиняється в ліпідах мозку».
Для зв’язування з білком важливі не тільки розмір, а й розташування донорів і акцепторів водневих зв’язків, локальний заряд і конформаційна рухливість бічного ланцюга. Структурна подібність може забезпечувати розпізнавання транспортером і водночас робити речовину слабким конкурентом природного субстрату. Вона не доводить, що теанін перетворюється на ГАМК або займає всі глутаматні рецептори за звичайної дози. Розмежування хімічної подібності та функціонального результату особливо важливе для клітинних експериментів із високими концентраціями.
Після перорального прийому теанін досить швидко з’являється у плазмі, проте його конкретний шлях через людський ентероцит вивчений слабше, ніж динаміка концентрації. У клітинних дослідах встановлено внесок системи L — переносників нейтральних амінокислот, чутливих до конкуренції з лейцином і експериментального інгібітора BCH. В окремих моделях участь LAT1 і LAT2 підтверджували безпосередніми транспортними вимірюваннями. Це підтримує переносниковий механізм, але не встановлює універсальної людської послідовності «B⁰AT1 на вході, LAT2 на виході».
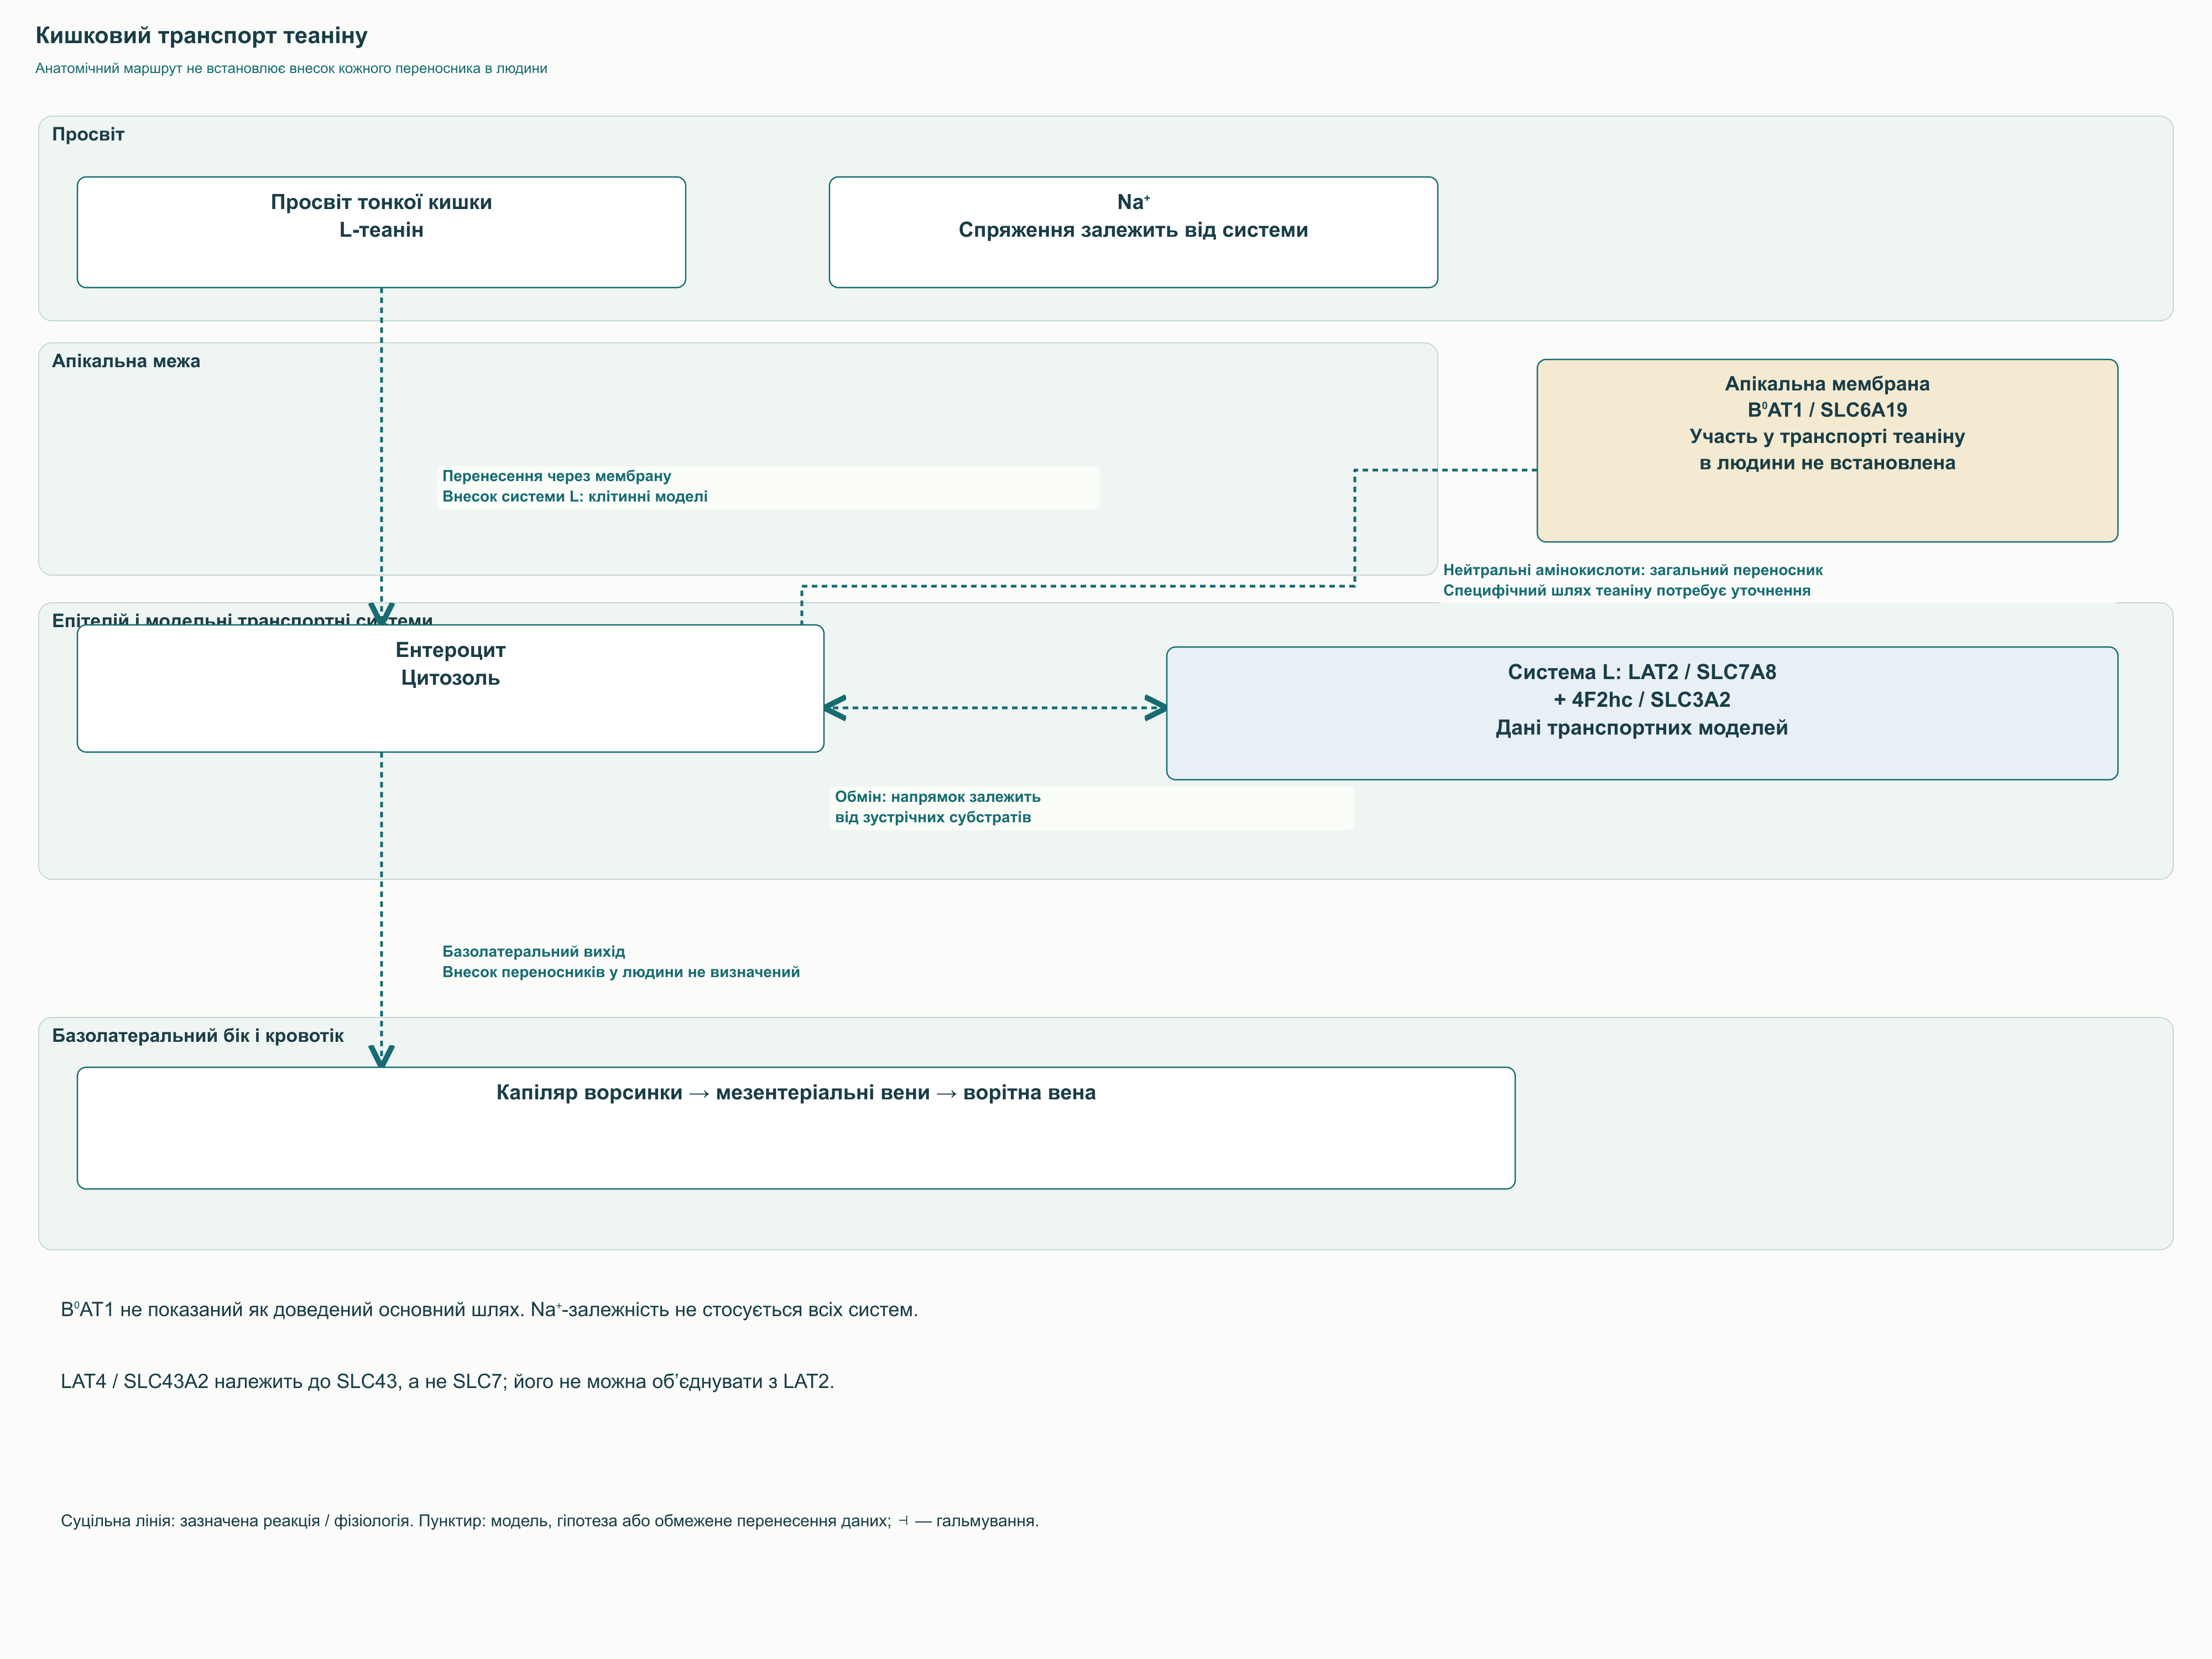
У фізіології кишківника B⁰AT1/SLC6A19 справді переносить нейтральні амінокислоти з апікального боку, а LAT2/SLC7A8 із важким ланцюгом 4F2hc/SLC3A2 бере участь у мембранному обміні амінокислот. LAT4/SLC43A2 належить до іншої родини й не має позначатися як член SLC7. Проте наявність цих білків в ентероциті ще не показує частку кожного в транспорті саме теаніну. Тому схема розрізняє встановлені анатомічні компартменти, результати моделей і переносники, участь яких у людській фармакокінетиці ще потрібно уточнити.
Найкорисніше людське дослідження порівнювало однакові 100 мг у капсулі та чайному напої у 12 здорових учасників у перехресному дизайні. Пік плазмової концентрації наставав приблизно через 0,8 години; Cmax становила 24,3 ± 5,7 мкмоль/л після капсули та 26,5 ± 5,2 мкмоль/л після чаю. Додаткові спостереження з 50 і 200 мг проводили лише у трьох людей, тож широкої лінійності для будь-яких доз із них вивести не можна. Подібність двох пероральних форм також не доводить абсолютної біодоступності 100%: потрібен належний внутрішньовенний орієнтир.
| Параметр | Що можна використати для інтерпретації | Чого він не показує |
|---|---|---|
| Cmax | Максимальну виміряну концентрацію у плазмі; близько 24–27 мкмоль/л після 100 мг у наведеному випробуванні | Синаптичну концентрацію та зайнятість рецепторів |
| Tmax | Час піку; близько 0,8 години в порівнянні капсули й чаю | Оптимальний час прийому для кожної людини |
| t½ | У невеликих дослідженнях плазмове зниження мало період близько години | Тривалість мозкового ефекту чи сну |
| AUC | Інтегральну системну експозицію протягом спостереження | Доказ клінічної ефективності |
| Vd і зв’язування з білками | Потребують конкретного людського дослідження й методу | Не визначаються за подібністю до інших амінокислот |
В іншій людській роботі Van der Pijl і колеги досліджували 15 здорових чоловіків 18–28 років із 25–100 мг у воді та чайних формах. Однокомпартментна модель описувала швидке всмоктування й плазмову елімінацію з періодом напіввиведення близько 65 хвилин. Результат допомагає планувати вимірювання, але стосується дослідженого діапазону та простих харчових матриць. Він не встановлює ані мозкового напіввиведення 3–4 години, ані величини затримки після білкової їжі.
Гематоенцефалічний бар’єр — не одна непроникна стінка, а система ендотеліальних клітин зі щільними контактами, переносниками й клітинами судинного оточення, що взаємодіють. Для амінокислотного аналога важливі перетин обох мембран ендотелію та доступність обмінних субстратів. У дослідах на щурах теанін знаходили в мозку, а транспортні дані узгоджуються з участю систем нейтральних амінокислот. Це пояснює можливість центрального впливу, але не дає точної карти розподілу або часу піку в людському мозку.
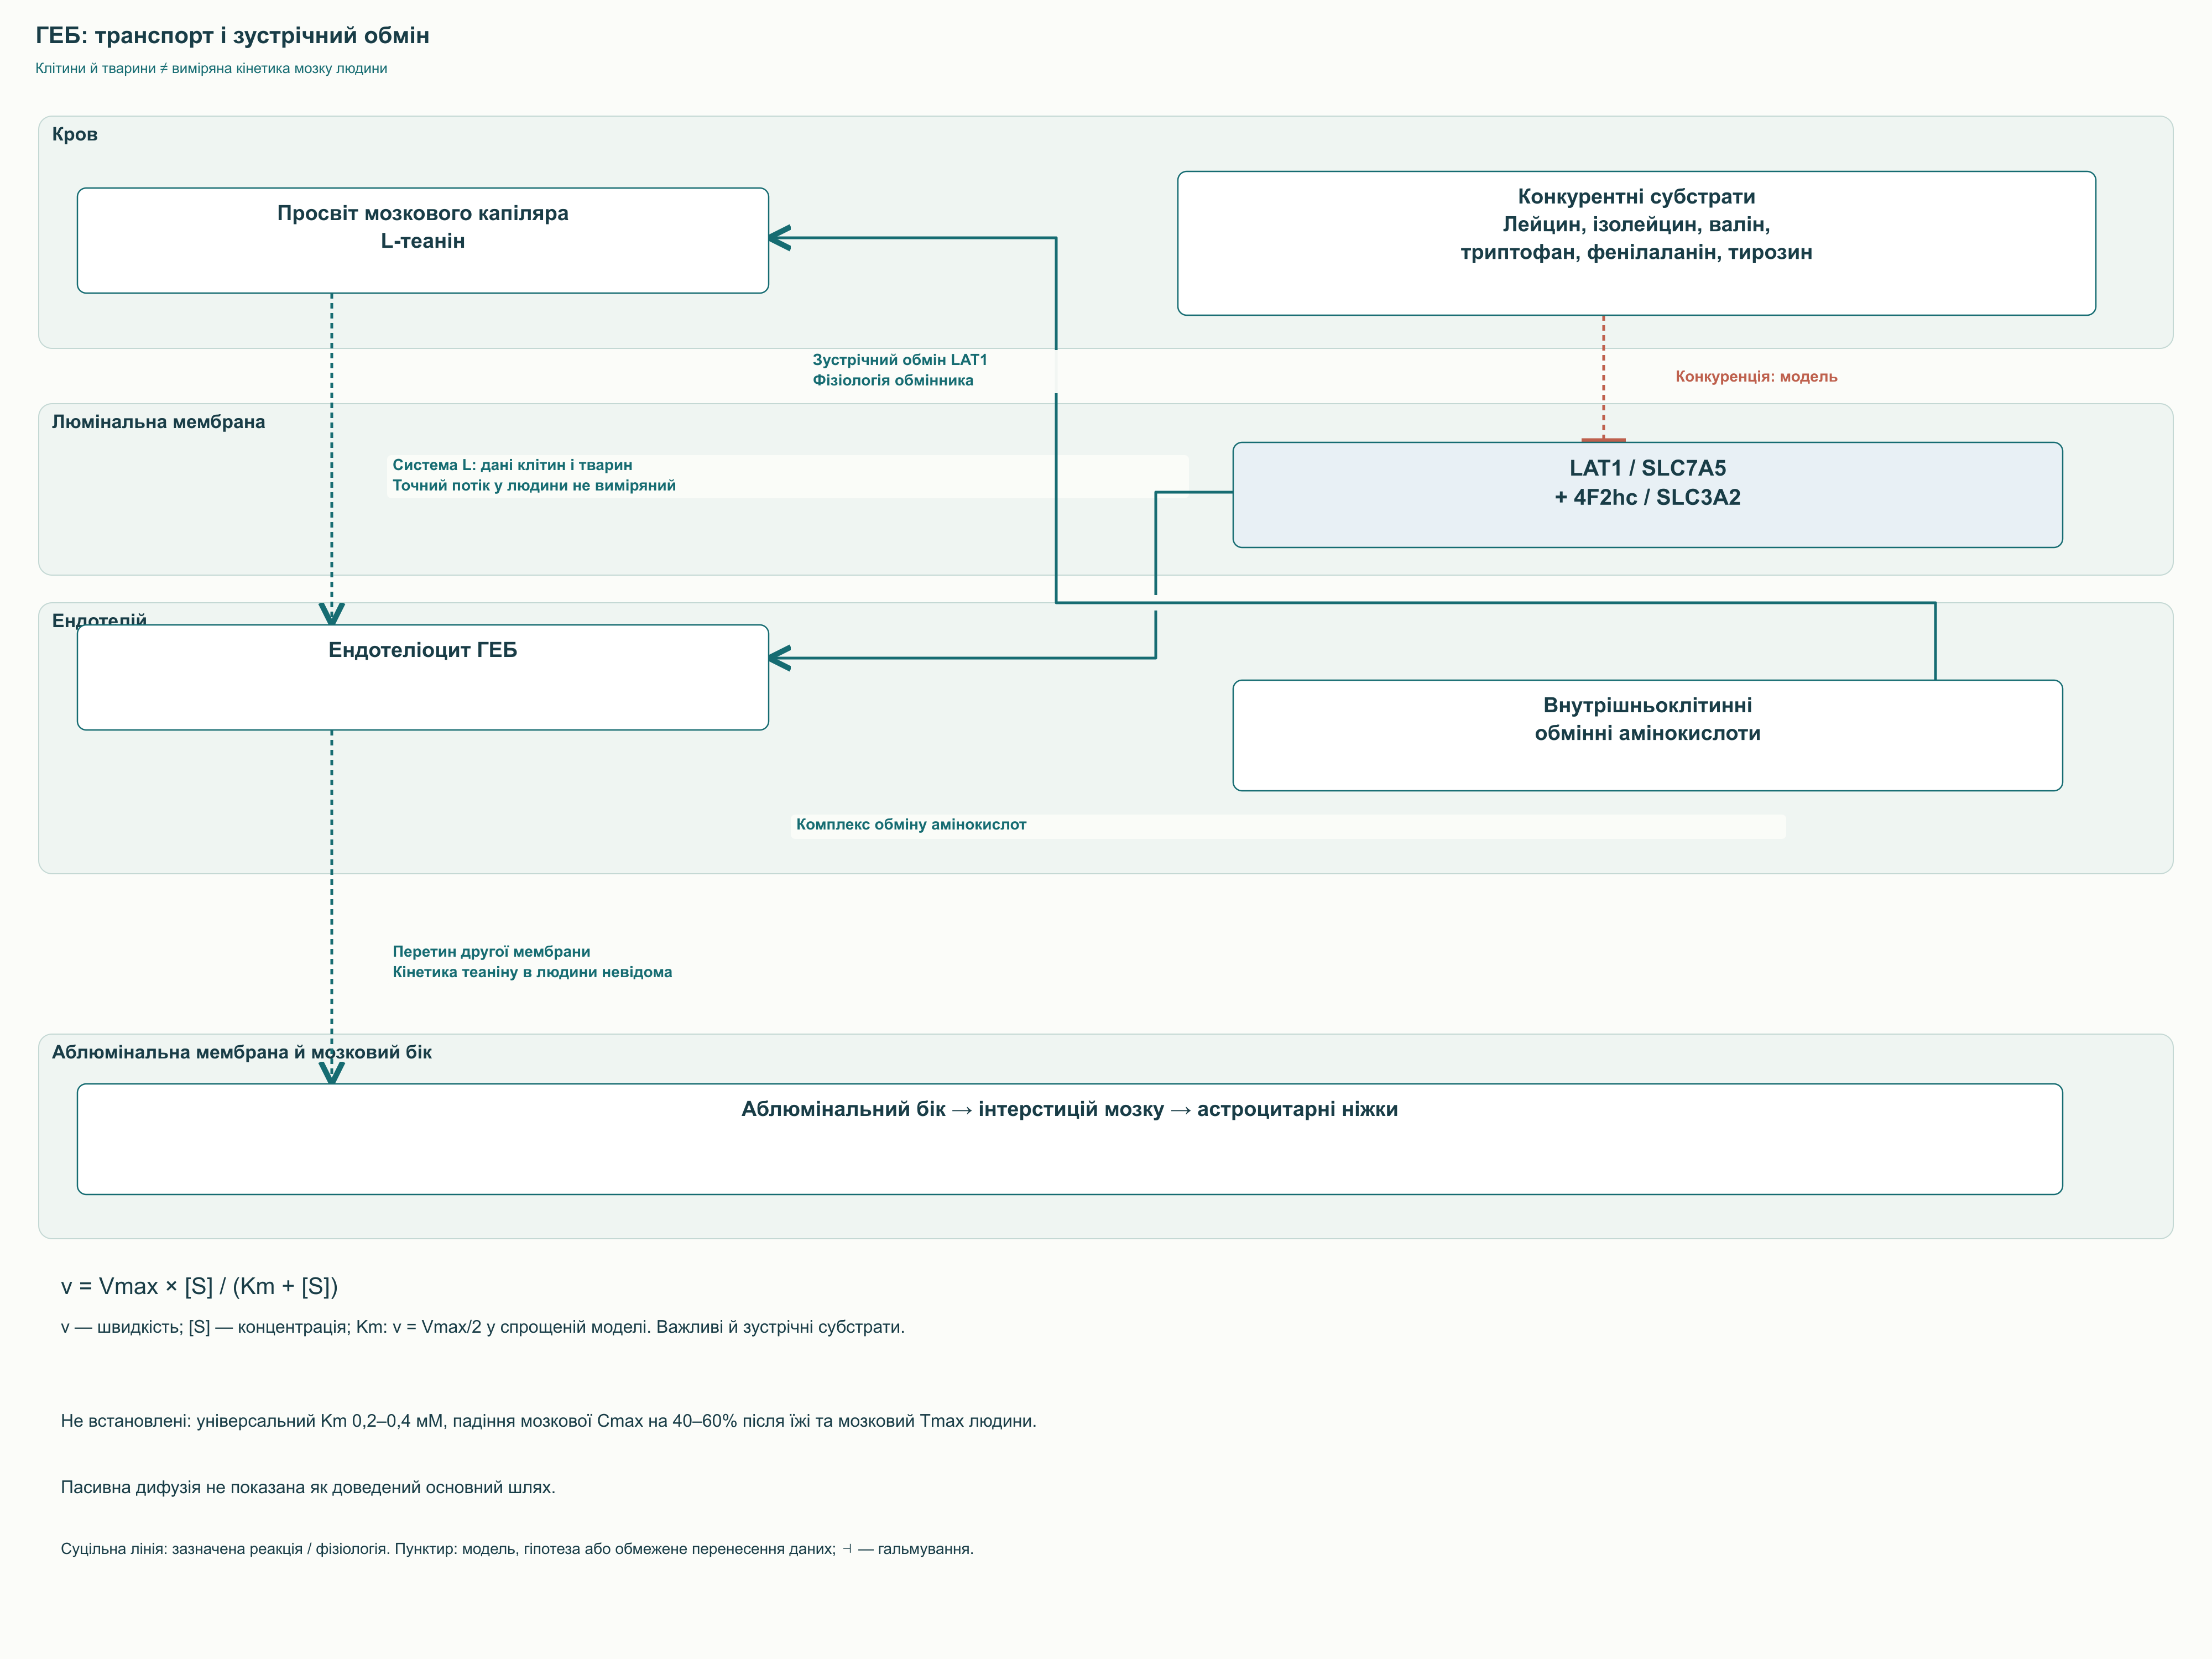
LAT1/SLC7A5 утворює комплекс із 4F2hc/SLC3A2 і працює як обмінник: рух одного субстрату пов’язаний із протилежним перенесенням іншого. Це відрізняється від простого насоса, що односпрямовано накопичує речовину незалежно від складу обох боків мембрани. Лейцин та інші великі нейтральні амінокислоти можуть конкурувати за спільну систему, але ефект залежить від концентрацій і контексту. Підтверджена конкуренція в клітинах не дорівнює доведеному зниженню когнітивного ефекту після білкового сніданку.
Насичення часто пояснюють рівнянням v = Vmax × [S] / (Km + [S]), де v — швидкість перенесення, [S] — концентрація субстрату, Vmax — максимальна швидкість, а Km — концентрація за половини Vmax в умовах моделі. Для обмінника це лише спрощена ілюстрація: потік залежить від зустрічних субстратів, кількох конкурентних амінокислот та обох боків мембрани. Тому Km не є універсальною «дозою для мозку». Числа 0,2–0,4 мМ і рекомендація приймати натщесерце для гарантованого максимуму в мозку не мають тут достатньої людської опори.
Розщеплення стехіометрично можна записати так: L-теанін + H₂O → L-глутамат + етиламін. У людському фармакокінетичному дослідженні після прийому зростали рівні теаніну й етиламіну у крові та сечі, що підтримує біотрансформацію. Однак реакція не встановлює, який фермент та орган роблять цей внесок у конкретної людини. Назва «теаніназа» стосується певних експериментальних ферментних систем і не має створювати враження окремого доведеного людського лікарського шляху.
Глутамат включається в загальний амінокислотний обмін: може перетворюватися на глутамін, брати участь у трансамінуванні та бути пов’язаним з α-кетоглутаратом і енергетикою. Етиламін має формулу CH₃CH₂NH₂, але подальше окиснення й частку різних шляхів не можна кількісно визначити за однією схемою. Особливо неправильно вважати, що кожна утворена молекула глутамату автоматично стає збуджувальним медіатором мозку. Системний метаболізм і синаптичний пул розділяють бар’єри, клітинні переносники й місцевий контроль синтезу та вивільнення.
Глутамат запускає швидкі збуджувальні відповіді через іонотропні рецептори, проте вони не взаємозамінні. AMPA зазвичай забезпечують швидкий деполяризувальний струм; кальцієва проникність залежить, зокрема, від субодиниць і редагування GluA2. NMDA потребують глутамату й коагоніста — гліцину або D-серину, а струм також залежить від потенціалу та магнієвого блоку. Поєднання хімічних і електричних умов забезпечує участь у пластичності й водночас значення за патологічного кальцієвого перевантаження.
У класичній роботі 2002 року теанін змінював зв’язування радіолігандів з AMPA, каїнатними рецепторами та гліциновою ділянкою NMDA в препаратах кори щура. Це дослід зв’язування, не прямий запис струму через людський рецептор після добавки. IC50 — концентрація, що зменшує сигнал на 50% у цьому досліді; вона не дорівнює автоматично Ki, клінічній дозі або мозковій концентрації. Тому довільні таблиці «Ki 150–200 мкМ для NMDA» не пояснюють надійно людський ефект.
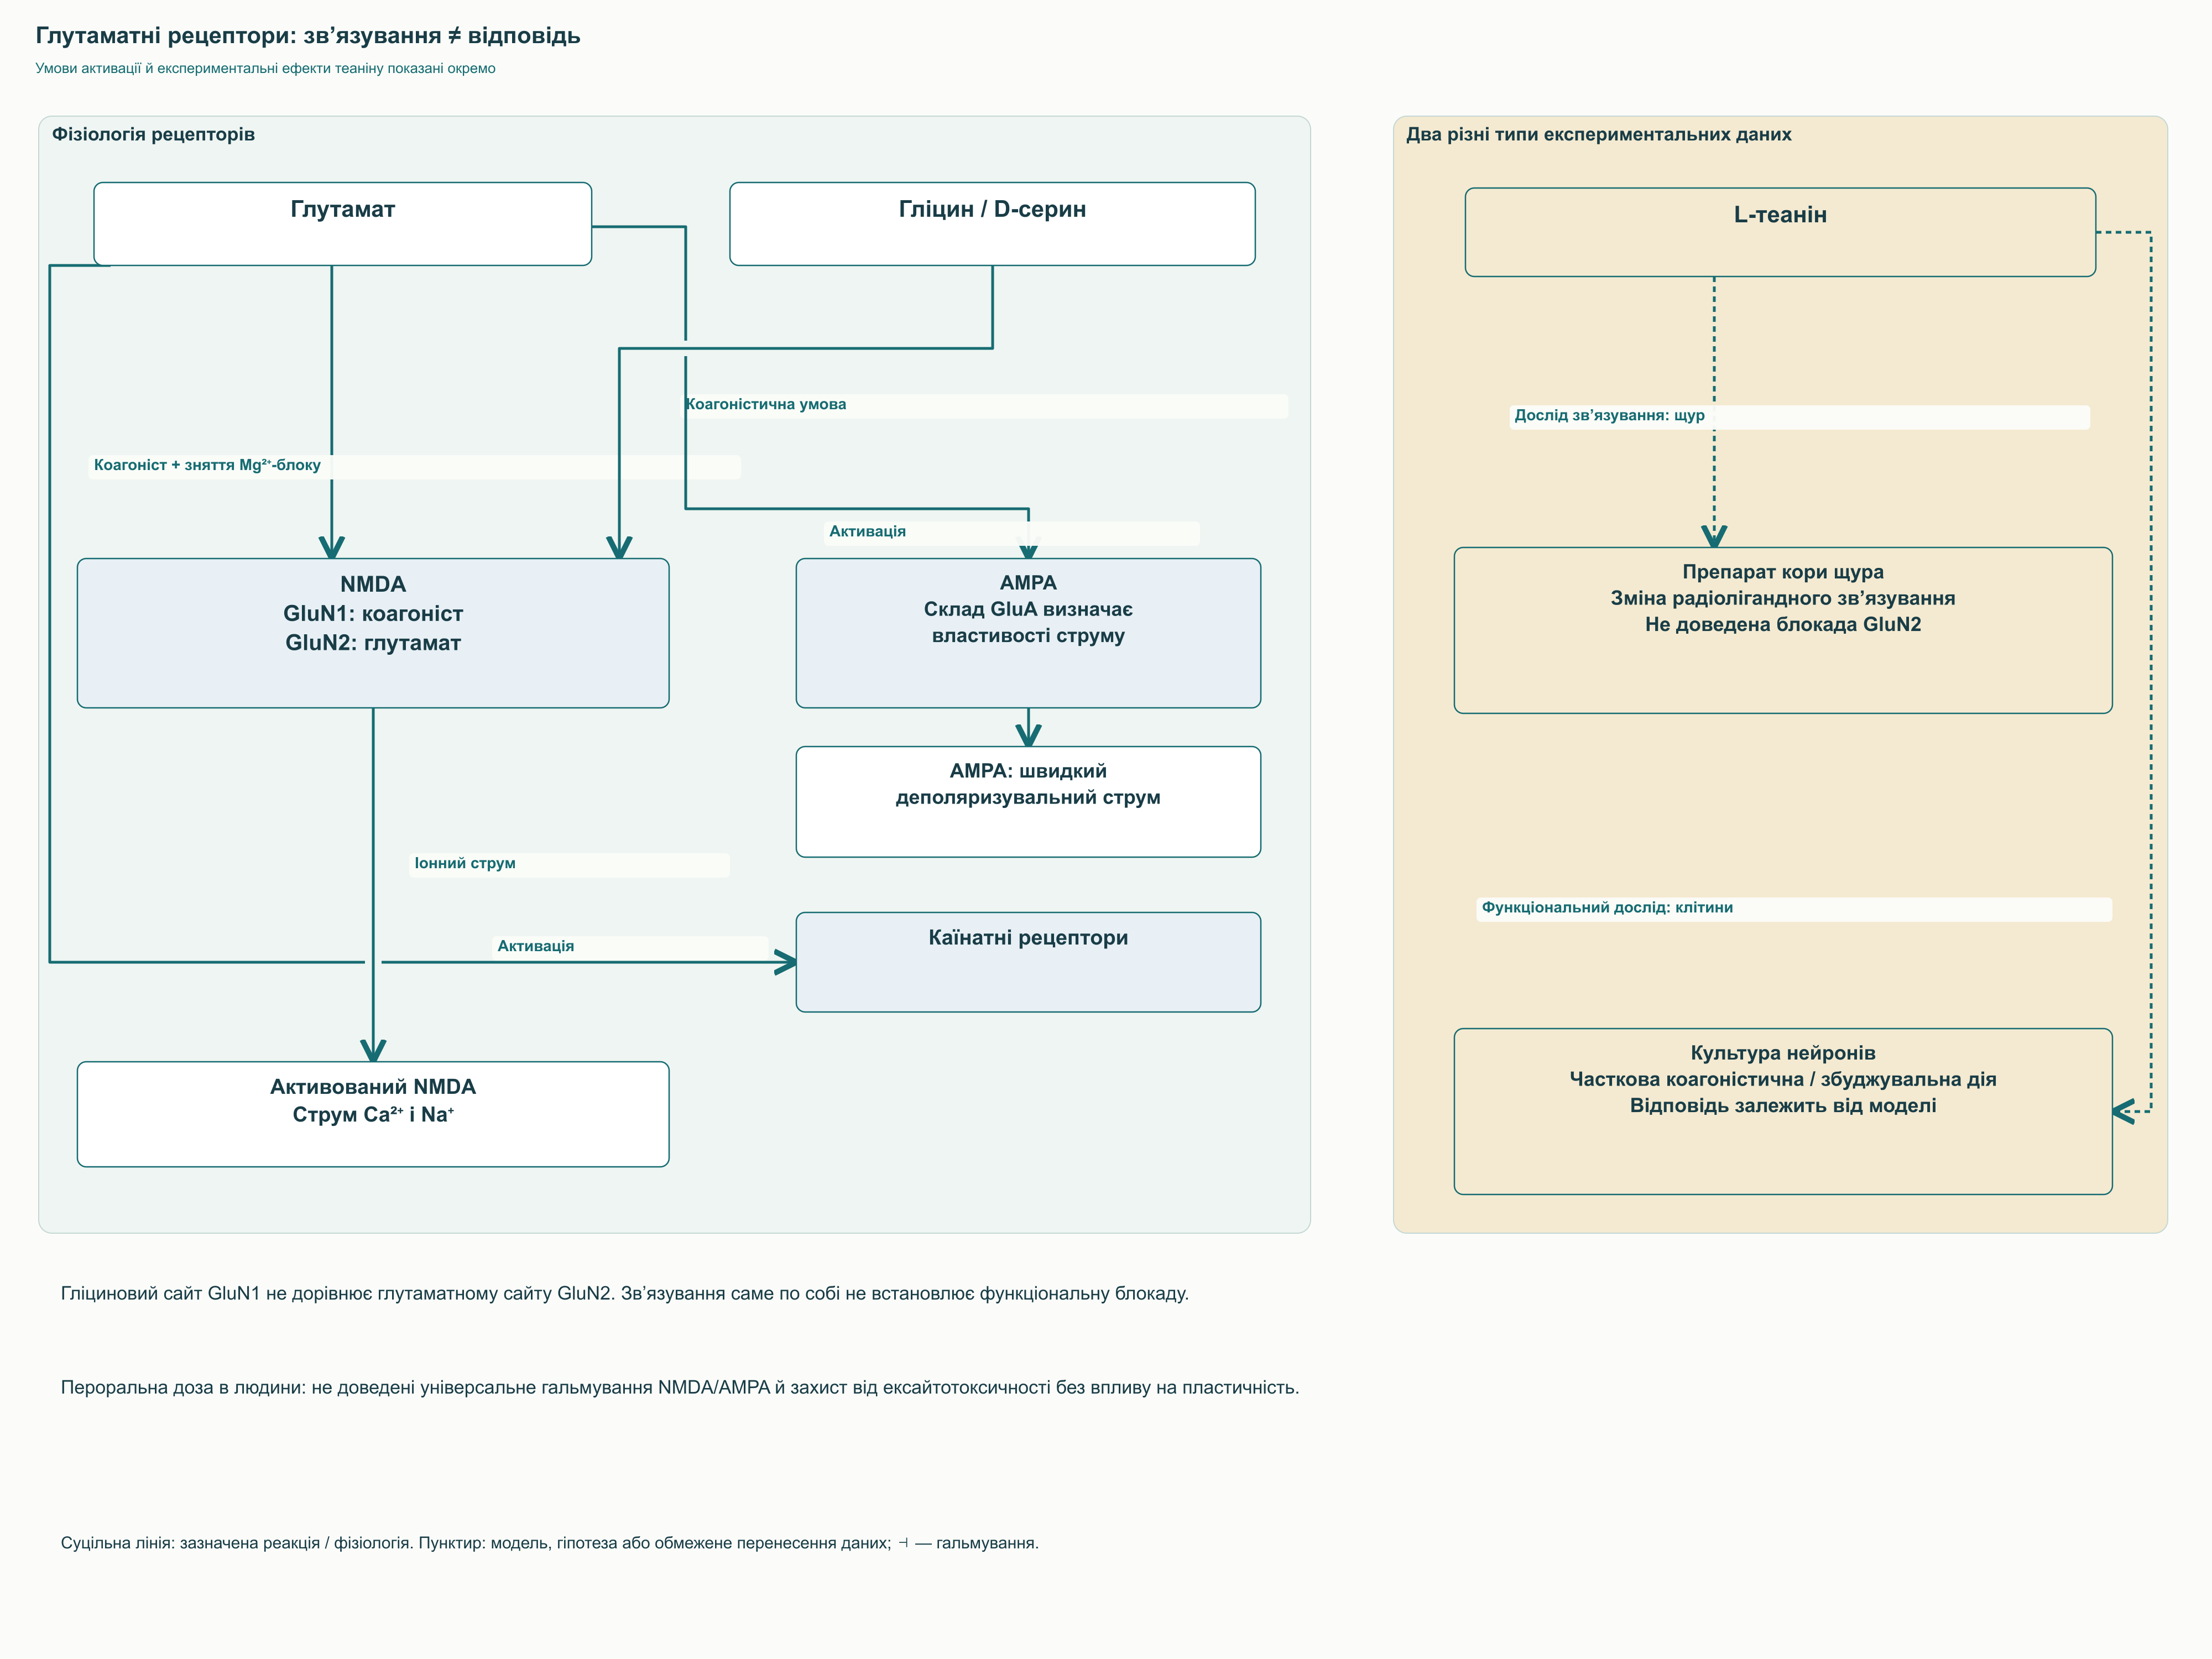
Пізніші досліди ускладнюють картину: у культурі коркових нейронів теанін підвищував внутрішньоклітинний Ca²⁺, а відповідь пригнічували NMDA-антагоністи AP-5 і MK-801. Інша робота на культурах гіпокампальних нейронів описала часткову коагоністичну дію на NMDA. Це не виправдовує зображення теаніну однозначним блокатором глутаматної ділянки GluN2. Також не доводить небезпечної ексайтотоксичності за звичайного прийому людиною: модель, концентрація й тривалість мають самостійне значення.
Ексайтотоксичність — пошкодження через надмірне тривале збудження, наприклад за ішемії з порушеною енергетикою та іонними градієнтами. Нормальна глутаматна передача натомість необхідна для сприйняття, навчання й пам’яті. Звідси обмеження: менше пошкодження в моделі не доводить «захисту мозку» здорової людини, а краща увага не доводить блокади ексайтотоксичності. Клінічна обіцянка має спиратися на виміряний результат, а не привабливу назву рецептора.
Після вивільнення глутамат має видалятися з позаклітинного простору, інакше сигнал втрачає часову точність. Важливі переносники EAAT, зокрема астроцитарні EAAT1/SLC1A3 та EAAT2/SLC1A2. В астроциті глутамінсинтетаза перетворює глутамат на глутамін; він може вийти й потрапити до нейрона. Нейрональна глутаміназа повертає його у глутаматний пул, пов’язаний з енергетикою й пакуванням медіатора у везикули.
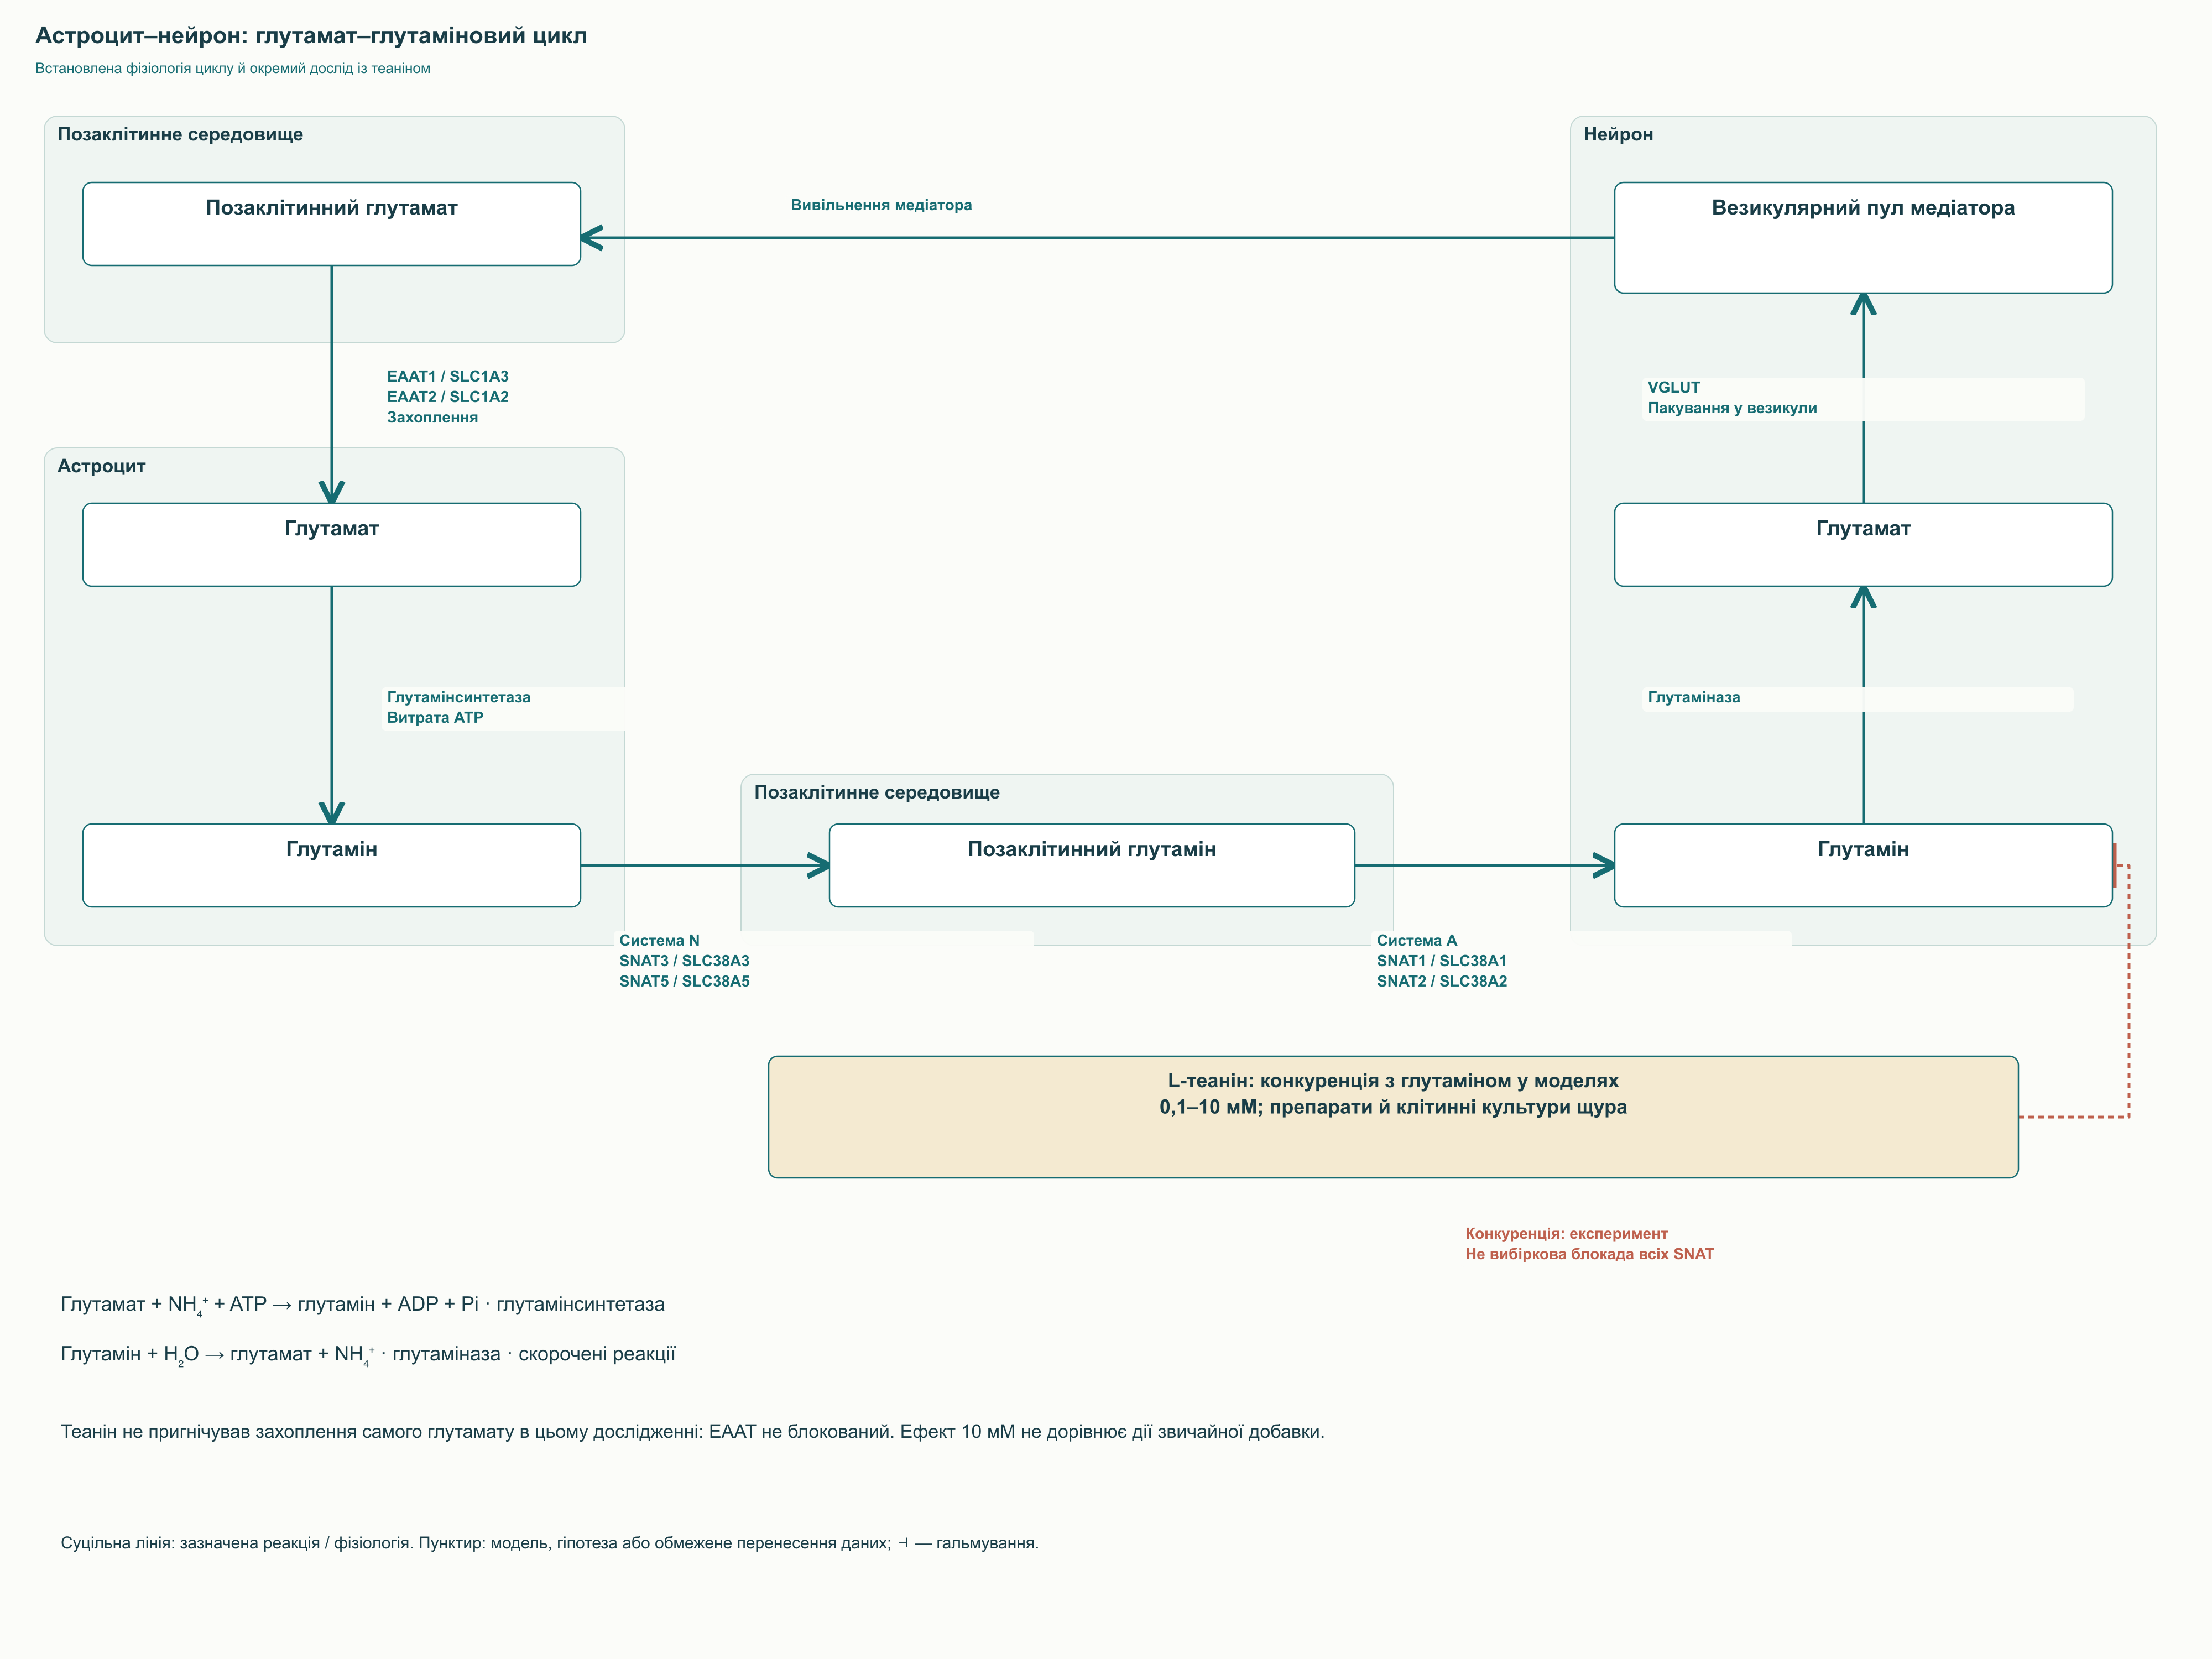
Вихід глутаміну з астроцитів пов’язують із системою N, зокрема SNAT3/SLC38A3 та SNAT5/SLC38A5, а нейрональне захоплення — із системою A, SNAT1/SLC38A1 та SNAT2/SLC38A2. Але загальна карта не означає вибіркового однакового пригнічення кожного білка теаніном. У синаптосомах, нейронах і астроцитах досліджували конкуренцію з глутаміном за 0,1–10 мМ; тривалі 10 мМ зменшували позаклітинне вивільнення глутамату. Аналогічного пригнічення захоплення самого глутамату не виявили.
Мілімолярні концентрації досліду значно відрізняються від десятків мікромолів на літр у плазмі після 100 мг у людини. Навіть їхній збіг не дозволяв би прямого перенесення через різні середовище, обмін субстратів і локальну експозицію. У клітинах P19 також описані зміни експресії Slc38a1 — регуляція в часі, а не миттєве конкурентне пригнічення. Для фахівця це дві причинні ланки: вплив на функцію переносника та зміна його кількості.
ГАМК синтезується з глутамату глутаматдекарбоксилазами GAD65 і GAD67 за участю піридоксальфосфату: L-глутамат → ГАМК + CO₂. Реакція є частиною нормальної роботи гальмівних нейронів і не означає, що структурний аналог є тим самим субстратом. Зростання тканинної ГАМК після теаніну теж не визначає єдиної причини: можуть змінюватися синтез, розпад, транспорт і розподіл між клітинними пулами. Без відповідних дослідів не можна приписувати ефект прямому пригніченню ГАМК-трансамінази.
У мозку щурів, що розвивається, після теаніну описували зміни кількох медіаторів і експресії нейротрофінів. Результат допомагає шукати механізми, але не дорівнює доведеному збільшенню гальмівного струму в дорослої людини. Дані ГАМК не переносяться автоматично на певні позасинаптичні δ-вмісні GABA-A-рецептори або ступінь «тонічного гальмування». Тим більше вони не роблять теанін бензодіазепіном із меншою кількістю побічних ефектів.
Дофамін бере участь не лише в мотивації, а й у налаштуванні робочої пам’яті, виборі дій та обробці значущості сигналів. Серотонін діє через багато рецепторів, які по-різному змінюють активність мережі. Тому «оптимізує дофамін» і «балансує серотонін» приховують питання замість пояснення: який регіон, тварина, доза й метод вимірювання? Навіть концентрація медіатора в гомогенаті тканини не показує прямо інтенсивності синаптичної передачі.
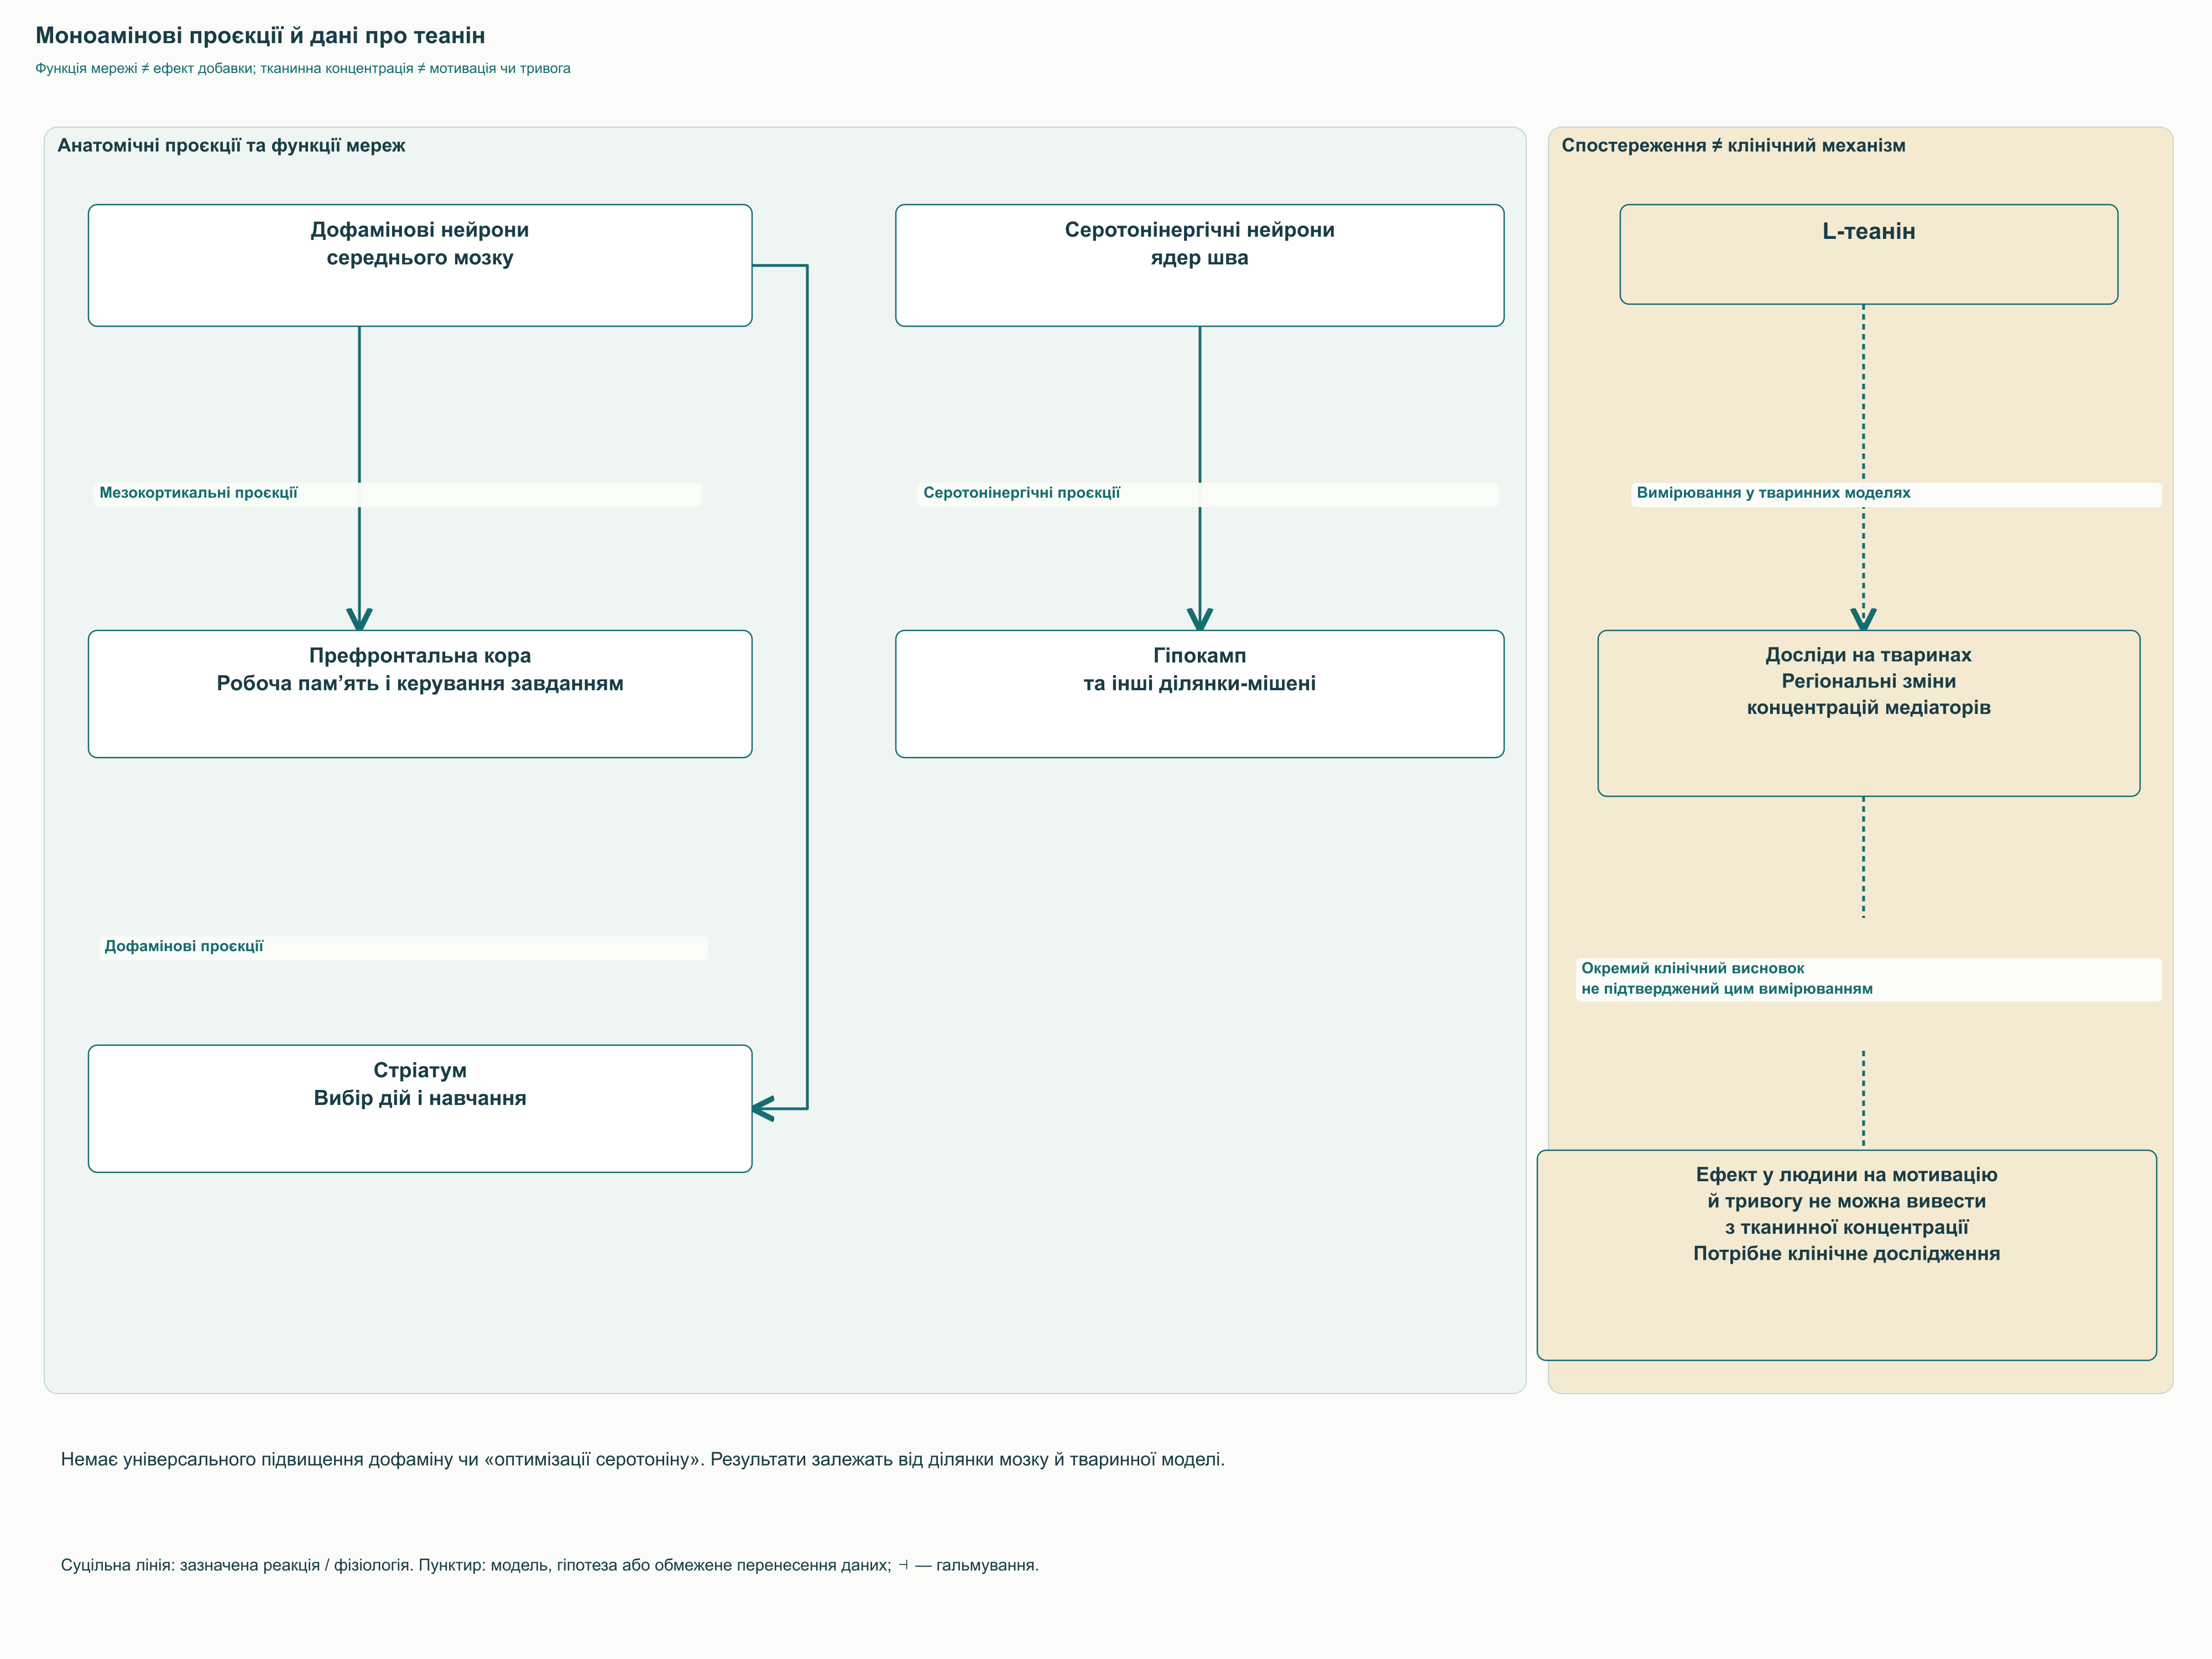
Тваринні експерименти справді знаходили регіональні зміни моноамінів після теаніну, але універсального посилення мезокортиколімбічної передачі в людини не встановлено. Проєкції середнього мозку до стріатуму й префронтальної кори, а також серотонінергічні проєкції ядер шва є важливим анатомічним підґрунтям. На схемі вони відділені від гіпотетичних ефектів добавки, щоб анатомія не перетворювалася на доказ призначення.
BDNF — нейротрофічний фактор, що через TrkB регулює виживання клітин, синаптичні властивості та пластичність. У мишей після трьох тижнів теаніну спостерігали більше BDNF у гіпокампі; у щурів, що розвиваються, вивчали маркери поділу та нейронального дозрівання. В одному досліді підвищення залежало від часу вимірювання й не зберігалося однаково в усі вікові строки. Це не обіцянка нових функціональних нейронів дорослому споживачеві.
Nrf2 і Keap1 належать до відповіді клітини на окиснювальний та електрофільний стрес. За відповідної активації Nrf2 змінює експресію захисних генів, зокрема NQO1 і HMOX1; вплив на SLC7A11 та GPX4 пов’язує систему зі стійкістю до фероптозу. У роботі 2025 року теанін досліджували у позбавлених сну мишей та клітин HT22, оцінюючи білкові маркери й поведінку. Це зберігає інтерес до каскаду, але не доводить достатньої активації звичайною людською дозою для запобігання нейродегенерації.
Альфа-активність зазвичай означає коливання приблизно 8–12 Гц, хоча межі залежать від методики та індивідуального піку. Вона добре помітна над задніми відділами за спокійного неспання із закритими очима й змінюється за зорового навантаження. Проте ЕЕГ реєструє сумарну синхронізовану електричну активність великих нейронних популяцій, не «кількість розслаблення». Амплітуда залежить від електродів, референсу, стану й обробки, тому єдиний діапазон мікровольт не є паспортом ефективності.
Ритми генеруються корковими й таламічними мережами, збуджувальними релейними та гальмівними нейронами й зворотними проєкціями кори. Ретикулярне ядро таламуса використовує ГАМК, а більшість корково-таламічних і таламо-коркових проєкцій — глутамат. T-тип кальцієвих каналів важливий для певних розрядів, але всю альфа-активність не можна звести до їхнього автоматичного перемикання на 10 Гц. Первинні записи з латерального колінчастого тіла кота, наприклад, виявили взаємодію високопорогових розрядів і гальмівних інтернейронів.
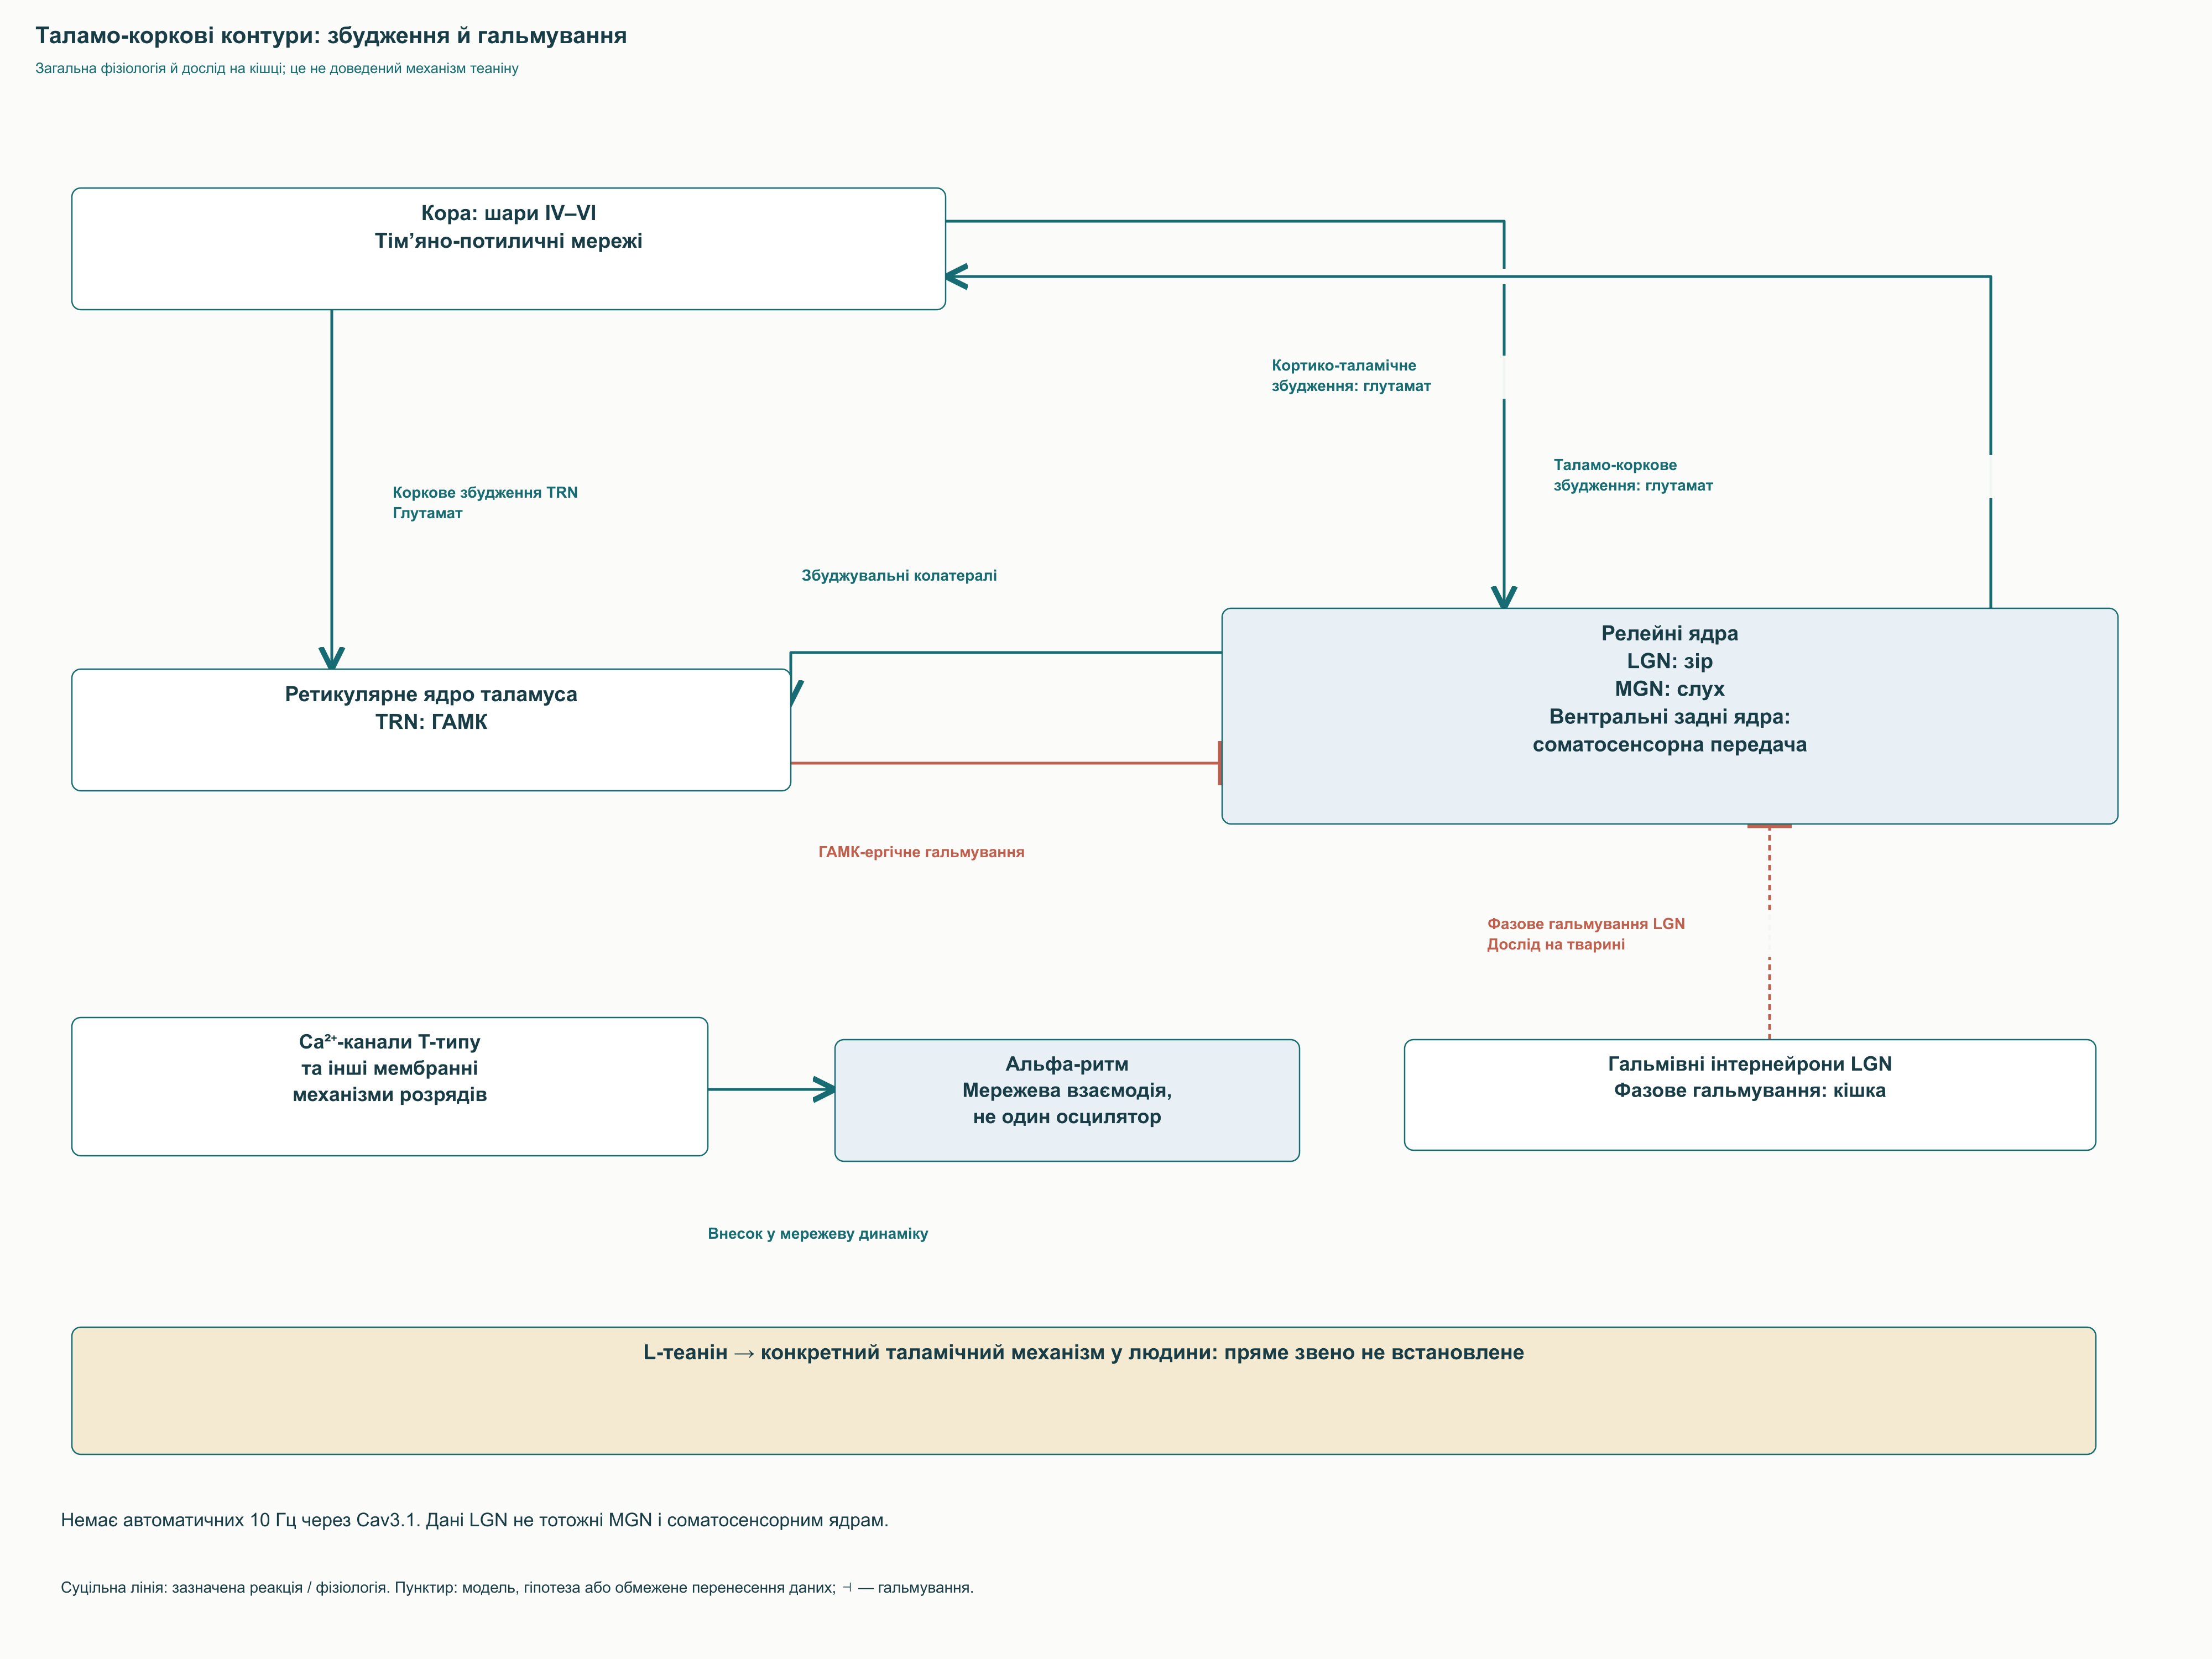
Латеральне колінчасте тіло належить до зорового шляху, медіальне — слухового, вентральні задні ядра — соматосенсорного. Їхня участь не доводить однакової відповіді кожного ядра на теанін. У людини немає встановленого ланцюга «пероральна доза → посилення δ-GABA-A в ретикулярному ядрі → альфа-пік → краща пам’ять». Мережева гіпотеза корисна, коли кожен перехід чітко розділяє виміряне й те, що лише пов’язує різні моделі.
Невелика робота Nobre використовувала 50 мг теаніну та ЕЕГ із закритими очима протягом 45–105 хвилин після прийому. Спочатку групи включали 16 учасників із теаніном і 19 контрольних; описане зростання альфа щодо контролю. Це електрофізіологічний результат у певному стані, не прямий вимір клінічної тривоги чи продуктивності. Невелика коротка публікація також не встановлює відтворюваності за різних вихідних станів.
Під час завдання напрям зміни може відрізнятися. Gomez-Ramirez використовував 168 електродів і аналізував підготовку до перемикання уваги між модальностями. Теанін був пов’язаний зі зниженням фонової альфа, але посиленням окремої випереджувальної відповіді, пов’язаної із завданням, праворуч у тім’яно-потиличній ділянці. Це прямо показує, чому «більше альфа — краще» не замінює аналізу просторової й часової організації.
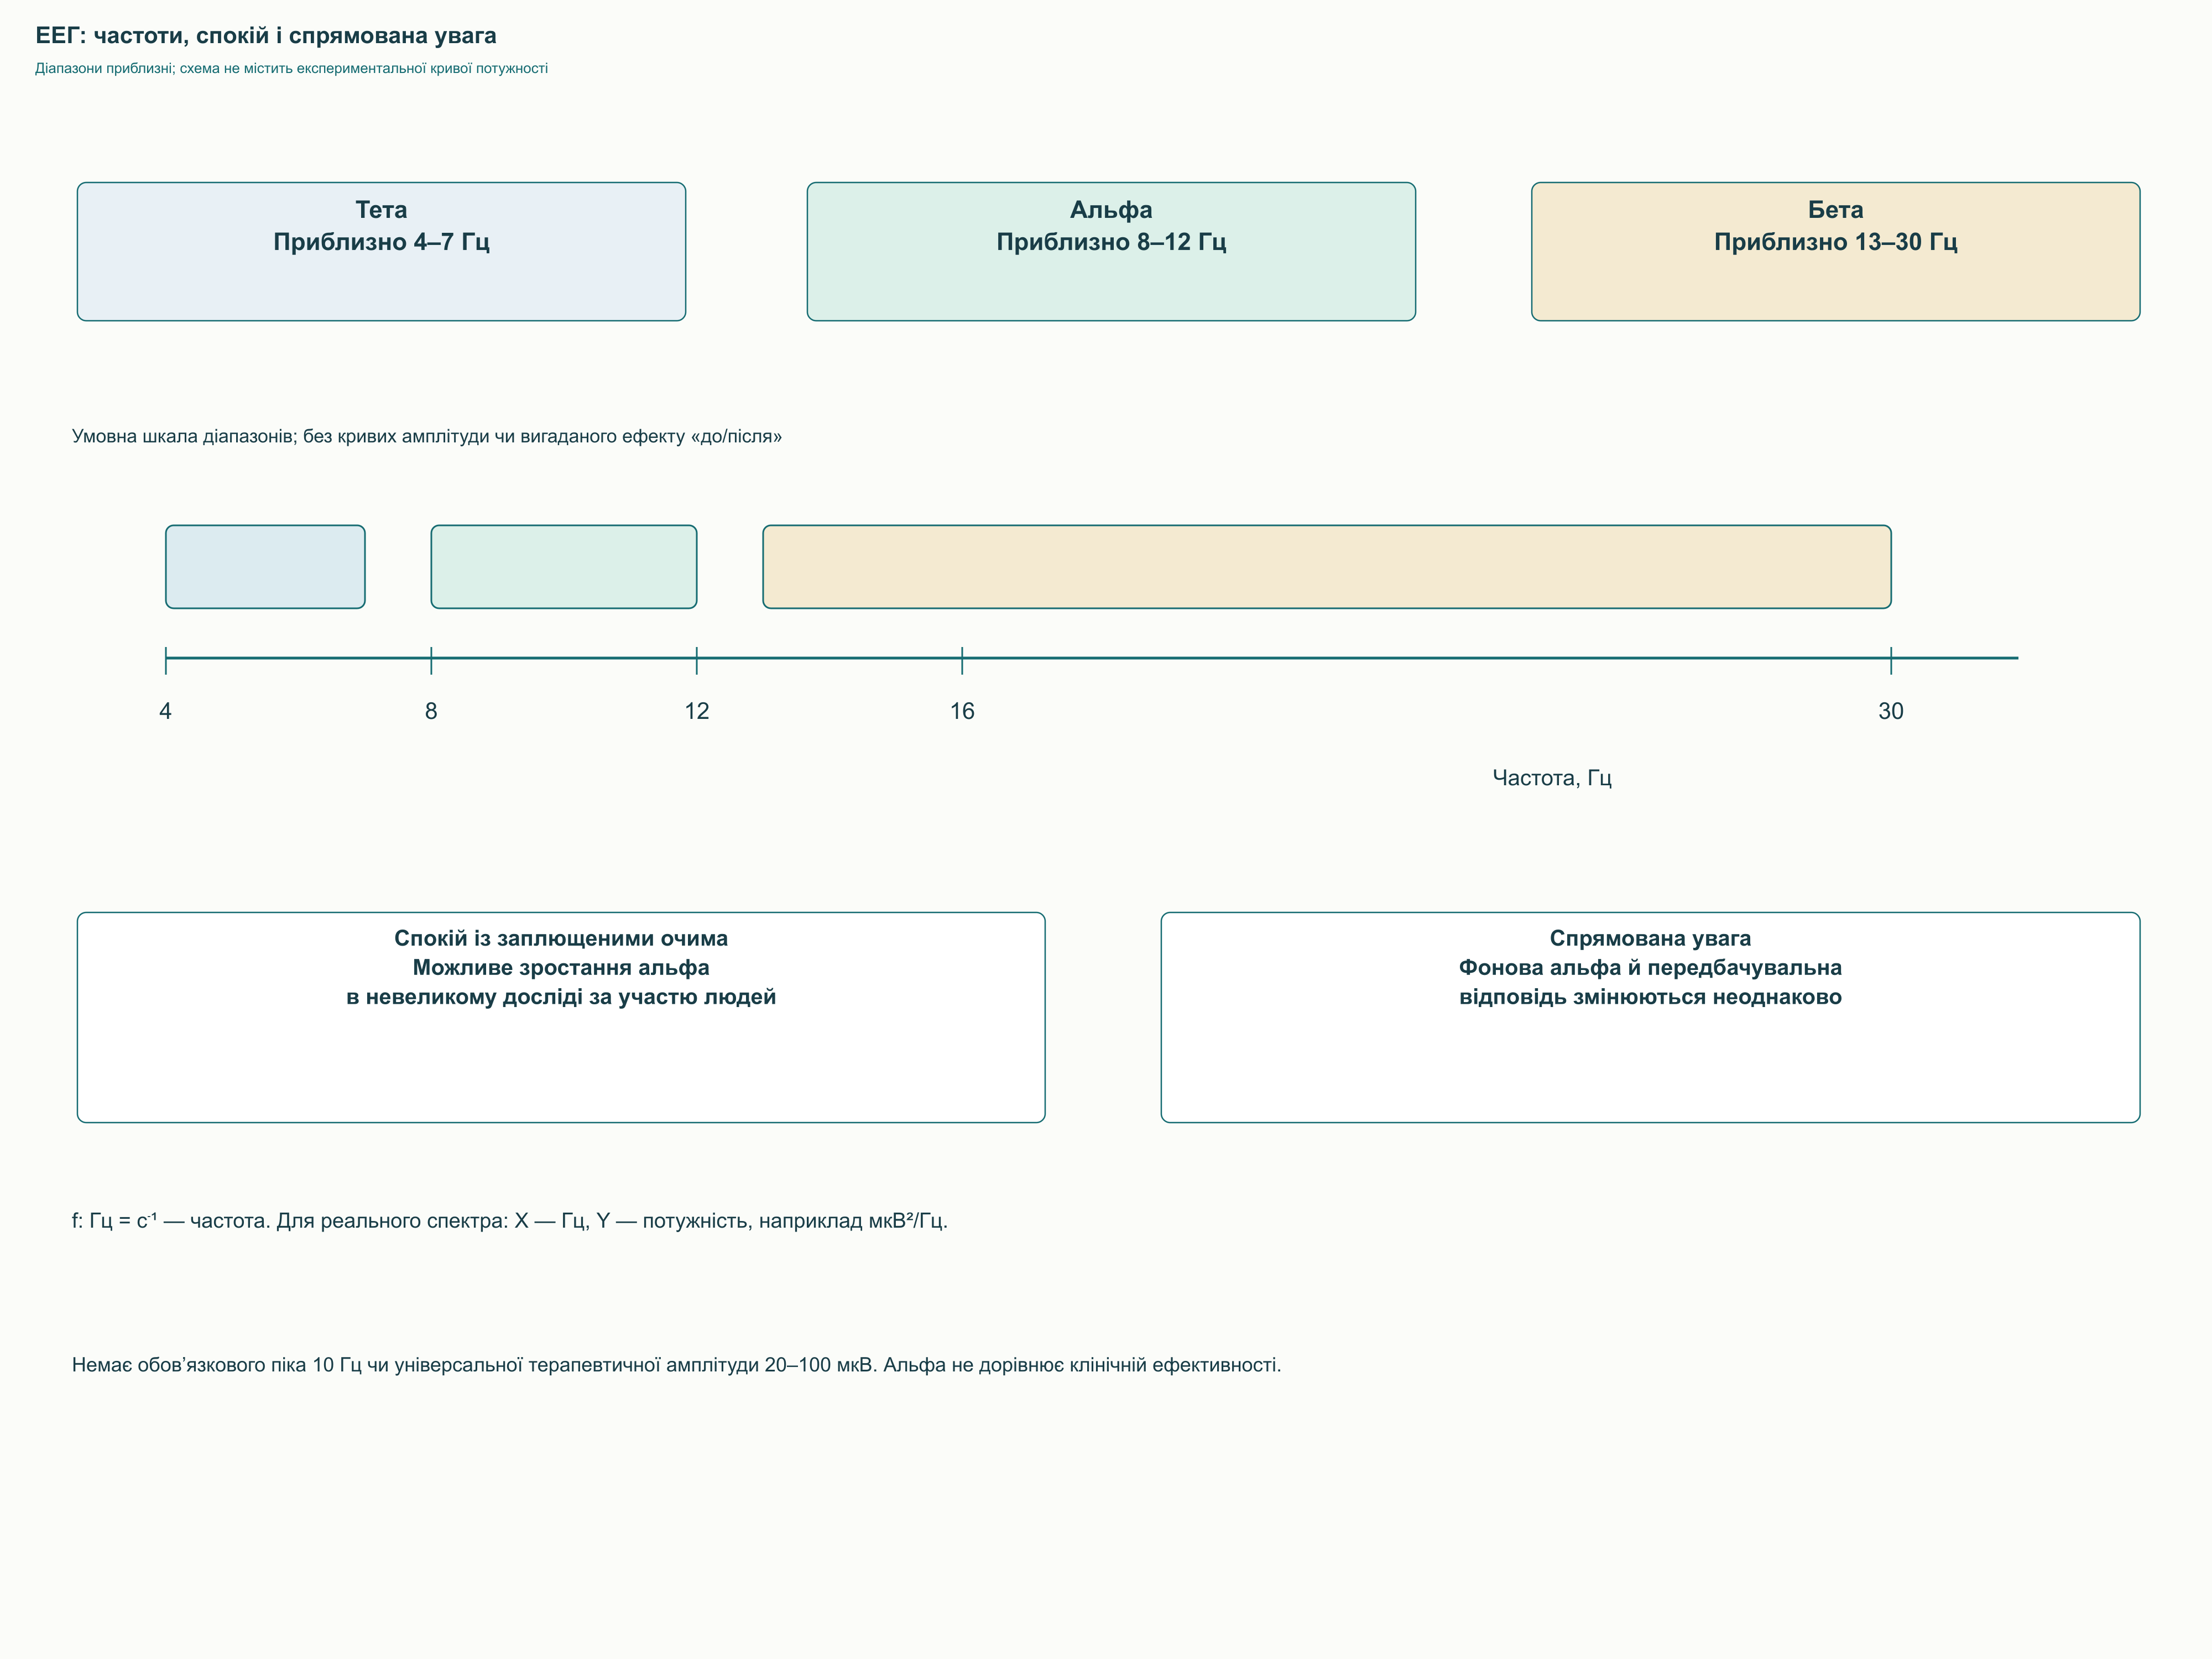
Спектральна потужність описує внесок коливань певної частоти у сигнал; це не частота піку, фаза чи зв’язок між ділянками. Тета приблизно 4–7 Гц і бета приблизно 13–30 Гц також не мають одного психологічного значення. Без первинних чисел спектр не має виглядати експериментальною кривою «до й після». Ілюстрація тому показує діапазони й відмінність спокою та завдання, не вигадане універсальне зростання піку після капсули.
У Kelly 100 мг теаніну й 50 мг кофеїну оцінювали окремо та разом у зорово-просторовій увазі. Комбінація збільшувала частку виявлених цілей і розрізнюваність d′ щодо плацебо; кофеїн окремо збільшував d′, теанін окремо не мав аналогічного ефекту. d′ враховує розрізнення сигналу й шуму, а не просто правильні натискання. Робота пов’язує фізіологію та поведінку, але не доводить універсального альфа-механізму будь-якого покращення уваги.
У концепції гальмівного гейтингу посилення альфа в певній ділянці може обмежувати обробку нерелевантної інформації. Зниження в іншій може супроводжувати її залучення до завдання. Це просторовий розподіл ресурсів, не рівномірне вимкнення кори. Для теаніну тлумачення має сенс тільки з конкретним ЕЕГ-дизайном і поведінкою.
Практично ЕЕГ не замінює результату навчання, професійної точності чи самопочуття. Навіть якісно виміряний ефект може бути невеликим, залежним від завдання й не переходити в побутову користь. І навпаки, відсутність загального зростання альфа не заперечує будь-яких змін уваги. Фахівцю варто наперед визначити потрібне людині покращення, а не підбирати мету до красивої фізіологічної картинки.
Психологічне навантаження змінює симпатичну й парасимпатичну регуляцію, пульс і судинний тонус. Але серцево-судинна відповідь визначається не тільки тривогою: впливають дихання, поза, сон, підготовка й завдання. У Kimura 12 молодих чоловіків отримували 200 мг теаніну чи контроль перед арифметикою в перехресному дизайні. Реакція пульсу та слинного імуноглобуліну A зменшувалася, але це не готовий профіль усіх автономних показників.
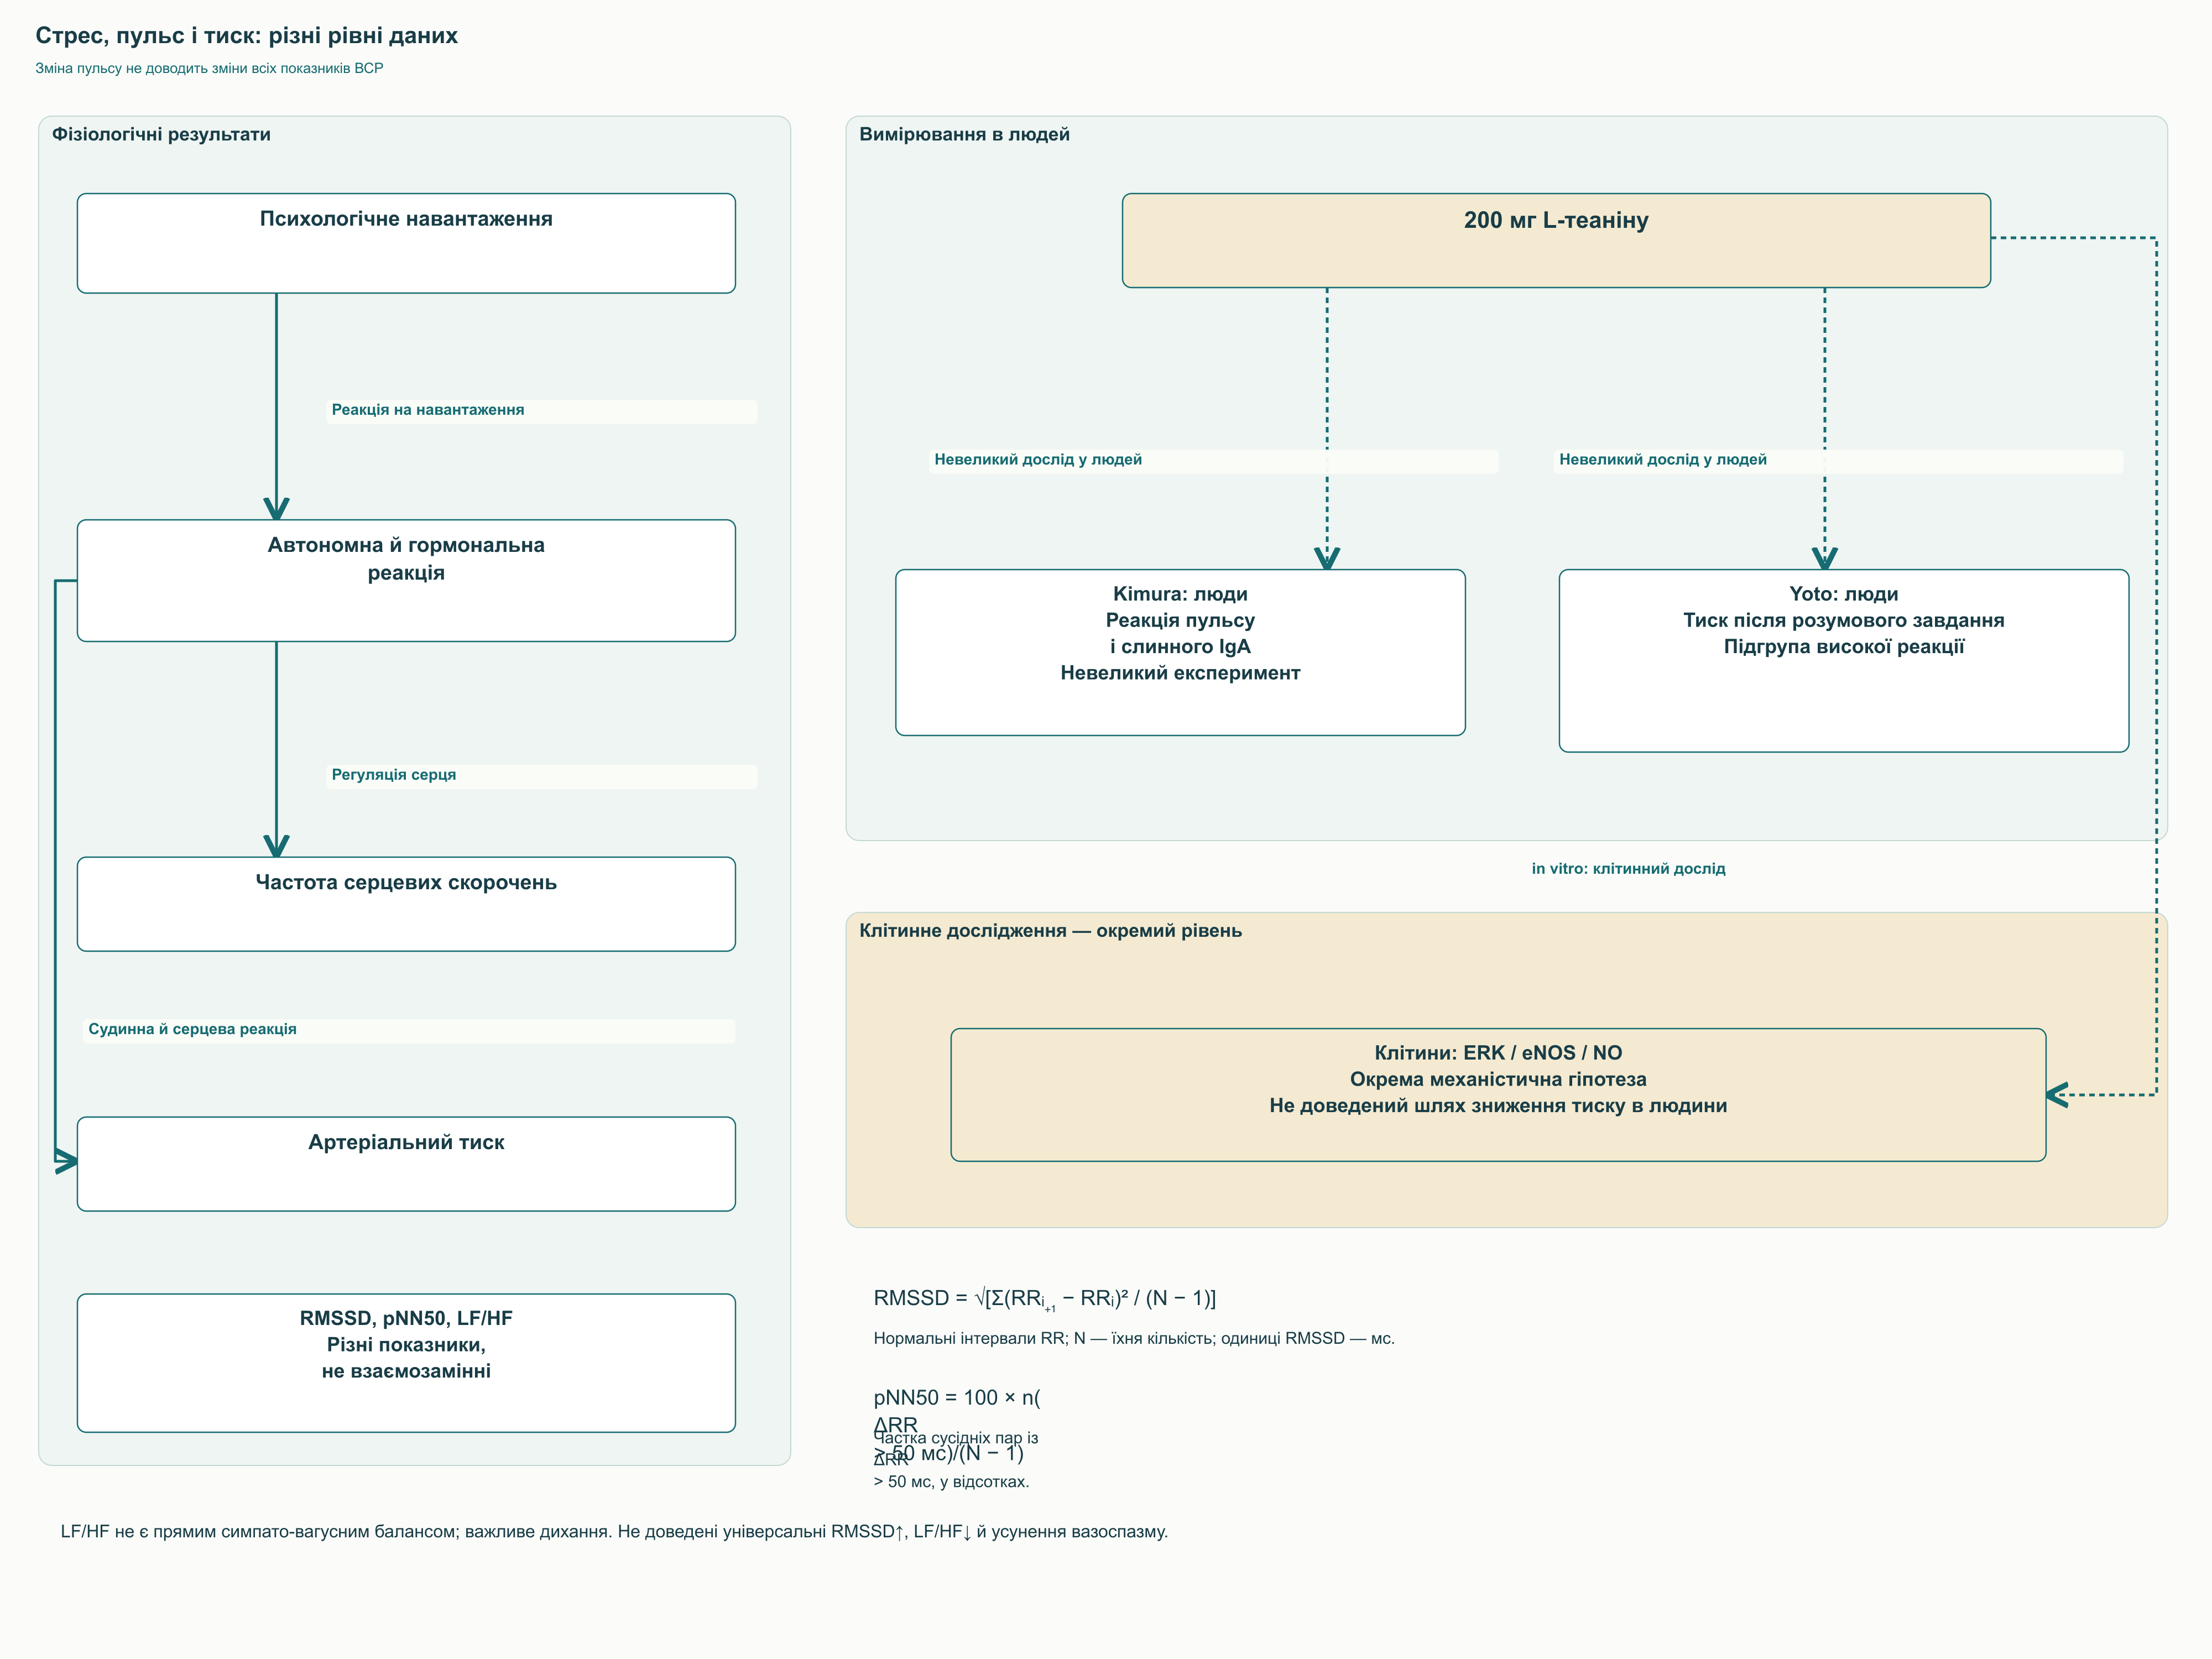
RMSSD обчислюють як √[Σ(RRᵢ₊₁ − RRᵢ)² / (N − 1)], де RR — інтервали між нормальними послідовними скороченнями, N — кількість інтервалів. pNN50 — відсоток сусідніх пар із різницею понад 50 мс. Вони характеризують певні властивості варіабельності, часто пов’язані з вагусною регуляцією, але залежать від запису й умов. Це не прямий вимір ГАМК, і їх не можна приписувати теаніну лише через зміну пульсу після завдання.
LF/HF потребує ще більшої обережності: низькочастотний компонент не є чистою симпатичною активністю, а високочастотний залежить від дихання. Зниження не доводить відновлення універсального «балансу ВНС». Потрібні тривалість запису, частотні діапазони, дихальні умови й визначений наперед результат. Порівнювати випадкові значення годинника, короткий лабораторний запис і добовий Холтер як один ефект добавки методологічно неправильно.
Yoto аналізували 14 людей, що по черзі отримували 200 мг теаніну, 100 мг кофеїну чи плацебо. Менший підйом тиску після розумових завдань був переважно в підгрупі з високою реакцією на плацебо, виділеній після досліду. Переконливого аналога за фізичного холодового навантаження не показали. Це невеликий стресовий дослід із підгрупами, не доказ лікування гіпертензії чи постійного зниження тиску.
Окреме пояснення — ендотеліальна NO-синтаза eNOS: NO може змінювати судинний тонус через гладком’язові сигнальні шляхи. У клітинній роботі теанін посилював NO, втручання в ERK/eNOS змінювали відповідь; у системі ex ovo досліджували судинну реакцію. Дизайн допомагає встановити причинні ланки моделі, але не величину людського зниження тиску. У клінічній схемі ERK → eNOS → NO слід відрізняти від виміряної реакції тиску на психологічне завдання.
За звичайних харчових доз центральну дію кофеїну пов’язують насамперед з антагонізмом аденозинових A₁ і A₂A-рецепторів. Аденозиновий сигнал регулює сон і неспання, тому блокада тимчасово зменшує сонливість. Пригнічення фосфодіестераз і масивне вивільнення внутрішньоклітинного кальцію потребують іншого концентраційного контексту й не мають бути головним поясненням чашки кави. Теанін — не хімічна протиотрута кофеїну й не усуває автоматично потреби у сні.
Чутливість залежить від звичного споживання, метаболізму, часу й вихідного стану. Варіанти ADORA2A можуть бути пов’язані з тривогою, але не визначають її силу для кожної людини. Пізня втома не доводить «виснаження нейромедіаторів»: причинами можуть бути недосип, коливання збудження й відміна звичного кофеїну. Теанін не дає підстав збільшувати кофеїн понад переносиму дозу чи замінювати відновлення стимуляцією.
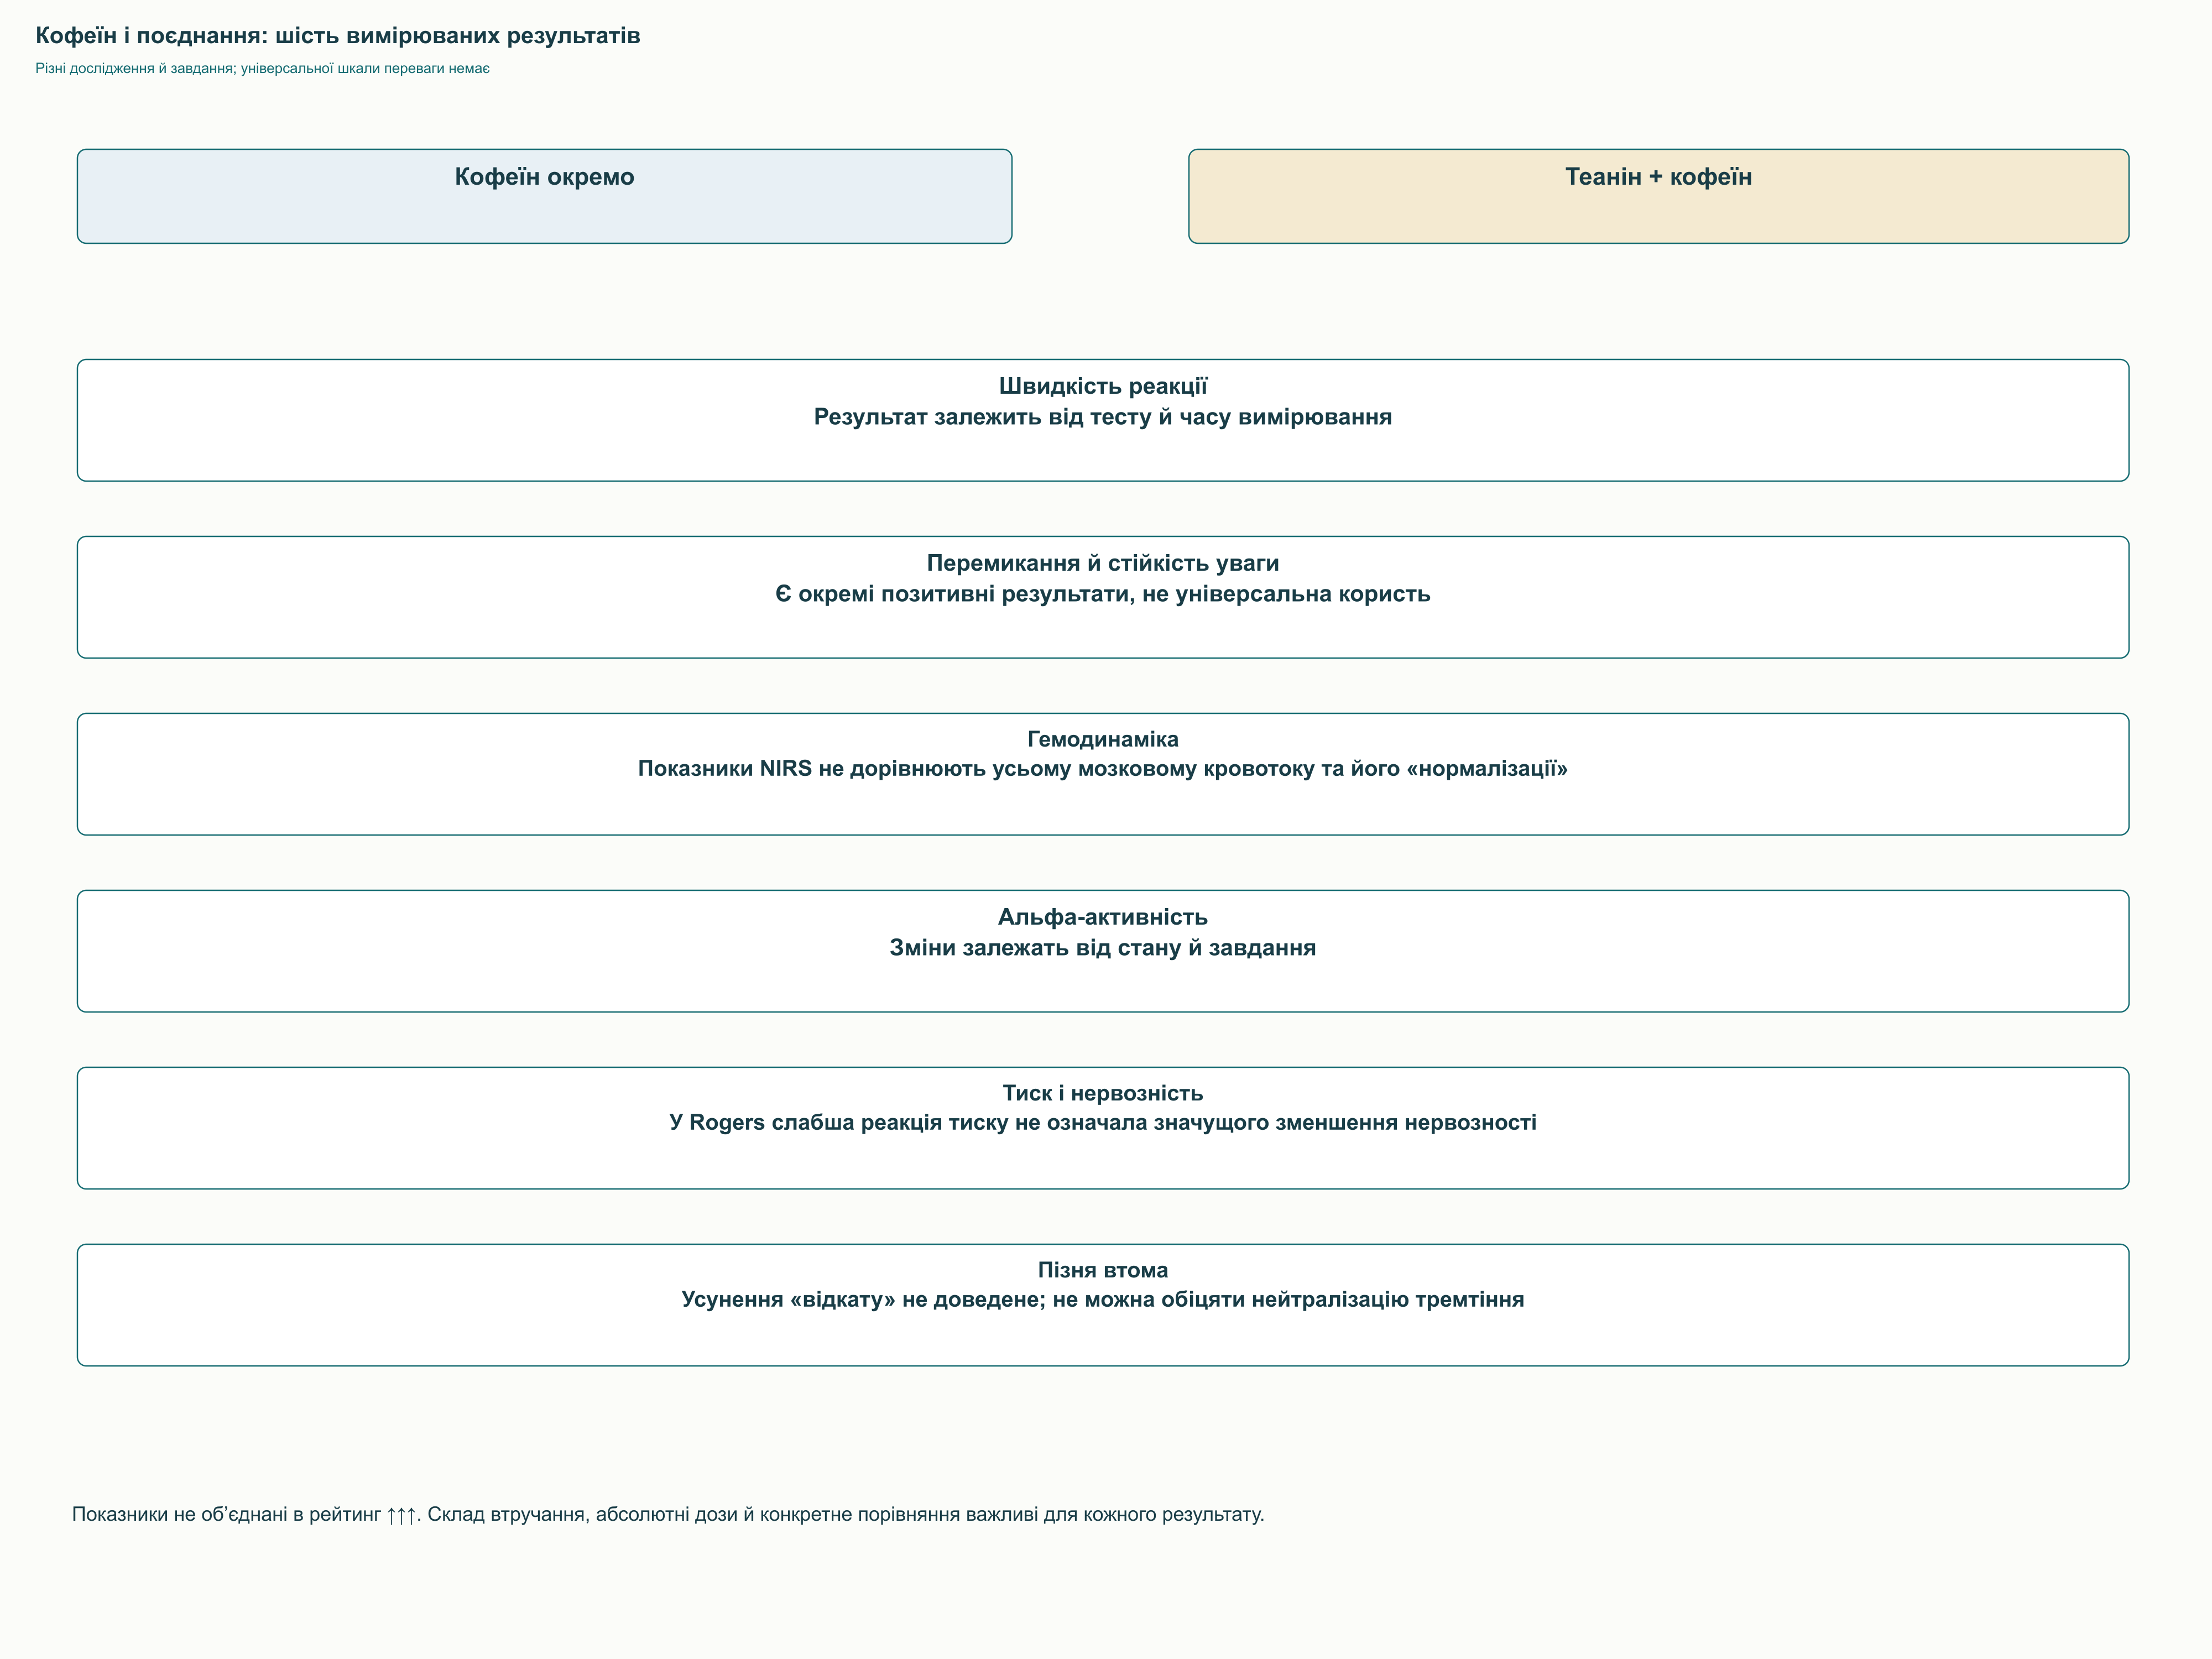
У перехресному Owen 27 здорових дорослих отримували 100 мг теаніну з 50 мг кофеїну, кофеїн окремо та плацебо. Комбінація покращувала окремі показники перемикання уваги й стійкості до відволікання у певні моменти через 60–90 хвилин. Дизайн корисний порівнянням із кофеїном, але не доводить однакового результату для всіх функцій. Тим більше він не досліджував 200 мг плюс 100 мг як оптимум для кожного.
Haskell вивчали 24 учасників із 250 мг теаніну, 150 мг кофеїну, поєднанням і плацебо в перехресному дизайні. Giesbrecht порівнювали напій із 97 мг теаніну й 40 мг кофеїну та плацебо у 44 молодих дорослих через 20 і 70 хвилин. У другому досліді покращилися точність перемикання та суб’єктивна бадьорість, але не всі тести, включно із зоровим пошуком, вибором реакції й уявним обертанням. Відсутність окремого кофеїнового контролю не дозволяє визначити внесок саме теаніну.
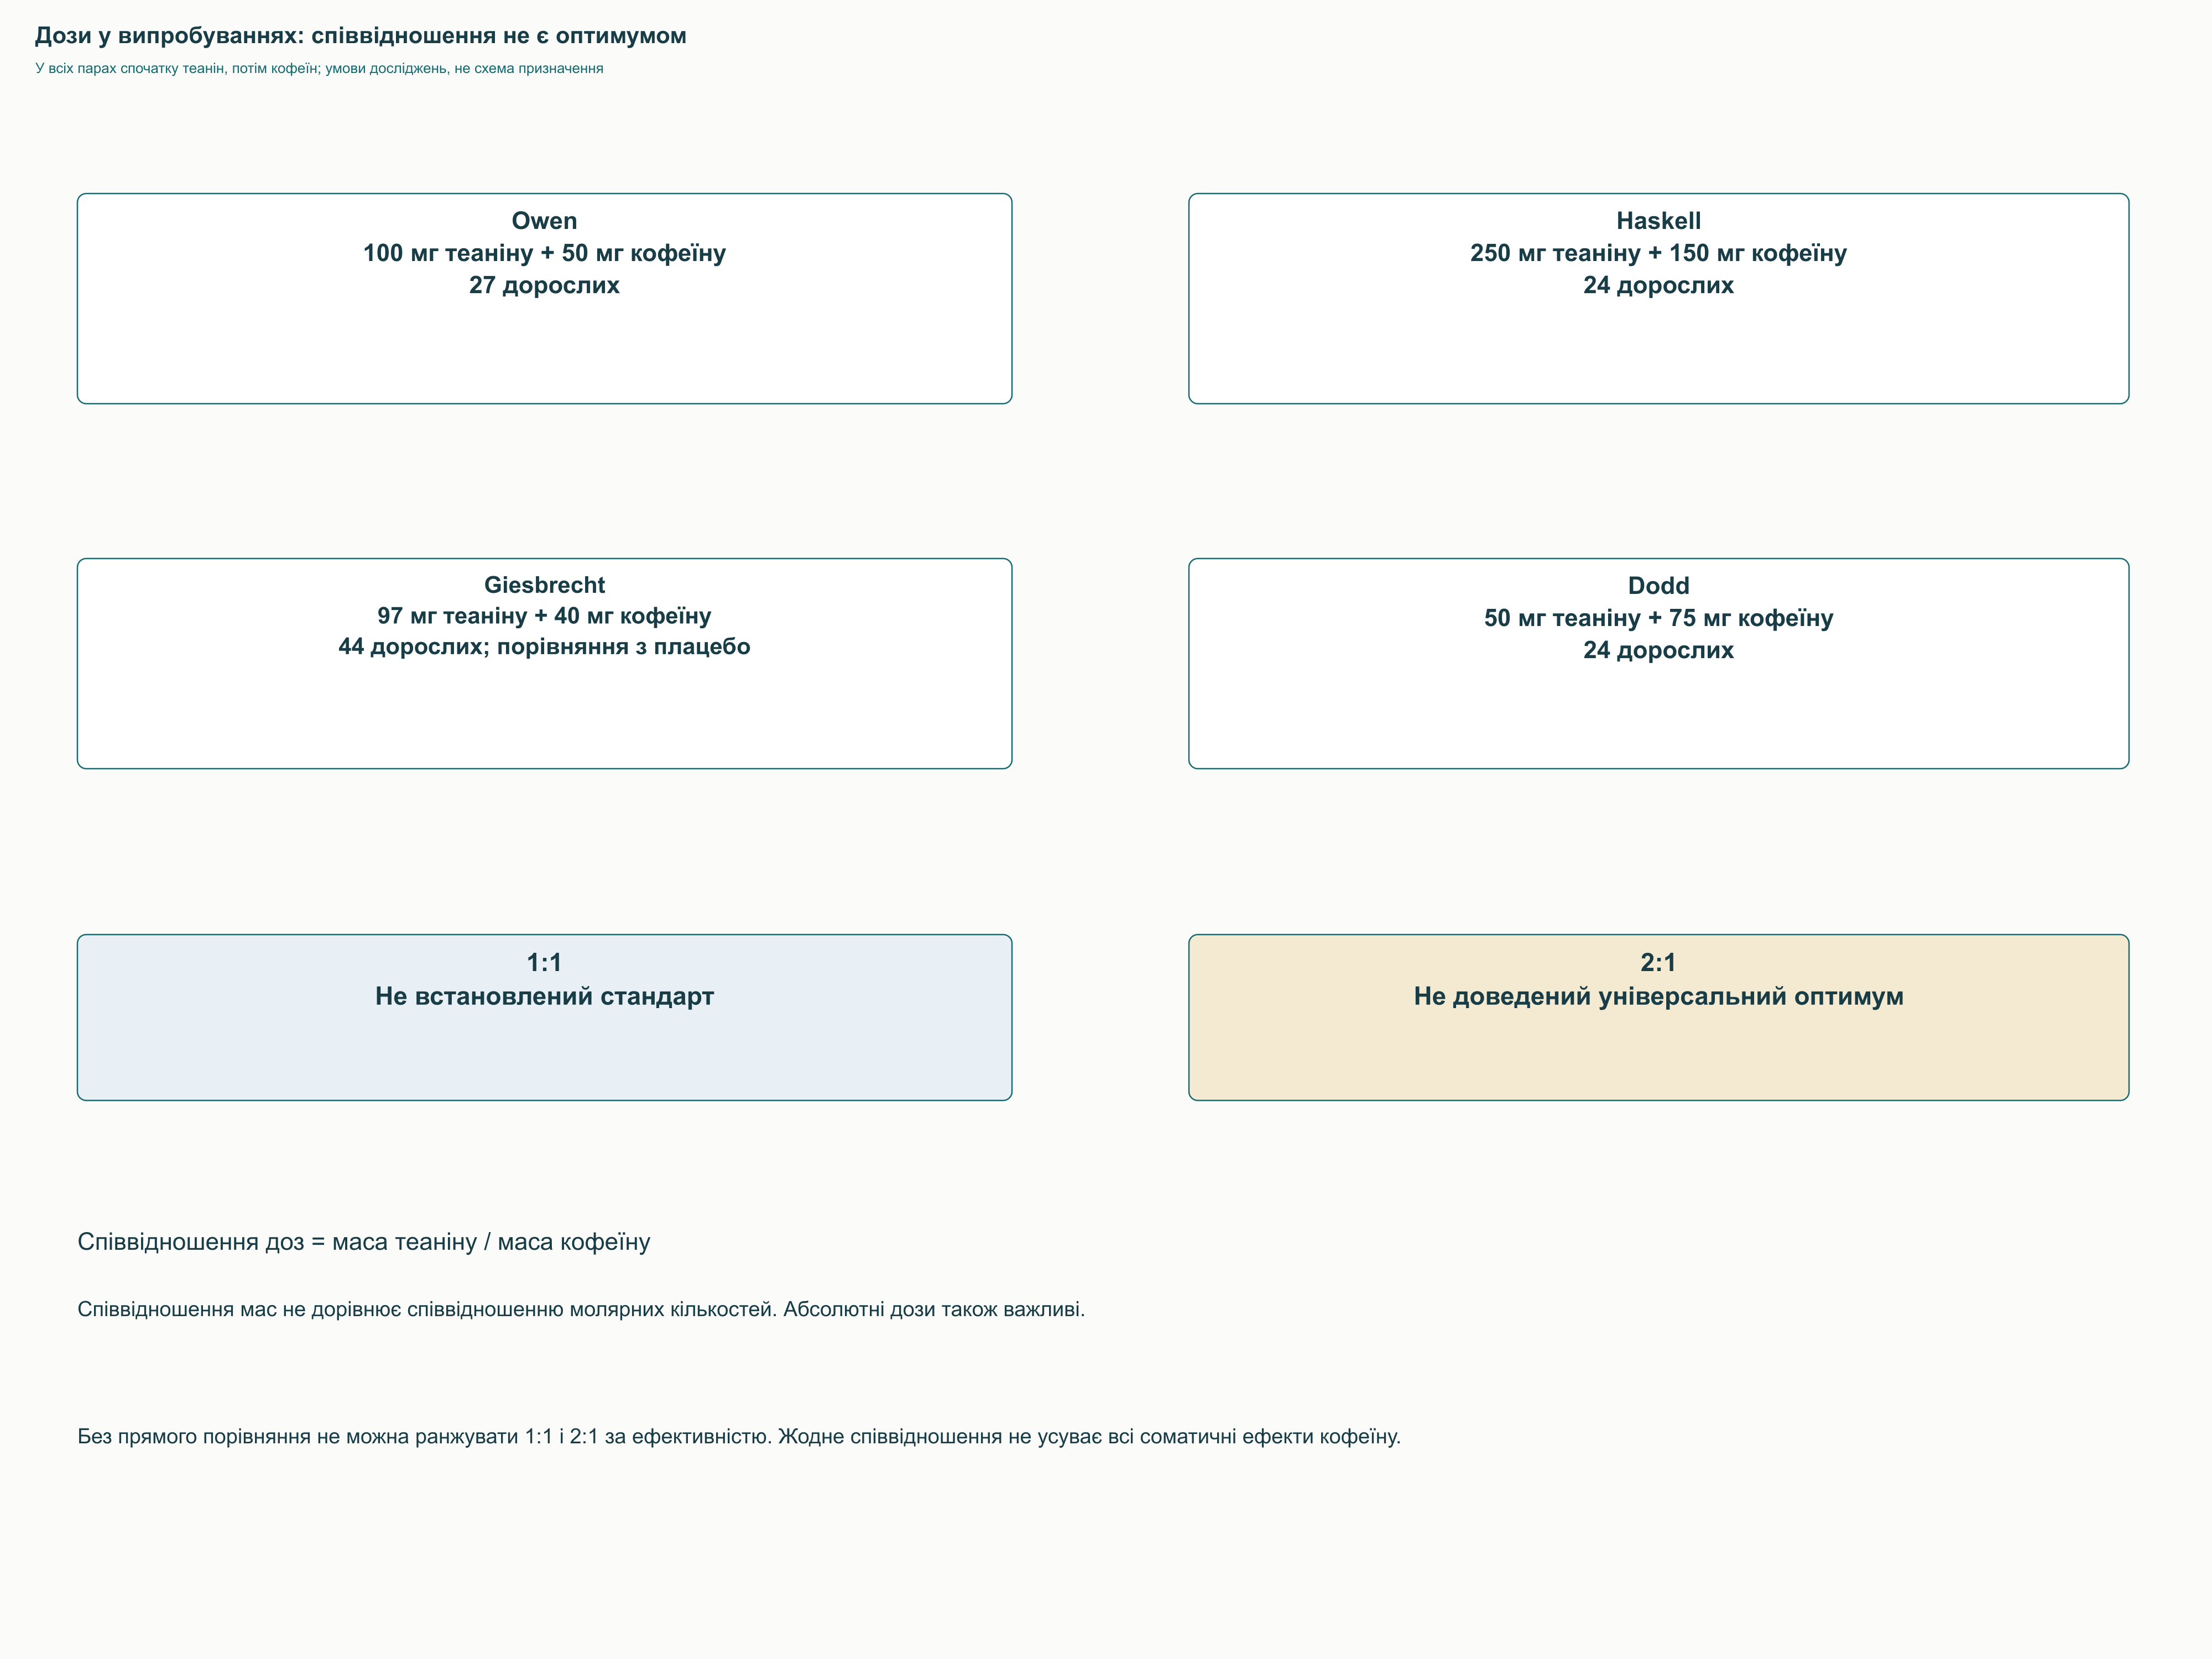
2:1 зручно описує продукт, але не є фізіологічною константою. У роботах були 100:50, 250:150, 97:40 і 50:75 мг із різним складом, дизайном та завданнями. Це не пряме змагання 1:1 проти 2:1: ефект залежить і від абсолютних доз. Повне усунення соматичної реакції за 200:100 мг потребує прямого випробування такого результату.
Тести вимірюють різне: перемикання — вартість зміни правила, RVIP — виявлення цільових послідовностей, Струп і Flanker — інтерференцію конфліктних стимулів. Більше правильних відповідей без урахування хибних тривог може бути зміною стратегії, не кращим гальмівним контролем. Один результат не переноситься на інше завдання й не доводить певного коркового гейтингу. Нормалізація d2 у дорослих із СДВГ за 200:100 мг недостатньо підтверджена розглянутими первинними роботами.
Ранні дані протидії кофеїну включали ЕЕГ щурів із внутрішньовенним введенням, де відповідь залежала від дози теаніну. Це інша модель, не інструкція людського перорального співвідношення мас. Однакова молярна кількість і маса різняться через різні молярні маси. Дослід підтримує вивчення взаємодії, але не доводить усунення людської тривоги чи наступної втоми.
У Dodd 24 людини, порівну звичні й незвичні споживачі кофеїну, отримували 75 мг кофеїну, 50 мг теаніну, поєднання чи плацебо. Вивчали оксигенований і деоксигенований гемоглобін ближньою інфрачервоною спектроскопією, увагу та настрій. Теанін змінював частину гемодинаміки, але водночас усував деякі корисні поведінкові ефекти кофеїну. Тому послаблення судинного показника не означає універсального покращення роботи мозку.
Ближня інфрачервона спектроскопія відображає локальний гемоглобін і обмежена щодо глибини та джерела сигналу. Це не просте число «кровопостачання всього мозку нормалізоване», а судинна відповідь не дорівнює якості виконання. Схема має відділяти гемодинамічний показник від поведінкового. Саме розбіжність корисна для тлумачення, а не є незручним винятком для пропуску.
У Rogers 48 здорових дорослих отримували 250 мг кофеїну, 200 мг теаніну, обидві речовини чи контроль. Теанін зменшував кофеїновий підйом тиску, але не значуще нервозність, бадьорість чи інші аспекти настрою. Це суттєва межа обіцянки «зняти тремтіння і тривогу від кави». За неприємної реакції перший крок — переглянути стимулятор, не покладатися на захист іншої капсули.
Коротке лабораторне завдання вимірює реакцію на навантаження, але не відтворює всіх проявів тривожного розладу. Kimura й Yoto досліджували арифметичні та сенсорні завдання, не доведене вилікування тривоги. Пульс, тиск, слинні маркери та анкети можуть змінюватися незалежно. Тому вигадані відсотки зростання кортизолу й пульсу в «тесті Тріра» не ілюструють цих робіт.
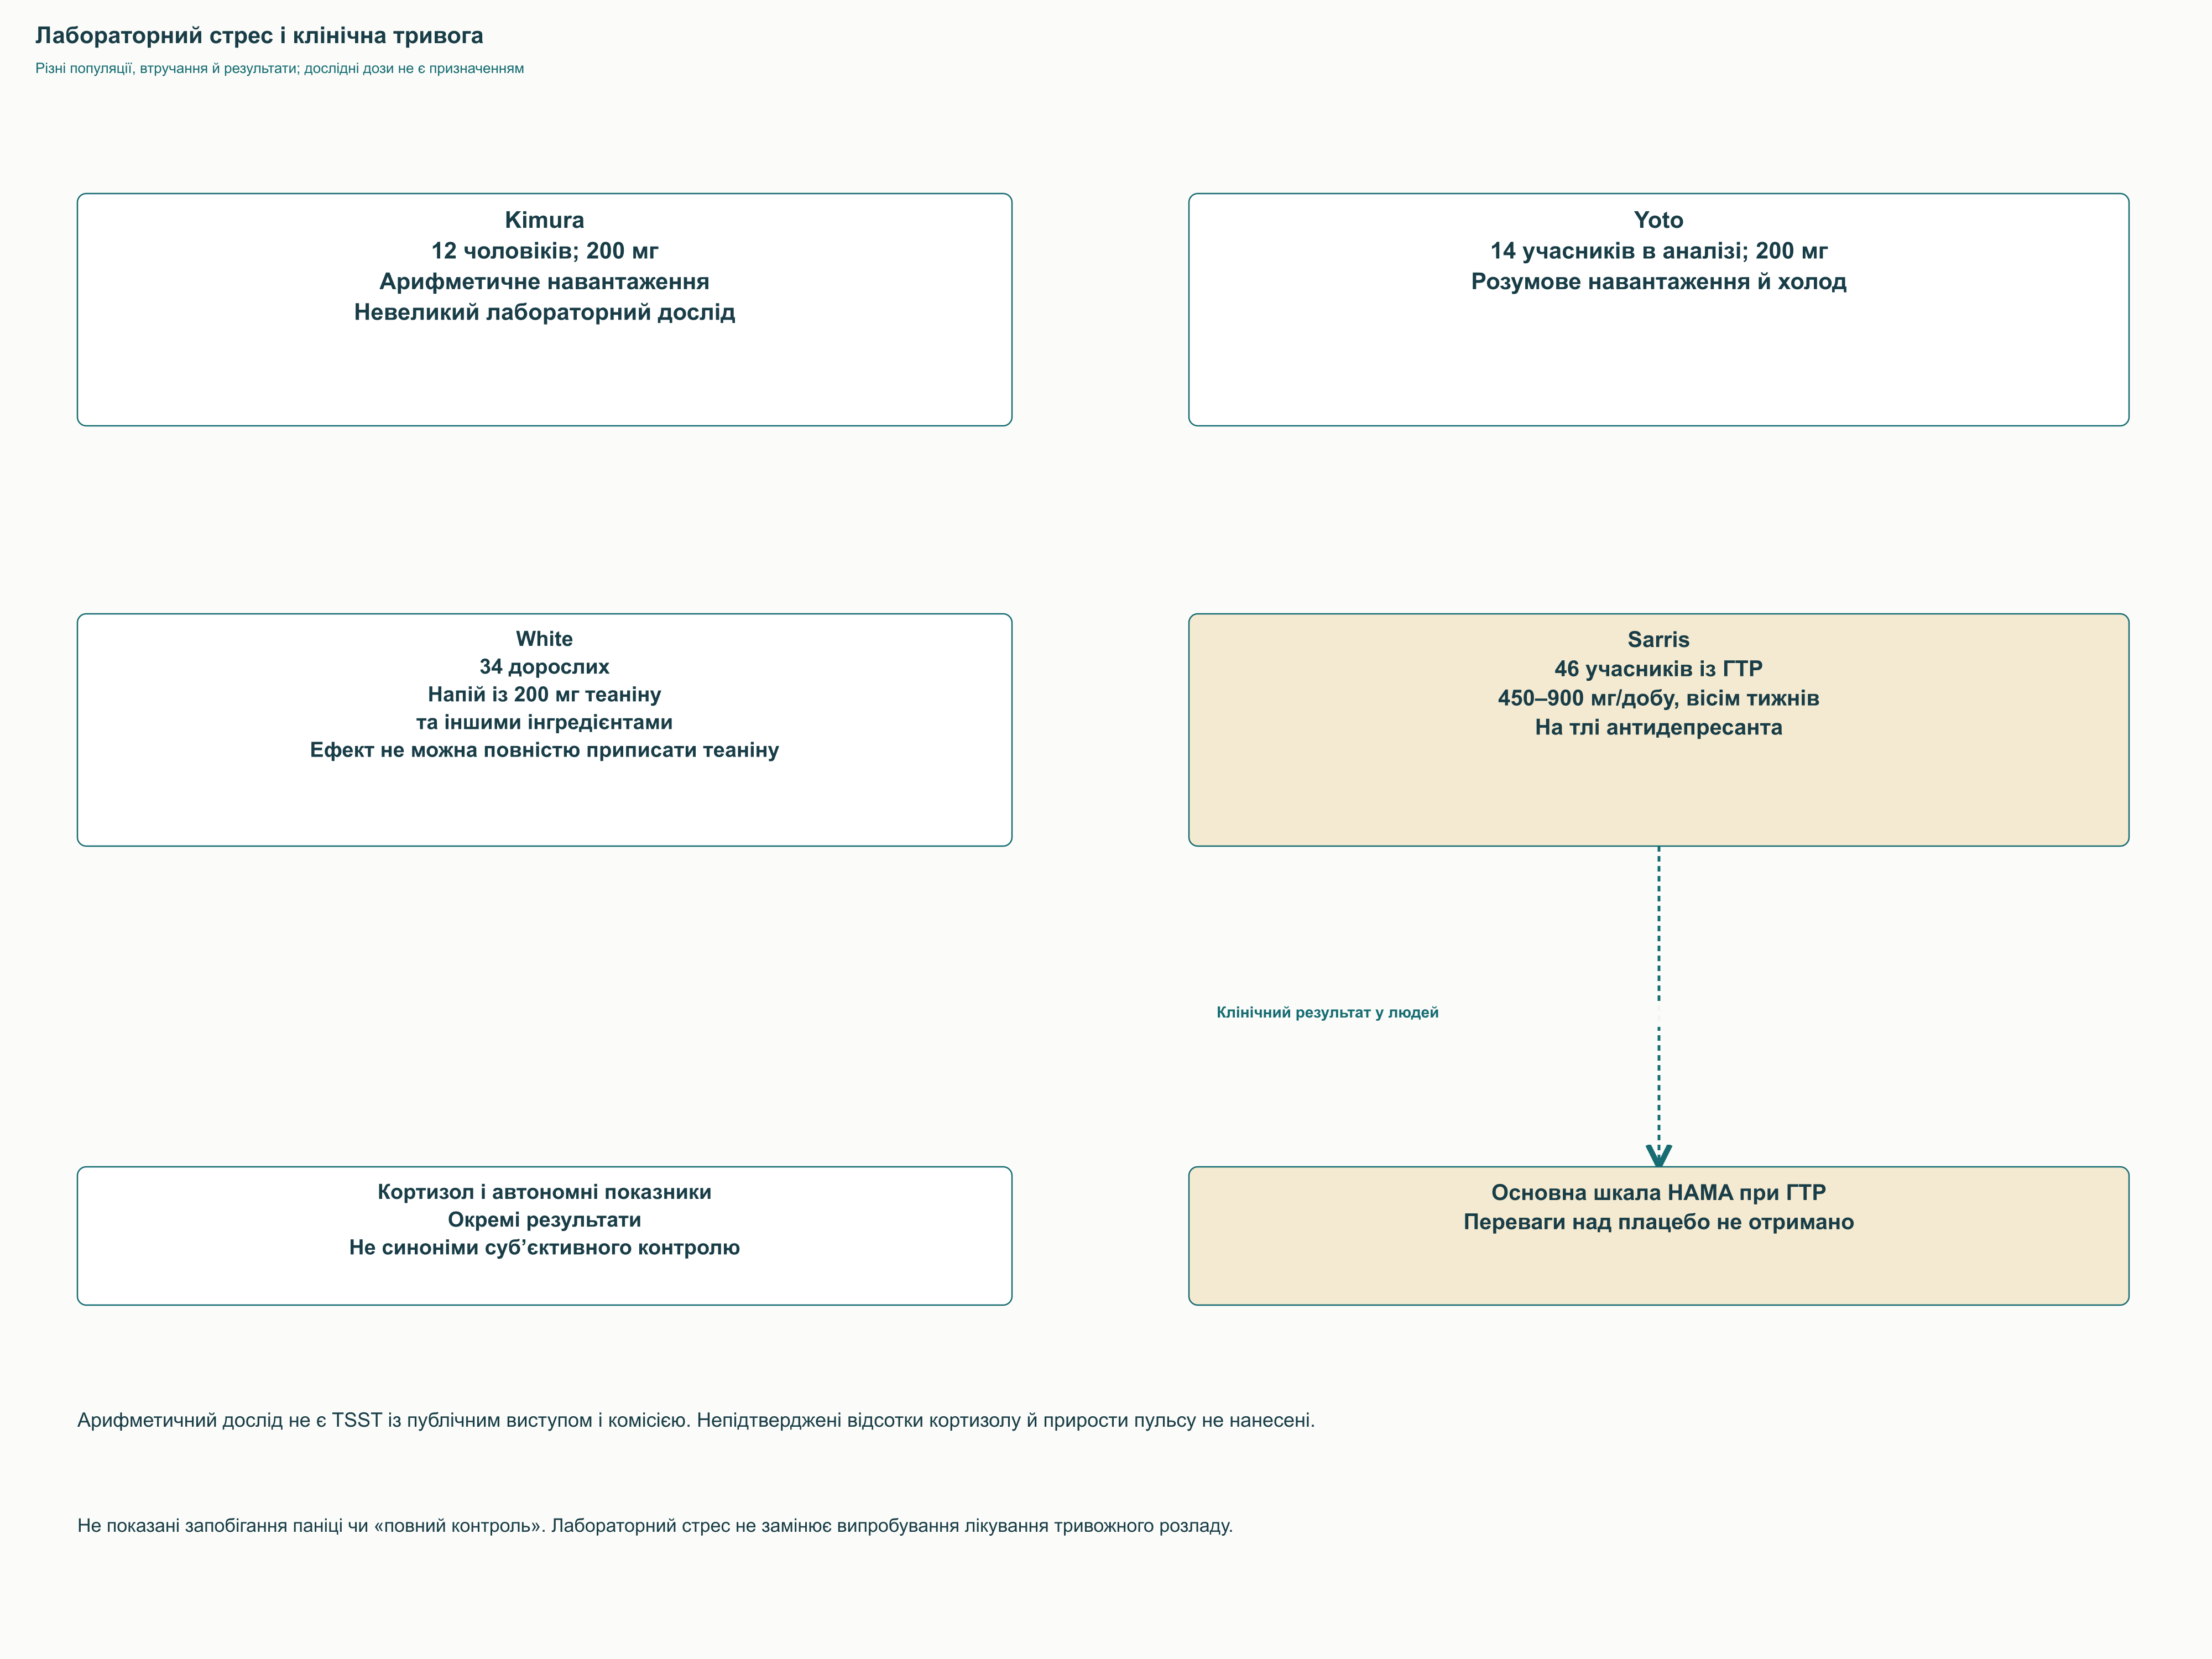
Вісь гіпоталамус — гіпофіз — наднирники пов’язує центральну оцінку навантаження із секрецією кортизолу, на вимірювання якого впливають час доби та попередній стан. У White 34 дорослих отримували напій із 200 мг теаніну та іншими компонентами; суб’єктивна реакція на багатозадачність зменшувалася через годину, кортизолова — через три. Через фосфатидилсерин, α-GPC та ромашку весь ефект не можна приписати теаніну. Альфа-зміни не корелювали зі стресом чи кортизолом, додатково обмежуючи простий причинний ланцюг.
Unno розподілили 20 студентів у теанінову й плацебо-групи в однобічно сліпому дизайні під час аптечної практики. Використовували 200 мг двічі на день від тижня до практики й у перші десять днів. Учасники повідомляли менше стресу, ранкова слинна α-амілаза була нижчою, ніж із плацебо. Побутовий контекст доповнює лабораторію, але мала вибірка й неповне засліплення обмежують перенесення на інші групи.
У Hidese 30 дорослих без великого психіатричного захворювання отримували 200 мг щодня чотири тижні й плацебо перехресно. Деякі показники покращилися проти початку теанінового періоду, але внутрішньогрупова зміна не тотожна перевазі перед плацебо. Загальні депресивні та PSQI-бали між умовами не досягли прийнятої значущості: p = 0,084 та p = 0,073. Окремі компоненти й підгрупи варті подальшого вивчення, але не підтверджують широкого антидепресивного чи протитривожного ефекту.
Sarris досліджували інше питання: 46 людей із генералізованим тривожним розладом отримували 450–900 мг щодня чи плацебо за стабільних антидепресантів. За вісім тижнів подвійно сліпого етапу переваги за HAMA не було, p = 0,73, також за загальним ISI, p = 0,35. Деякі вторинні оцінки задоволеності сном виглядали кращими, проте головні результати лишалися негативними. Отже, більша доза не підтвердила надійного лікування тривоги в цій популяції.
Різниця допомагає правильно визначити клінічну мету. Напруження здорової людини, діагностований розлад і порушення сну під час лікування потребують різних результатів та строків. За стійкого симптому, що заважає роботі чи супроводжується значним погіршенням настрою, добавка не замінює діагностики. Фахівцеві корисніше врахувати конкретний негативний результат, ніж називати все «стресом».
Lyon включали 98 хлопчиків 8–12 років із установленим СДВГ. Шість тижнів застосовували 400 мг щодня — 200 мг за сніданком і після школи — або плацебо. Сон оцінювали за п’ятьма ночами актиграфії до й після; покращилися окремі показники частки та ефективності сну. Засинання не змінилося, а зменшення неспання після засинання було лише статистично незначущою тенденцією.
Актиграфія переважно оцінює рух і не визначає N1, N2, N3 та REM з точністю полісомнографії. Тому вона не підтверджує довшого глибокого сну чи впорядкування сновидінь. Робота також не доводить лікування основних симптомів СДВГ і не поширюється автоматично на дівчаток, дорослих та всі віки. Доза описує дослідницьке втручання, не є самостійною дитячою рекомендацією.
За дитячого порушення сну важливі режим, супутні стани й час дії призначених стимуляторів. Зміна ліків або додавання кількох речовин ускладнює визначення користі та небажаної реакції. Участь дітей зі стимуляторами не доводить нейтралізації тахікардії, тиків чи тривоги від будь-якого препарату. Ці окремі результати потребують прямого дослідження.
Нічний сон має повторні цикли з неспанням, N1, N2, N3 та REM, співвідношення яких змінюється з віком і умовами. Полісомнографія використовує ЕЕГ, рухи очей і тонус м’язів, а анкета відображає сприйняття. Sleep onset latency — час засинання, WASO — сумарне неспання після засинання, ефективність — частка сну в належному інтервалі часу в ліжку. Ці показники не слід підмінювати «відновленням мозку».
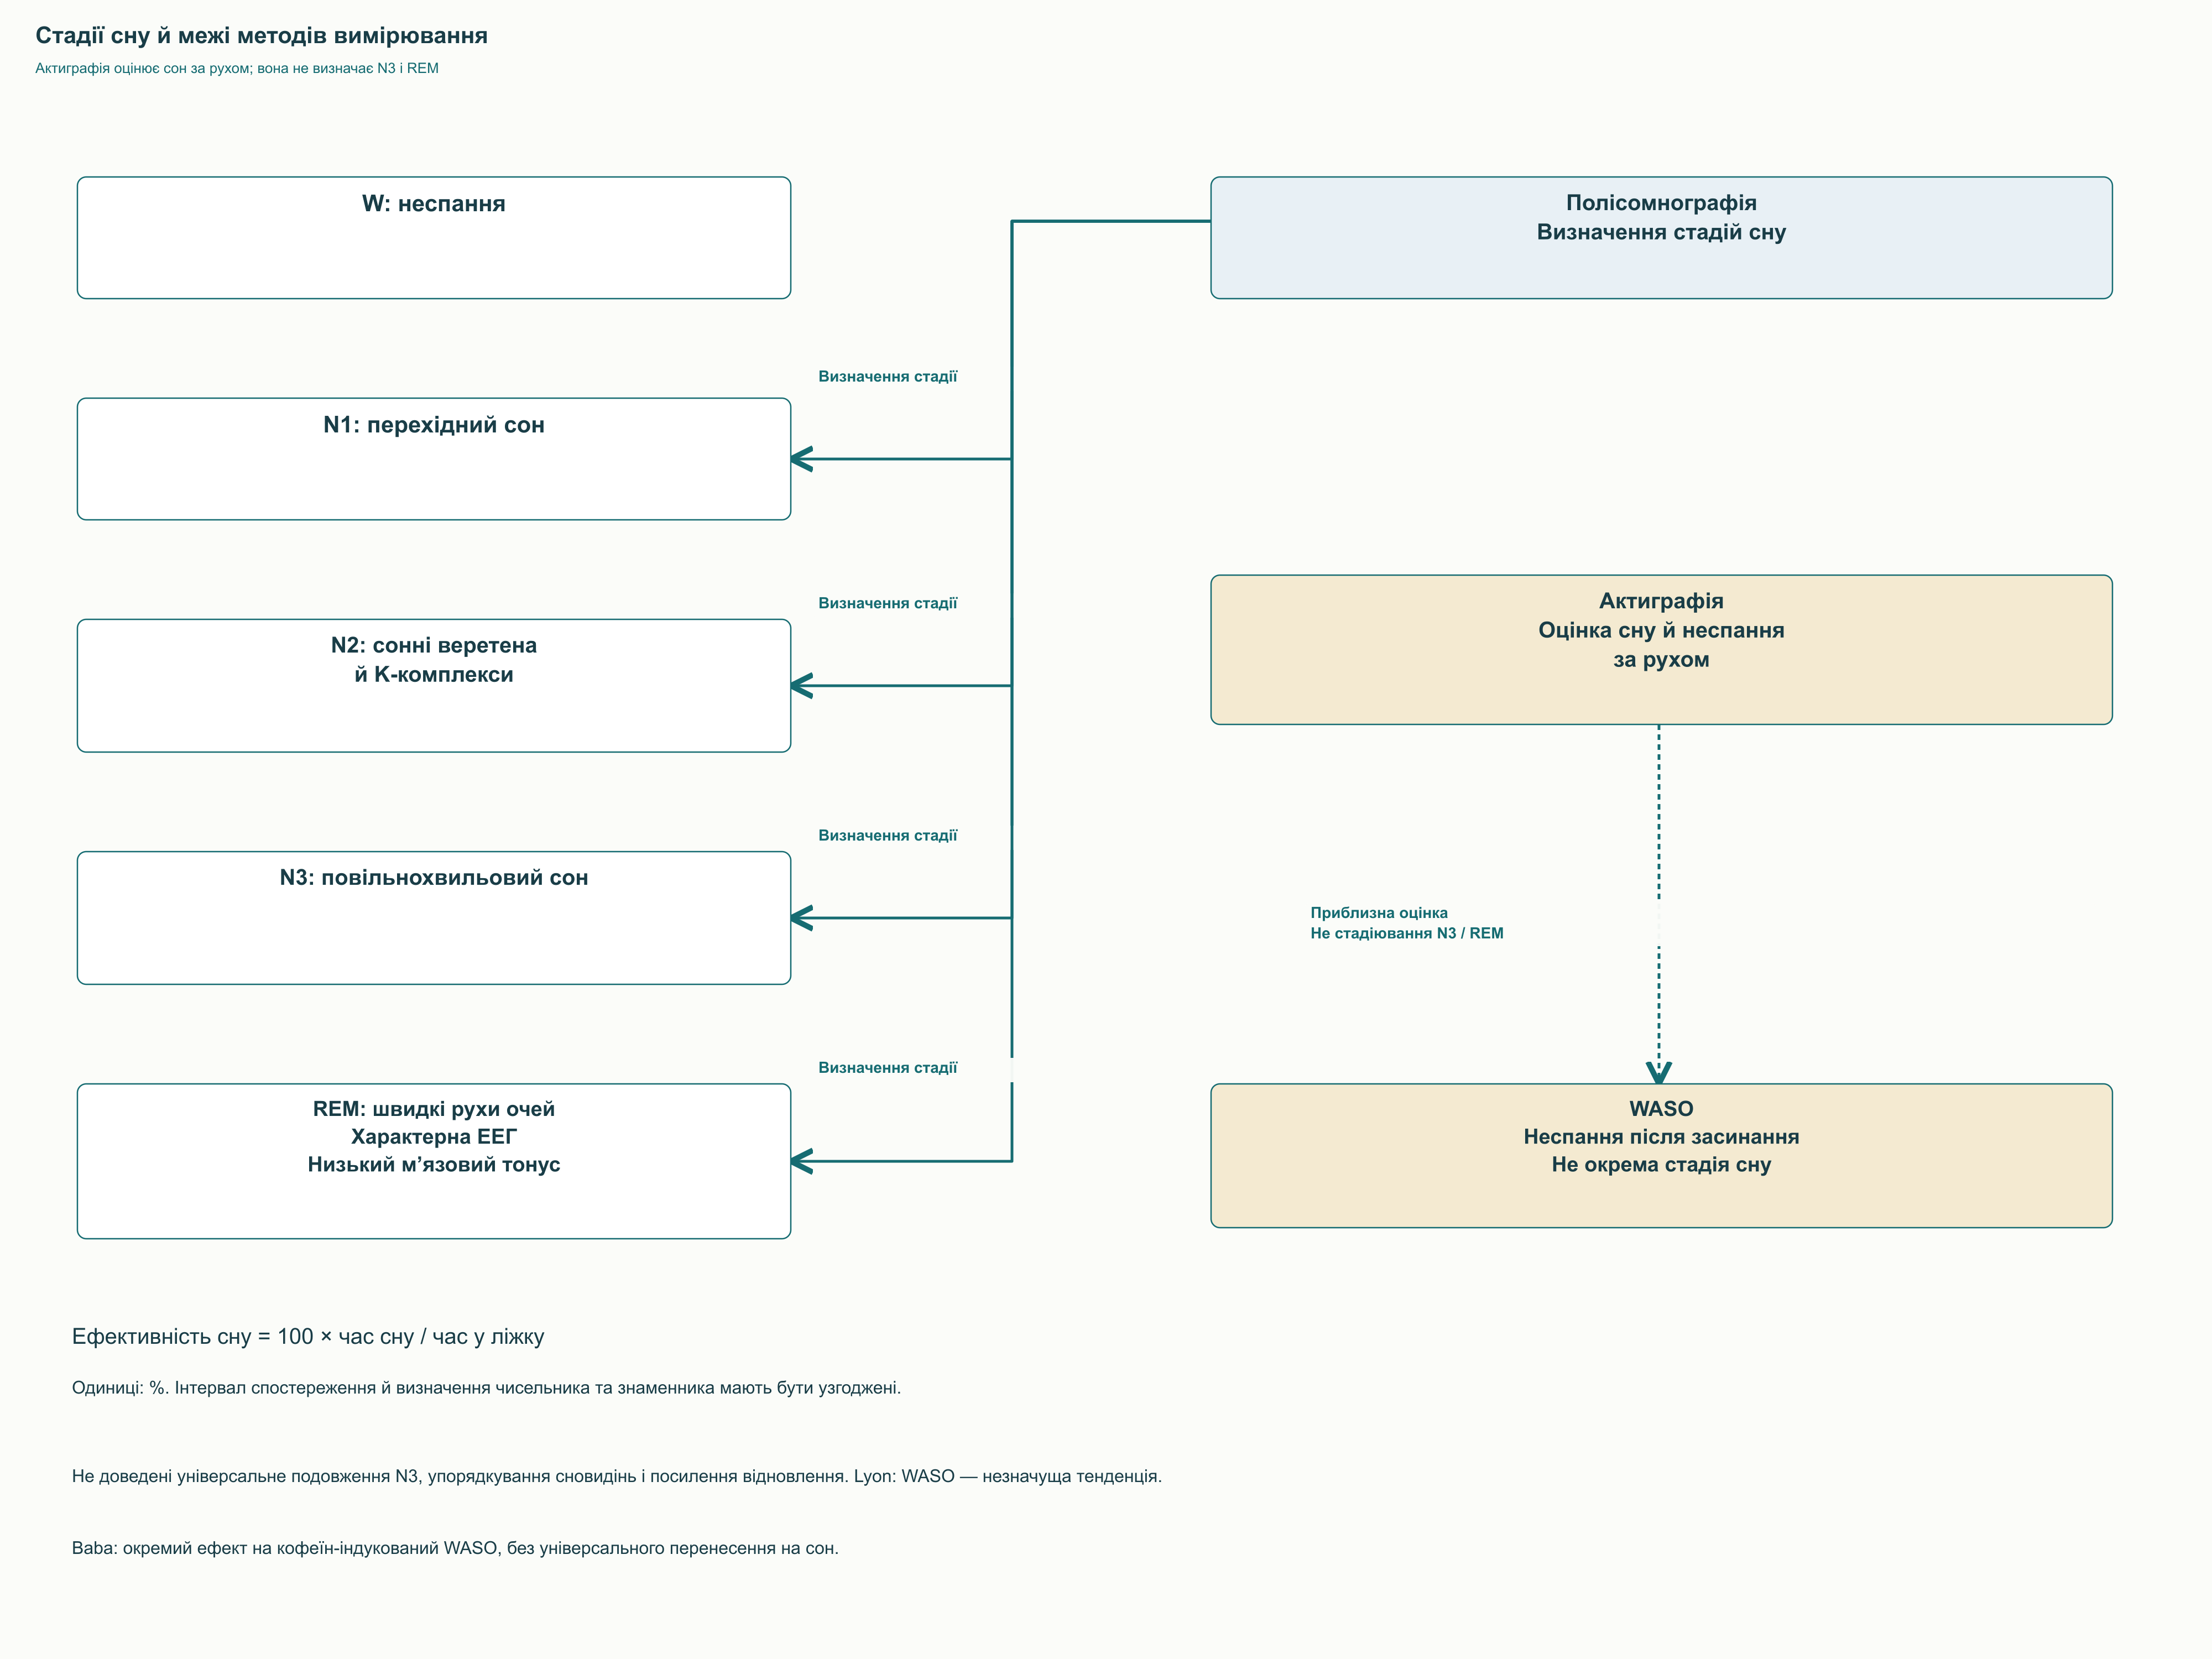
Теанін не має доведеного класичного агонізму бензодіазепінової ділянки GABA-A. Але це не гарантує відсутності сонливості, впливу на REM або ранкової загальмованості для всіх людей і поєднань. Невеликі роботи допускають окрему суб’єктивну чи актиграфічну користь, не встановлену перебудову з довшим N3 після 200–400 мг. Хронічне безсоння потребує оцінки причин та втручань із доведеним клінічним ефектом.
Є й окреме дослідження з кофеїном: у перехресному Baba 2023 року здорові молоді жінки отримували 50 мг теаніну, 30 мг кофеїну, комбінацію чи плацебо. Стадії визначали ЕЕГ; кофеїн збільшував WASO, а комбінація не відрізнялася від плацебо за цим показником. Засинання й кількість пробуджень значуще не змінювалися. Це конкретний результат малої кофеїнової дози, не загальний захист від вечірньої кави чи гарантовано довший N3.
Сон особливо важко тлумачити за одночасного додавання теаніну, магнію, апігеніну та зміни кофеїну. Комбінація може суб’єктивно допомагати, але не є підтвердженим «протоколом глибокого сну» з дослідів ізольованого теаніну. Пізній кофеїн також діє довше, ніж помітна плазмова концентрація теаніну. Відсутність вечірнього неприємного збудження не гарантує нормального сну.
Опубліковані дози співвідносять із завданням, формою й популяцією, не об’єднують в універсальну терапевтичну таблицю. Одноразові 200 мг перед арифметикою, чотири тижні вечірніх 200 мг і шість дитячих тижнів 400 мг щодня відповідають на різні питання. Дорослому, що обговорює пробний прийом, важливіше визначити результат і перегляд, ніж нескінченно збільшувати дозу. Відсутність помітної користі не доводить потреби іншого «стека» чи складнішої схеми.
| Завдання | Приклад дослідженого втручання | Практична межа |
|---|---|---|
| Короткий стрес | 200 мг одноразово в малих лабораторних дослідах | Не підтверджене лікування тривожного розладу |
| Окремі тести уваги | Теанін із кофеїном у різних дозових поєднаннях | Немає встановленого оптимуму 2:1 |
| Суб’єктивні симптоми й сон дорослих | 200 мг/добу чотири тижні у Hidese | Міжгруповий результат залежить від показника |
| Сон хлопчиків із СДВГ | 400 мг/добу шість тижнів у Lyon | Не загальна дитяча рекомендація чи доказ лікування СДВГ |
| Генералізована тривога на тлі терапії | 450–900 мг/добу вісім тижнів у Sarris | Без переваги за основною шкалою |
Потрібно знати кількість у капсулі, стереохімічну форму й додаткові компоненти. З напоями враховують увесь добовий кофеїн, не лише одну таблетку. Назва фірмового інгредієнта показує походження, але не робить усі дослідження незалежними чи всі дози рівноефективними. Частину робіт фінансували виробники або харчові організації, що слід врахувати поряд із дизайном і повнотою результатів.
Конкуренція амінокислот за транспорт — реальна фізіологічна можливість. Проте немає надійної людської опори для зменшення мозкової концентрації білковою їжею на 40–60% чи затримки клінічного ефекту на 2–3 години. Плазмовий пік не можна підмінювати проникненням у людський мозок, якого прямо не вимірювали. Тому суворі «15–30 хвилин до їжі або дві години після» не є встановленим стандартом.
Залежність переносимості від їжі — окреме практичне питання. За неприємних відчуттів прийом натщесерце заради теоретичної конкуренції може бути менш зручним, ніж із їжею. Сталі умови особистого спостереження допомагають не змішувати сон, харчування й кофеїн. Але такий досвід не вимірює LAT1 і не розраховує індивідуальну біодоступність.
Гіпотензивні, седативні, стимулятори та NMDA-модулятори дають різні теоретичні підстави обговорити поєднання, але клінічно встановлених схем значно менше. Потенційний вплив на тиск не означає доведеної адитивності з кожним інгібітором АПФ, блокатором ангіотензинових рецепторів чи антагоністом кальцію. Немає підтвердженого порогу «контролювати лише після 400 мг»: ризик залежить від вихідного стану й усіх втручань. За гіпотонії оцінюють усю схему, не автоматично змінюють призначені ліки.
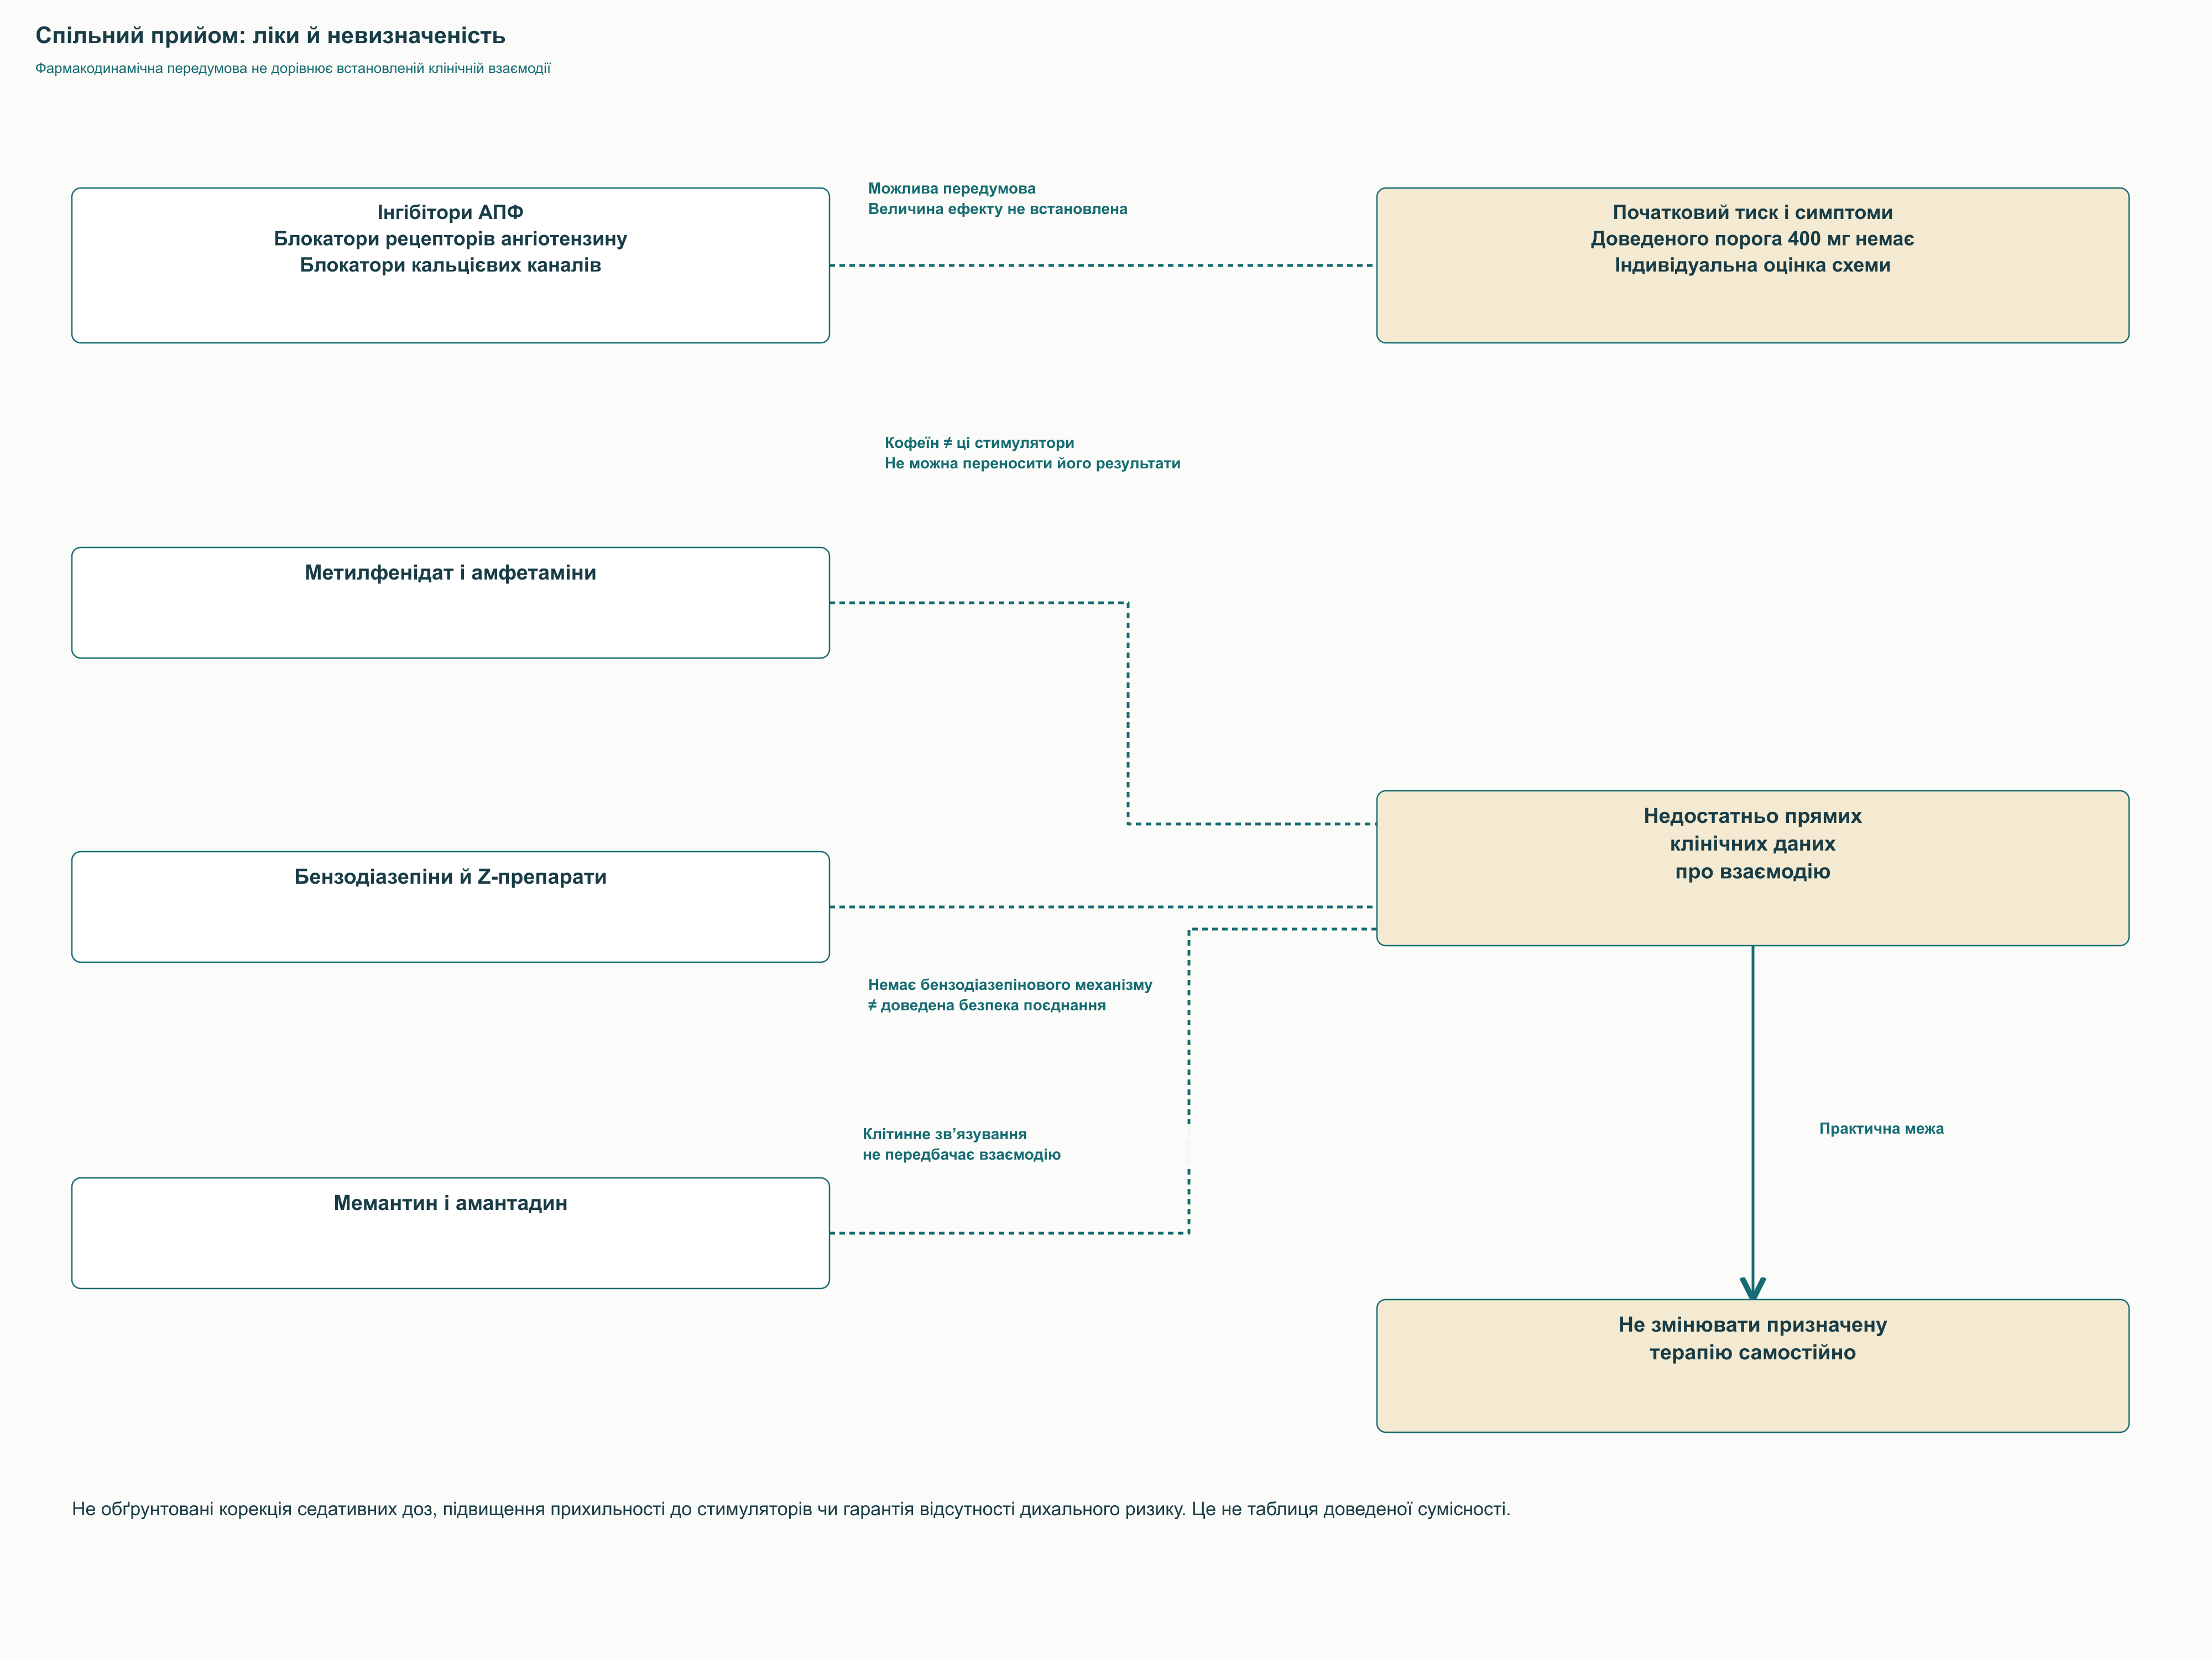
Дані кофеїну не переносять на амфетаміни й метилфенідат з іншою дією та контекстом. Обіцянки зняття їхніх побічних ефектів або кращої прихильності лікуванню не підтверджені відповідними результатами. Відсутність бензодіазепінового механізму також не гарантує безпеки із седативними чи відсутності пригнічення дихання за всіх обставин. Призначені дози не зменшують самостійно через теанін.
Мемантин і амантадин не можна поєднати з теаніном стрілкою «конкуренція за GluN2». Їхня фармакологія відрізняється від радіолігандного зв’язування та часткового коагонізму культури. Прямих клінічних даних недостатньо для величини взаємодії. Належний запис — невідома взаємодія з конкретною теоретичною передумовою, не вигадана доведена сумісність або несумісність.
У 13-тижневому досліді щурів тестували до 4000 мг/кг щодня, визначивши максимум як NOAEL за умов роботи. Це рівень, де дизайн не виявив певних небажаних ефектів, не рекомендована людська кількість. Він не доводить безпеки вагітності, відсутності рідкісних реакцій чи переносимості за тяжких супутніх хвороб. Просте множення на людську масу неправильне.
FDA розглядало GRN 209 щодо харчового теаніну до 250 мг на порцію у визначених категоріях і не мало питань до висновку заявника. Це регуляторний контекст інгредієнта, не схвалені ліки від тривоги чи безсоння. Він також не встановлює універсальної безпечної добової межі для всіх людей і поєднань. Харчовий статус, безпека дослідження та терапевтична доказовість — окремі питання.
Людські випробування загалом описують прийнятну коротку переносимість, але малі вибірки погано виявляють рідкісні події. Для вагітних, жінок, що годують, людей із вираженою нирковою чи печінковою дисфункцією й малих дітей даних недостатньо для загальної впевненої рекомендації. Відсутність знайденої шкоди не доводить безпеки цих груп. Реальний склад також важливий: реакція може бути пов’язана з іншими інгредієнтами чи якістю.
Для теаніну немає встановленого клінічного профілю залежності, подібного до певних психоактивних ліків. Проте спеціальних довгих досліджень толерантності й відміни мало, тому заперечувати їх після будь-якого строку надмірно. Відсутність «масивного дофамінового викиду» не замінює спостереження після припинення. За комбінації кофеїнова відміна може зберігатися незалежно від теаніну.
У практиці теанін доцільно розглядати як речовину з досліджуваним впливом на окремі показники уваги, стресу й сну. Найдетальніші молекулярні ефекти отримані в моделях, а людські залежать від завдання й не утворюють універсальної «нейропротекції». Користь оцінюють за ясною зміною самопочуття чи функції, переносимістю та альтернативами, не рекламною кількістю каскадів. Це зберігає інтерес і допомагає не обіцяти більше за показане.
Ні. Значення залежить від ділянки, стану й завдання; функціональну користь оцінюють окремими поведінковими результатами.
Надійних даних для суворих інтервалів чи заявленого зменшення мозкової концентрації на 40–60% немає. Конкуренція моделі не визначає побутового режиму.
Не гарантує. В окремих роботах змінювалися тиск чи певні тести уваги, але менша нервозність не була універсальною.
У малому випробуванні генералізованої тривоги не перевершив плацебо за основною шкалою. Стресові завдання здорових людей не замінюють досліджень лікування.
Розглянуті людські дані не встановлюють універсального довшого N3. Актиграфія не визначає стадії як полісомнографія.
Ні. Харчовий регуляторний статус не доводить безпеки добавки за вагітності, годування чи хвороб.