
Глицин, NMDA және ұйқы: терморегуляция, синапстар мен алмасу
Глицин туралы терең монография: GlyR, NMDA коагонизмі, L/D-серин, SCN және адам ұйқысы, GSH/GlyNAC, GLYAT/GNMT, фармакокинетика мен практикалық шектер.
Аңдатпа
Глицин — қызметін бір ғана «тыныштандырғыш» сөзімен сипаттау мүмкін емес шағын аминқышқыл. Ол ақуыздар мен метаболизм өнімдерінің құрамына кіреді, глицин рецепторлары арқылы жылдам тежелуге қатысады және қоздырғыш NMDA-рецепторлардың жұмысын да қолдайды. Нейрон жауабының бағытын рецептор түрі, иондық градиенттер және коагонистердің жергілікті қолжетімділігі анықтайды. Сондықтан синапстағы глицин мен ұнтақты ішке қабылдаудың салдарын бөлек түсіндіру қажет.
Глициннің ұйқыға ықпалына қызығушылық адамдардағы шағын зерттеулер мен жануарлардың терморегуляциясын зерттеген тәжірибелерден туындады. Олар ұйықтауды жеңілдету және келесі күнгі халдің кейбір көрсеткіштерін өзгерту мүмкіндігін талқылауға негіз береді, бірақ созылмалы ұйқысыздықты емдеу, терең ұйқыны көбейту немесе қысқа түнде миды толық қалпына келтіру дәлелденбеген. Глутатион синтезіндегі, органикалық қышқылдарды конъюгациялаудағы және метил топтарының алмасуындағы рөлдер қоспаны қосымша қабылдаудың жалпы пайдасына қарағанда сенімдірек анықталған. Монография молекулалық механизмдерді олардың клиникалық қолданылу шектерімен бірге қарастырады.
1. Молекулалық құрылымы және биохимиялық сипаттамасы
1.1. Ахиралдық, заряд және ақуыз тізбегінің икемділігі
Глициннің, яғни аминоэтан қышқылының формуласы C₂H₅NO₂, молярлық массасы шамамен 75,07 г/моль. α-көміртек атомында екі бірдей орынбасар — сутек атомдары бар, сондықтан жиырма стандартты протеиногендік аминқышқылдың ішінде тек глицин D- және L-энантиомерлер жұбын түзбейді. Бұл молекуланы биологиялық «бейтарап» етпейді: ферменттер мен рецепторлар оның амин және карбоксил топтарының орналасуын таниды. Дегенмен «L-глицин» мен «D-глицин» кәдімгі глициннің екі түрлі стереохимиялық түрін білдірмейді.
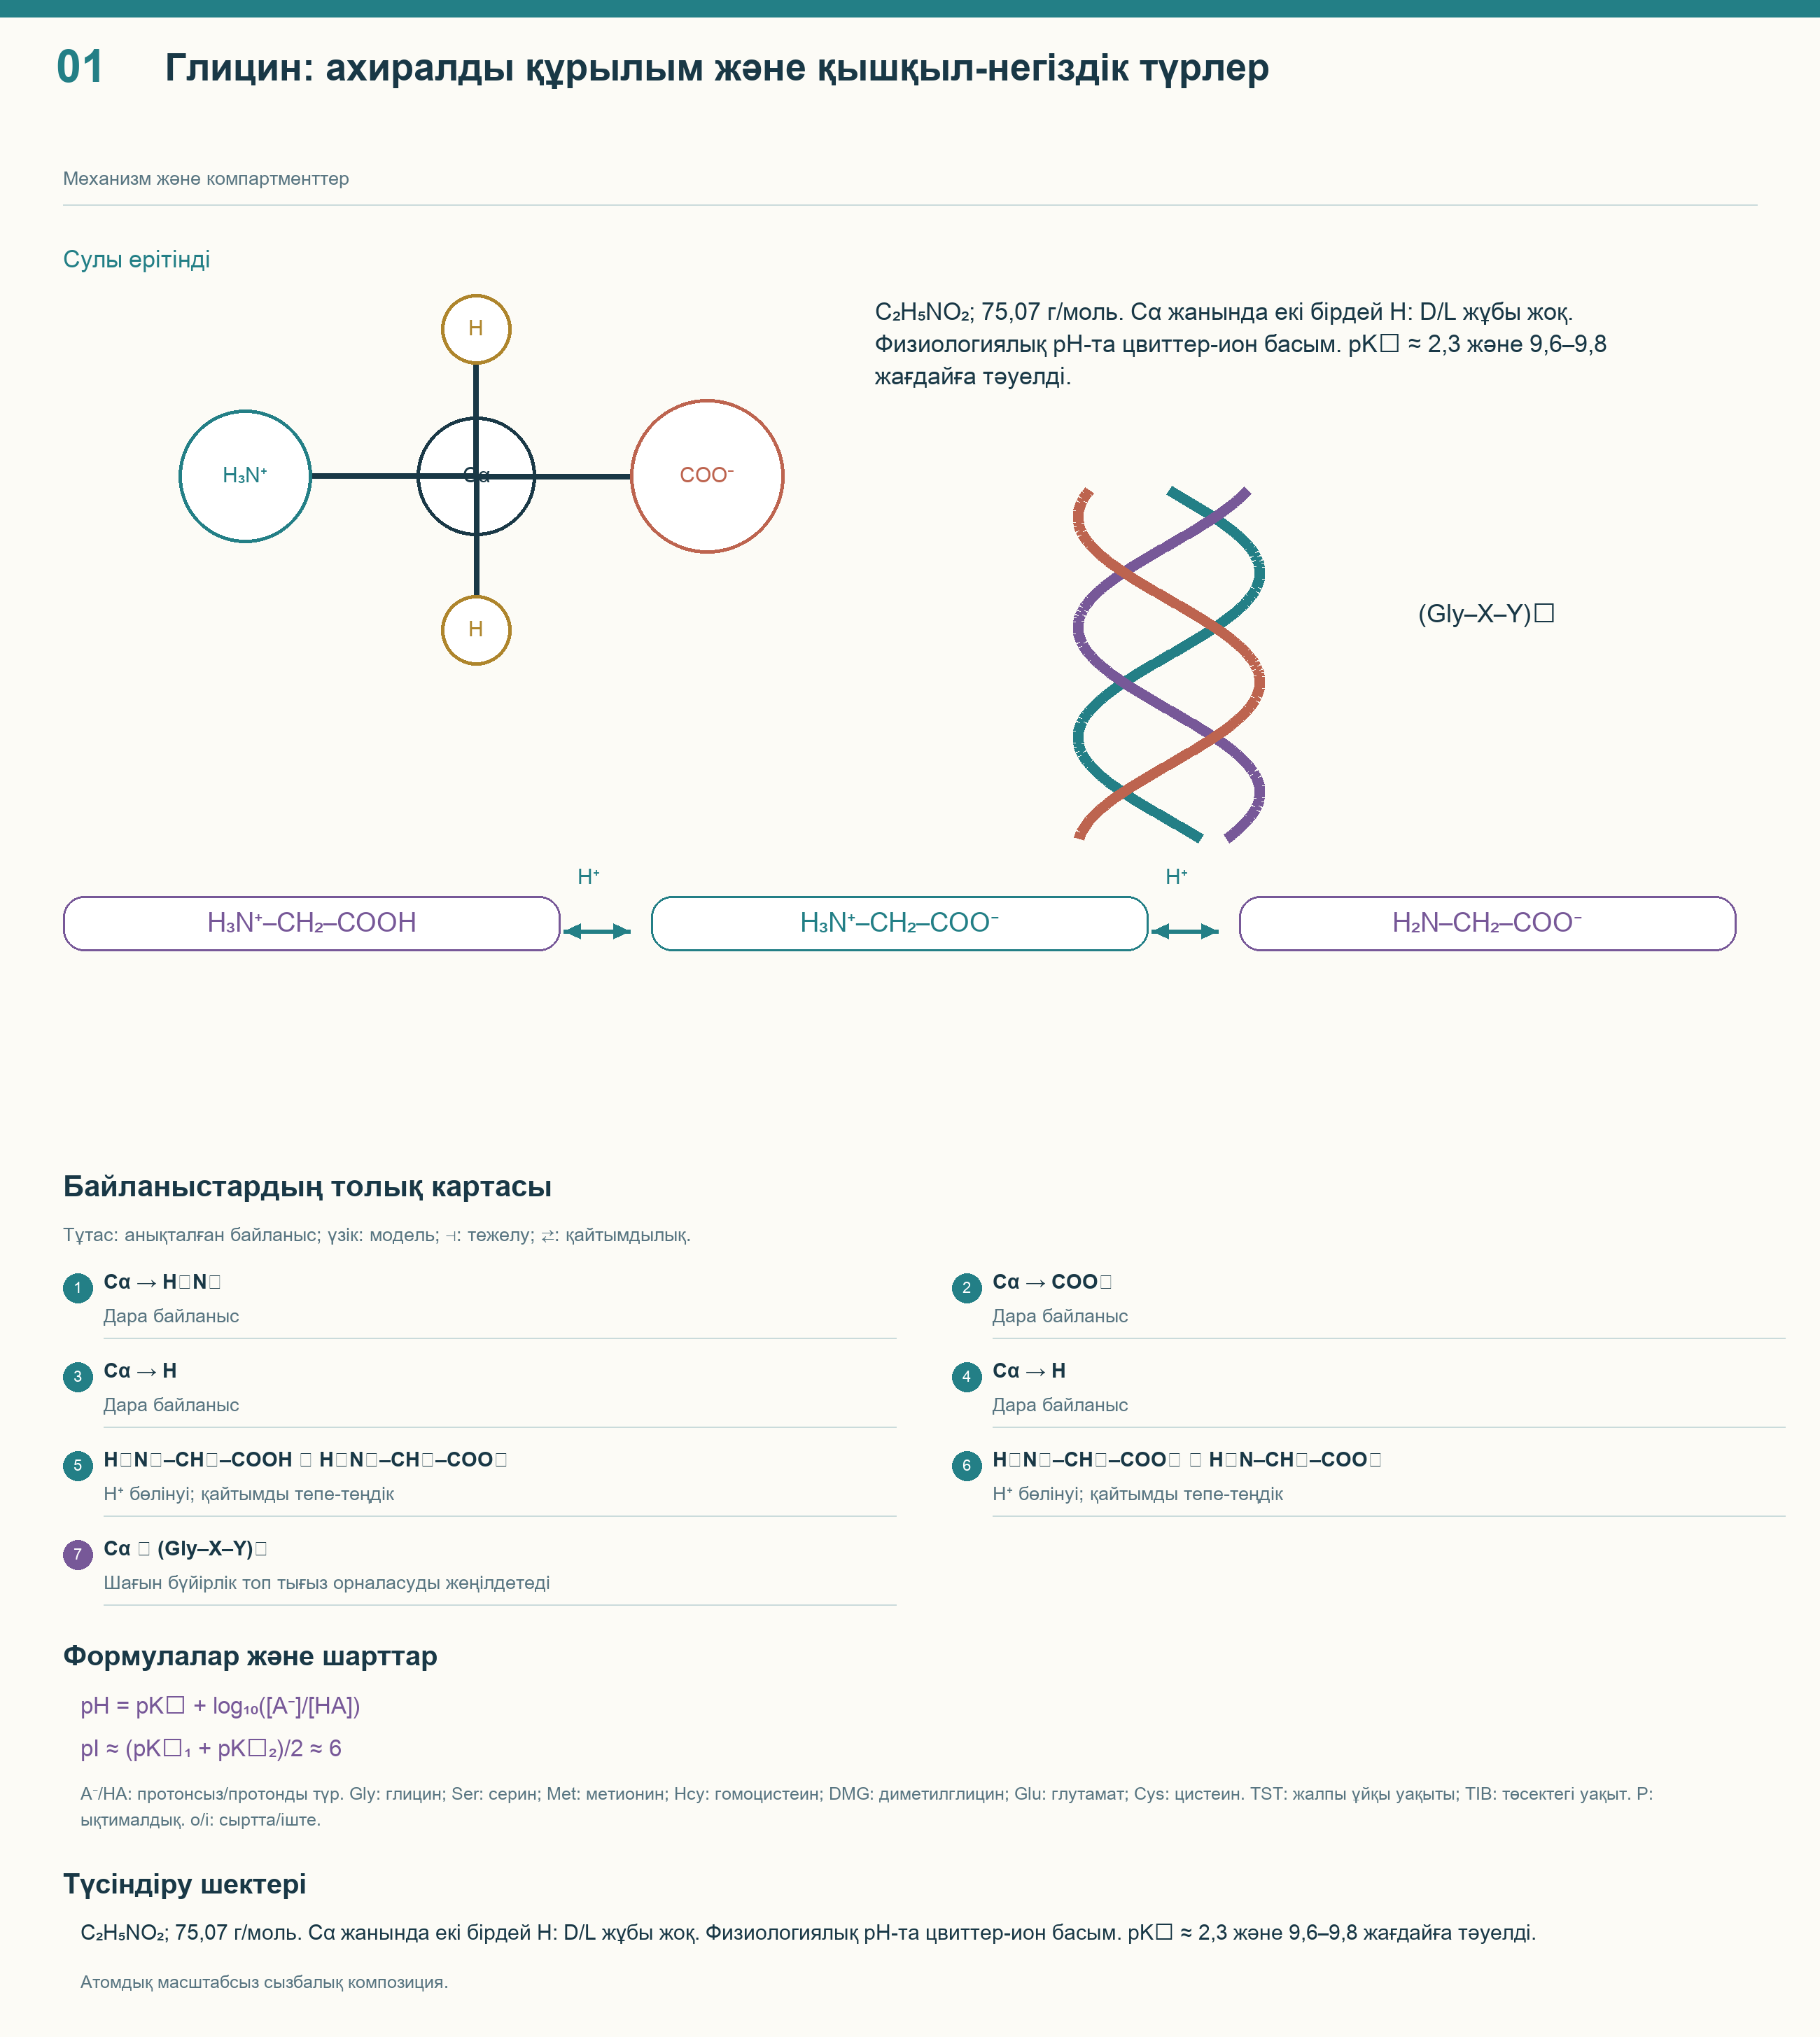
Сулы ерітіндіде глициннің бірнеше қышқылдық-негіздік түрі қатар болады, олардың арақатынасы pH-қа тәуелді. Физиологиялық pH маңында әртүрлі топтарында оң және теріс зарядтары бар H₃N⁺–CH₂–COO⁻ цвиттер-ионы басым. «Басым» сөзі «тек осы түрде болады» дегеннен дәлірек, өйткені биологиялық ортада тепе-теңдік сақталады. pKₐ температураға, иондық күшке және ерітіндіні сипаттау тәсіліне де тәуелді; олар қан мен жұлын-ми сұйықтығының өзгермейтін тұрақтылары емес.
H₃N⁺–CH₂–COOH ⇄ H₃N⁺–CH₂–COO⁻ + H⁺
H₃N⁺–CH₂–COO⁻ ⇄ H₂N–CH₂–COO⁻ + H⁺
pH = pKₐ + log₁₀([депротонданған түр]/[протонданған түр])
Оқу мақсатындағы жуықтауда карбоксил тобының pKₐ шамамен 2,3, аммоний тобыныкі 9,6–9,8 деп алынады. Иондалатын бүйір тобы жоқ қарапайым аминқышқылдың изоэлектрлік нүктесі pI ≈ (pKₐ₁ + pKₐ₂)/2, яғни шамамен 6 болады. Бұл орташа жиынтық заряд нөлге тең pH; жеке топтар міндетті түрде зарядын жоғалтатын күй емес. Хендерсон—Хассельбах теңдеуі түрлердің таралуын түсіндіреді, бірақ нақты биологиялық сұйықтықтағы активтіліктерді толық сипаттамайды.
Шағын бүйір топ ақуыз қаңқасының φ және ψ бұралу бұрыштарына қойылатын кеңістіктік шектеулерді азайтады. Глицин үшін Рамачандран картасындағы рұқсат етілген аймақтар көптеген аминқышқылға қарағанда кең, бірақ барлық конформацияның ықтималдығы бірдей емес. Бұл кейбір иілістерді және тізбектердің тығыз орналасуын жеңілдетеді. Коллагендегі (Gly–X–Y)ₙ қайталануы глицинді әр үшінші орынға орналастырады: үлкенірек бүйір топ үштік спиральға кедергі келтірер еді; бұл заңдылық кез келген қоспаның коллаген түзілуін жеделдететінін білдірмейді.
1.2. Синтез, ыдырау және біркөміртекті алмасу
Организм глицинді синтездей алатындықтан, ол алмастырылатын аминқышқылға жатады. Негізгі жол серин және серингидроксиметилтрансферазалармен байланысты: SHMT1 көбіне цитозольде, SHMT2 митохондрияда жұмыс істейді. Реакция пиридоксальфосфатты пайдаланып, біркөміртекті топты тетрагидрофолатқа, THF-қа өткізеді. Қайтымдылық маңызды: ферменттің бар болуы белгілі тіндегі ағын бағытын өздігінен анықтамайды.
Серин + THF ⇄ глицин + 5,10-CH₂-THF + H₂O
5,10-CH₂-THF — келесі реакциялар үшін біркөміртекті бірлік таситын метилентетрагидрофолат. Митохондриялық және цитозольдік фолат қорларын еркін араласатын бір ыдыс ретінде көрсетуге болмайды. Өсірілген жасушалардағы генді өзгерту және изотоптық таңбалау тәжірибелері митохондриялық жол бұзылғанда ағындардың қайта бөлінетінін көрсетті. Бұл жасушаның метаболикалық икемділігін түсіндіреді, бірақ адамның тәуліктік глицин нормасын белгілемейді.
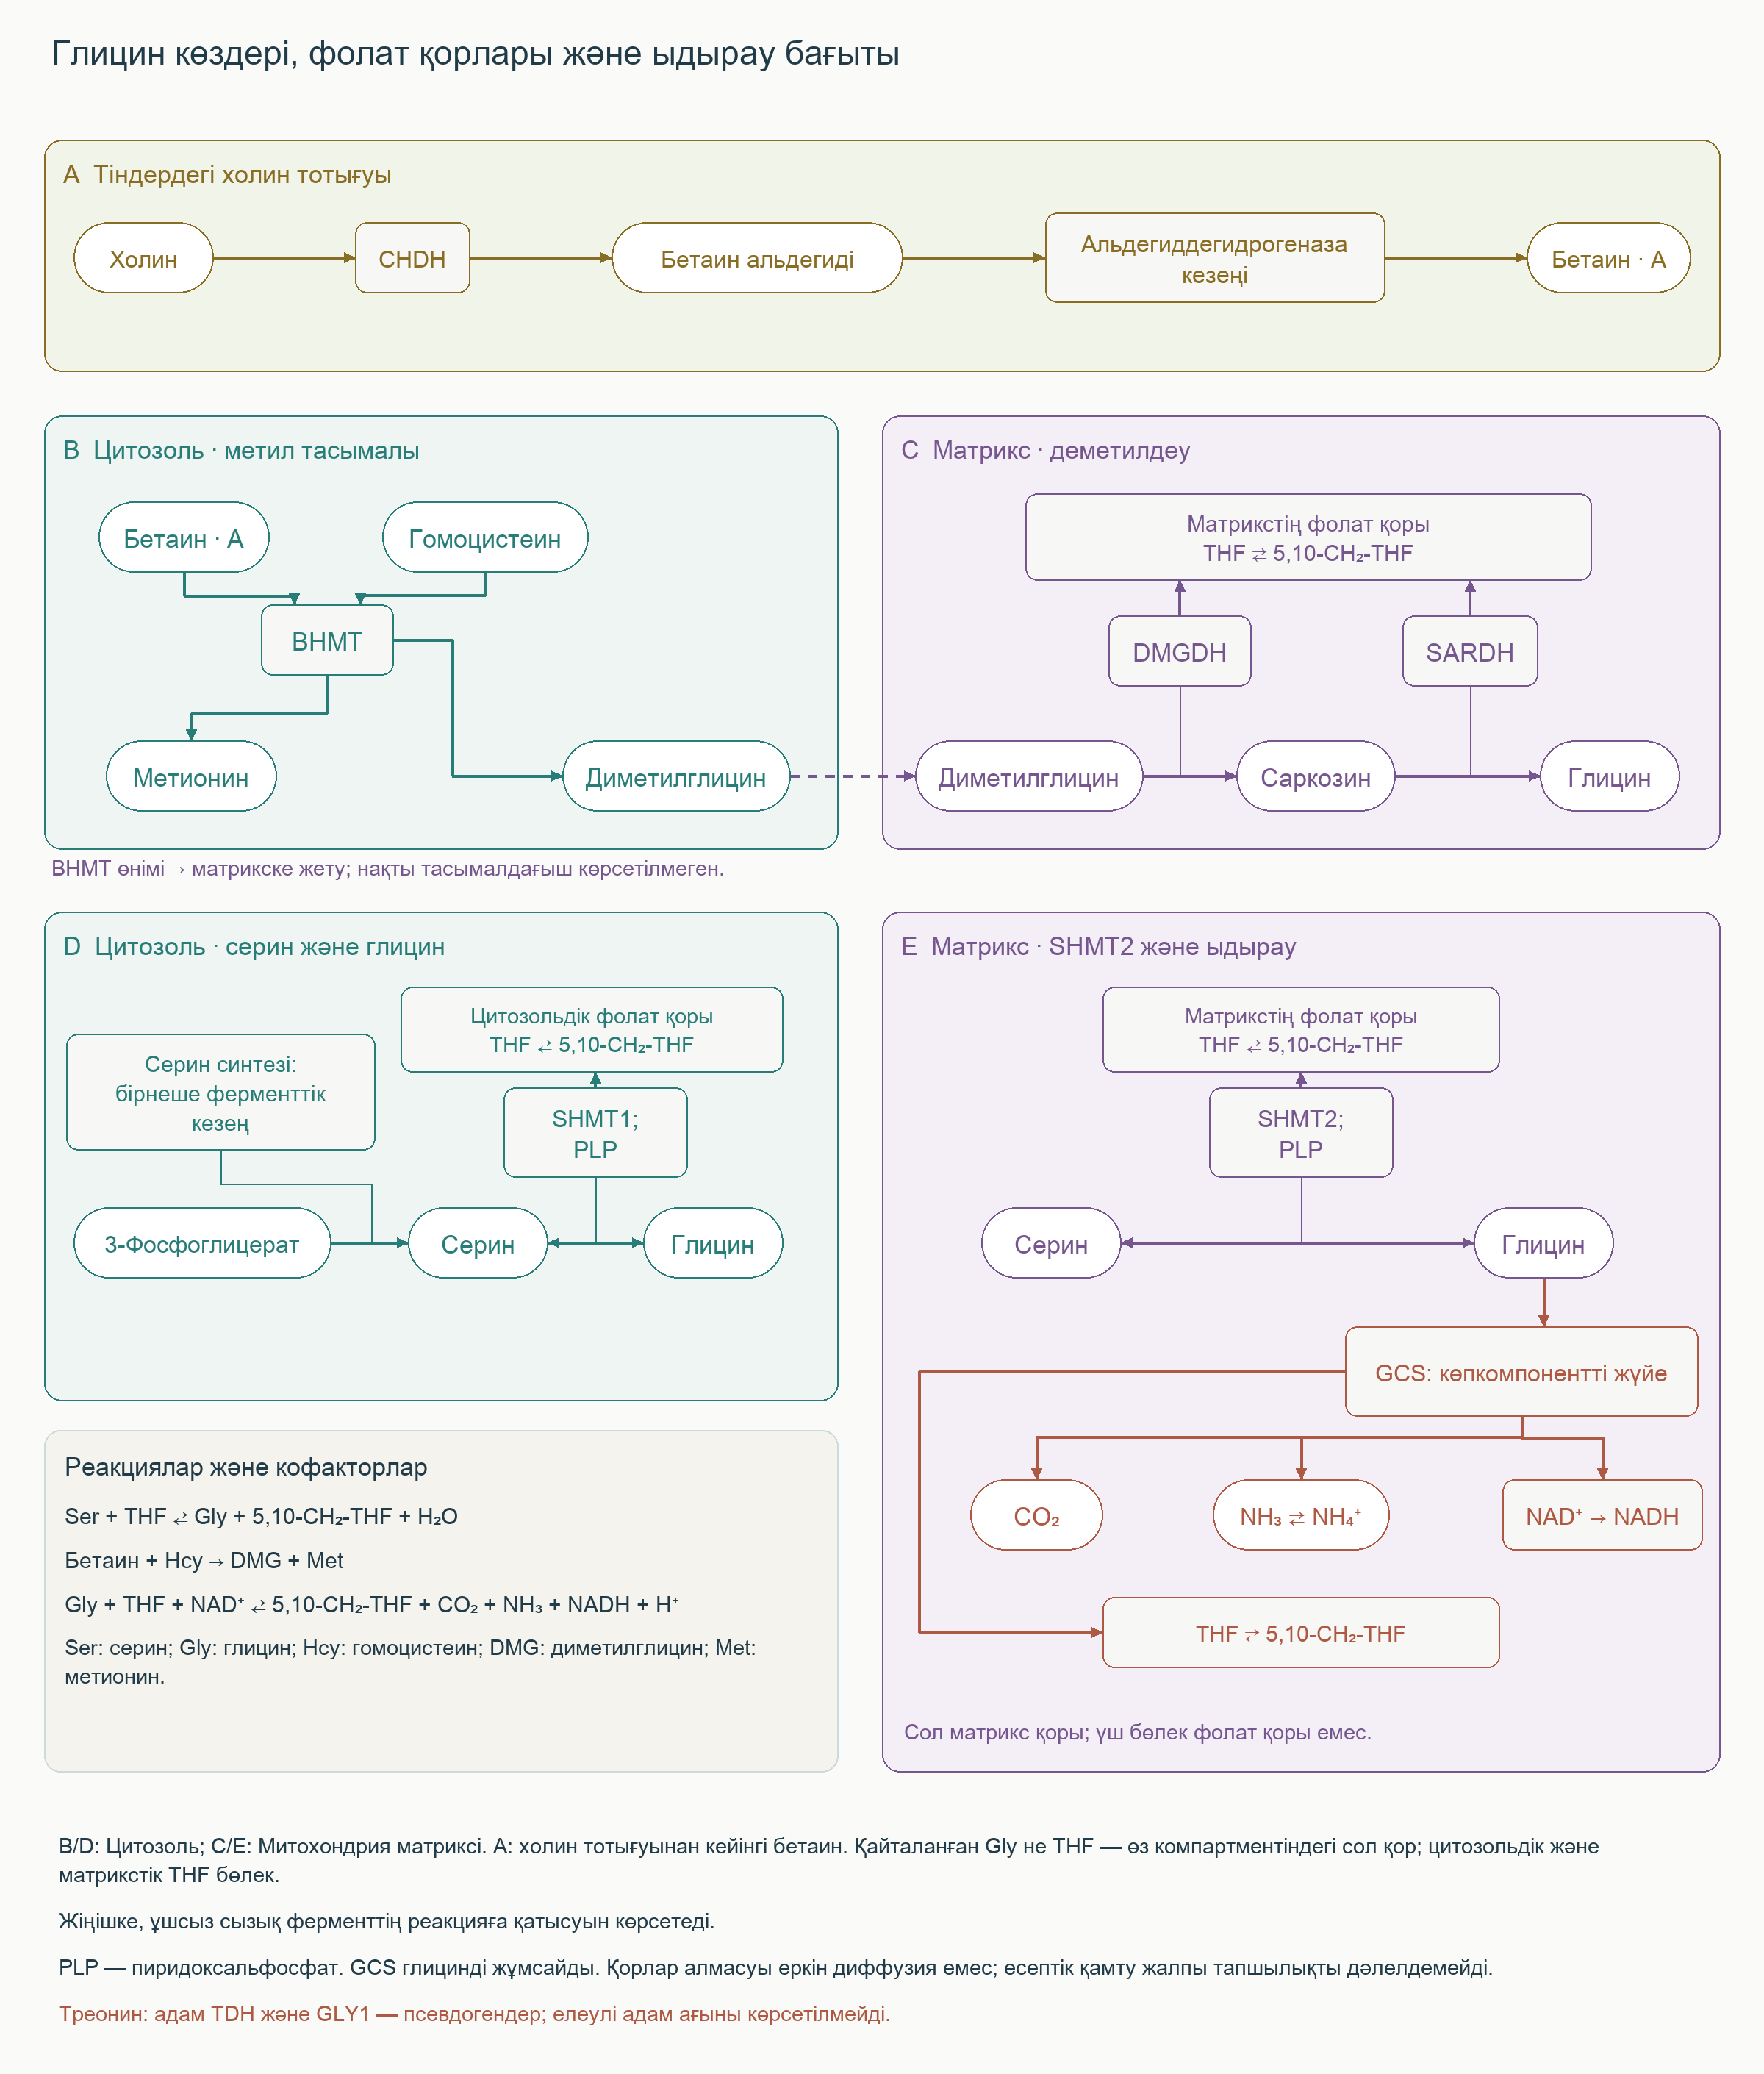
Екінші бағыт глицинді холиннің тотығуымен және метил топтарының алмасуымен байланыстырады. Холин алдымен бетаин альдегидіне, кейін бетаинге айналады; BHMT бетаиннің метил тобын гомоцистеинге беріп, метионин мен диметилглицин түзеді. Митохондриядағы DMGDH және SARDH реакциялары саркозин, одан кейін глицин береді және тотығу арқылы деметилденуді біркөміртекті алмасумен ұштастырады. Жолдың тіндік ұйымдасуы бар, ол әр нейронда бірдей белсенді тізбек емес.
Бетаин + гомоцистеин → диметилглицин + метионин
Глицинді ыдырататын GCS жүйесі, керісінше, митохондрияда глицинді жұмсайды. Ақуыздық құрамдастар декарбоксилдену, аминометил тобын өткізу және кофактордың тотыққан күйін қалпына келтіруді атқарады; көміртек CO₂ мен фолат қорына, азот аммиакқа өтеді, ал ерітіндіде азоттың бұл түрі көбіне NH₄⁺ болады. Катаболизм көрсеткіші глициннен өнімдерге бағытталуы керек, оны тағы бір синтез көзі деп көрсету дұрыс емес. Жүйе бұзылыстары аминқышқылды жеткіліксіз шығару да жеткіліксіз қолжетімділік сияқты маңызды екенін көрсетеді.
Глицин + THF + NAD⁺ ⇄ 5,10-CH₂-THF + CO₂ + NH₃ + NADH + H⁺
Бұл бір ферменттің емес, GCS жүйесінің жиынтық биохимиялық теңдеуі. NH₃ таңдалған баланс жазылуын білдіреді; физиологиялық ерітіндіде NH₃ + H⁺ ⇄ NH₄⁺ тепе-теңдігін де ескеру қажет. Протон балансын өзгертпей NH₃-ті NH₄⁺-ке ауыстыру дәл болмайды. NAD⁺ және NADH — никотинамидадениндинуклеотидтің тотыққан және тотықсызданған түрлері.
Треонин жолдарын организм түрін ажыратып талқылау қажет. Адам гендерін зерттеу TDH треониндегидрогеназаға сәйкес келетін, экспрессияланатын псевдоген екенін, ал дербес треонинальдолаза GLY1-дің адамдағы гомологы да қызметін жоғалтқанын көрсетті. Бұл жанама ферменттік белсенділіктерді жоққа шығармайды, бірақ өлшеусіз адам үшін «5%-дан аз» әмбебап үлес белгілеуге негіз бермейді. Тышқандағы белсенді жол немесе тін сығындысындағы аз белсенділік адам синтезінің сандық бағасына тең емес.
1.3. Жеткіліксіз қамтамасыз етілу гипотезасы нені білдіреді
Коллаген синтезіне арналған есептер организмнің өз глицині барлық қажеттілікті үнемі жаба ма деген мәселені көтерді. Бір модель шамамен 3 г/тәулік синтезді, тағамнан түсетін мөлшерді және құрылымдық әрі метаболикалық міндеттерге болжанған шығынды салыстырды. Бұл ықтимал шектеу туралы пайдалы гипотеза, бірақ ақуыз айналымы, қайта пайдалану және нақты синтез жылдамдықтары жөніндегі жорамалдарға тәуелді. Ол салмағы 70 кг әр ересекте күнделікті тапшылық барын дәлелдемейді.
Ақуыз жинауға жұмсалатын жалпы глицин мөлшері қайтадан тағамнан немесе синтез арқылы алынуы тиіс таза мөлшерден өзгеше. Ақуыз ыдырағанда аминқышқылдар айналымға қайтады; қайтарымды есептемей барлық ағынды қосу таза қажеттілікті артық бағалайды. Белгілі пациенттер тобындағы төмен концентрация да әмбебап қоспа дозасын анықтамайды. Қамтамасыз етілуді «3 пен 15 г» айырмасын міндетті өтеумен емес, рационмен, адамның жағдайымен және өлшенетін міндетпен байланыстыру қажет.
2. Глициннің екі рецепторлық рөлі
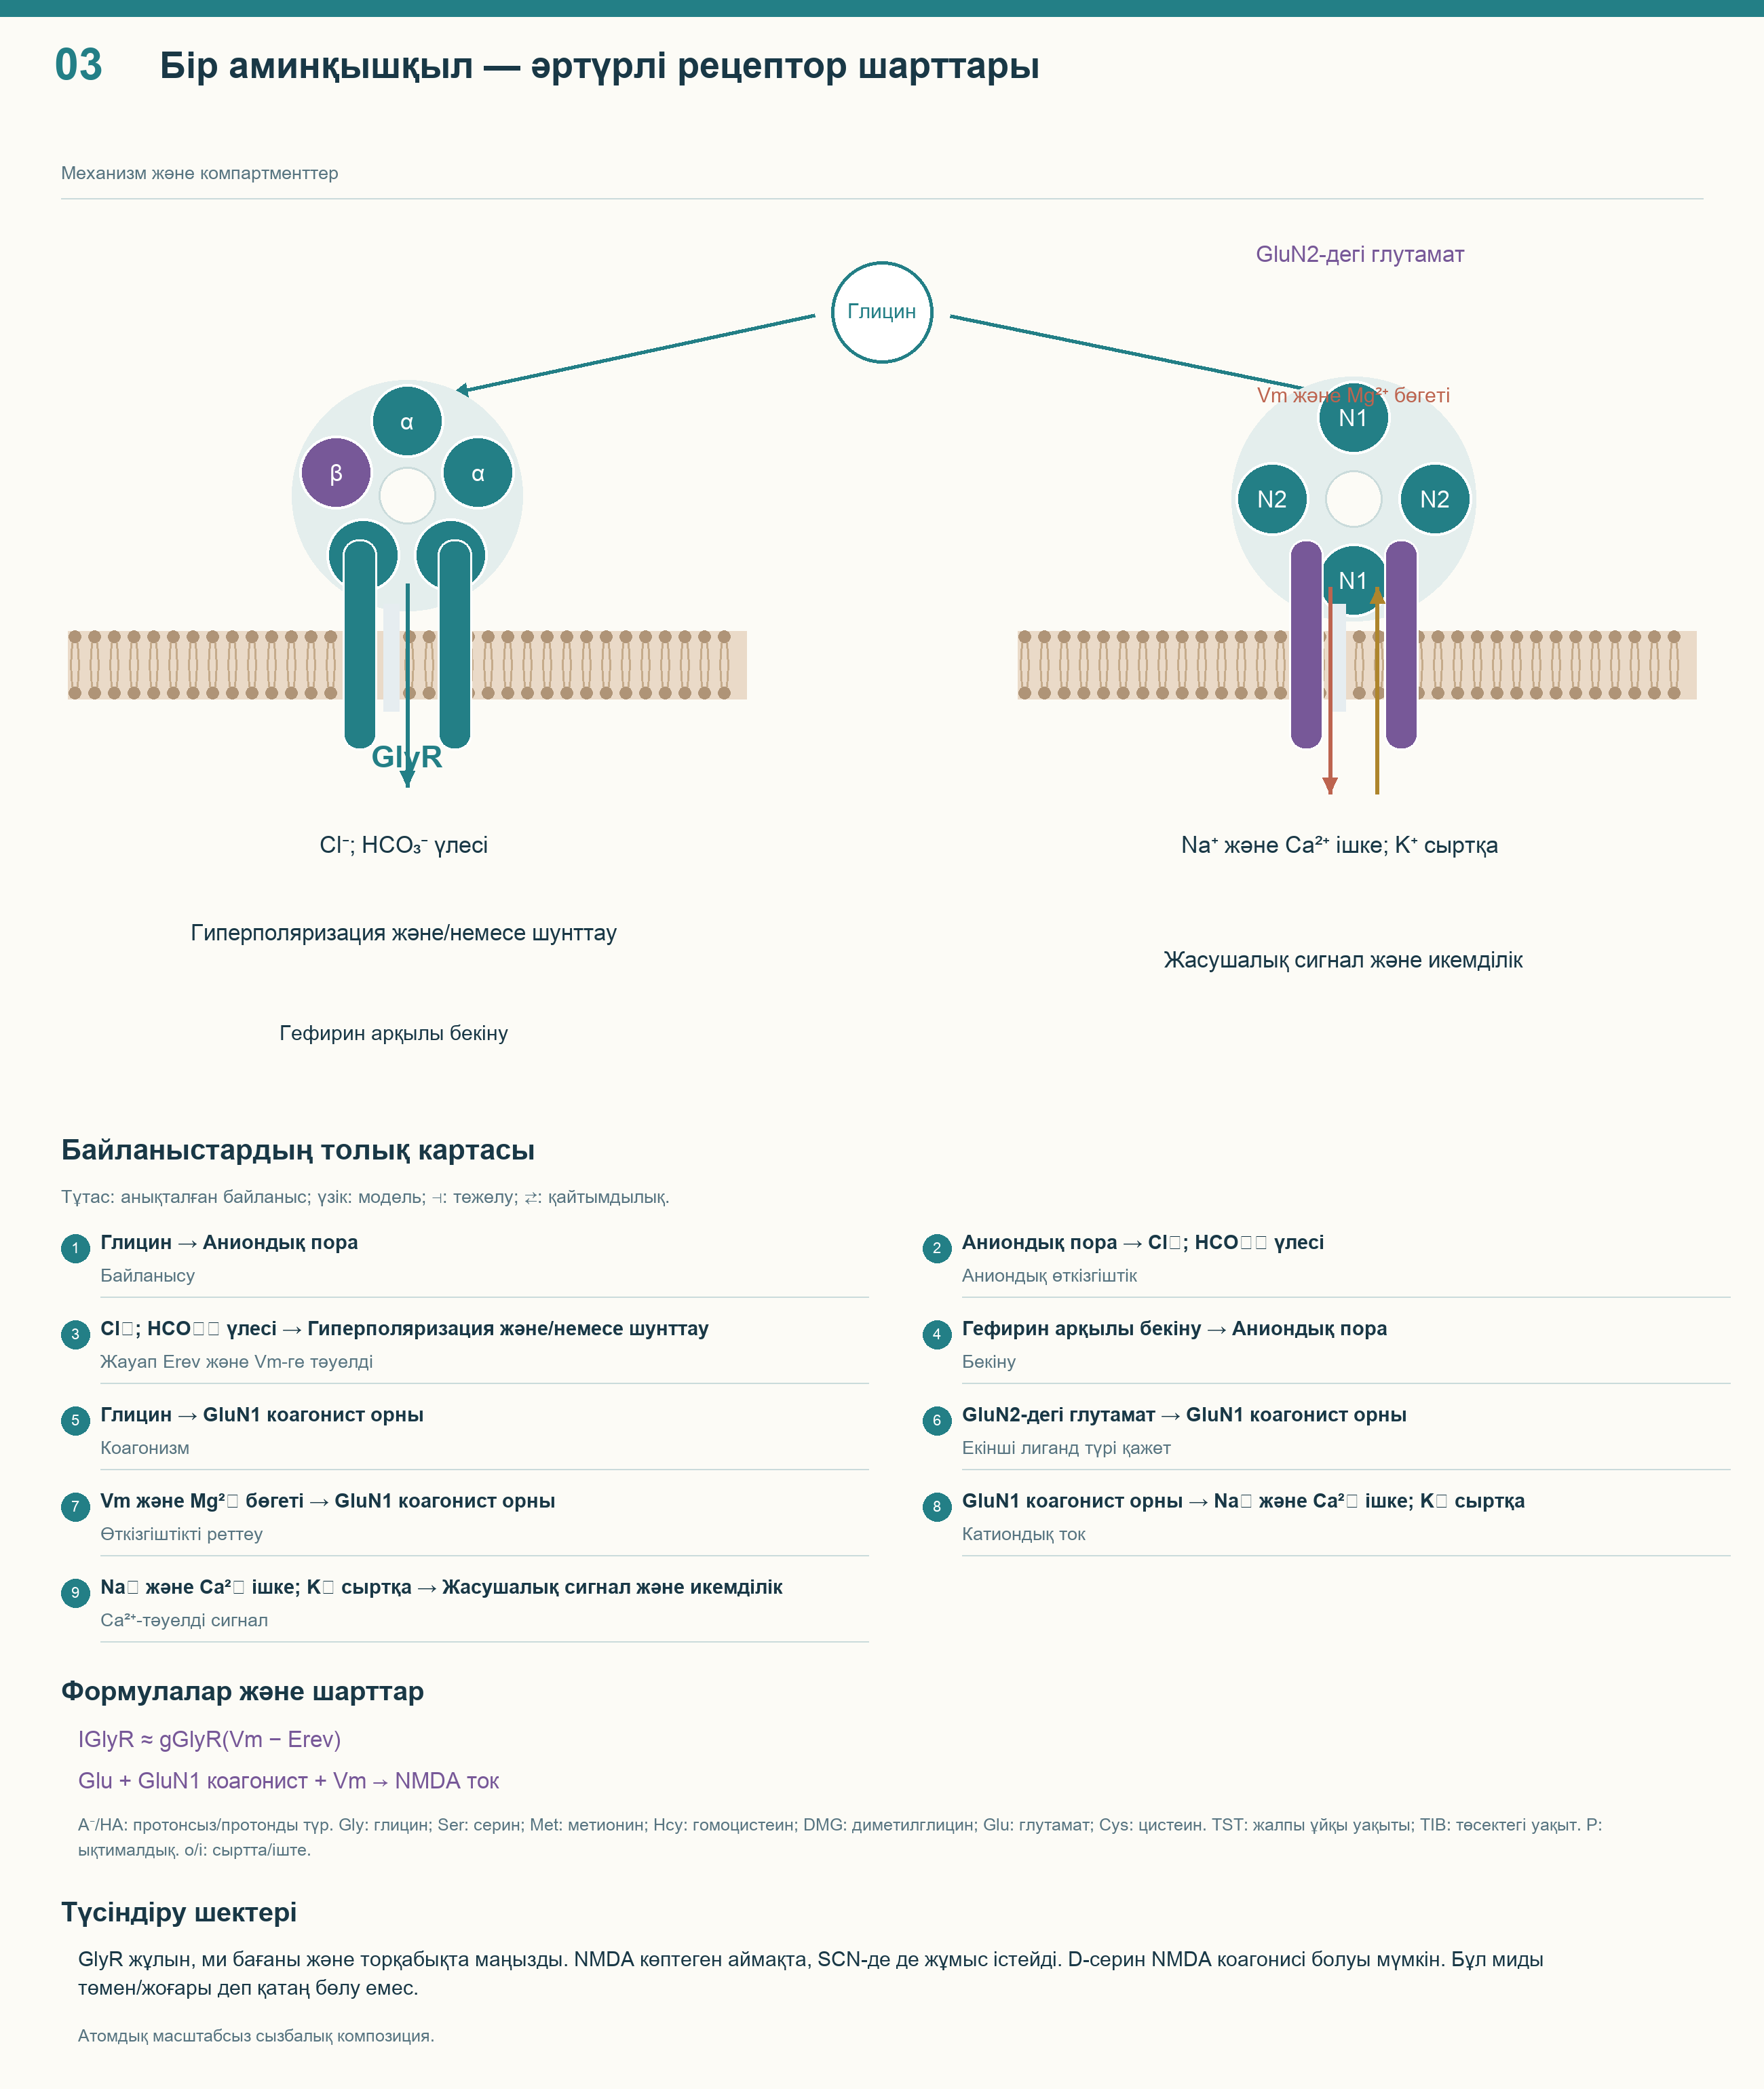
Глицин тежегіш және қоздырғыш берілуге қатыса алады, себебі әртүрлі рецепторлық кешендермен әрекеттеседі. GlyR көбіне аниондарды өткізеді, ал кәдімгі NMDA катиондарды өткізіп, глутаматпен бірге коагонистті қажет етеді. Жұлын мен ми бағанында глициндік тежегіш тізбектер көп, бірақ миды «тежегіш төменгі» және «қоздырғыш жоғарғы» бөлікке қатаң бөлу анатомияны жеңілдетіп жібереді. Синапс, жас, суббірлік құрамы және жасуша күйі маңызды.
2.1. GlyR: байланысу, пора және постсинапстық бекіту
GlyR — лиганд басқаратын, Cys-ілмегі бар пентамерлік арналар тобының мүшесі. Бес суббірлік орталық пораны қоршайды; сыртқы глициннің байланысуы конформация мен ашылу ықтималдығын өзгертеді. α-суббірліктер лигандты тануға және арнаны қалыптастыруға қатысады; β да қызметтік құрылымға кіреді әрі постсинапстық қаңқамен маңызды байланыс жасайды. Оны тек қозғалмайтын тірек деу дәл емес.
Нативті рецепторлар мен адамның рекомбинанттық кешендерін құрылымдық зерттеу қарастырылған гетеромерлік GlyR үшін 4α:1β құрамын қолдайды. Бұрын ұсынылған 3α:2β нұсқаларын жетілген рецептордың дәл сондай сенімді әмбебап құрылымы ретінде көрсетуге болмайды. α1, α2, α3 таралуы мен қасиеттері әртүрлі; адамның GLRA4 гені псевдоген болғандықтан, басқа омыртқалылардың төрт α-изоформасын атағанда түрлік ескерту қажет. Гомомерлік α-рецепторлар да болады, әсіресе тәжірибелік жүйелерде және жүйке тіні дамығанда.
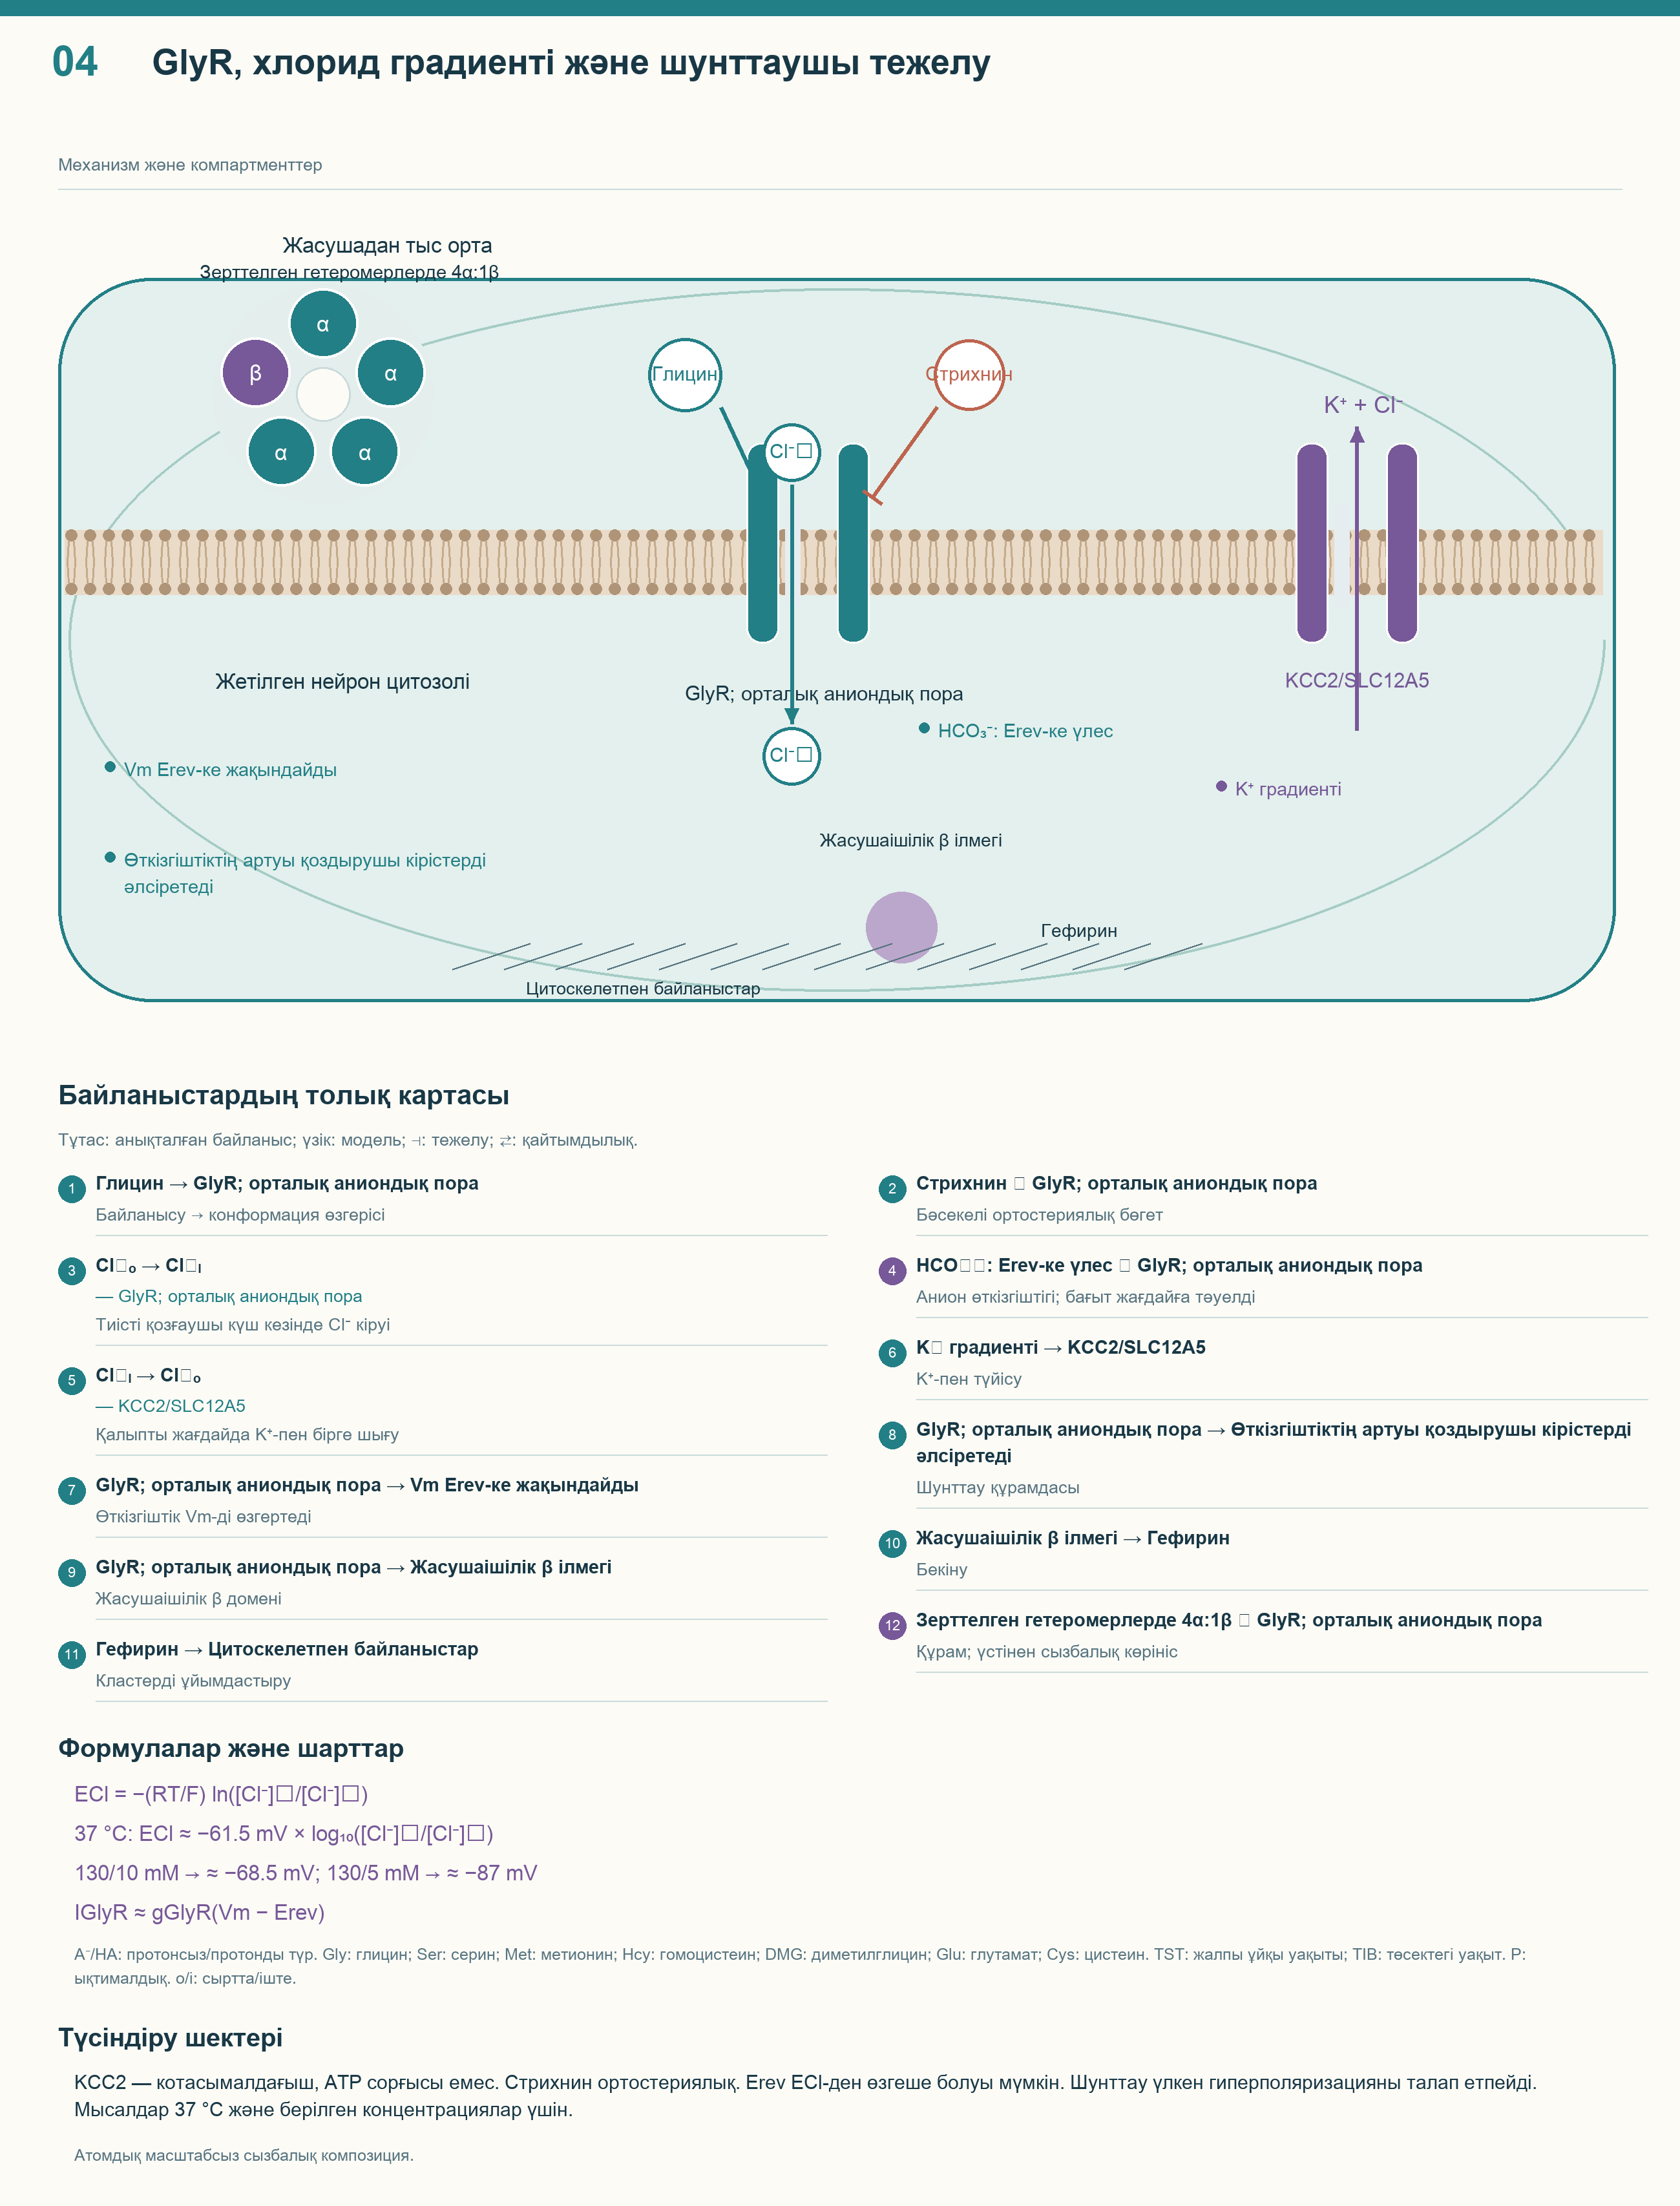
Гефирин β-суббірліктің жасуша ішіндегі аймағымен байланысып, постсинапстық кластерлерде рецепторларды ұстайды. Бұл молекулалары алмасатын динамикалық жүйе, тұрақты арна саны бар міндетті мінсіз алтыбұрышты тор емес. Цитоскелетпен және басқа ақуыздармен байланыстар тежегіш синапстың кеңістіктік реттелуін қолдайды. Схема бекіту кешенін көрсетеді, бірақ кластердің әмбебап көлемі мен микротүтікше санын белгілемейді.
Стрихнин лигандтың ортостериялық танылу орнын алып, бәсекелі GlyR антагонисі ретінде әрекет етеді. Оны бәсекелі тежегіш деп атап, сонымен бірге бөлек міндетті «аллостериялық қалтаға» қою қисынсыз. Глициннің EC₅₀ мәні тәжірибедегі жартылай функционалдық жауап концентрациясы, Kᵢ — басқа тәсілмен анықталатын тежелу параметрі; екеуі де жүйеге тәуелді. Рецептор құрамы мен жағдай көрсетілмеген 20–50 мкМ және 5–10 нМ барлық адам GlyR-інің тұрақтылары емес.
Аниондық жауаптың электрофизиологиясы
Ашық арна тогы электрохимиялық қозғаушы күшке тәуелді. Жетілген нейронда KCC2, немесе SLC12A5, K⁺ пен Cl⁻-ті бірге тасып, жасуша ішіндегі Cl⁻ деңгейін төмен ұстауға көмектеседі. Бұл иондық градиентті пайдаланатын екіншілік белсенді котранспортер, хлорлық АТФаза емес. Бастапқы градиенттерге жасуша энергиясы керек, бірақ KCC2 әр тасымал циклінде ATP гидролиздемейді.
ECl = (RT/zF) ln([Cl⁻]ₒ/[Cl⁻]ᵢ), мұнда z = −1
37 °C кезінде: ECl ≈ −61,5 мВ × log₁₀([Cl⁻]ₒ/[Cl⁻]ᵢ)
IGlyR ≈ gGlyR × (Vm − Erev)
Нернст теңдеуінде R — газ тұрақтысы, T — абсолют температура, F — Фарадей тұрақтысы; «o» мен «i» сыртқы және ішкі ортаны көрсетеді. Шартты 130 мМ сыртта және 10 мМ іште болғанда ECl шамамен −68,5 мВ, іште 5 мМ болса шамамен −87 мВ шығады. Бұлар тәуелділікті түсіндіретін мысалдар, әр нейронның нормасы емес. gGlyR — өткізгіштік, Vm — мембрана потенциалы, Erev — бүкіл аниондық токтың реверсия потенциалы; HCO₃⁻ үлесі оны ECl-ден өзгеше ете алады.
Erev ағымдағы Vm-нен теріс болса, GlyR ашылуы мембрананы терісірек деңгейге жақындатады. Өткізгіштік артқанда қоздырғыш кірістердің ықпалы да азаяды: шунттық тежелу үлкен көрінетін кернеу өзгерісін қажет етпейді. Басқа градиенттерде жауап деполяризациялық болуы мүмкін, бірақ бұл әрдайым импульс табалдырығына жетуді білдірмейді. «Cl⁻ міндетті кіреді, Vm −65-тен −75 мВ-қа өзгереді» тек шарттары берілген мысалға жарайды.
Глициндік тежелудің бұзылуы клиникалық маңызды, бірақ тағамдық глицин барлық осындай бұзылысты емдемейді. GLRA1, GLRB және SLC6A5 патогендік нұсқалары тұқым қуалайтын гиперэкплексиямен, шамадан тыс селк ету мен сіресу эпизодтарымен байланысты; бұл эпилепсияның басқа атауы емес. Сіреспе токсині синаптобревин/VAMP-ты ыдыратып, тежегіш медиаторлардың бөлінуін бұзады және тек глициндік Реншоу тізбегімен шектелмейді. Бұл мысалдар рецептор мен синапс аппаратына қатысты, дозаны арттырудың күнделікті пайдасын дәлелдемейді.
2.2. NMDA: коагонист және сәйкестікті анықтау
Кәдімгі GluN1/GluN2 NMDA-рецепторда екі GluN1 және екі GluN2 болады, олардың изоформалары әртүрлі болуы мүмкін. Глицин не D-серин GluN1 коагонисттік орнына, глутамат GluN2 орындарына байланысады. Орындар функционалды әрекеттеседі, бірақ глицин орны кездейсоқ қосалқы тетік емес, коагонист байланысатын аймақ. GluN3-құрамды кешендер бұл сызбаны бүкіл топқа таратуды қосымша шектейді.
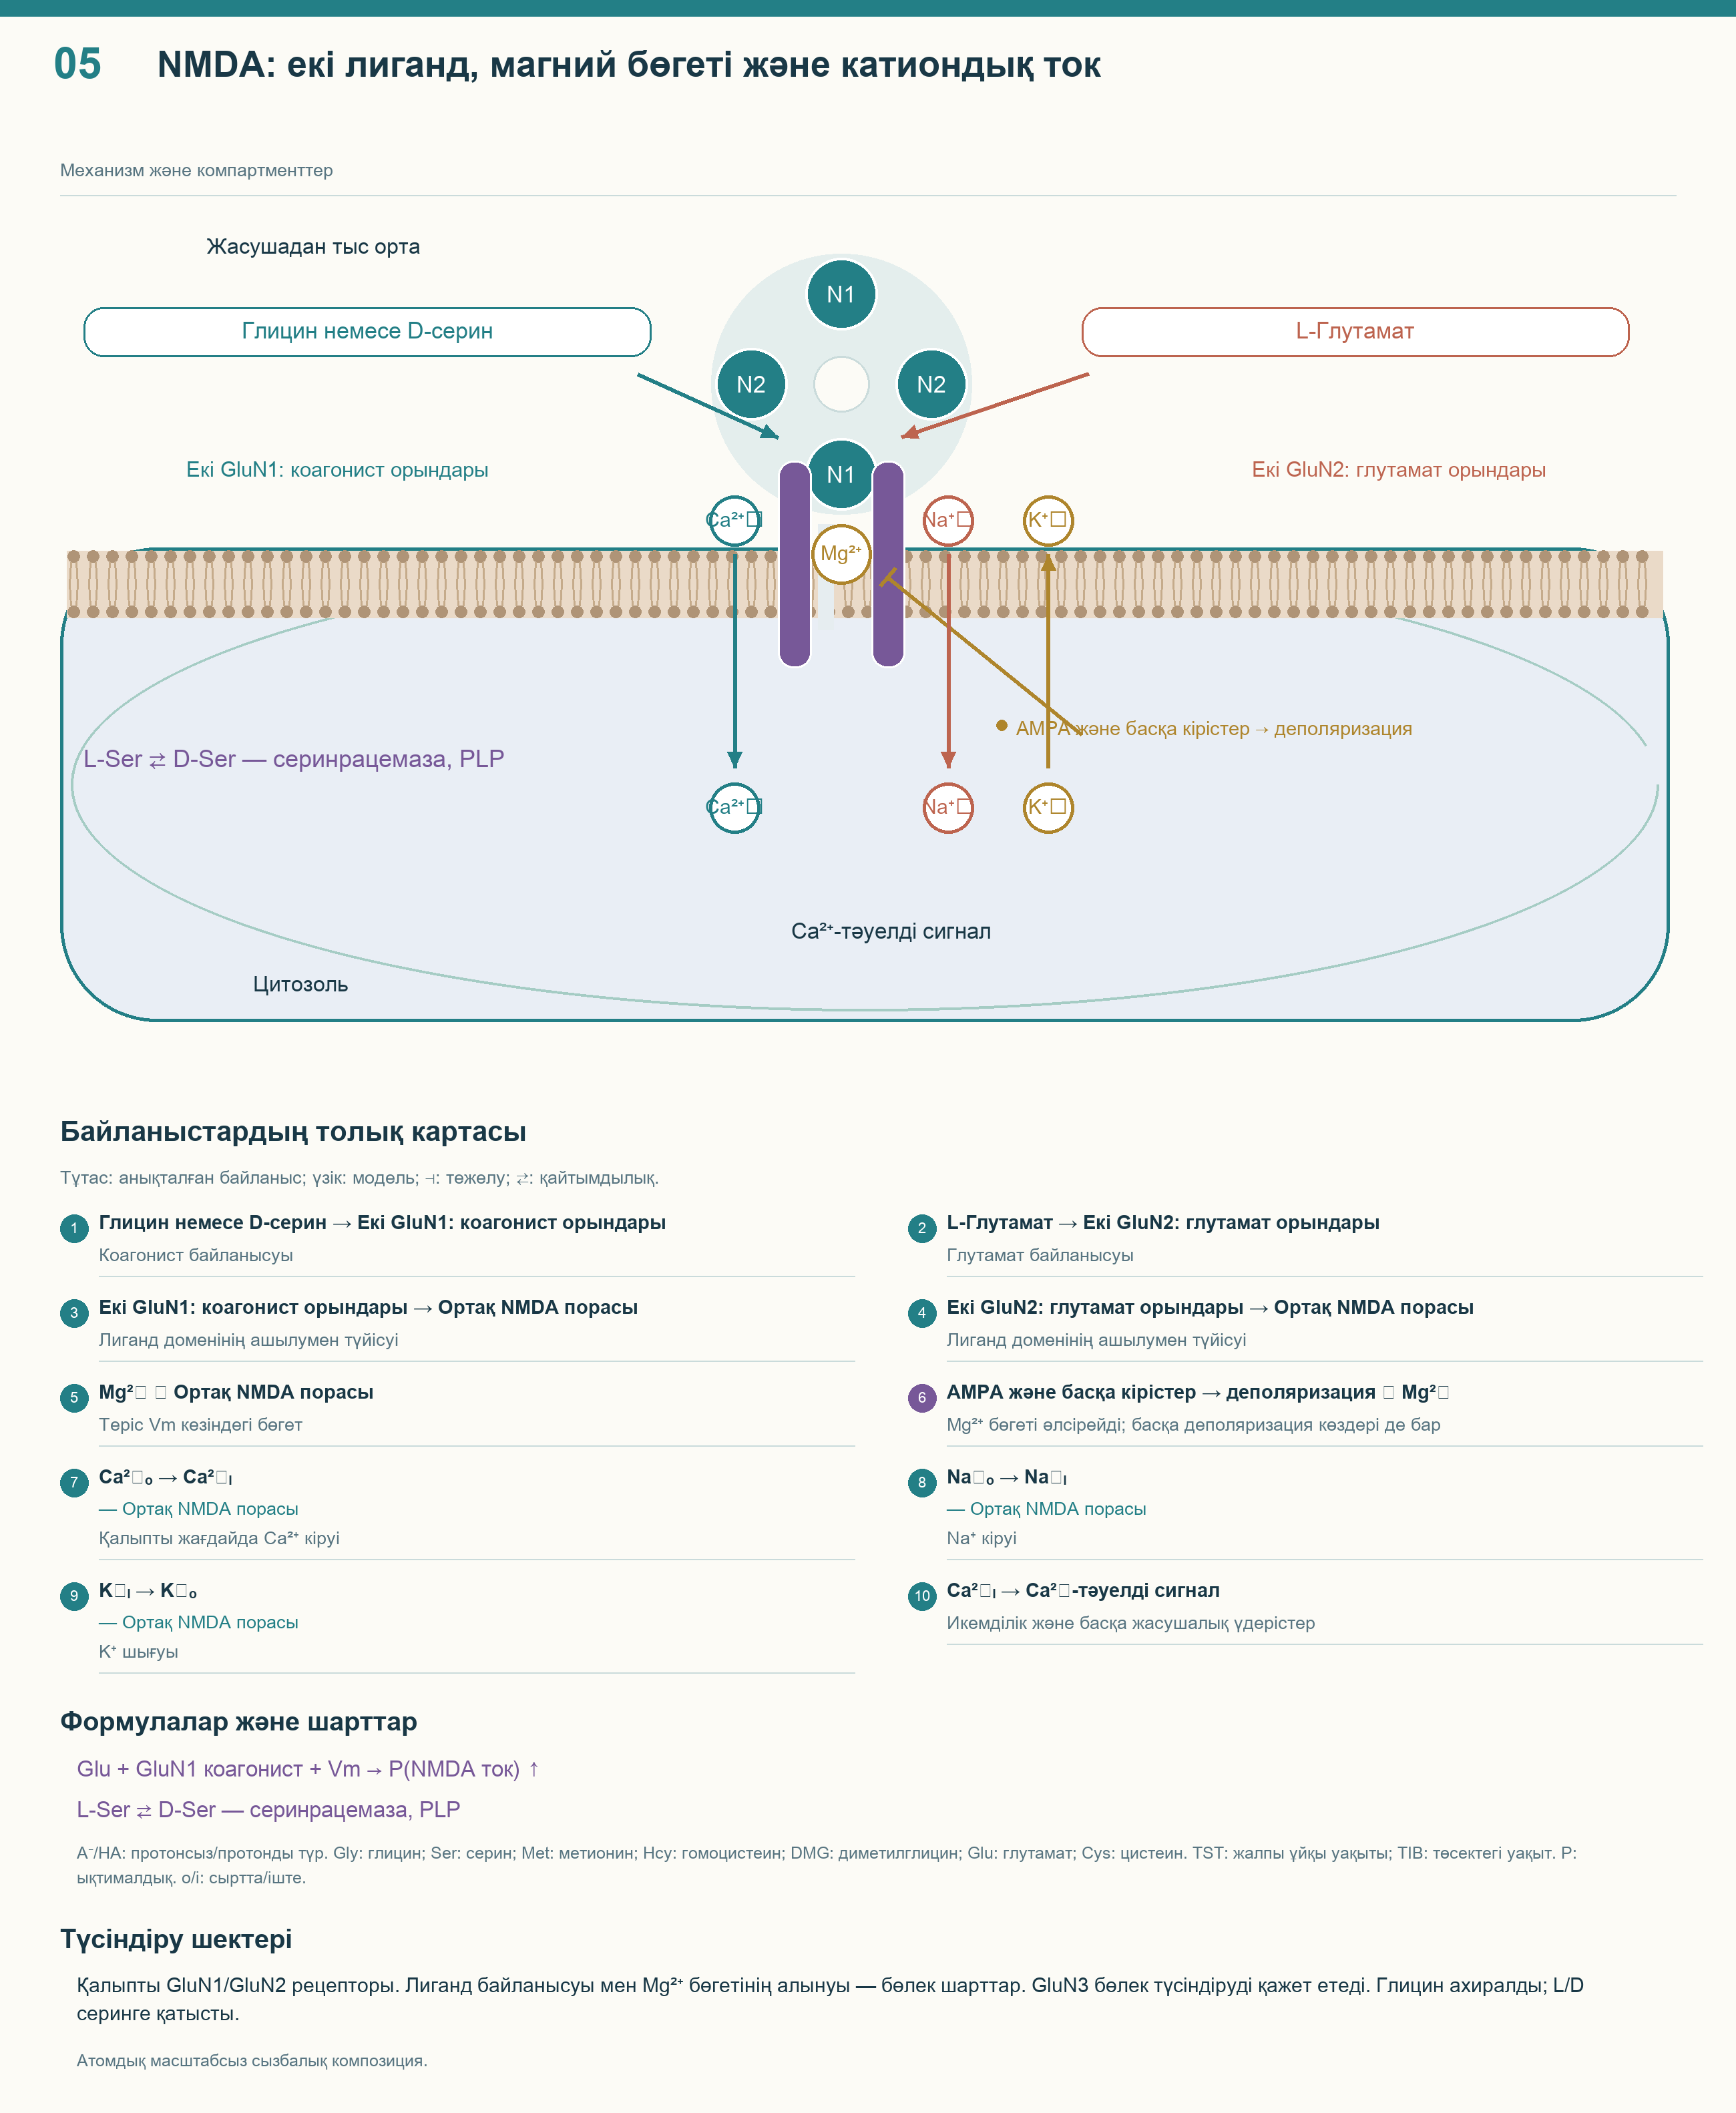
Джонсон мен Ашердің өсірілген тышқан нейрондарындағы классикалық тәжірибелерінде глицин стрихнинге сезімтал GlyR-ден тәуелсіз NMDA жауабын күшейтті. Бұл қоздырғыш арнаның өз коагонисттік талабын анықтауға көмектесті. Физиологиялық Mg²⁺ бар тыныш жасушада екі лигандтың байланысуы үлкен токқа жеткіліксіз, өйткені магний бөгеті Vm-ге тәуелді. AMPA және өзге кірістер жиі беретін деполяризация Na⁺/Ca²⁺ кіруі мен K⁺ шығуын жеңілдетеді.
Глутамат + GluN1 коагонисі + қолайлы Vm → NMDA тогының ықтималдығы артады
Бұл үш субстрат жұмсайтын химиялық реакция емес, шарттардың қызметтік сызбасы. Коагонист қозу уақытын жалғыз анықтамайды және глутамат сигналының қажеттілігін жоймайды. Ca²⁺ кірісі пластика мен жасушаішілік сигналға қатысады, бірақ шамадан тыс не қате орналасқан ағын зақымға ықпал етуі мүмкін. «NMDA-ны күшейту үнемі қауіпсіз» деген де «глицин үнемі тежейді» сияқты дәл емес.
Глицин және D-серин: әмбебап бөліну емес, жергілікті қолжетімділік
D-серин — эндогендік NMDA коагонисі; оны ферментпен жойып, қайта қосқанда жауапты қалпына келтіру тәжірибелері соны көрсетті. Гиппокамп препараттарында D-сериннің синапстық, глициннің кейбір синапстан тыс жауаптарға басым үлесі де табылды. Бұл нақты препараттар, жасушалық орта және стимуляция жағдайлары туралы. Барлық GluN2A тек D-серин, барлық GluN2B тек глицин пайдаланады деген жалпы ереже әр жас пен аймаққа жүрмейді.
Ахирал глициннен айырмашылығы, серинде кеңістіктік конфигурациясы әртүрлі L- және D-түрлер бар. Серинрацемаза L-серинді D-серинге айналдырады; реакция кеміргіш миынан ферментті бөліп алу және молекулалық сипаттау кезінде көрсетілді. Сондықтан «D-серин» биохимиялық мағыналы, ал «D-глицин» мен «L-глицин» екі стандартты молекула емес. Метаболикалық алғышарт L-серинді жергілікті коагонист D-серинмен шартсыз теңестіруге болмайды.
L-Серин ⇄ D-серин — серинрацемаза, пиридоксальфосфат
Серинрацемаза мен серин алмасуы реттелуді нейрондар және глия әрекеттесуімен байланыстырады. Жасушалық көздер, тасымалдаушылар мен изоформалар үлесі өзгеретіндіктен, тіндік орташа концентрациядан коагонист орнының қанығуын анықтау мүмкін емес. Рекомбинанттық EC₅₀ да ұйқы үшін ұнтақ дозасын бермейді. Плазма, жасушааралық сұйықтық және рецептор маңын тасымал, метаболизм мен синапс геометриясы бөліп тұрады.
2.3. GlyT1, GlyT2 және везикулаға жүктеу
GlyT1 мен GlyT2 — Na⁺ және Cl⁻-пен жұптасқан SLC6 тасымалдаушылары. SLC6A9 кодтайтын GlyT1 глия мен кейбір нейрондардағы сыртқы глицинді реттейді. SLC6A5 кодтайтын GlyT2 оны глициндік пресинапстық ұштарға жинауда маңызды. Кейін медиатор бөлінуі везикулаға қаптау мен экзоцитозды қажет етеді; қаннан везикулаға тікелей өту деп бейнелеуге болмайды.
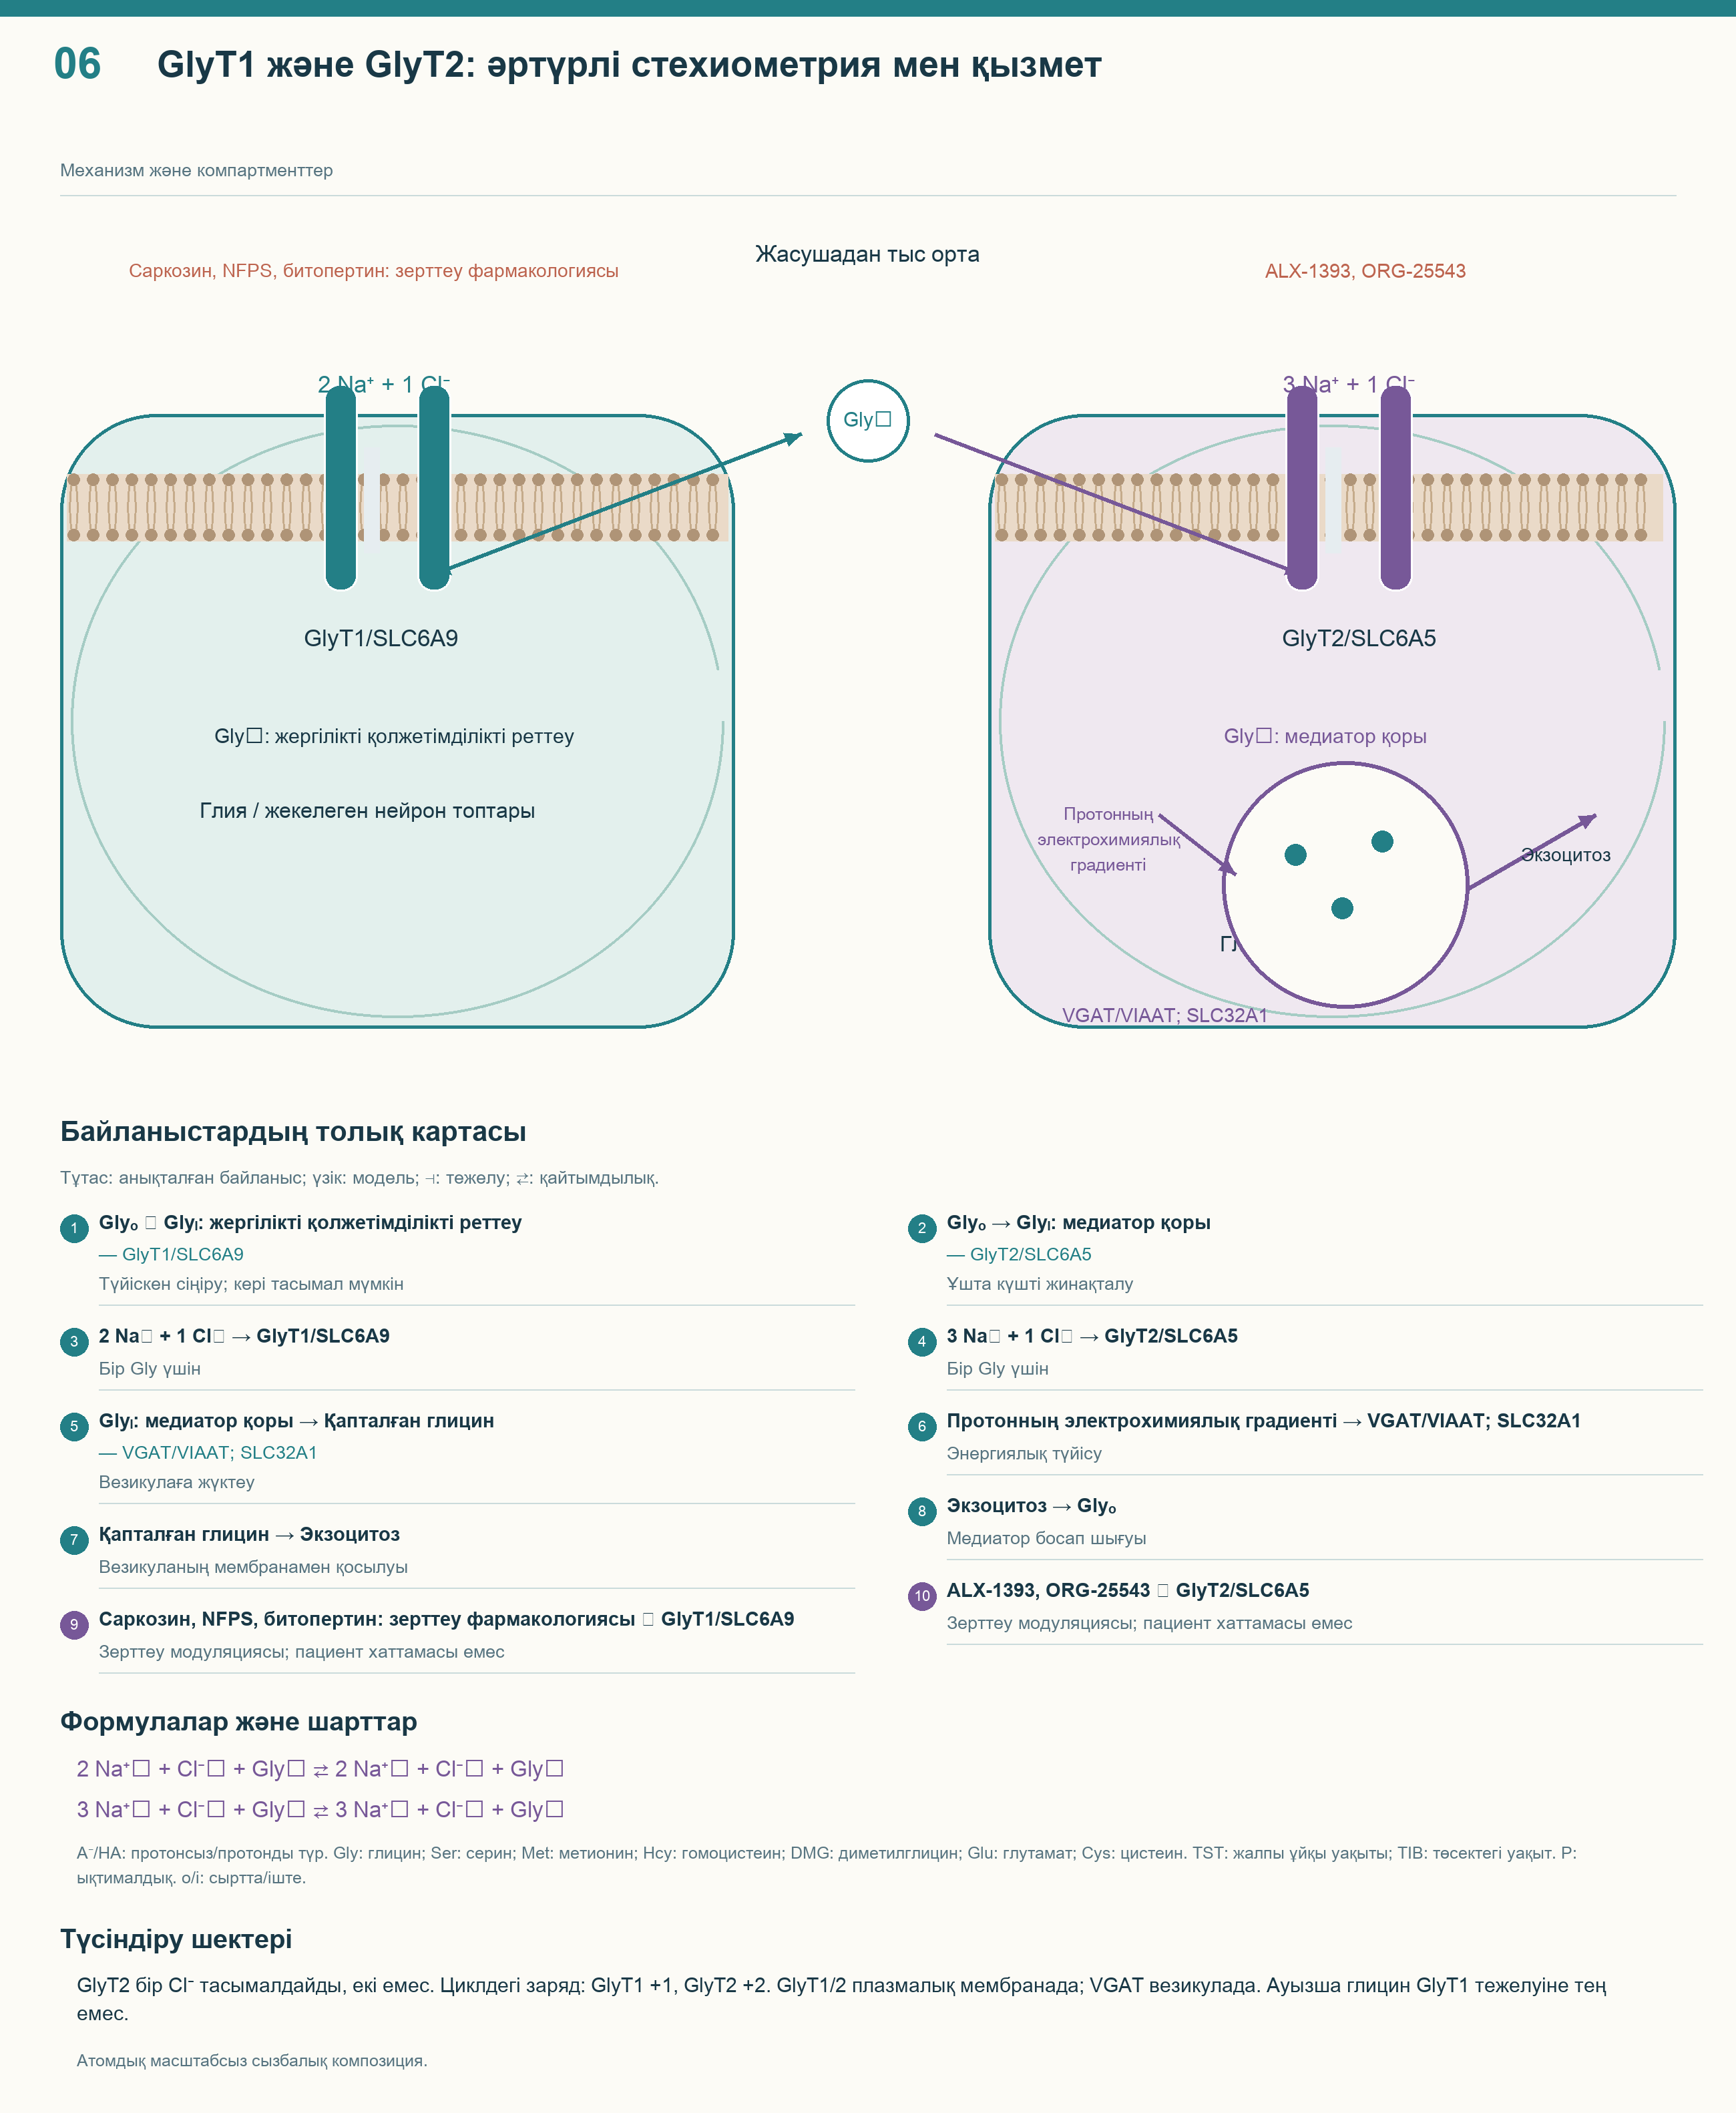
| Қасиет | GlyT1 | GlyT2 |
|---|---|---|
| Ген | SLC6A9 | SLC6A5 |
| Әдеттегі орны | Глия және кейбір нейрондар | Глициндік пресинапстық ұштар |
| Бір глицинге жұптасу | 2 Na⁺ : 1 Cl⁻ : 1 Gly | 3 Na⁺ : 1 Cl⁻ : 1 Gly |
| Негізгі міндет | Жергілікті сыртқы қолжетімділік | Ішкі медиатор қорын жинау |
| Везикуламен байланыс | Сыртқы алмасу арқылы жанама | VGAT/VIAAT, SLC32A1 үшін субстрат |
| Тәжірибелік модуляция | Саркозин, NFPS, битопертин; зерттеу фармакологиясы | ALX-1393, ORG-25543 және зерттеу заттары |
Алғашқы тасымал тәжірибелері GlyT2 үшін екі емес, бір Cl⁻ анықтады. Қосымша Na⁺ GlyT1-ге қарағанда күшті жинақтау градиентін береді. Бағыт концентрациялық және электрлік жағдайларға байланысты; GlyT1 үшін кері тасымал маңызды. «Клиренс» екі ақуыз әрдайым глицинді тек сырттан жояды деген емес.
2 Na⁺ₒ + Cl⁻ₒ + Glyₒ ⇄ 2 Na⁺ᵢ + Cl⁻ᵢ + Glyᵢ — GlyT1
3 Na⁺ₒ + Cl⁻ₒ + Glyₒ ⇄ 3 Na⁺ᵢ + Cl⁻ᵢ + Glyᵢ — GlyT2
Цвиттер-ион тасымалды электрлік бейтарап етпейді: GlyT1 циклі жиынтық +1, GlyT2 циклі +2 заряд өткізеді. VGAT/VIAAT басқа мембранада везикуланың протондық электрохимиялық градиентін пайдаланады. Сондықтан GlyT2 бұзылуы сыртта глицин бар болса да медиатор қорын азайта алады. Тасымалдаушыны тежеу, ішке қоспа қабылдау және NMDA жанындағы глицинді арттыру — үш бөлек араласу.
Битопертин қисынды рецепторлық гипотезаның клиникалық қорытындыға жеткіліксіз екенін көрсетеді. FlashLyte және DayLyte ірі рандомизацияланған қос соқыр зерттеулерінде GlyT1 тежегішін антипсихотикке 24 апта қосу шизофренияның тұрақты негативті симптомдары бойынша негізгі бағалауда плацебодан елеулі артықшылық бермеді. Нәтиже белгілі популяция мен фармакологиялық араласуға қатысты, ұйқы алдындағы глицин сынағы емес. Ол коагонист қолжетімділігінің өзгеруі мен пациентке дәлелденген пайданы ажыратады.
3. Ұйқы және терморегуляция: SCN-нен жылу алмасуға дейін
Ұйқыға өту тері мен ішкі тін температурасының, тамыр тонусының өзгерістерімен қатар жүреді. Супрахиазмалық ядро, SCN, басқа гипоталамус және ми бағаны жүйелерімен әрекеттесіп, осы үдерістердің тәуліктік ұйымдасуына қатысады. Қолайлы жағдайда жылу жоғалту ұйықтауды жеңілдетеді, бірақ ұйқы бір температураға жетумен ғана анықталмайды. Глицин осы реттеудің ықтимал қатысушысы ретінде қызықты; адамдағы әр буынның дәлелі шектеулі.
3.1. SCN тәжірибесі тікелей нені көрсетті
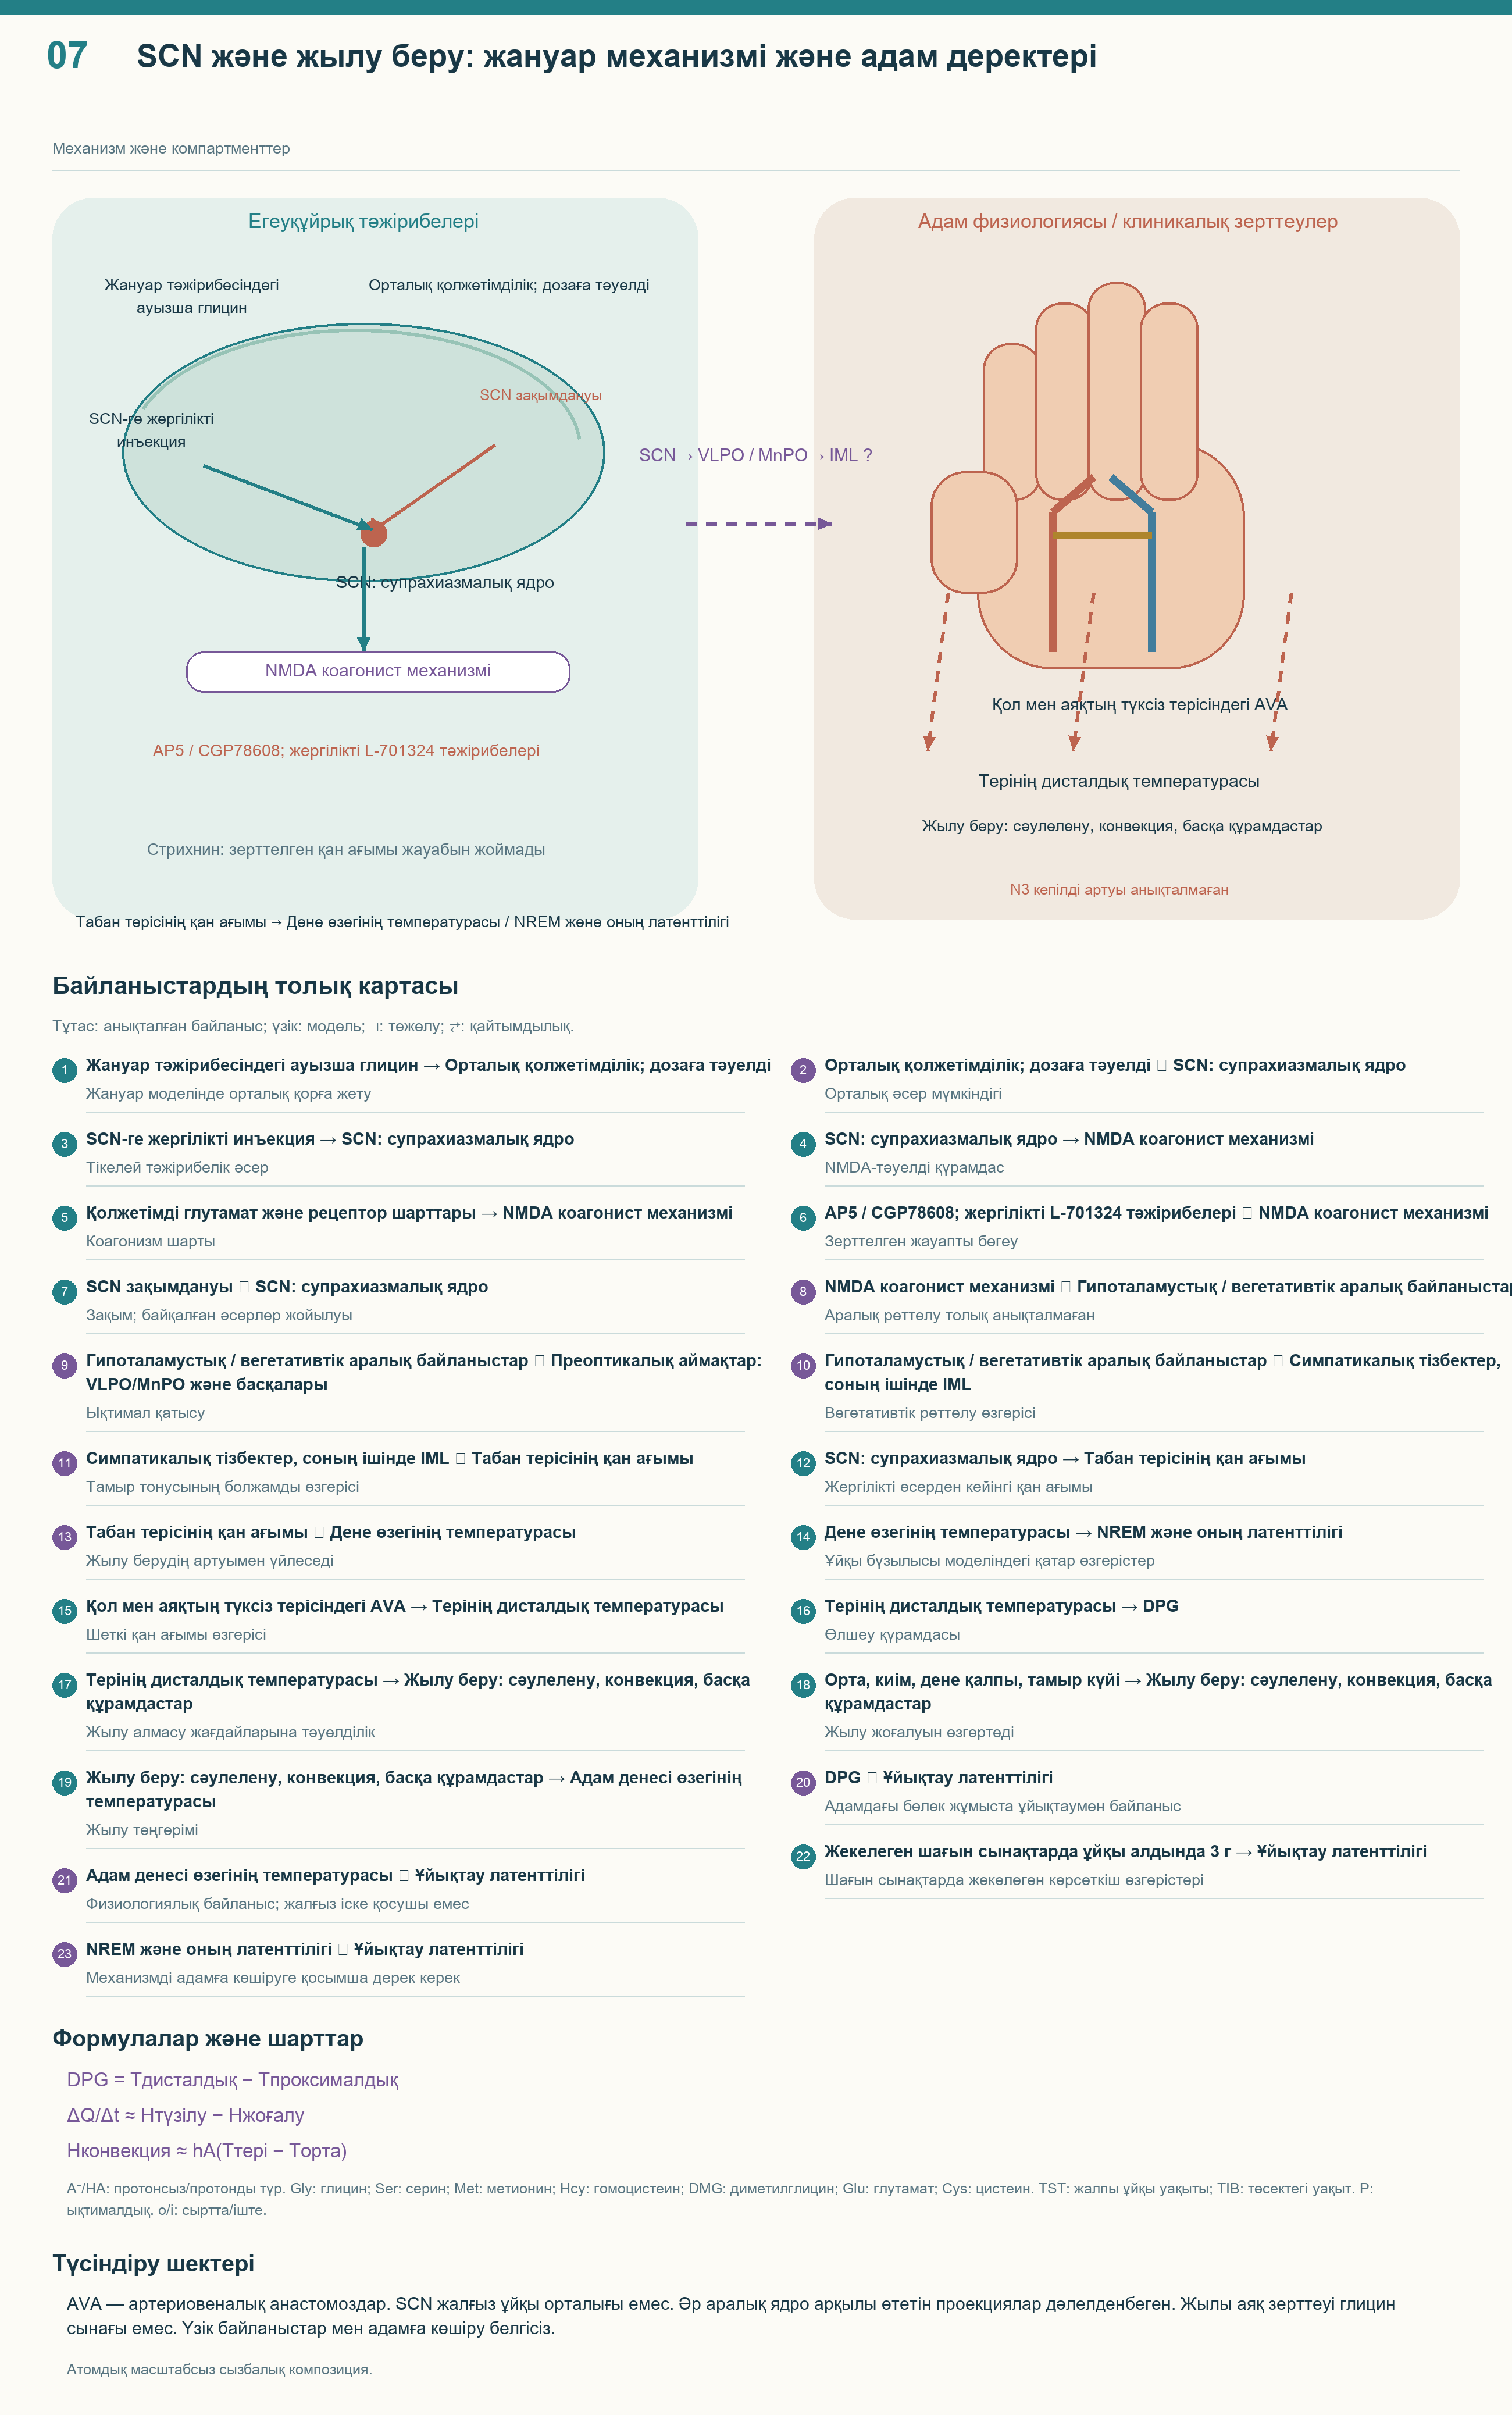
Каваи жұмысы егеуқұйрықтарды, соның ішінде ұйқының жедел бұзылу моделін зерттеді. Ішке глицин беру NREM мен температура өзгерістеріне байланысты болды, орталық енгізу тері қан ағымын зерттеуге мүмкіндік берді. SCN микроинъекциясы табандағы қан ағымын арттырды; ядроны зақымдау байқалған ұйқы және температура әсерлерін жойды. Бұл модельде ядроның рөлін қолдайды, бірақ адамда 3 г-нан кейін рецепторлардың нақты қандай үлесі байланысқанын көрсетпейді.
Фармакологиялық тәжірибелерде NMDA құрамдасына AP5 және CGP78608, GlyR үшін стрихнин, жергілікті коагонист орнына L-701324 қолданылды. Оларды L-689,560 және MK-801 деп ауыстыру тәжірибені бұрмалайды. D-сериннен кейін қан ағымының өсуі коагонисттік механизмге сәйкес келді. Бірақ бұл адамның ұйқысына барлық әсердің «100%» бір ғана жолмен жүретінін дәлелдемейді.
SCN-ді терморегуляция картасына қосуға болады, алайда зерттеу толық анатомиялық маршрутты анықтады деуге болмайды. Нейрон белсенділігі, тамыр жауабы және зақымнан кейін әсердің жоғалуы VLPO, MnPO, IML симпатикалық нейрондарына дейін әр проекцияны белгілемейді. Преоптикалық аймақтар ұйқы мен температурада маңызды, бірақ «глицин → нақты жасуша → нақты аксон → AVA» тізбегіне бөлек дәлел керек. Инфографика аралық вегетативтік каскадты модель ретінде, тікелей зерттелген буындарды бөлек көрсетеді.
3.2. Дисталдық тамырлар, температура градиенті және орта
Артериовеналық анастомоздар кәдімгі капиллярды айналып, артериялық және веналық арналарды жалғайды. Алақан мен табанның түксіз терісінде олар қан ағымы мен жылу өткізуді өзгертуге көмектеседі. Симпатикалық реттеу маңызды, бірақ «ояу кезде үнемі жабық, кез келген ұйқы алдында толық ашық» деген сипаттама тым қатаң. Орта температурасы, қалып, белсенділік және жеке тамыр жауабы өзгереді.
DPG = Tдисталдық − Tпроксималдық
DPG — терінің дисталдық-проксималдық температура айырмасы, °C немесе айырма ретінде K-мен беріледі. Ол алдын ала таңдалған нүктелерден, мысалы қол мен аяқ орташа температурасын тұлғаның проксималдық аймақтарымен салыстырып есептеледі. Терістігі азаюы не оң мәнге жақындауы дисталдық жылынуды білдіруі мүмкін. Нөлден өту ұйқының міндетті диагностикалық шегі емес; бірдей датчик орындарынсыз нәтижелер салыстырылмайды.
Кройхидің жылы аяқ туралы зерттеуі адамдарда тері вазодилатациясын тез ұйықтаумен байланыстырды. Ол 3 г глицинді тексермеді және қоспадан кейін DPG 30–45 минутқа ертерек өзгереді дегенді дәлелдемейді. Мёрфи мен Кэмпбелл де аминқышқыл дозасын емес, ішкі температура төмендеуі мен ұйқы басталуын қарастырды. Бұл еңбектер физиологиялық контекст береді, SCN тәжірибесінен дербес қалады.
ΔQ/Δt ≈ Hтүзілу − Hжоғалту
Hконвекция ≈ hA(Tтері − Tорта)
Бұл ықшам теңдеулер жылу балансы мен жоғалтудың бір құрамдасын сипаттайды, глицин зерттеуінің нәтижесі емес. Q — жинақталған жылу, H — түзілу не жоғалту қуаты, h — конвективтік жылу алмасу коэффициенті, A — бет ауданы. Сәулелену, булану, киім және беттермен жанасу өз үлестерін қосады. Жылы тері ішкі тіннің салқындауын тек тиісті градиентте жеңілдетеді; әр адамда ядро температурасының 0,2–0,5 °C төмендеуін уәде етуге болмайды.
3.3. Температура және циркадтық ырғақ — байланысты, бірақ бөлек мақсаттар
SCN тәуліктік мінез-құлықты ұйымдастырады, алайда жедел тамыр жауабы сағат фазасын міндетті жылжытпайды. Ұйықтау өзгерісі джетлагтың, ауысымдық жұмыстың немесе мелатонин секрециясының түзелгенін дәлелдемейді. Кейбір жануар тәжірибелері ырғақ көрсеткіштерін де қарастырды, бірақ адам ырғақтарын кепілді қайта құруға біріктіруге болмайды. Бір кешті жеңілдету мен тұрақты ұйқы уақыты бұзылысын емдеуді ажырату қажет.
4. Ұйқы құрылымы және келесі күнгі күй
Полисомнография басталу уақытын, сатылар ауысуын, ұйықтағаннан кейін оянуды және түнгі таралуды жеке өлшейді. Оянудың субъективті жеңілдігі ЭЭГ-ні алмастырмайды, бір көрсеткіштің өзгеруі бүкіл құрылымның жақсаруы емес. Шағын зерттеулер бұл өлшемдерді бөлек қарастыруға негіз береді. Дәрімен салыстыруда да нақты зат, доза және популяция керек; «әр ұйықтатқыш бұзады, әр аминқышқыл қалпына келтіреді» деген қарама-қарсылық жарамайды.
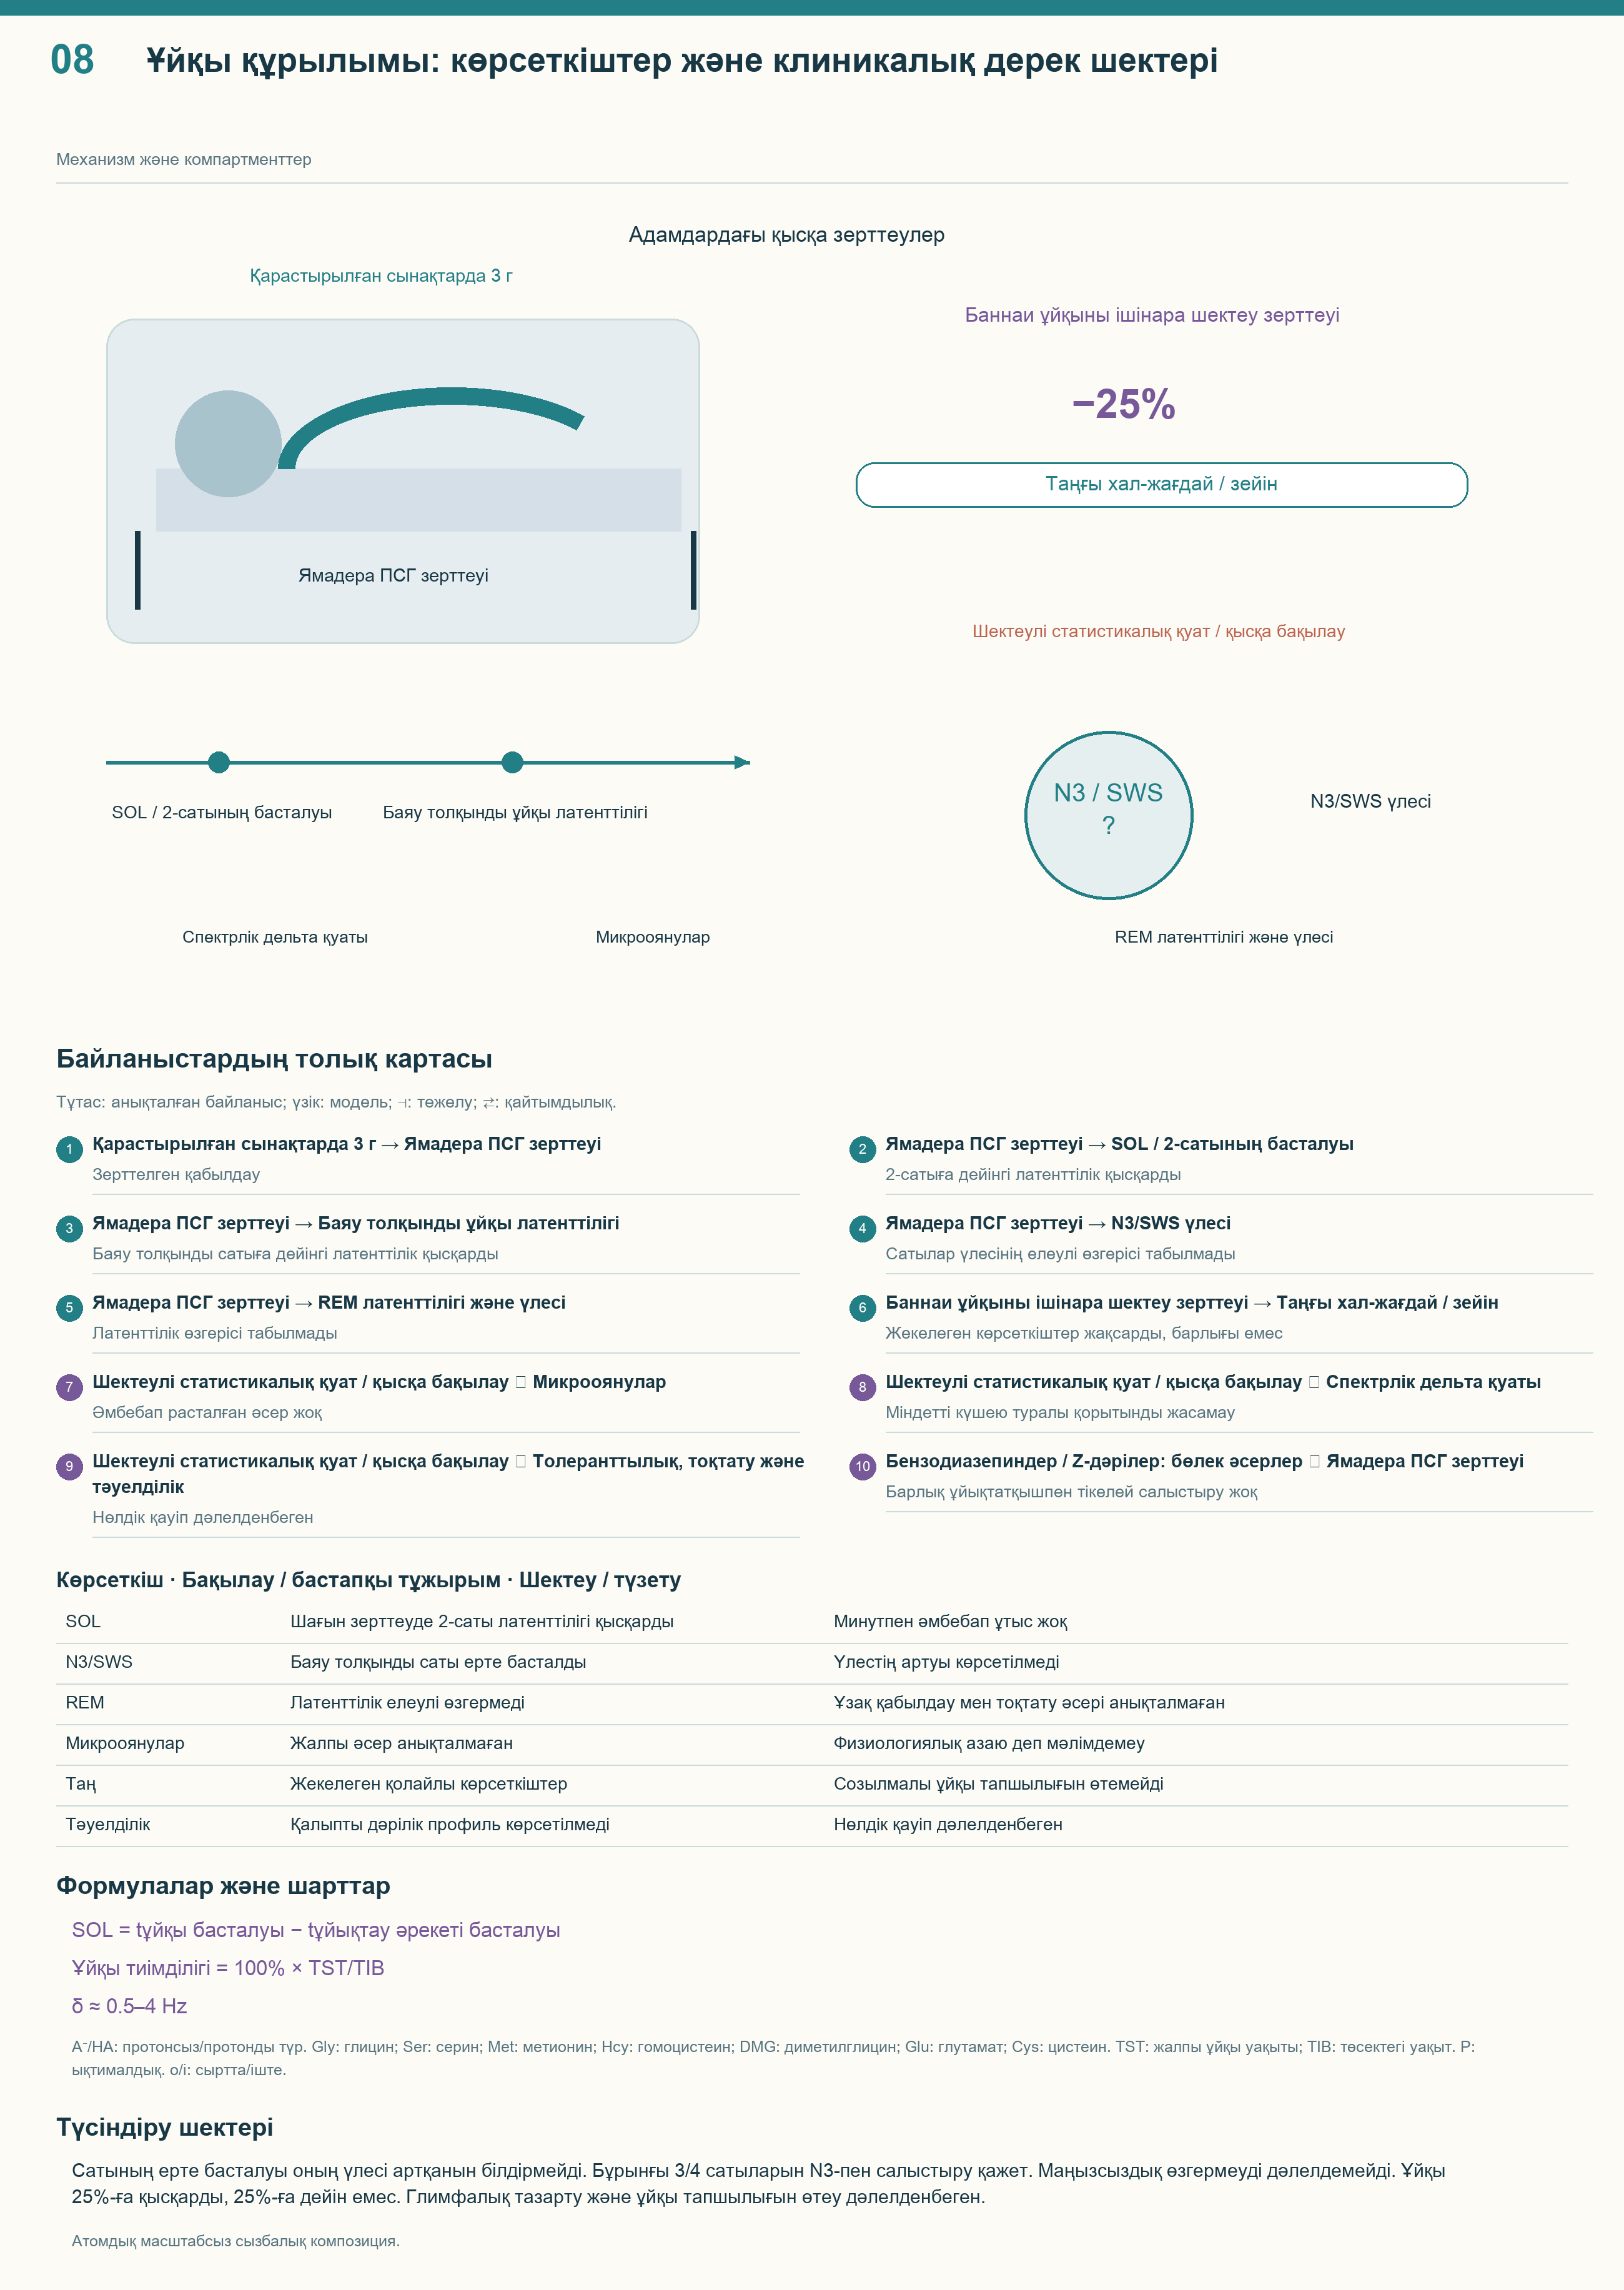
| Көрсеткіш | Глицин туралы дерек | Қорытынды шегі |
|---|---|---|
| Латенттік, SOL | Шағын PSG-де 2-сатыға дейінгі уақыт қысқарды | Барлығына 15–30 минут қысқару анықталмаған |
| Баяу толқынды ұйқы | Сол жіктемедегі 3-саты ертерек пайда болды | Ертерек басталу N3 жалпы үлесінің өсуі емес |
| Саты үлестері | Таралуда елеулі өзгеріс табылмады | Барлық доза мен курста өзгермейтінін дәлелдемейді |
| REM | Тәжірибеде латенттік өзгермеді | Ұзақ курстан кейінгі REM қайтуы анықталмаған |
| Таңғы шаршау мен зейін | Кейбір шағын жұмыстар жеке көрсеткіштерді жақсартты | Созылмалы ұйқы тапшылығы өтелгені дәлелденбеген |
| Микрооянулар, дельта қуаты | Әмбебап әсер көрсетілмеген | Дәлелденген глимфалық әсер телінбейді |
| Толеранттық және тәуелділік | Бензодиазепиннің әдеттегі бейіні көрсетілмеді | Математикалық нөлдік тәуекелге дерек жеткіліксіз |
4.1. Латенттік және алғашқы цикл: ертерек жету көбірек уақыт емес
Ямадера ұйқысына көңілі толмайтын шағын топта субъективті бағалау мен PSG-ді біріктірді. 3 г кезінде сол кездегі жіктемеде алғашқы 2-сатыға және баяу толқынды сатыға дейінгі кідіріс қысқарды. Түн бойғы сатылардың салыстырмалы ұзақтығы елеулі өзгермеді. Бір гипнограммадағы тереңірек ерте ұйқы N3 өсуінің топтық дәлелі емес.
Ескі 3 және 4 сатыларын қазіргі N3-пен абайлап салыстыру керек. Баяу толқынды латенттік алғаш пайда болу уақытын, N3 пайызы бүкіл кезеңдегі үлесті сипаттайды. Шамамен 0,5–4 Гц аралығындағы спектрлік дельта белсенділігі — әдіске тәуелді бөлек өлшем. Біреуі жақсарса, қалған екеуінде бірдей өзгеріс бар деуге болмайды.
SOL = таңдалған өлшем бойынша алғашқы ұйқы уақыты − ұйықтау әрекетінің басталуы
Ұйқы тиімділігі = 100% × жалпы ұйқы уақыты / төсектегі уақыт
Екеуі де алдын ала бекітілген өлшеу ережесін қажет етеді. Күнделіктегі SOL алғашқы тіркелген 2-саты латенттігінен, субъективті тиімділік PSG бағасынан өзгеше болуы мүмкін. Сондықтан объективті шағын өзгерісте адам жақсаруды сезіне алады. Салыстырмалы әдіссіз әр адамға бірдей минуттық ұтыс берілмейді.
Баяу толқынды ұйқының ми қалпына келуімен байланысы — жеке зерттеу саласы. Ол глицин адамда β-амилоид немесе тауды көбірек шығарады деген қорытынды бермейді. Қарастырылған сынақтар мұндай клиникалық нәтижені өлшемеді. «Түнгі клиренсті күшейтіп, нейродегенерацияны алдын алу» олардың дәлелінен тыс.
4.2. REM және ұйықтатқыштармен салыстыру
Шағын тәжірибеде REM өзгерісінің табылмауы пайдалы, бірақ ми көпірінің қандай нейроны әсерсіз қалғанын көрсетпейді. LDT/PPT және басқа құрылымдар ұйқыны ұйымдастырады; олардың белсенділігін саты кестесінен қалпына келтіру мүмкін емес. Эмоциялық өңдеу, процедуралық жады және түс көрудің сақталуы бөлек өлшенуі керек. «Кез келген режимде REM толық сақталады» зерттеуден күшті қорытынды.
Бензодиазепиндер мен Z-препараттардың сатыға, қалдық ұйқышылдыққа және жағымсыз нәтижеге ықпалы әртүрлі. Зат, шығарылу уақыты, доза және пациент ерекшелігі маңызды. Бұл глицин зерттеулері барлық дәріге қарсы толық тікелей артықшылық сынақтары болмады. Кесте клиникалық сұрақтарды сақтайды, глицинді әр жолда жеңімпаз етпейді.
4.3. Ішінара шектеу және күндізгі жұмыс қабілеті
Баннаи тәжірибесінде төсектегі уақыт әдеттегіден 25%-ға қысқарды: шамамен 7,3-тен 5,5 сағатқа. Бұл қалыпты ұйқының 25%-ына дейін азайту емес. Жеті ер адам рандомизацияланған бір жақты соқыр айқаспалы дизайнда талданды, бірнеше түнде 3 г ұйқыға 30 минут қалғанда берілді. Шағын топ пен қысқа бақылау созылмалы ұйқысыздыққа және түрлі клиникалық популяцияға көшіруді шектейді.
Авторлар кей уақыттарда психомоторлық қырағылықтың жақсаруы мен шаршаудың азаюын тапты. Субъективті ұйқышылдық нәтижесі анық емес, өзгерістердің бәрі үшінші күнге сақталмады. Бұл зейін қатесін толық жою не барлық танымдық қызметті жақсарту емес. «Миды салқындатып, регенерацияны жеделдету» немесе әмбебап қысқа жартылай шығарылу механизмі де дәлелденбеді.
| Адам зерттеуі | Өлшенген нәтиже | Түсіндіру |
|---|---|---|
| Инагава айқаспалы зерттеуі | Кешкі 3 г-нан кейінгі субъективті әсер | Таңғы бағалар терең ұйқы өсуінің PSG дәлелі емес |
| Ямадера PSG зерттеуі | Саты басталуы, құрылым, күндізгі өлшемдер | Латенттік өзгерісін өзгермеген саты үлестерінен ажырату |
| Баннаи ішінара шектеуі | Шаршау, ұйқышылдық, қырағылық | Шағын қысқа тәжірибе, жеткілікті ұйқының орны емес |
Еңбектер көбіне аминқышқыл өндірушісі қатысқан шағын бағдарламаға тиесілі. Бұл нәтижені жоққа шығармайды, бірақ тәуелсіз қайталауды маңызды етеді. Бір бағдарламаға жақын бірнеше жарияланым көптеген ірі тәуелсіз сынаққа тең емес. Практикалық нәтиже — кей көрсеткіштерге ықтимал пайда және оның көлемі, тұрақтылығы мен қолданылуына қатысты белгісіздік.
5. Жүйелік алмасу: глутатион, конъюгация және метил топтары
Глицин құрылымдық ақуыз, пурин, порфирин, креатин және бірқатар конъюгат үшін қажет. Бұл оны медиатор қорынан бөлек жалпы көміртек пен азот алмасуына қосады. GSH синтезі, ацилглицин түзілуі және GNMT үш бағытты көрсетеді. Олардың болуы биохимиялық қажеттілікті дәлелдейді, артық субстраттың міндетті пайдасын емес.
5.1. Глутатион синтезінің екі сатысы
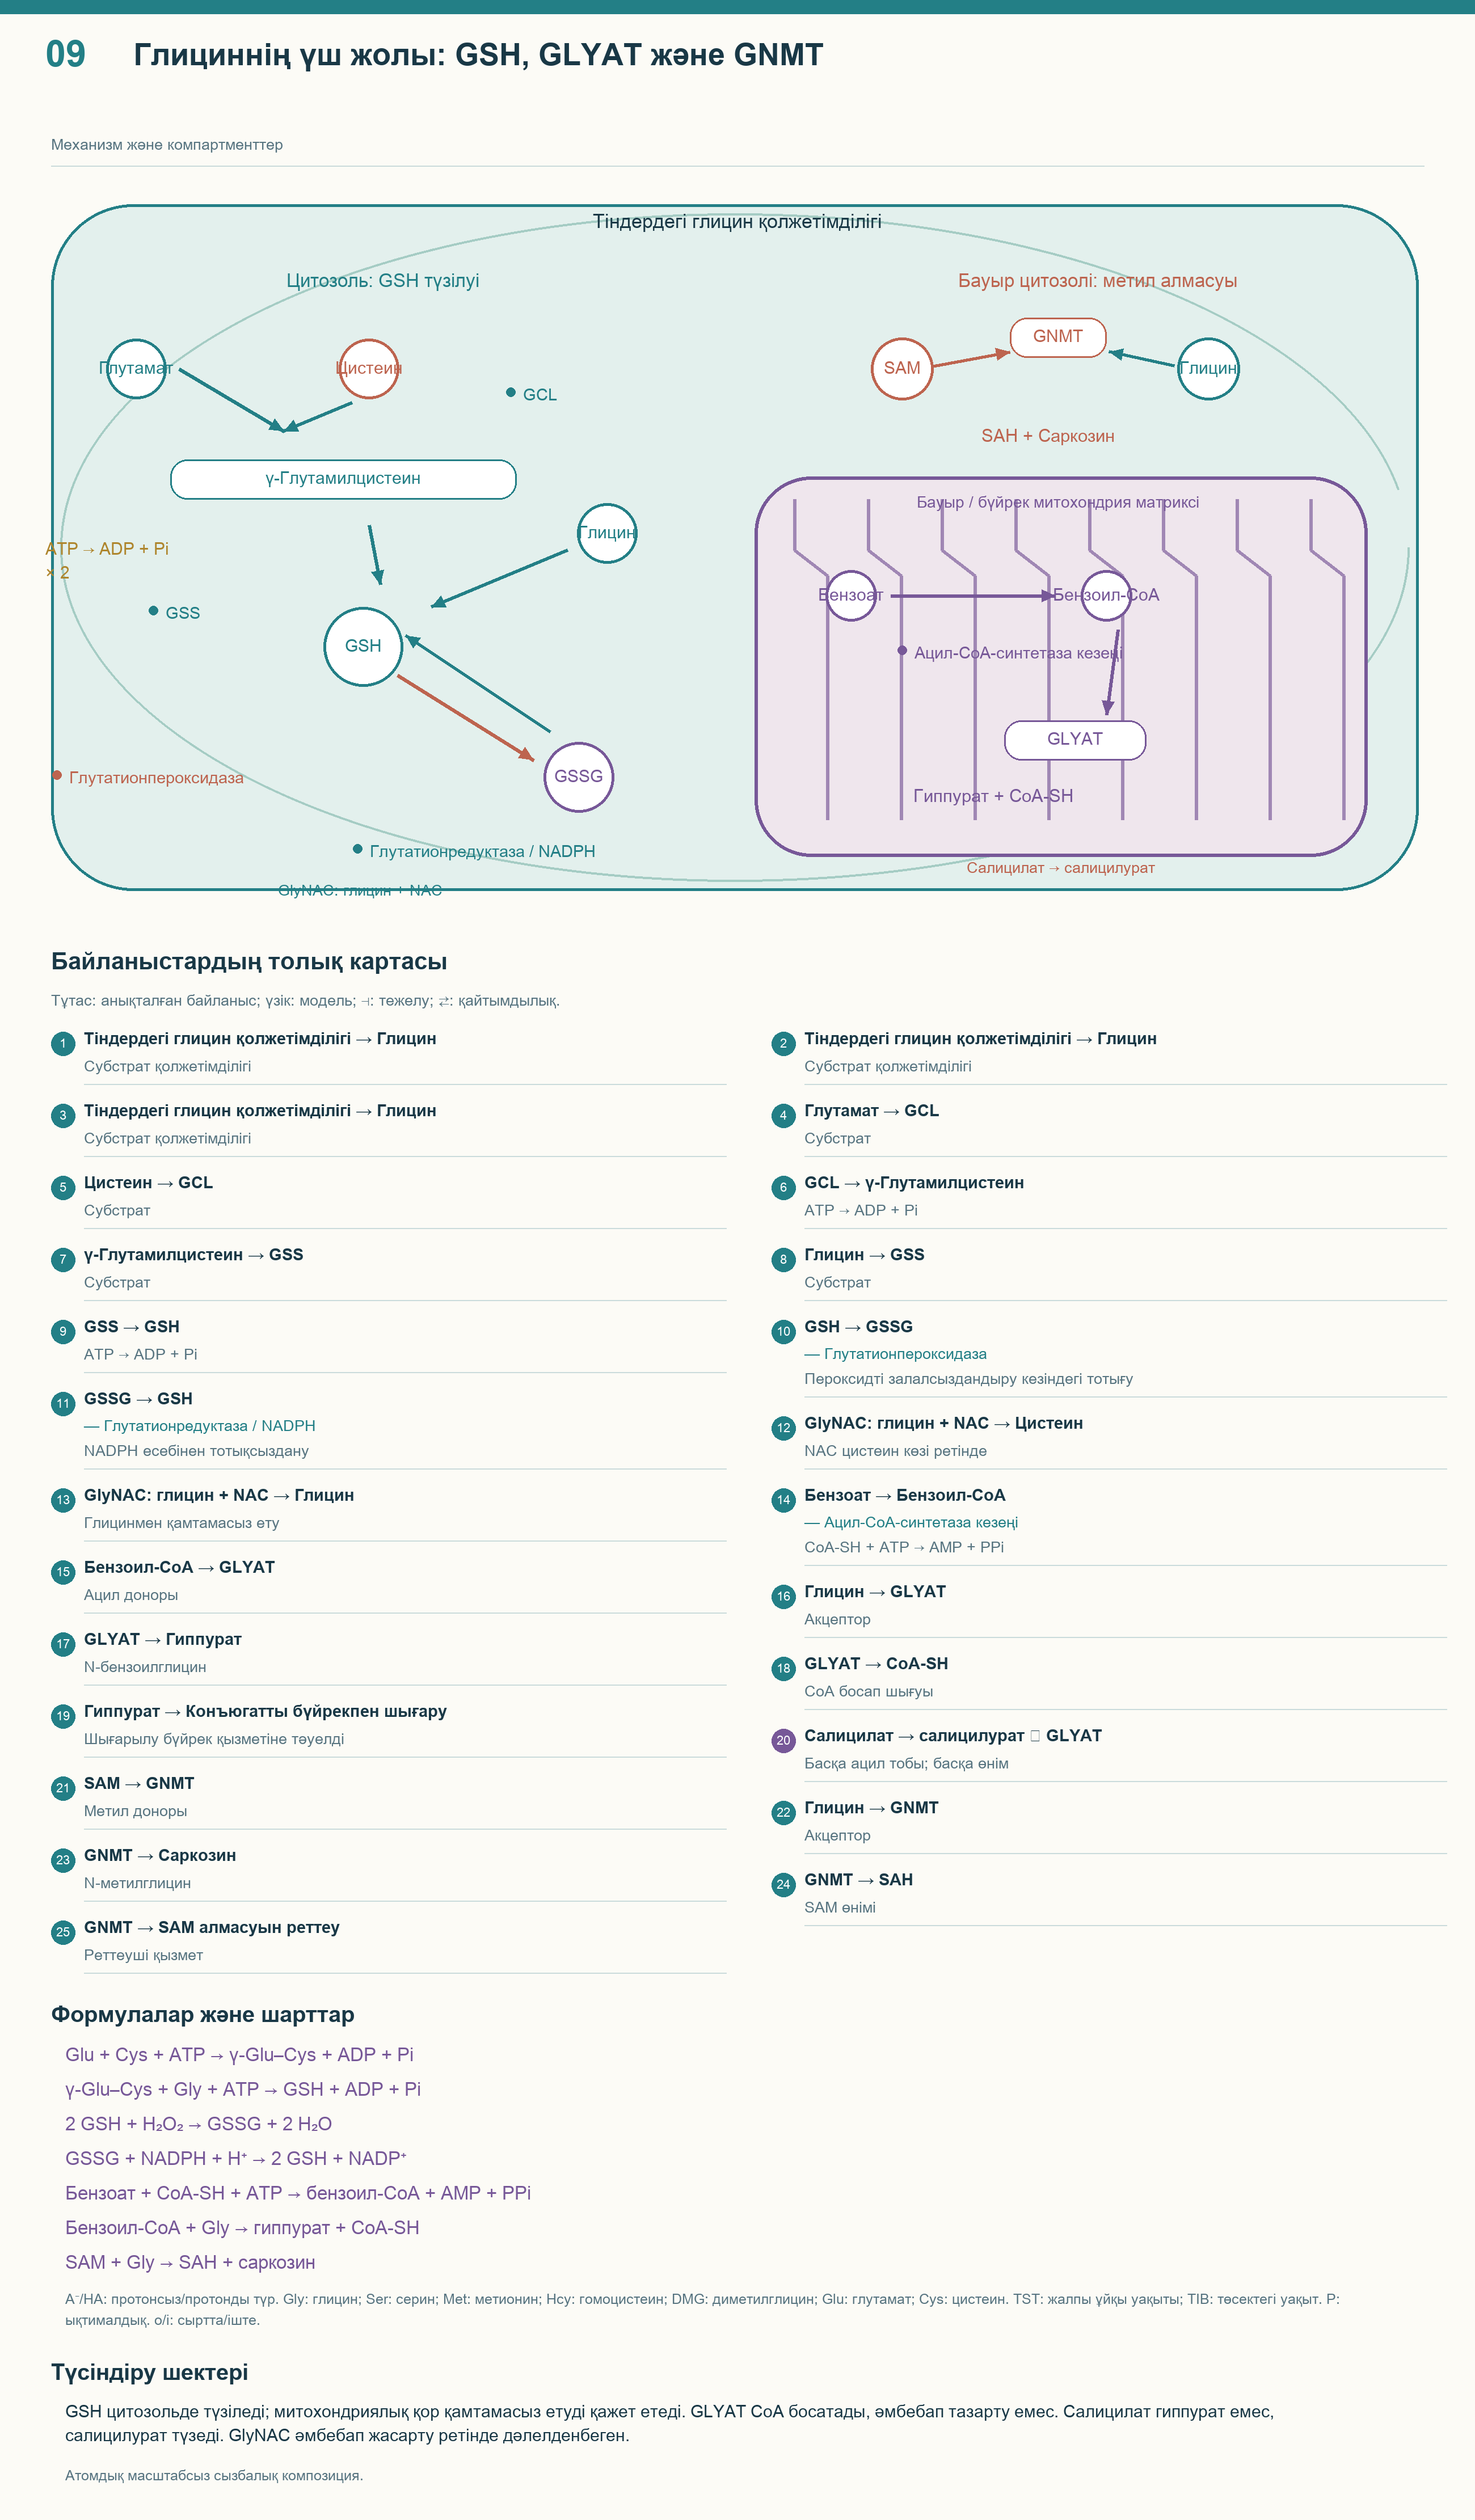
Тотықсызданған GSH — γ-глутамилцистеинилглицин трипептиді. GCL глутамат пен цистеинді біріктіреді, GSS кейін глицинді қосады. Екі саты ATP жұмсайды, көбіне цитозольде жүреді. Митохондрия қорғанысының өз қорын қамтамасыз ету керек; барлық GSH автоматты түрде митохондрияда синтезделеді деп көрсету дұрыс емес.
Глутамат + цистеин + ATP → γ-глутамилцистеин + ADP + Pi — GCL
γ-Глутамилцистеин + глицин + ATP → GSH + ADP + Pi — GSS
ATP және ADP — аденозинтрифосфат пен аденозиндифосфат, Pi — бейорганикалық фосфат. Бір трипептидке екі ATP → ADP реакциясы жұмсалады. Бұл синтез құны тотыққан глутатионды кейін қалпына келтіруден бөлек. Глицин көп болса да үш аминқышқыл мен белсенді ферменттер қажет.
2 GSH + H₂O₂ → GSSG + 2 H₂O — глутатионпероксидаза
GSSG + NADPH + H⁺ → 2 GSH + NADP⁺ — глутатионредуктаза
GSSG — екі глутатион қалдығының дисульфидтік түрі. NADPH GSH-ты қайта алу үшін тотықсыздандырғыш эквиваленттер береді; цикл жаңа трипептид құрастырмайды. Түрлердің арақатынасы компартмент пен өлшеуге тәуелді. Жалпы GSH, синтез жылдамдығы және редокс қатынасы әртүрлі сұраққа жауап береді.
Цистеин жиі шектеуші субстрат, бірақ кейде глицин де шектейді. Бұл глицин және цистеин көзі N-ацетилцистеиннен тұратын GlyNAC-ты зерттеуге негіз. Барлық қартаюда, диабетте не қабынуда бірдей қос тапшылық бар деуге болмайды. Жеке салыстыру тобынсыз комбинация әсері тек глицинге телінбейді.
5.2. GlyNAC: механизм және әркелкі клиникалық нәтижелер
Секхардың ерте зерттеуі егде адамдарда глутатион синтезін изотоп әдісімен өлшеді. Алғышарттарды қысқа бірге толықтырғанда эритроцит GSH-ы мен тотығу стрессі өзгерді. Кейінгі пилот бақылауды және метаболикалық-функционалдық нәтижелерді кеңейтті. Олар субстрат тапшылығын зерттеуді қолдайды, бірақ бөлек салыстырылмаса, жалғыз NAC міндетті жұмыс істемейді деп дәлелдемейді.
Кумар тобының рандомизацияланған сынағында 24 егде қатысушы 16 аптаға GlyNAC не аланин плацебосына бөлінді. Бірқатар биохимиялық және функционалдық көрсеткіш жақсарды, жас топ қосымша бағдар болды. Бұл тұжырымдаманы тексеру масштабы, өмірді ұзарту не жалпы «қартаюды кері қайтару» дәлелі емес. Көп нәтижелер мен қосымша талдаулар ірі сынақта расталуы керек.
114 дені сау егде еріктінің басқа рандомизацияланған жұмысында екі апта GlyNAC негізгі жалпы глутатионды плацебодан жақсы өзгертпеді. Бастапқы көрсеткіші қолайсыз топты кейін бөлгенде ықтимал жауап табылды. Доза, мерзім және қатысушылар өзгеше, сондықтан барлық гипотеза теріске шықпайды. Бірақ барлық сау адамға бірдей пайда уәдесі шектеледі.
Практикада «антиоксидант» сөзінен гөрі бастапқы жағдай мен клиникалық нәтиже маңызды. Липид пероксидациясы маркерінің өзгерісі инфаркт азаюына, жақсы ұйқыға не өлімнің азаюына тең емес. Қалыпты қамтамасыз етілу жауапты шектеуі мүмкін, тін қоры бір қан концентрациясына толық сыймайды. GlyNAC нақты шарттардағы зерттелетін араласу болып қалады, механизмі мен дәлелденген пайдасы ажыратылады.
5.3. GLYAT: гиппурат және CoA босатылуы
Глицинмен конъюгация бауыр мен бүйректе кей органикалық қышқылдарды өңдейді. Бензоат алдымен бензоил-CoA-ға белсендіріледі, GLYAT ацил тобын глицинге береді. CoA-SH босайды, гиппурат несеппен шығарылуы мүмкін. Фермент нұсқалары мен екі субстрат жылдамдыққа әсер етеді, сондықтан әр адамға бір «детоксикация қуатын» белгілеуге болмайды.
Бензоат + CoA-SH + ATP → бензоил-CoA + AMP + PPi — ацил-CoA-синтетаза сатысы
Бензоил-CoA + глицин → гиппурат + CoA-SH — GLYAT
CoA-SH — бос коэнзим A, AMP — аденозинмонофосфат, PPi — пирофосфат. Белсендіруде ATP AMP-ке ыдырайды, энергетикасы GSH-тағы ATP → ADP-ден бөлек. ACSM2B тиісті субстраттарды белсендіруге қатысады, бірақ барлық қышқылды бір изоформаға тіреуге болмайды. Салицилат гиппурат емес, салицилурат береді: өнім бастапқы ацилге тәуелді.
Шығарылу бүйрекке, оның ішінде түтікшелік тасымалға тәуелді. Гиппурат үнемі дереу және салдарсыз жоғалады деп айту дұрыс емес. Ацил-CoA бұзылысы мен бос CoA-ның байланысуы кей жағдайларда маңызды, алайда кәдімгі бензоат консерванты қорды азайтады деген дәлел емес. Биохимиялық жол тағамдық қоспа, аспирин немесе кез келген токсиннен «тазарту» үшін глицин қабылдауды ұсынбайды.
5.4. GNMT және метил алмасуын реттеу
Метионин S-аденозилметиониннің, SAM-ның алғышарты. Көп метилтрансфераза оның тобын пайдаланып, S-аденозилгомоцистеин SAH түзеді. GNMT метилді глицинге өткізіп саркозин береді. Бұл әсіресе бауырдағы SAM қорын реттейді, бірақ өнімдердің кейінгі алмасуынсыз жай артық метилді шығару емес.
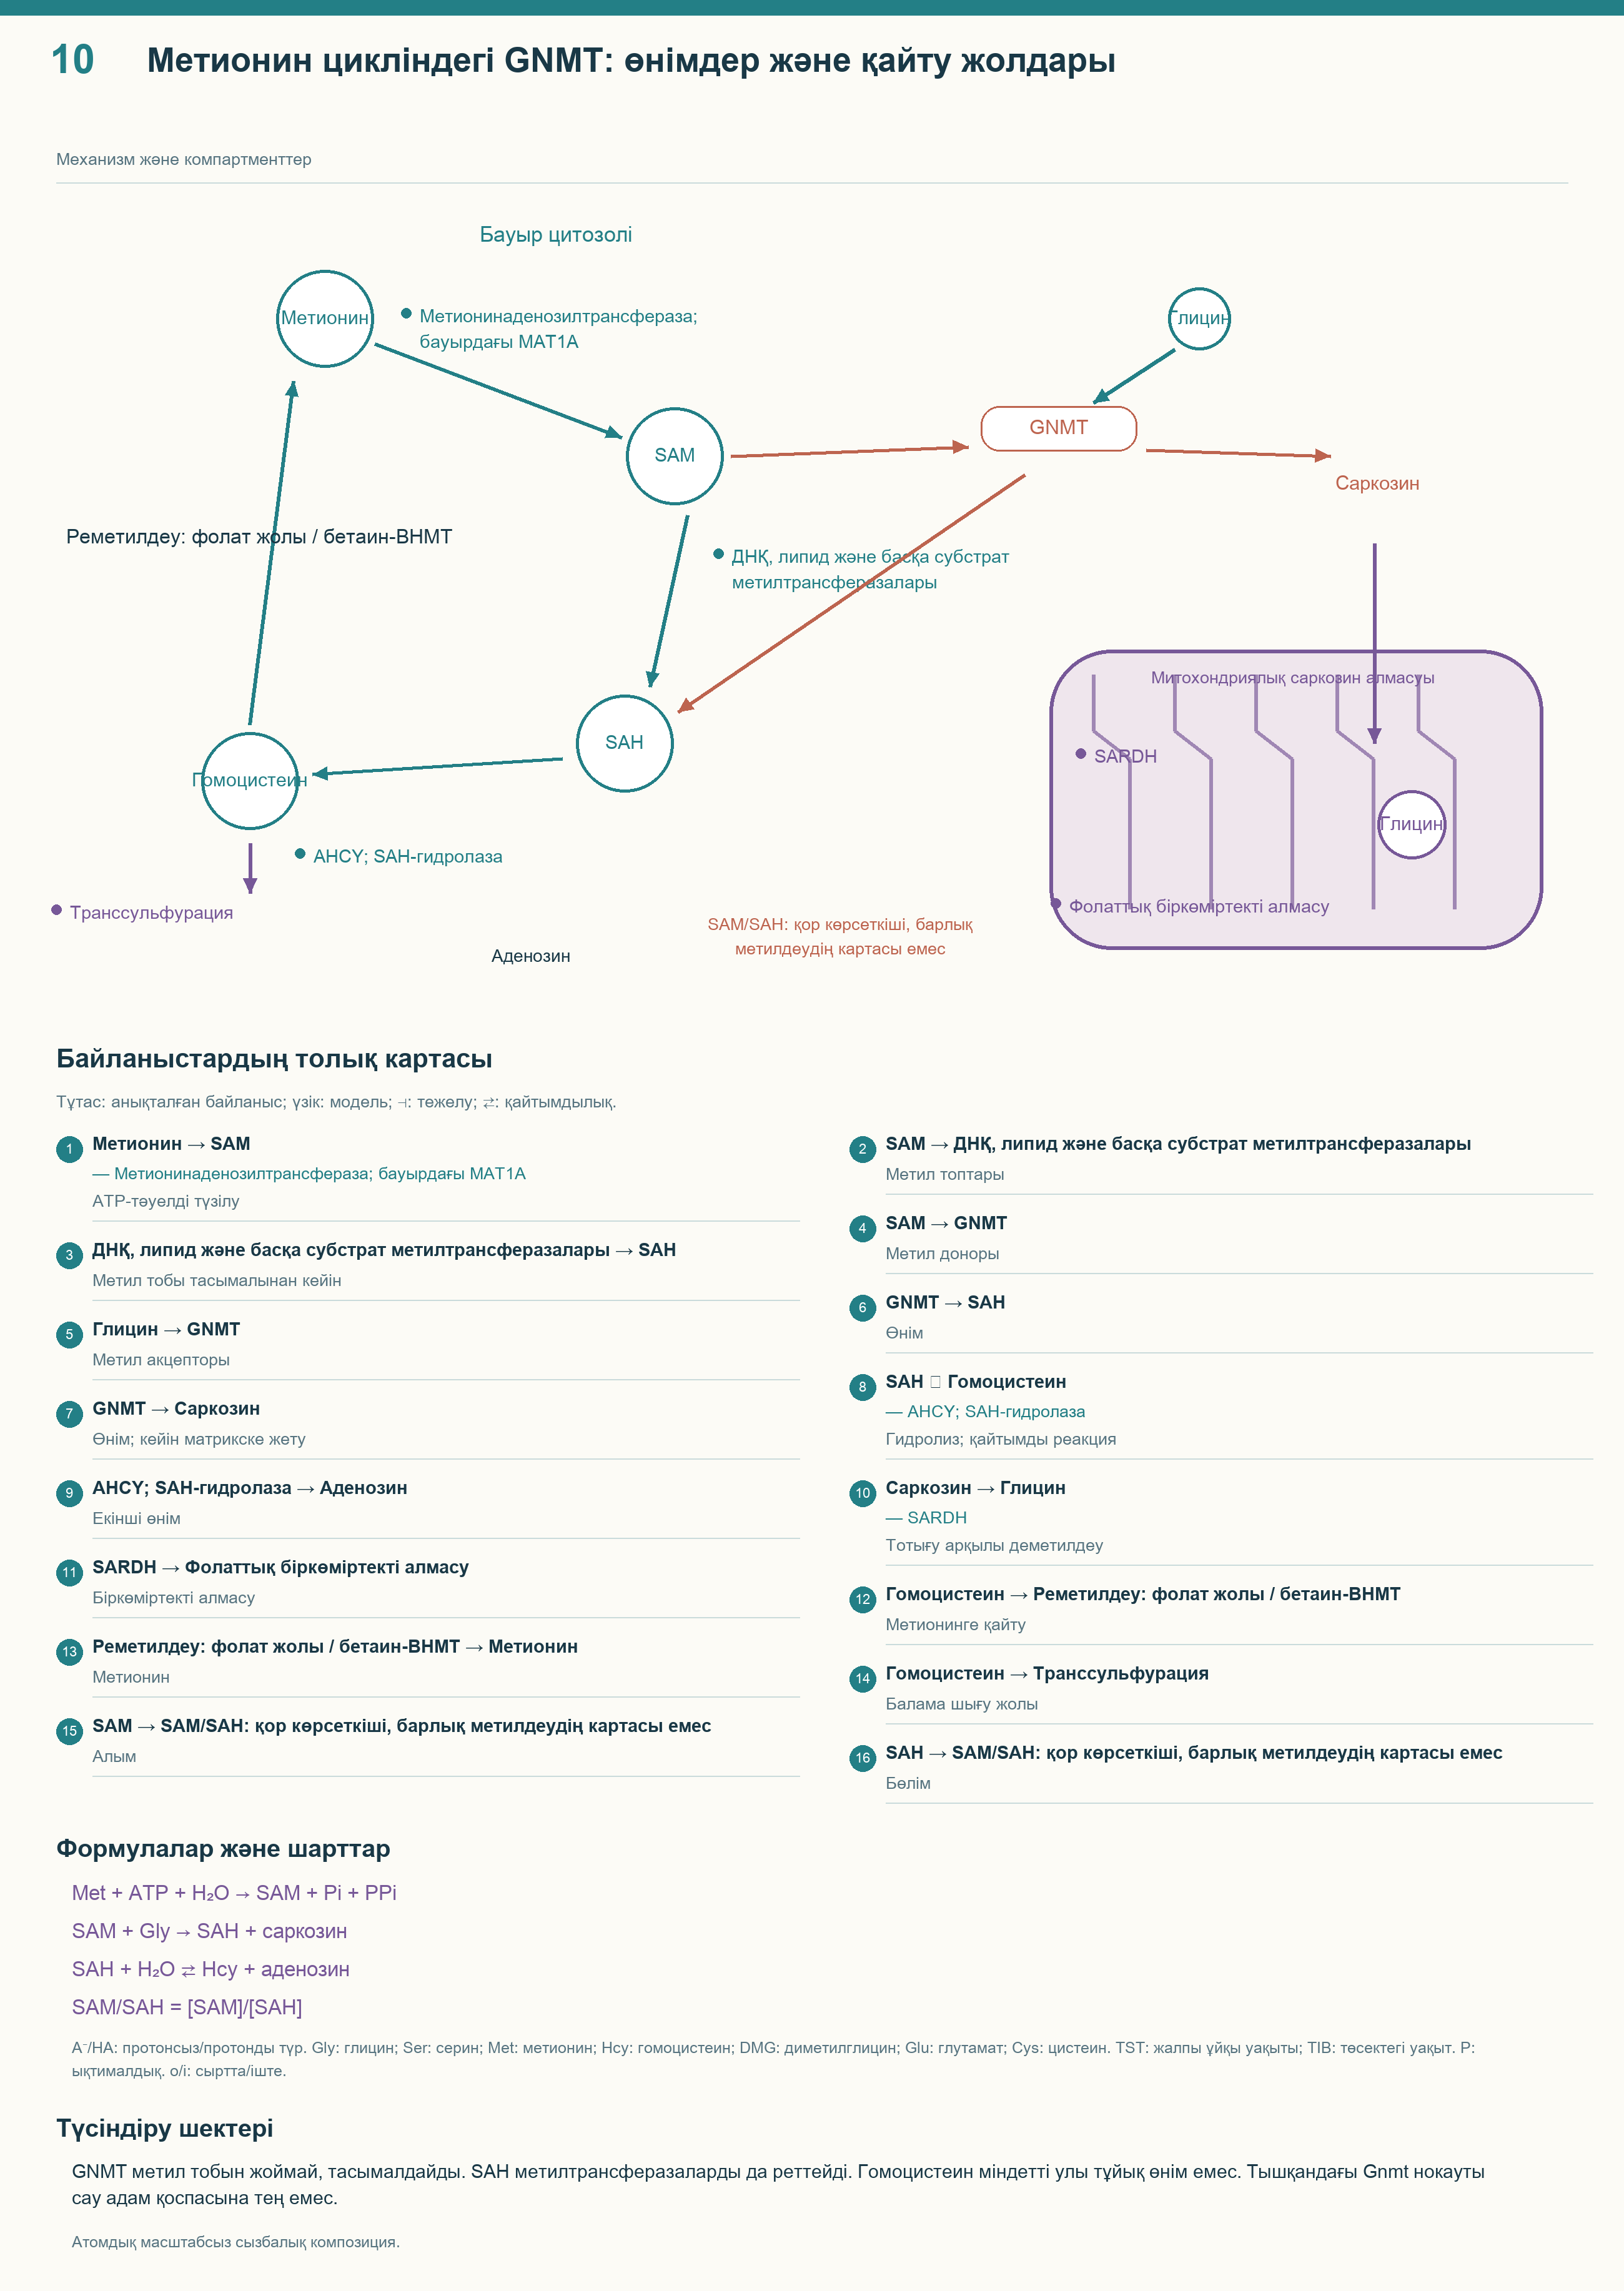
Метионин + ATP + H₂O → SAM + Pi + PPi — метионинаденозилтрансфераза
SAM + глицин → SAH + саркозин — GNMT
SAH + H₂O ⇄ гомоцистеин + аденозин — AHCY
SAM/SAH = [SAM]/[SAH]
SAH көптеген метилтрансферазаны тежейтіндіктен, SAM/SAH — алмасудың бір көрсеткіші. Ол әр ДНҚ аймағының нақты метилденуі емес және материалға тәуелді. Саркозин SARDH арқылы глицинге қайтады; гомоцистеин қайта метилденеді не транссульфурацияға өтеді. Гомоцистеинді жалғыз соңғы өнім ету бұл шығу жолдарын жасырады.
Gnmt жоғалған тышқандарда SAM, метилдену және бауыр жағдайы бұзылды. Реттеуші ферментті генетикалық жою оның қажеттілігін көрсетеді, сау адамға глицин қосу сол салдарды алдын алады деген емес. Метиониннің көптігі автоматты жалпы геном гиперметилденуін білдірмейді. 3–5 г глицин ет рационының жүрек-қантамыр қаупін жояды деу бөлек клиникалық дәлелді қажет етеді.
6. Дәмі, фармакокинетикасы және қауіпсіздігі
6.1. Тәтті дәм және инкретин гипотезасы
Глицин тәтті, бірақ салыстырмалы тәттілік концентрация мен сенсорлық салыстыруға тәуелді. «Сахарозаның 70%-ындай тәтті» барлық ерітіндіге ортақ сипаттама емес. Рецепторлық зерттеулер тәтті аминқышқылдарды тануды T1R, соның ішінде T1R2/T1R3 кешендерімен байланыстырады. Түрлік айырма мен жасушалық тәжірибе жағдайы құрылымдық дерексіз адам рецепторының «венера шыбынқақпаны» доменіндегі нақты молекула қалпын анықтамайды.
«Глициннің стереоспецификалық байланысуы» да нақтылықты қажет етеді, себебі глициннің өз D/L-энантиомерлері жоқ. Рецептор кеңістіктік орналасуды таниды, бірақ тәттілікті жоқ энантиомерге артықшылықпен түсіндіруге болмайды. Ішектегі қоректік затты сезу — реттеудің бөлек деңгейі. Ауыздағы тәтті сезім мен рецептор кешкі дозадан кейін клиникалық маңызды GLP-1 секрециясын дәлелдемейді.
Гэннон жұмысында тоғыз сау адам глицин, глюкоза, екеуін бірге не су алды. Доза майсыз дене массасының әр килограмына 1 ммоль және 25 г глюкоза болды, диабеті бар адамдар үшін ортақ 5 г емес. Комбинация гликемиялық жауап ауданын азайтты, инсулин жауабы ауданы елеулі артпады. Ішек гормоны ықтимал түсіндірме болды, T1R2/T1R3 → GLP-1 → инсулин тізбегінің дәлелі емес.
Бақылау кезіндегі қисық ауданы мен ең жоғары биіктігін ажырату керек. Біріншінің жартыдан көбірек азаюы шыңның барлығында 50%-ға төмендеуі емес. Глицин аминқышқыл алмасуына қатысады, инертті тәттілендіргіш емес. Дәм мен бір жедел тәжірибе диабет емін алмастыруға не кез келген қосылыста гипогликемия болмайды деуге негіз бермейді.
6.2. Сіңуі және орталық қорға қолжетімділік
Ішке қабылдау плазма глицинін жылдам арттыра алады, бірақ абсолют биожетімділіктің 95–100% екенін белгілемейді. Оған тиісті салыстыру дизайны мен эндогендік қорды есептеу қажет. Шағын өлшем гематоэнцефалдық бөгеттен еркін өтуді өздігінен дәлелдемейді. Өту бөгет құрылымы, тасымалдаушы орны, концентрация және градиент бағытына тәуелді.
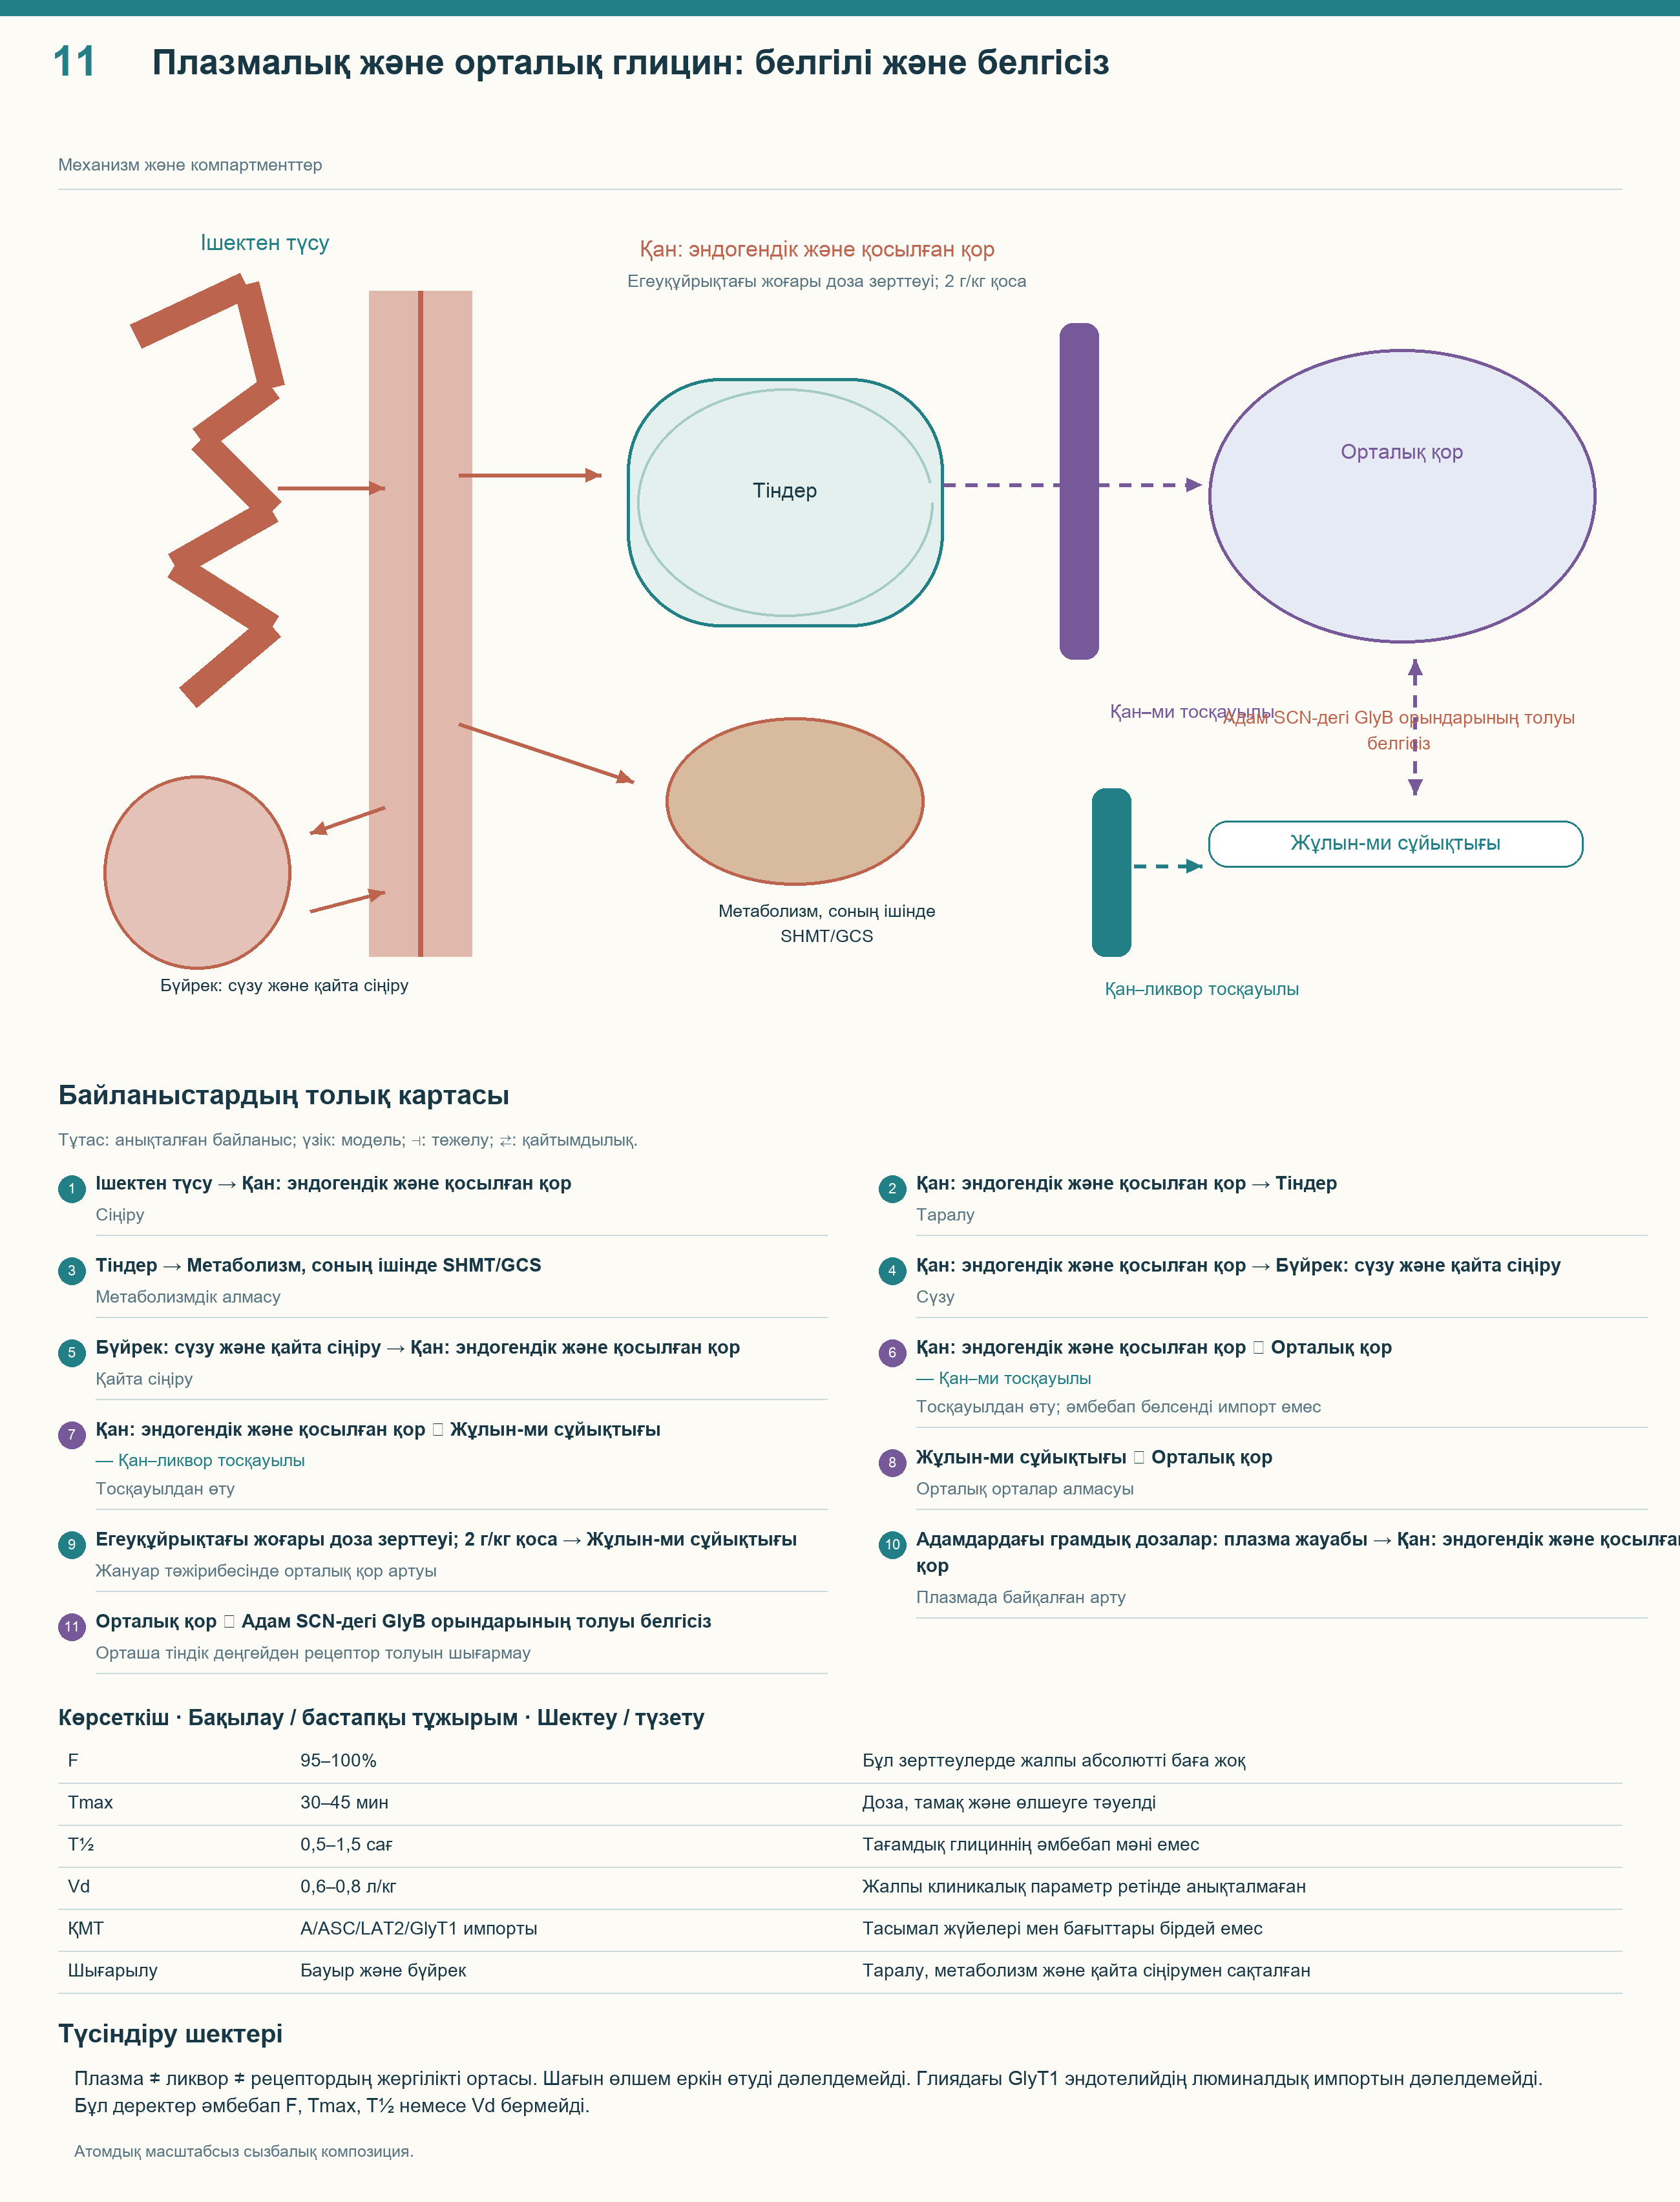
| Параметр | Негізделген сипаттама | Анықталмаған тұжырым |
|---|---|---|
| Ішке қабылдағанда сіңу | Адамда плазма деңгейінің артуы көрсетілген | Әмбебап абсолют F = 95–100% |
| Tmax | Доза, түр, тағам, сынама уақытына тәуелді | Барлығына бірдей 30–45 минут |
| T½ | Таңдалған модельдің белгілі фазасын сипаттайды | Әмбебап 0,5–1,5 сағат және барлық қалдық әсердің болмауы |
| Vd | Жарамды модель қажет | Қоспаға міндетті 0,6–0,8 л/кг |
| Миға өту | Егеуқұйрықтағы жоғары доза орталық қорды арттырады | 3 г-нан кейін адам SCN GlyB орны кепілді толуы |
| Плазмадан кету | Алмасу, таралу, сүзу, реабсорбция | Деңгей азайған сәтте барлық биологиялық әсер тоқтауы |
Каваидің егеуқұйрықтағы таралу жұмысында салыстырмалы жоғары, соның ішінде 2 г/кг дозалар қолданылды. Қан—ликвор бөгеті мен қарынша маңындағы таралу қарастырылды, түпнұсқадағы тасымалдаушы тізімі арқылы жылдам белсенді кіру ғана емес. Аралық өлшеусіз оны бірнеше грамнан кейінгі адамның «SCN терапиялық терезесіне» айналдыруға болмайды. Глиядағы GlyT1 де ми эндотелийінің люминалдық импортын автоматты түсіндірмейді.
Эндогендік қоры бар зат концентрациясын бірнеше үдеріс бірге өзгертеді. Бір бөлігі ақуыз бен метаболитке кіреді, серинге айналады не ыдырайды, бүйрек сүзу мен қайта сіңуді реттейді. Бір экспоненциалдық шығарылу теңдеуі бүкіл жолға жиі жеткіліксіз. Практикада бұл адам еңбектері анықтамаған дәл тұрақтыларды емес, зерттелген қабылдау жағдайларын айту дұрысырақ.
6.3. Көтерімділігі, токсикология және дәрі комбинациялары
Ұйқының шағын зерттеулерінде ауыр жағымсыз құбылыс әдетте тіркелмеді, бірақ көлем мен мерзім сирек оқиғаны бағалауды шектейді. Қысқа 9 г зерттеу асқорыту симптомдарын сипаттап, ауыр жедел бұзылысты таппады. Бұл белгілі топтағы жоғары дозаның көтерімділігі туралы дерек. Барлық жаста, жағдайда және айлар бойы қауіпсіздікті дәлелдемейді.
Психиатриялық зерттеулер шамамен 0,8 г/кг/тәулік сияқты жоғары дозаларды қолданды. Қатысушылар іріктеліп, қосымша ем алды және хаттама бойынша бақыланды. Бұл ұйқы үшін дозаны арттыруға рұқсат не бауыр-бүйрекке еш әсер жоқ деген емес. Жүрек айнуы мен басқа асқорыту симптомдары да «бір қабылдауда 20 г» әмбебап шегімен анықталмайды.
LD₅₀ — белгілі жануар моделіндегі тәжірибелік өлім көрсеткіші. мг/кг-ды 70 кг адамға пропорциямен көшіру қауіпсіз не өлім дозасын белгілемейді және мұнда қолданылмайды. Тағамдық реттеу мәртебесі пайдалану шарттарына қатысты, ұйқысыздық емінің дәлелденген тиімділігі емес. АҚШ-тағы технологиялық тағам қолдануы кез келген қоспа мен курсты жалпы мақұлдамайды.
Қысқа тәжірибеде әдеттегі дәрілік тәуелділік белгісінің болмауы барлық тоқтату мәселесінің нөлдік қаупі емес. Қосымша глицин рецептор саны мен сезімталдығын ешқашан өзгертпейді деген жалпы ереже жоқ. Жасушаларда коагонисттік сигнал NMDA-рецептор трафигіне қатысады. Бұл клиникалық үйренуді өздігінен дәлелдемейді, бірақ рецептор өзгермейді деген абсолют тұжырымды жоққа шығарады.
Клозапинмен жоғары дозалы глицин бөлек зерттеліп, қосымша пайда сенімді табылмады. Жақсармау кез келген дозада клозапин тиімділігі азаяды деген дәлел емес. Ұйықтатқыштың күшеюі не мемантин, кетамин және декстрометорфан глицин әсерін азайтады деген болжам көбіне фармакологиялық қисыннан шығады. Ұйқы пациенттерінде тиісті сынақсыз оны өлшенген өзара әрекет деп көрсетуге болмайды.
Балалар, жүкті және емізетін адамдар, айқын ағза ауруы барлар үшін бұл қолдану жөнінде дерек аз. Ересек еріктілер барлық топтың үлгісі емес. Глицин алмасуының тұқым қуалайтын бұзылыстары маңызды: қолжетімділікті арттыру қарапайым қоректік толықтыру қисынына сәйкес келмеуі мүмкін. Шектер қолданылуды анықтайды, жеке клиникалық бағалауды алмастырмайды.
7. Практикалық қолдану және зерттелген режимдер шегі
7.1. Ұйқыға зерттелген доза нені білдіреді
Адамның ұйқы зерттеулерінде көбіне ұйқы алдында 3 г қолданылды. Төсектегі уақытты шектеген бір тәжірибеде қабылдау 30 минут бұрын болды, бірақ жалғыз оңтайлы терезе анықталған жоқ. 5 г, бірнеше ай үздіксіз қолдану және джетлагты дәл сондай зерттелген режим деуге болмайды. Сандар сынақ сипаттамасы ретінде пайдалы, әр оқырманға жеке ұсыныс орнына жүрмейді.
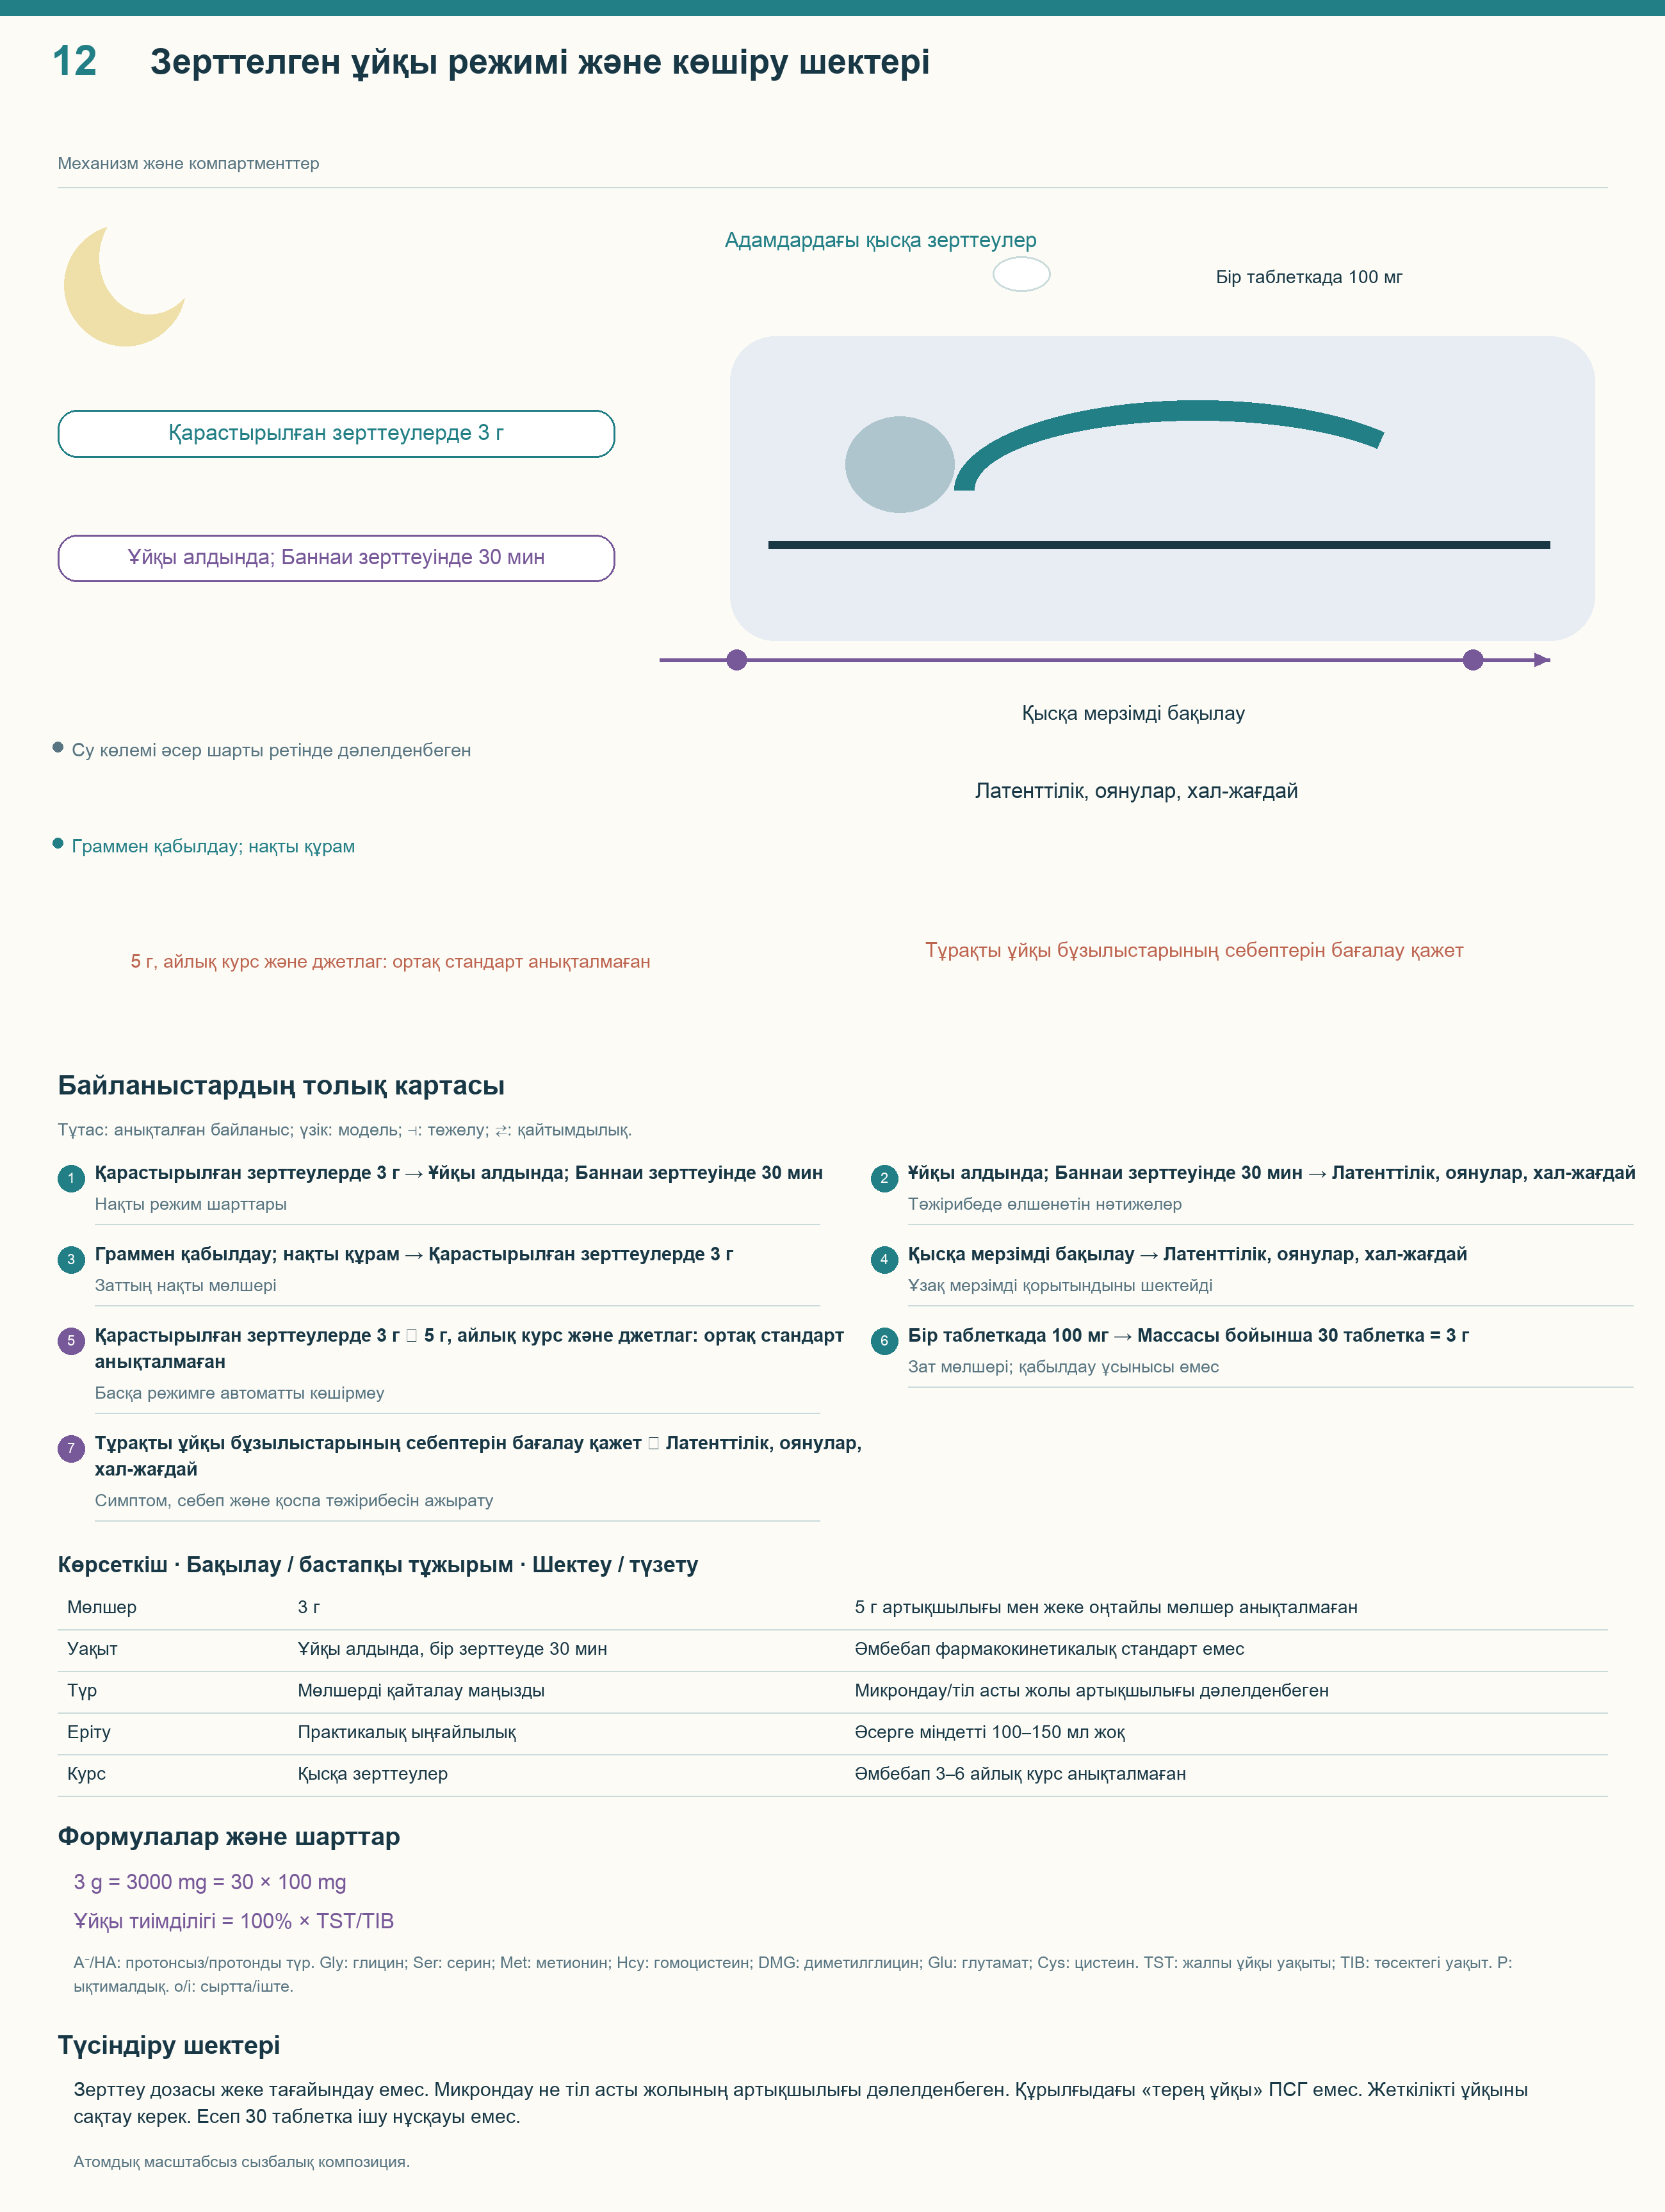
| Практикалық сұрақ | Зерттеу дерегі | Белгісіздік |
|---|---|---|
| Мөлшер | Шағын тәжірибелерде жиі 3 г | Жеке оңтайлы доза және 5 г артықшылығы |
| Уақыт | Ұйқы алдында; Баннаиде 30 минут | Барлығына 30–60 минут оңтайлы болуы |
| Түрі | Нақты құрамы, тазалығы, көтерімділігі | Микронизация немесе тіл астына қабылдау артықшылығы |
| Еріту | Ұнтақ грамдық мөлшерді өлшеуге ыңғайлы | Дәл 100–150 мл су қажеттілігі |
| Мерзім | Ұйқы деректері негізінен қысқа | 3–6 айдың тиімділігі мен қауіпсіздігі |
| Нәтиже | Латенттік, ояну, хал және ұзақтық | Тұтынушы құрылғысында кепілді N3 өсімі |
Таблетка 100 мг болса, 3 г отыз таблеткадағы белсенді затқа тең. Бұл доза айырмасын түсіндіретін арифметика, отызын бірден соруға кеңес емес. Аз доза зерттелген грамдық мөлшерді қайталамайды, бірақ «биохимиялық мүмкін емес» деу бөлек салыстыруды талап етеді. Өнім түрі мен қосымша ингредиенттер жарамдылықты өзгертеді.
Жеке әсерді тұрақты өлшеммен жазу пайдалы: жату уақыты, шамаланған кідіріс, түнгі ояну және күндізгі ұйқышылдық. Басқа өзгерістермен қатар келген сәтті түн себепті анықтамайды. Құрылғының «терең ұйқы» бағасы полисомнографиялық саты емес. Мақсат — жеткілікті ұзақ, жақсы ұйқы; түннің бөлігін қоспамен алмастыру емес.
Тұрақты ұйқысыздық, қатты күндізгі ұйқышылдық және ұйқыдағы тыныс бұзылысы себепті анықтауды қажет етеді. Глицин сынақтары диагностика мен дәлелі көбірек емді айналып өтуге негіз бермейді. Кесте, орта, жарық, мінез-құлық пен ауру бірге әсер етеді. Бір өлшемдегі ықтимал пайда әмбебап шешім емес.
7.2. GlyNAC: зерттеу дозасын түсіну
Кумар сынағында глицин және NAC әрқайсысы 100 мг/кг/тәулік берілді. 70 кг үшін әрқайсысы 7 г, қосындысы 14 г. Бұл бақылаулы араласу сипаттамасы, дені сау адамға алдын алу тағайындауы емес. Ерте зерттеулердегі цистеиннің ммоль/кг мөлшерін NAC-тың дәл сондай сандық массасына теңестіруге болмайды: молярлық массалар өзгеше.
Зерттелген режим: Dзат = 100 мг/кг/тәулік × дене массасы
70 кг кезінде: Dглицин = 7 г/тәулік; DNAC = 7 г/тәулік
Есеп жарияланған режимді түсіндіреді, оқырман дозасын таңдамайды. Басқа дозалы екі апталық жұмыста жалпы GlyNAC екі компонентке тең бөлінді; қаптама мен кестедегі санды оқығанда соны ескеру керек. Мерзім мен мөлшер айырмасы салыстыруды қиындатады. «Барлық сау адамға 2–3 г глицин мен 1200–1800 мг NAC» бұл еңбектерден дайын алдын алу стандарты болып шықпайды.
Комбинациядан бұрын клиникалық мақсат таңдалуы керек. Глутатион, көтерімділік, физикалық қызмет пен ұйқы сапасы өзара ауысатын мақсат емес. Екінші зат араласуды және ықтимал дәрілік байланыстарды өзгертеді. GlyNAC атауы комбинацияны білдіреді, әр глицин қоспасының дербес дәлелі емес.
7.3. Ақуызы көп рацион және метионин
Глицин мен метионин алмасу арқылы байланысқан, бірақ қоспадағы міндетті қатынас клиникалық сынақтан алынған жоқ. 2 г/кг ақуыз автоматты SAM артықтығын не глицин тапшылығын анықтамайды. Рацион құрамы, жалпы алмасу және адам жағдайы маңызды. «Кетогендік» не «етке негізделген» атау ДНҚ метилденуін болжай алмайды.
Етпен бірге 3–5 г глицин жүрек-қантамыр оқиғасын алдын алады не патологиялық MAT1A белсенділігін басады деген дәлел жоқ. GNMT қызметі мен генетикалық модель басқа сұраққа жауап береді. Рацион толықтығы және клиникалық қауіптерді талқылау бір тағамды екіншісімен биохимиялық өтеуден пайдалырақ. Глицин бөлек зерттелуі мүмкін, метионинге қарсы міндетті «антидот» емес.
8. Анықталғаны және ашық мәселелер
Рецепторлық екі рөл мен алмасудағы қатысуы берік биохимиялық негізге ие. GlyR анион өткізгіштігін жасайды, әсері градиентке тәуелді; GluN1/GluN2 глицин не D-серинді глутамат және деполяризациямен бірге пайдаланады. Тасымалдаушы, компартмент және реакция жергілікті қолжетімділікті анықтайды. Осы ұйымдасу бір молекуланың жалғыз әмбебап нейрондық әсері жоқ екенін түсіндіреді.
Ұйқы терморегуляциясы егеуқұйрықта ең тікелей зерттелген, адам еңбектері ұйықтау мен халдің бөлек өлшемдері туралы тар қорытындыны қолдайды. Міндетті N3 өсімі, патологиялық ақуыздарды жылдам шығару, толық ұйқыны алмастыру және кез келген ұзақ курстың бірдей қауіпсіздігі дәлелденбеген. GlyNAC әр топта нәтижесі әркелкі бөлек комбинация болып қалады. Практикалық құндылық — нақты сұрақ пен шекті анықтап, сенімді механизмді дәлелденген ем нәтижесінен ажырату.
Жиі қойылатын сұрақтар
Глицин жүйкені тежей ме, әлде қозуды күшейте ме?
Ол әртүрлі рецепторға әсер етеді. GlyR жетілген нейронда көбіне тежейтін анион өткізгіштігін жасайды. Кәдімгі NMDA-да глицин глутамат коагонисі, сондықтан зат атауы жауап бағытын анықтамайды.
Терең ұйқыны көбейтетіні дәлелденген бе?
Шағын PSG баяу толқынды сатыға ертерек жетуді көрсетті, түнгі үлес елеулі артпады. N3 басталуы, ұзақтығы және дельта белсенділігі бөлек өлшемдер. Міндетті өсім уәдесі деректен күшті.
SCN механизмі адамда дәлелденген бе?
Толық SCN және NMDA араласулары егеуқұйрықта жасалды. Адам терморегуляциясы контекст береді, глициннен кейінгі әр буынды растамайды. Барлығында бірдей температура төмендеуі анықталмаған.
Неліктен 3 г және 30 минут аталады?
Бұл қысқа сынақ шарттары, жалпы тағайындау емес. Жеке оңтайлы доза мен айлық курс тиімділігі анықталмаған. Жоғары доза міндетті көбірек әсер деген емес.
Глицин түннің бөлігін алмастыра ала ма?
Ондай дәлел жоқ. Шағын тәжірибеде төсектегі уақыт төрттен бірге азайып, кей күндізгі өлшем жақсарды, созылмалы тапшылық жойылған жоқ. Ұйқы ұзақтығы жеткілікті болуы керек.
GlyNAC пен ұйқыға глицин бірдей ме?
Жоқ, GlyNAC-та NAC та бар және басқа нәтижелер зерттеледі. Кей оң нәтижелерге қарамастан, сау егде топта негізгі көрсеткіш өзгермеген жұмыс бар. Жасару не бірдей жалпы пайда дәлелденбеген.
Глицин глюкозаны GLP-1 арқылы азайта ма?
Сау адамдардағы жедел тәжірибеде глюкозамен бірге жауап ауданы азайды. Ішек гормоны гипотеза болды, GLP-1 клиникалық жолы дәлелденген жоқ. Диабет емін алмастыруға негіз емес.