
Артишок экстракты және цинарин: өт, ферменттер мен липидтер
Цинарин, лютеолин және цинаропикрин химиясы; холерез, холекинез, өт тасымалдағыштары, CYP51A1/HMGCR және клиникалық нәтижелер. Физиология, жасуша тәжірибесі және адамдағы дәлел айырмасы.
Цинарин, лютеолин және цинаропикрин химиясы; холерез, холекинез, өт тасымалдағыштары, CYP51A1/HMGCR және клиникалық нәтижелер. Физиология, жасуша тәжірибесі және адамдағы дәлел айырмасы.
Артишок жапырағының экстракты — диспепсия мен липид алмасуының бұзылыстарында зерттелетін қоспа. Цинарин химиялық маркер бола алады, бірақ барлық әсерді түсіндірмейді. Химиялық реакцияны, ағзаның физиологиялық жолдарын және нақты препаратты адамдарға бергендегі нәтижелерді ажырату қажет. CYP51A1-ді тікелей тежеу туралы тұжырымдар ерекше тексеруді талап етеді: адам ферментінің құрылымы артишоктың оны тежейтінін дәлелдемейді.
Мәдени артишок Asteraceae тұқымдасының Cynara cardunculus түріне жатады; фармакологияда тарихи Cynara scolymus атауы да жиі кездеседі. Жерорта теңізінен шығуы және кардонмен туыстығы сұрыптардың алуан түрлілігін түсіндіреді. Тарихи қолдану қазіргі экстракт тиімділігінің дәлелі емес.
Жетілмеген гүлшоғырының тағамдық гүлтабаны мен орама жапырақтарының негіздері нағыз жапырақтан алынатын Cynarae folium дәрілік шикізатынан өзгеше. Тағам құрамында су, талшық және фруктандар, соның ішінде көбіне β-(2→1) байланыстары бар инулин болады. Көкөніс порциясының, жапырақ ұнтағының және құрғақ экстракттың массасын тікелей алмастыруға болмайды. Еріткішпен алу құрамды өзгертеді: өсімдікте инулин болуы әр капсулада клиникалық мәні бар мөлшер бар деген сөз емес.
PAL, C4H және 4CL қатысатын фенилпропаноид жолы гидроксикорич қышқылдарының түзілуіне байланысты; HQT кофеоилхин туындыларына қатысады. Терпеноид алмасуы сесквитерпен лактондарын береді. Сұрып, мүшесі, өсу кезеңі, орта, кептіру және еріткіш топтардың арақатынасын өзгертеді. Цинарин мен лютеолиннің бір тұрақты пайызын барлық шикізатқа қолдануға болмайды.
Флавондар мен фенол қышқылдары өсімдікті жарық және тотығу күйзелісінен қорғауға, ал ащы лактондар химиялық қорғанысқа қатысады. Катехол топтары электрон не сутек беріп, металдармен әрекеттесе алады. Бұл қасиеттер зерттеуге негіз болады, бірақ ащылық пен антиоксидант сынағы адамға дозаны анықтамайды.
Цинарин — хин қышқылының екі кофе қышқылы қалдығымен түзілген күрделі эфирі: C₂₅H₂₄O₁₂, шамамен 516,45 г/моль. Әртүрлі нөмірлеу жүйелерінде 1,3- және 1,5-ди-O-кофеоилхин қышқылы атаулары кездеседі. Талдауларды салыстырғанда нақты құрылымды тексеру керек; нөмірлердің айырмасы бөлек белсенді заттың дәлелі емес. Хлороген қышқылы қазіргі нөмірлеуде әдетте 5-O-кофеоилхин қышқылы, C₁₆H₁₈O₉, 354,31 г/моль; кофе қышқылы — C₉H₈O₄, 180,16 г/моль.
Этерификация, позициялық изомерия және гидролиз ерігіштік пен әрекеттесуді өзгертеді. Катехол фрагменттері феноксил радикалын тұрақтандырып, ауыспалы металдарды байланыстыра алады. Ерітіндідегі реакция гепатоцит мембранасындағы әсерге тең емес: концентрация, орта және метаболиттер маңызды. Цинаринді барлық липид ферменттерінің дәлелденген тежегіші деуге болмайды.
Лютеолин — 3′,4′,5,7-тетрагидроксифлавон, C₁₅H₁₀O₆, шамамен 286,24 г/моль. Конъюгацияланған флавон жүйесі мен B сақинасының катехол тобы реактивтілігін анықтайды. Цинарозид — лютеолин-7-O-глюкозид, C₂₁H₂₀O₁₁, 448,38 г/моль; сколимозид — лютеолин-7-O-рутинозид, C₂₇H₃₀O₁₅, 594,52 г/моль. Гликозид байланысы кәдімгі күрделі эфир байланысы емес.
Қант қалдығы суда еруді және жасушаға кіруді өзгертеді; гидролиз агликонды босата алады. Сондықтан бос лютеолин мен гликозид тәжірибелеріндегі экспозиция әртүрлі. Жасушаға β-глюкозидаза қосқаннан кейін әсердің күшеюі ішілетін өнімнен бауырға қанша бос лютеолин жететінін анықтамайды (Gebhardt, 2002).
Цинаропикрин — ащы гваянолид, C₁₉H₂₂O₆, шамамен 346,37 г/моль, біріктірілген сақиналары және α-метилен-γ-лактон тобы бар. Электрофил топ тиолдармен Михаэль қосылуына түсе алады; бұл реактивтілік тәжірибелік әсерлерге де, сенсибилизацияға да қатысты. Туыстас заттардың бірі — гросгеймин. Сколимозид флавоноид гликозиді болғандықтан оны лактондар тобына қоспау керек.
Ащылық клиникалық өт қабы босауын өлшемейді. Рецептор затты таныса да, ішектегі экспозиция, гормон бөлінуі және адам моторикасы туралы бөлек деректер қажет.
Холерез — бауырда өттің түзілуі мен бөлінуі, кейін өзектерде өзгеруі. Холекинез — өт қабының босатылуы; қабырға жиырылуы шығу жолының кедергісімен үйлесуі тиіс. Ұлтабардағы өт мөлшерінің артуы екі үдерістің үлесін автоматты түрде анықтамайды.
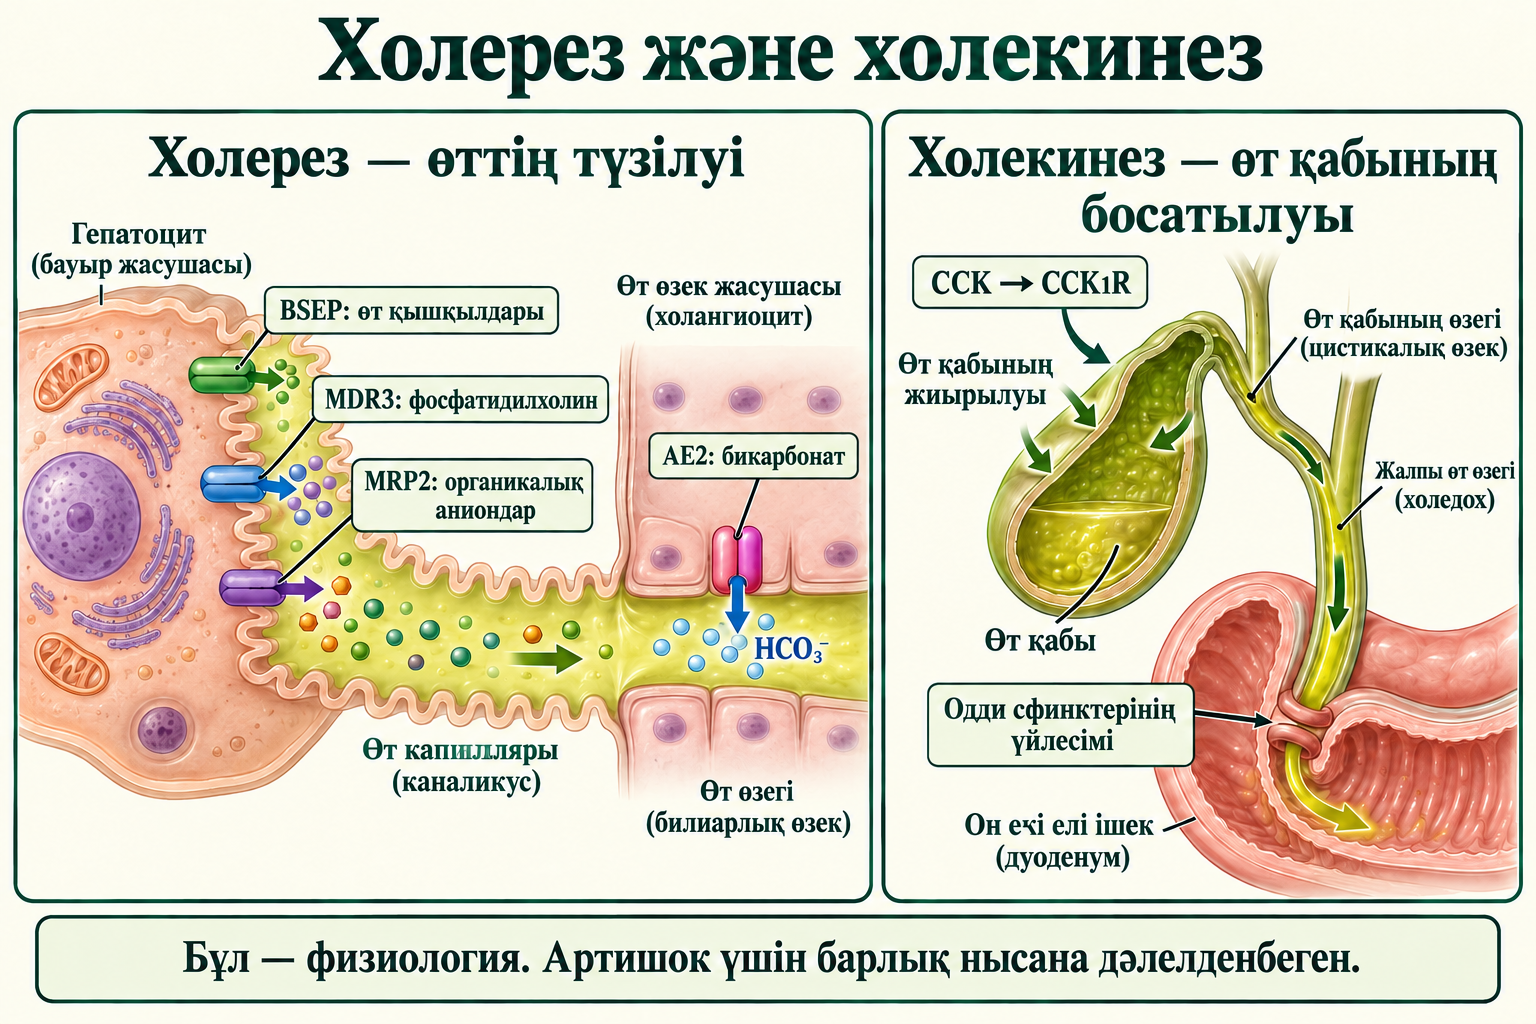
Каналикулярлық BSEP/ABCB11 өт тұздарын шығарады; MDR3/ABCB4 фосфатидилхолинді мембрананың сыртқы қабатына тасымалдайды; MRP2/ABCC2 билирубин конъюгаттары сияқты органикалық аниондарды шығарады. Олардың субстраттары әртүрлі. Фосфатидилхолин бос өт қышқылдарының зақымын азайтатын аралас мицеллаларға қатысады. Еріген заттардың секрециясы судың қозғалысына осмостық үлес қосады. Бұл — физиология, артишок нысаналарының расталған картасы емес (Trauner және Boyer, 2003).
Өзек жасушалары бикарбонат пен су қосады. AE2/SLC4A2 Cl⁻/HCO₃⁻ электрбейтарап алмасуын атқарады; қызметі градиенттер мен байланысқан жүйелерге тәуелді. Карбоангидраза қайтымды реакцияны жылдамдатады, бикарбонатты тепе-теңдікке қарамастан жасамайды:
Апикалдық беттегі бикарбонат қабаты кейбір протондалған өт қышқылдарының кіруін шектейді. Бұл қорғаныс ұғымы артишоктың CA-II, AE2 не аквапориндерді белсендіргенін, өтті міндетті түрде сұйылтқанын немесе тасқа жол бермейтінін дәлелдемейді. Өт қышқылдарына тәуелсіз ағынның әмбебап үлесі мен тұрақты қорғаныш pH да модель контексін қажет етеді (Medina, 2011).
Өт қышқылдары RXRα/NR2B1-мен әрекеттесетін FXR/NR1H4 арқылы сигнал береді. Бауырдағы FXR–SHP және ішектегі FXR–FGF19 өт қышқылы синтезінің теріс кері байланысына қатысады; CYP7A1 классикалық жолдың ерте сатысын катализдейді. FXR белсендіруі мен CYP7A1 индукциясын тікелей дерексіз бір оң себептік тізбекке біріктіруге болмайды.
Өт қышқылы рецепторын анықтау (Makishima et al., 1999) реттелуді түсіндіреді, цинариннің селективті әсерін емес. BSEP, MDR3 және MRP2 бір мезгілде артып, CYP7A1 сақталатынын айту үшін нақты экстракттың экспрессиясы, белсенділігі және экспозициясы өлшенуі керек. Синтетикалық агониспен салыстыру мұндай өлшеулерді алмастырмайды.
TAS2R рецепторлары тілден тыс та кездеседі. Ащы стимулдар модельдік жасушаларда кальций сигналы мен холецистокинин, CCK, бөлінуін туғыза алады (Chen et al., 2006). Бұл қалыпты артишок дозасынан кейін цинаропикрин–TAS2R10/14–адам I-жасушасы–CCK тізбегін дәлелдемейді.
Хемосенсорлық каскад G-ақуыз, PLC, PIP₂-нің DAG және IP₃-ке гидролизін, эндоплазмалық ретикулумнан Ca²⁺ шығуын, TRPM5 және кернеуге тәуелді арналарды қамтуы мүмкін. Изоформа, суббірлік және сезімталдық тиісті жүйеде расталуы керек. Тышқан ісігінен шыққан STC-1 желісіндегі бөлшектерді адам I-жасушаларына автоматты көшіруге болмайды.
CCK1R өт қабының реттелуіне қатысады. Кальций–кальмодулин MLCK-ны белсендіріп, ол миозиннің реттеуші жеңіл тізбегін фосфорлайды; MLCP-пен теңгерімі жиырылуға әсер етеді. NO–sGC–cGMP және VIP–cAMP жүйке жолдары шығу сфинктерінің босаңсуына қатысуы мүмкін. Оның кедергісі міндетті түрде нөлге түспейді, ал физиологиялық үйлесім тас не стриктура кезінде қауіпсіз ағынды кепілдемейді. Өт мөлшерінің артуы ұсынылған экстракт механизмінің әр сатысын дәлелдемейді.
HMG-CoA-редуктаза, HMGCR, стерол синтезінің басында HMG-CoA-ны мевалонатқа айналдырады. AMPK фосфорлау арқылы белсенділікті төмендете алады, соның ішінде адам ферментінің Ser872 орнына әсер етеді. AMPK Thr172 киназаның өзін реттейді: бұл орындар бөлек ақуыздарға тиесілі.
Gebhardt (1998) жасушалық модельде HMGCR-ның жанама реттелуін ұсынды; цинарин негізгі белсенді компонент болған жоқ. Зерттеу LKB1/CaMKKβ–AMPK–Ser872 тізбегін анықтамады. Мүмкін физиологиялық жол ішілетін экстракттың дәлелденген механизмі емес, «жанама» сөзі статинге тең дегенді білдірмейді.
Сквален эпоксидтеліп, циклденгенде ланостерол түзіледі. CYP51A1 — гемі бар микросомалық стерол-14α-деметилаза, оның редокс серіктесі POR. Кезекті тотығулар 14α-метил тобын алып тастайды; кейінгі реакциялар өзге аралық стеролдарды түзеді. Бұл міндетті саты, бірақ скваленнен кейінгі бірінші фермент те, жалғыз әмбебап жылдамдық шектеуші саты да емес. Блох және Кандутш–Рассел тармақтарында бүйір тізбек өзгерістерінің реті өзгеше.
PDB 3LD6 — адам CYP51-інің кетоконазолмен кешені (Strushkevich et al., 2010), лютеолин не цинаринмен емес. Докинг лигандтың болжамды орнын береді; тежеуді дәлелдеу үшін кинетика, концентрация және селективтілік қажет. Цинарин CYP51 немесе скваленсинтазаны толық бөгейтіні анықталмаған. Оларды экстракттың дәлелденген нысанасы ретінде көрсетуге болмайды.
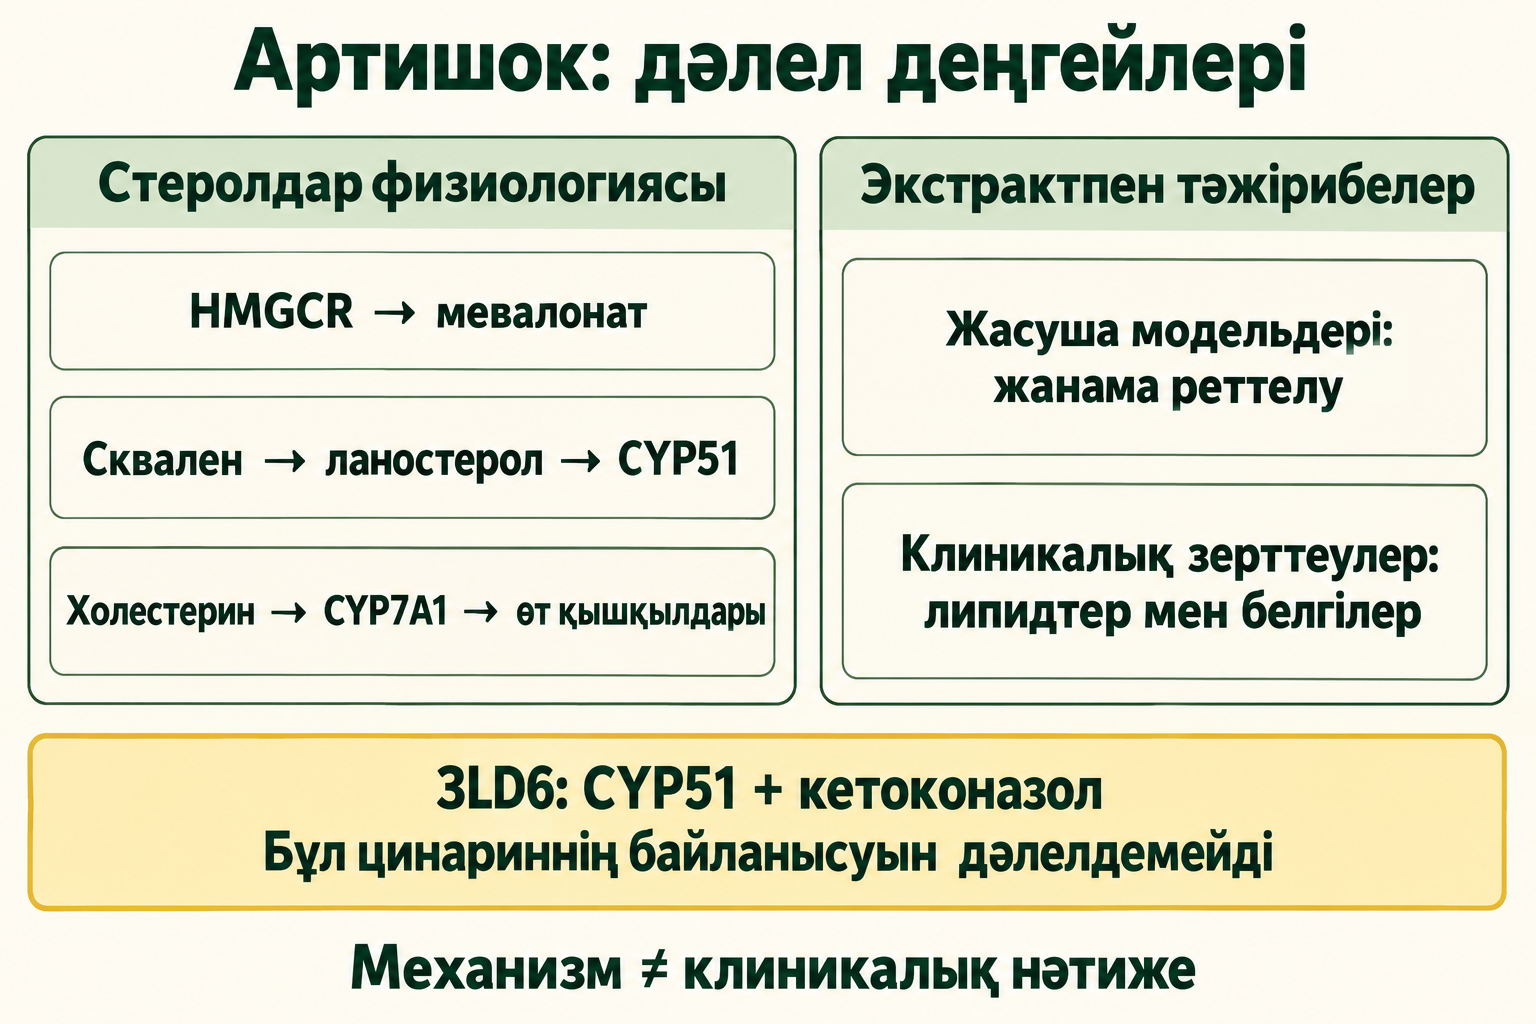
CYP7A1 өт қышқылының классикалық жолында холестеринді гидроксилдейді:
Теңдеу фермент қызметін көрсетеді, артишокпен расталған индукцияны емес. ABCG5/ABCG8 стерол секрециясына, ASBT ішекте өт қышқылының қайта сіңуіне қатысады. Өтке шығару ағзадан шығарумен бірдей емес: көп бөлігі энтерогепатикалық айналыммен қайтады. «Экстракт инулині» өт қышқылын байланыстырады дегенге нақты құрам мен нәжіс балансы қажет.
Ретикулумдағы стерол азайғанда SCAP–SREBP-2 INSIG ұстап тұруынан босай алады. Гольджиге тасымал мен S1P/S2P өңдеуі LDLR және холестерин синтезі ферменттерін реттейтін ядролық фактор түзеді. SREBP-2-ні толық басу және белсендіру бір ғана түсініктеме емес. LDLR LDL-ді ApoB-100 арқылы, бірқатар қалдық бөлшекті ApoE арқылы таниды; барлық апоB-бөлшектер бірдей субстрат емес. Клиникалық LDL-C төмендеуі LDLR механизмін өздігінен анықтамайды.
Артишок флавоноидтарының eNOS экспрессиясына әсері эндотелий дақылдарында зерттелді (Li et al., 2004). Ақуыз мөлшері мен фосфорлау — бөлек реттеу деңгейлері. Ser1177, Thr495 немесе Sp1/GATA нақты өзгерісі тиісті өлшеуді талап етеді. Тамыр суррогатының жақсаруы инфаркт азаюын дәлелдемейді.
Лютеолинге бай экстракт бөлініп алынған LDL тотығуында зерттелді (Brown және Rice-Evans, 1998). Зертханалық тотығуды кешіктіру адамда CD36/SR-A1 бөгелгенін білдірмейді. Тек тотыққан LDL атерогенді деу қате: апоB-липопротеиндердің артерия қабырғасында ұсталып қалуының өзі маңызды. Антиоксидант химиясы LDL концентрациясы мен жиынтық экспозициясын бағалауды жоймайды.
Nrf2–Keap1–ARE электрофилдік және тотығу күйзелісіне бейімделуді реттейді. Nrf2 тұрақтануы, шағын Maf-пен әрекеттесу және транскрипция глутатион синтезі мен қорғаныш ферменттерін өзгерте алады. SOD супероксидті H₂O₂-ге айналдырады және глутатион циклінің ферменті емес. GPX пероксидтерді тотықсыздандыруға тотықсызданған глутатионды пайдаланады; HO-1 гемнен биливердин, CO және қауіпсіз байланыстырылуы тиіс темір түзеді. Қосымша түсіндірме GPX4 және липид пероксидтері мен митохондриялық SOD2 материалдарында берілген.
Оқшауланған гепатоцит пен жануарлардағы уытты зақым тәжірибелері (Adzet et al., 1987; Gebhardt және Fausel, 1997; Speroni et al., 2003) адам бауырының барлық ауруында қалпына келуді дәлелдемейді. Жалпы Nrf2 биологиясы нақты Keap1 орындарының өзгерісін, әмбебап GSH/GSSG >100:1, mPTP жабылуын не әр пациентте жасуша өлімінің алдын алуды анықтамайды.
| Сала | Не бағаланды | Не белгісіз |
|---|---|---|
| Липидтер | Нақты экстракттардың қысқа сынақтары және біріктірілген нәтижелер | Жүрек-қантамыр оқиғалары, ұзақ қауіпсіздік, алмастырылу |
| Ұлтабар өті | Ішекке тікелей енгізілген шағын тәжірибе | Қалыпты капсула, жеке тасымалдағыштар мен моторика |
| Майлы бауыр | Трансаминаза және бейнелеу суррогаттары | MASH гистологиялық ремиссиясы, фиброз, клиникалық нәтиже |
| Диспепсия | Бақыланатын сынақтағы симптом шкалалары | Міндетті өт механизмі, әмбебап көрсетілім |
| Тітіркенген ішек синдромы | Жеткілікті плацебо-бақылаусыз кіші топ | Әртүрлі фенотипте себептік тиімділік |
Englisch et al. (2000) 143 ересекте алты апта бойы 1800 мг/тәулік зерттеді. Топ ішіндегі пайыздық өзгеріс плацебомен салыстырған әсерден өзгеше. Sahebkar et al. (2018) қысқа зерттеулерді біріктірді: мг/дл бағасы кез келген бастапқы LDL-C үшін тұрақты пайызға кепіл болмайды. Wider et al. (2013) Cochrane шолуы жүрек-қантамыр оқиғаларының алдын алуды анықтамайды. Құрам, доза және популяция айырмашылығы қорытындыны шектейді.
Kirchhoff et al. (1994) 20 қатысушыға 1,92 г-ды тікелей ұлтабарға енгізіп, плацебомен салыстырды. Бұл кәдімгі ішілетін режим емес және тамақтан 20–30 минут бұрын міндетті қабылдауды дәлелдемейді.
Panahi et al. (2018) NAFLD бойынша екі айлық пилотта 600 мг/тәулік қолданды; Rangboo et al. (2016) трансаминазаларды бағалады. Тарихи NAFLD/NASH атауын гистологиямен расталған MASH-қа автоматты ауыстыруға болмайды. ALT, AST, FLI, УДЗ және биопсия әртүрлі көрсеткіш. FLI антропометрия мен зертхананы біріктіреді, бауыр майын тікелей өлшемейді. Тексерілмеген нақты сандар мен болжамды «SteatoChoke-Study 2026» дәлел ретінде қолданылмайды.
Holtmann et al. (2003) диспепсиясы бар 247 адамды қамтыды: 2×320 мг күніне үш рет, барлығы алты апта 1920 мг/тәулік, 640 мг/тәулік емес. Bundy et al. (2004) кіші топ талдауы, тітіркенген ішек синдромын емдеудің плацебо-бақыланатын дәлелі емес. Белгінің жеңілдеуі өт іркілуі жойылғанын көрсетпейді: функционалдық диспепсияның бірнеше механизмі бар.
Кофеоилхин эфирлері мен флавоноид гликозидтері гидролизденіп, метаболизмге түседі; микробиота заттар спектрін өзгертеді. Глюкурондау, сульфаттау және метилдеу белсенділігі мен таралуы бөлек метаболиттер береді. Жасуша тәжірибесіндегі бастапқы лютеолин концентрациясы ішілетін экстракттан кейінгі плазмалық экспозицияға тең емес (Wittemer et al., 2005).
Тасымал тәжірибелерінсіз MCT1/MCT4, PEPT1, SGLT1 немесе OATP1B1/1B3-ті цинарин мен барлық конъюгаттың әмбебап жолы деуге болмайды. PEPT1 негізінен ди- және трипептидтерді тасымалдайды; атауы полифенол тасымалын дәлелдемейді. Мүмкін деконъюгация мен энтерогепатикалық айналым үздіксіз терапиялық деңгей немесе қоспаның ортақ 6–12 сағат жартылай шығарылу мерзімін кепілдемейді.
Салыстыруға түр, мүше, еріткіш, DER, натив экстракт массасы, қосалқы заттар және аналитикалық маркер қажет. DER — бастапқы өсімдік пен алынған экстракт массаларының қатынасы, клиникалық күш емес. Маркерге шаққандағы кофеоилхин қышқылдарының жиынтығы таза цинарин мөлшерінен өзгеше. Өлшенген фракция аталмай «5%» жеткіліксіз.
Барлық фармакопеяға міндетті 4–6:1 DER немесе әмбебап 2,5–5% цинарин талаптарын телуге болмайды. EMA су формалары мен ұсақталған жапырақ сияқты әртүрлі препаратты қарастырады; барлық шайды жарамсыз деу де артық. Аналитикалық қайталанымның өзі тиімділікті дәлелдемейді.
Сынақ дозалары нақты өнім мен мақсатқа қатысты; олар әмбебап 500–1800 мг/тәулік протоколы емес. Диспепсия сынағының өзі басқа режим қолданған. Міндетті алдын ала қабылдау уақыты, су көлемі және барлық қоспаның пайдасы анықталмаған.
Қызыл ашытқы күрішінде фармакологиялық белсенді монаколиндер бар; статинді көтере алмау оны автоматты қауіпсіз етпейді. CoQ10 қосу бұлшықет белгілерін жоюға не изопреноидтарды толық өтеуге кепіл емес. Фитостеролдың ішектегі әсері NPC1L1-ді әмбебап тікелей тежеуден күрделірек. Берберин мен фосфолипид біріктірулеріне өзіндік дерек және өзара әсер бағасы керек. Ұсынылған жолдар синергияны дәлелдемейді; AMPK және LDLR/PCSK9 айырмашылығы берберин мен дигидроберберин туралы материалда түсіндіріледі.
Өт жолы бітелгенде, холангитте және бақылауды қажет ететін бауыр/өт ауруында өз бетімен қолдану орынсыз; тастар медициналық бағалауды қажет етеді. Артишок/Asteraceae аллергиясы маңызды. Диарея, іш түйілуі, жүрек айну, қыжыл және аллергиялық реакция болуы мүмкін. Шағын қысқа сынақтар ұзақ қауіпсіздікті анықтамайды. Жүктілік, емізу және балалар туралы деректер шектеулі; препарат нұсқаулығы мен медициналық жағдай ескеріледі (EMA, 2018).
Ауырсыну, сарғаю, қызба және өт ағуы бұзылғанда дозаны арттырмай, диагноз қою қажет. УДЗ мен зертханалық бақылау жағдайға байланысты; тас өлшемінің әмбебап шегі не талдау аралығы жоқ. Дислипидемияда жалпы жүрек-қантамыр қаупі мен жеткен липидтер, бауыр ауруында себеп пен ауырлық маңызды.
Бұл баяндаушы ғылыми материал бастапқы тақырыптарды сақтап, 2026 жылғы 8 қазанда күмәнді механизмдер мен клиникалық деректерді нысаналы тексерді. Қолжетімді бастапқы мақалалар, рефераттар, PDB жазбасы және реттеуші материал қолданылды; кейбір баспа мен EMA беттері ашылмады, ол жұмыс журналында көрсетілген. Жүйелі іздеу, тәуелсіз GRADE бағасы немесе сыртқы рецензия жүргізілген жоқ.
Күрделі химиясы мен жекелеген клиникалық белгілері артишокты зерттеу нысаны етеді. Қорытындыда препарат, мақсат және дәлел деңгейі көрсетілуі керек. Цинарин маркері, ықтимал өт әсері мен стеролдардың тәжірибелік реттелуі MASH емін, тас жоюды не клиникалық нәтижесі дәлелденген терапияны алмастыруды уәде етуге негіз емес.
Жоқ. Бұл қоспа маркері; лютеолин, гликозидтер және басқа заттардың белсенділігі мен алмасуы өзгеше.
Анықталмаған. 3LD6 құрамында кетоконазол бар; докинг кинетика мен клиникалық деректі алмастырмайды.
Жоқ. Біріншісі өт түзілуі, екіншісі шығу кедергісімен үйлескен өт қабының босатылуы.
Жоқ. Дозалар нақты экстракт пен сынақ мақсатына қатысты, бәріне ортақ протокол емес.
Тас пен өт ауруы медициналық бағалауды қажет етеді; өтті ынталандыру механикалық бітелуді жоймайды.