Alcachofa y cinarina: bilis, CYP51A1 y metabolismo lipídico — NutriFit
Extracto de alcachofa y cinarina: bilis, enzimas y lípidos
Química de cinarina, luteolina y cinaropicrina; coleresis, colecinesis, transportadores biliares, CYP51A1/HMGCR y resultados clínicos. Diferencias entre fisiología, células y evidencia humana.
El extracto de hoja de alcachofa es una mezcla investigada para la dispepsia y las alteraciones de los lípidos. La cinarina puede servir como marcador químico, pero no explica todos sus efectos. Hay que distinguir las reacciones químicas, la fisiología humana y los resultados obtenidos con un preparado concreto. Las afirmaciones de inhibición directa de CYP51A1 requieren especial cuidado: disponer de la estructura de la enzima no demuestra que la alcachofa la inhiba.
Botánica: hoja medicinal y capítulo comestible
La alcachofa cultivada pertenece a Cynara cardunculus, familia Asteraceae; el nombre histórico Cynara scolymus sigue siendo frecuente en farmacología. Su origen mediterráneo y parentesco con el cardo ayudan a entender la diversidad de cultivares. El uso histórico no demuestra la eficacia de un extracto moderno.
El receptáculo y las bases de las brácteas comestibles del capítulo inmaduro se diferencian de las hojas verdaderas, Cynarae folium, utilizadas como materia medicinal. El alimento aporta agua, fibra y fructanos, entre ellos inulina con enlaces predominantemente β-(2→1). La masa de una ración vegetal, del polvo de hoja y del extracto seco no es intercambiable. La extracción modifica la composición: la inulina de la planta no garantiza una cantidad clínicamente relevante en cada cápsula.
La vía fenilpropanoide, con PAL, C4H y 4CL, contribuye a los ácidos hidroxicinámicos; HQT participa en derivados cafeoilquínicos. El metabolismo terpenoide genera lactonas sesquiterpénicas. Cultivar, órgano, crecimiento, ambiente, secado y disolvente alteran las proporciones. No existe un porcentaje fijo de cinarina o luteolina aplicable a toda la materia vegetal.
Flavonas y ácidos fenólicos participan en la protección frente a luz y estrés oxidativo; las lactonas amargas contribuyen a la defensa química. Los grupos catecol pueden donar electrones o hidrógeno e interactuar con metales. Estas propiedades justifican investigar, pero el amargor y un ensayo antioxidante no determinan una dosis humana.
Tres grupos fitoquímicos y sus diferencias
Ácidos cafeoilquínicos
La cinarina es un éster de ácido quínico con dos residuos de ácido cafeico: C₂₅H₂₄O₁₂, aproximadamente 516,45 g/mol. Los nombres ácido 1,3- y 1,5-di-O-cafeoilquínico aparecen con convenciones diferentes de numeración. Conviene verificar la estructura utilizada, sin interpretar los números como prueba de principios activos distintos. El ácido clorogénico, normalmente 5-O-cafeoilquínico en la numeración moderna, es C₁₆H₁₈O₉, aproximadamente 354,31 g/mol; el ácido cafeico es C₉H₈O₄, 180,16 g/mol.
La esterificación, la isomería posicional y la hidrólisis modifican la solubilidad y las interacciones. Los fragmentos catecol pueden estabilizar radicales fenóxilo y coordinar metales de transición. Una reacción en solución no demuestra un efecto en la membrana del hepatocito: importan concentración, medio y metabolismo. Tampoco convierte la cinarina en inhibidor demostrado de todas las enzimas lipídicas.
Luteolina y glucósidos
La luteolina es 3′,4′,5,7-tetrahidroxiflavona, C₁₅H₁₀O₆, aproximadamente 286,24 g/mol. Su sistema conjugado y el catecol del anillo B influyen en la reactividad. El cinarósido es luteolina-7-O-glucósido, C₂₁H₂₀O₁₁, 448,38 g/mol; el escolimósido es luteolina-7-O-rutinósido, C₂₇H₃₀O₁₅, 594,52 g/mol. El enlace glucosídico no es un enlace éster ordinario.
El azúcar modifica la solubilidad acuosa y la entrada celular; la hidrólisis puede liberar la aglicona. Un experimento con luteolina libre y otro con un glucósido generan exposiciones distintas. La potenciación tras añadir β-glucosidasa a un modelo celular no establece la exposición hepática a luteolina libre después de un producto oral (Gebhardt, 2002).
Cinaropicrina y lactonas relacionadas
La cinaropicrina es un guayanólido amargo, C₁₉H₂₂O₆, aproximadamente 346,37 g/mol, con anillos fusionados y un grupo α-metileno-γ-lactona. Este grupo electrófilo puede reaccionar con tioles por adición de Michael, relevante tanto para efectos experimentales como para sensibilización. Entre los compuestos relacionados se encuentra la grosheimina. El escolimósido es un glucósido flavonoide y no pertenece a este grupo.
El amargor no mide el vaciamiento vesicular clínico. Aunque exista reconocimiento por receptores, hacen falta datos de exposición intestinal, secreción hormonal y motilidad humana.
Coleresis y colecinesis: procesos diferentes
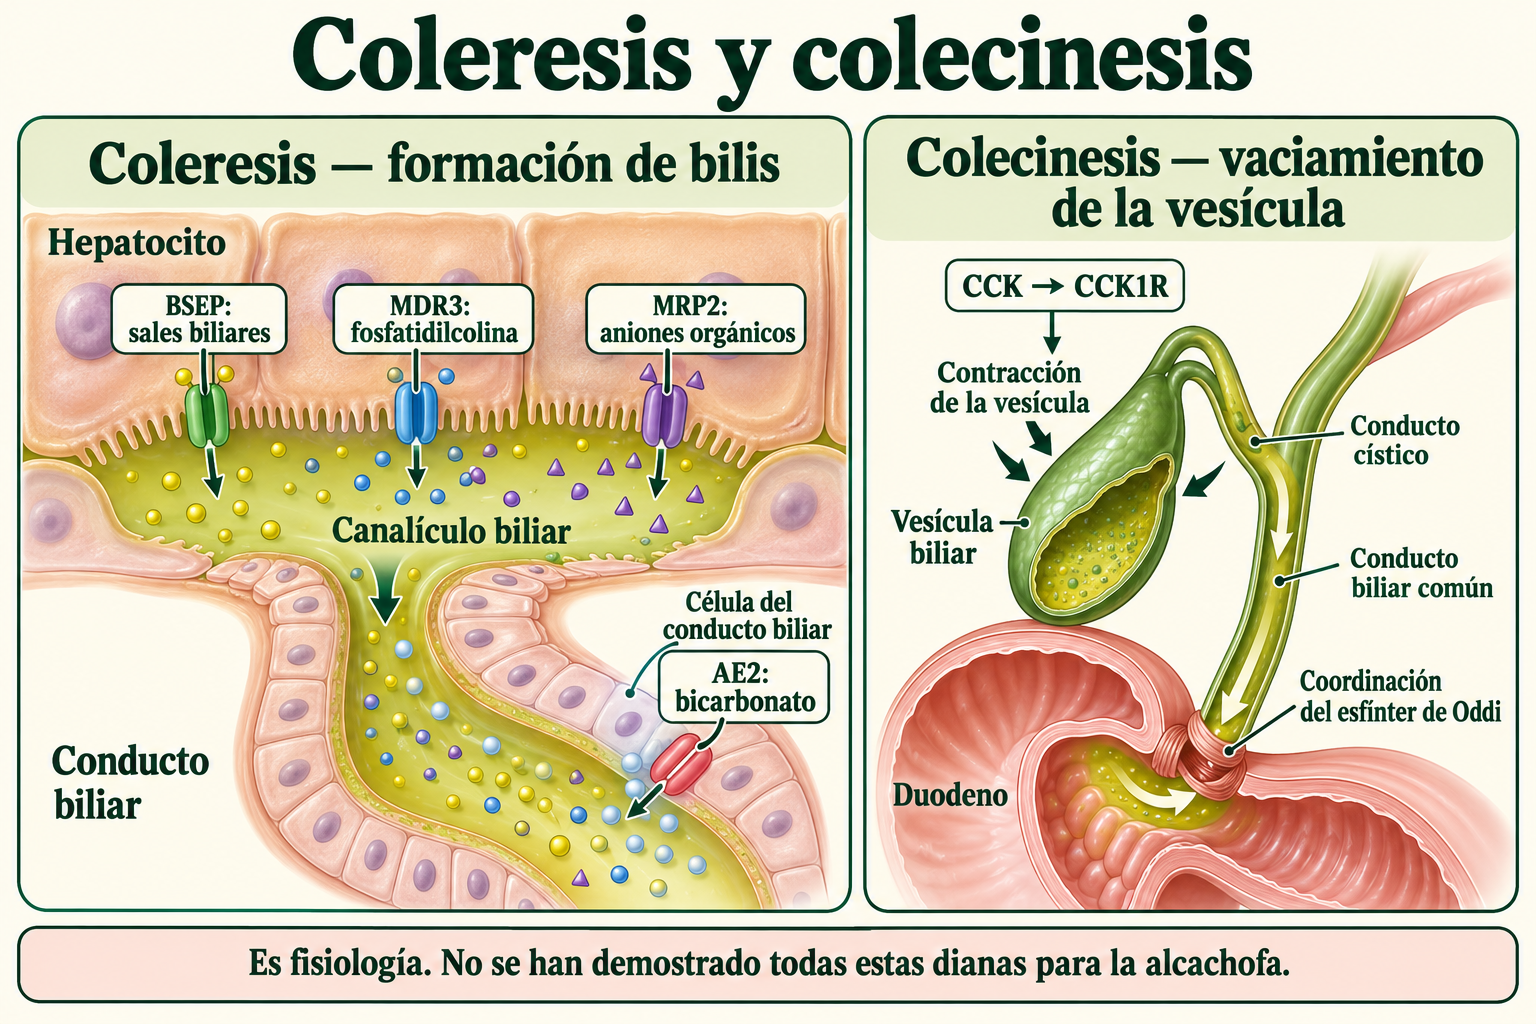
La coleresis es producción y secreción hepática de bilis, modificada después en los conductos. La colecinesis es vaciamiento de la vesícula y exige coordinar la contracción de su pared con la resistencia de salida. Más bilis en el duodeno no permite cuantificar automáticamente ambos componentes.
Hepatocito, canalículo y colangiocito
BSEP/ABCB11 exporta sales biliares en la membrana canalicular; MDR3/ABCB4 desplaza fosfatidilcolina hacia la hoja externa; MRP2/ABCC2 exporta aniones orgánicos, incluidos conjugados de bilirrubina. Los sustratos son diferentes. La fosfatidilcolina participa en micelas mixtas que reducen el daño de los ácidos biliares libres. La secreción de solutos aporta un componente osmótico al movimiento del agua. Esta es fisiología, no un mapa verificado de dianas del extracto (Trauner y Boyer, 2003).
Las células ductales añaden bicarbonato y agua. AE2/SLC4A2 intercambia Cl⁻ y HCO₃⁻ de forma electroneutra, dependiendo de gradientes y sistemas acoplados. La anhidrasa carbónica acelera una reacción reversible, sin producir bicarbonato independientemente del equilibrio:
CO2+H2O⇌H2CO3⇌H++HCO3−.
La capa apical de bicarbonato limita la entrada de ciertos ácidos biliares protonados. No demuestra activación de CA-II, AE2 o acuaporinas por alcachofa, menor viscosidad garantizada ni prevención de cálculos. Un porcentaje universal de flujo independiente de ácidos biliares o un pH protector fijo requieren contexto experimental (Medina, 2011).
FXR y retroalimentación
Los ácidos biliares actúan como señales para FXR/NR1H4, asociado a RXRα/NR2B1. Las vías hepática FXR–SHP e intestinal FXR–FGF19 intervienen en retroalimentación negativa de la síntesis de ácidos biliares; CYP7A1 cataliza un paso temprano de la vía clásica. Activar FXR e inducir CYP7A1 no puede representarse como una sola cadena de flechas positivas sin datos directos.
La identificación del receptor de ácidos biliares (Makishima et al., 1999) explica regulación, no una acción selectiva de cinarina. La inducción conjunta de BSEP, MDR3 y MRP2 con mantenimiento de CYP7A1 exige medir expresión, actividad y exposición del extracto concreto. La comparación con un agonista sintético no sustituye esas mediciones.
Amargor intestinal, CCK y músculo liso
Los receptores TAS2R también se encuentran fuera de la lengua. Estímulos amargos pueden inducir señales de calcio y liberación de colecistoquinina, CCK, en células experimentales (Chen et al., 2006). No establece la secuencia cinaropicrina–TAS2R10/14–célula I humana–CCK tras una dosis habitual.
La señal quimiosensorial puede incluir proteínas G, PLC, hidrólisis de PIP₂ a DAG e IP₃, liberación de Ca²⁺ del retículo endoplásmico, TRPM5 y canales dependientes de voltaje. Isoformas, subunidades y sensibilidad necesitan demostración en el sistema pertinente. Los detalles de la línea tumoral murina STC-1 no se transfieren automáticamente a células I humanas.
CCK1R interviene en la regulación vesicular. Calcio–calmodulina activa MLCK, que fosforila la cadena ligera reguladora de miosina; su equilibrio con MLCP determina la contracción. Las vías neuronales NO–sGC–cGMP y VIP–cAMP pueden contribuir a relajación de salida. La resistencia del esfínter no se vuelve obligatoriamente cero y la coordinación fisiológica no garantiza drenaje seguro ante un cálculo o estenosis. La bilis duodenal aumentada no confirma todos los eslabones del mecanismo propuesto.
Síntesis de esteroles: interpretación de las enzimas
HMGCR y AMPK
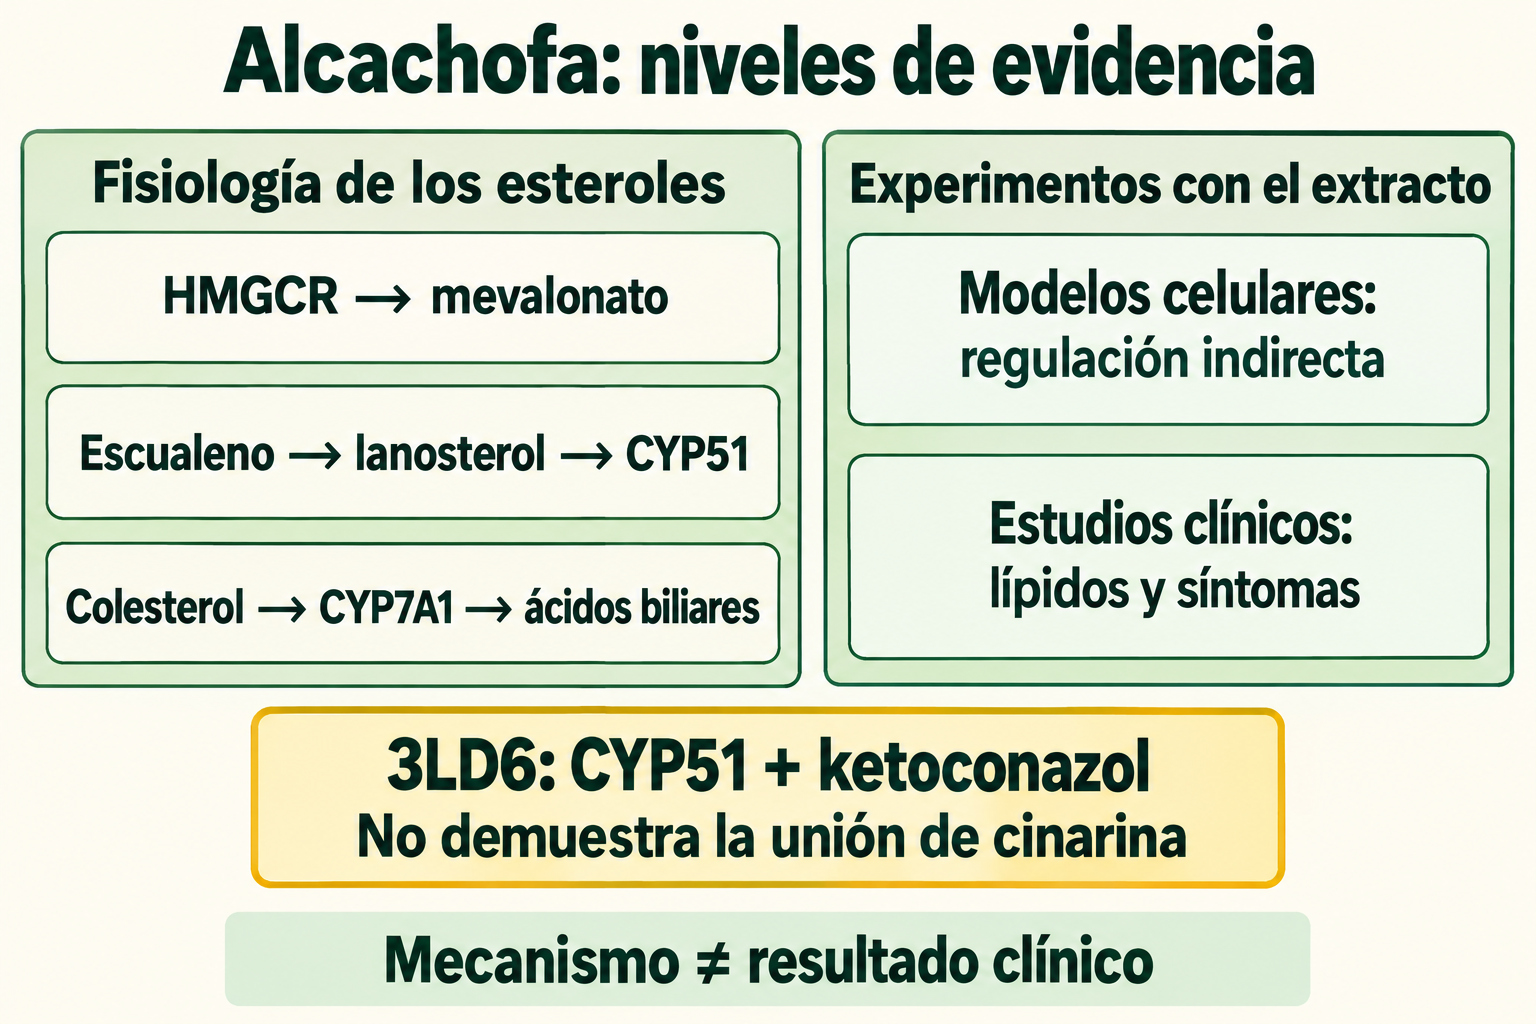
HMG-CoA reductasa, HMGCR, convierte HMG-CoA en mevalonato en la parte inicial de la síntesis. AMPK puede reducir su actividad mediante fosforilación, incluida Ser872 humana. Thr172 de AMPK regula la propia cinasa: las posiciones pertenecen a proteínas distintas.
Gebhardt (1998) propuso regulación indirecta de HMGCR en un modelo celular; cinarina no fue el componente activo principal. El estudio no estableció la secuencia LKB1/CaMKKβ–AMPK–Ser872. Una vía fisiológica plausible no demuestra el mecanismo del extracto oral, y «indirecto» no significa equivalente a una estatina.
CYP51A1: estructura y límites
La epoxidación y ciclación del escualeno producen lanosterol. CYP51A1 es una esterol-14α-desmetilasa microsómica con hemo y el socio redox POR. Oxidaciones sucesivas eliminan el grupo 14α-metilo; otras reacciones generan intermediarios posteriores. Es un paso obligatorio, pero no la primera enzima después del escualeno ni el único paso universalmente limitante. Las ramas de Bloch y Kandutsch–Russell difieren en el orden de las transformaciones de la cadena lateral.
PDB 3LD6 es CYP51 humana unida a ketoconazol (Strushkevich et al., 2010), no a luteolina o cinarina. El acoplamiento computacional propone una posición del ligando; demostrar inhibición requiere cinética enzimática, concentración y selectividad. No se ha establecido un bloqueo completo de CYP51 o escualeno sintasa por cinarina. No deben presentarse como dianas comprobadas del extracto.
CYP7A1, exportación y LDLR
CYP7A1 hidroxila colesterol en la vía clásica de ácidos biliares:
La ecuación describe función enzimática, no inducción demostrada por alcachofa. ABCG5/ABCG8 participan en secreción de esteroles; ASBT, en reabsorción intestinal de ácidos biliares. Secretar en bilis no equivale a eliminar del organismo porque gran parte retorna por circulación enterohepática. Afirmar secuestro por «inulina del extracto» exige conocer composición real y balance fecal.
El descenso de esteroles del retículo puede liberar SCAP–SREBP-2 de INSIG. Transporte al Golgi y procesamiento S1P/S2P producen un factor nuclear regulador de LDLR y enzimas de síntesis. La supresión total y activación de SREBP-2 no forman una explicación única. LDLR reconoce LDL mediante ApoB-100 y diversos remanentes mediante ApoE; las partículas ApoB no son sustratos idénticos. La reducción clínica de LDL-C no identifica por sí sola un mecanismo LDLR.
Endotelio, oxidación de LDL y protección celular
Se estudiaron flavonoides de alcachofa y expresión de eNOS en cultivos endoteliales (Li et al., 2004). Cantidad de proteína y fosforilación son niveles distintos. Cambios específicos en Ser1177, Thr495 o Sp1/GATA requieren las mediciones correspondientes. Mejorar un marcador vascular tampoco demuestra menos infartos.
El extracto rico en luteolina se investigó en oxidación de LDL aisladas (Brown y Rice-Evans, 1998). Retrasar oxidación en laboratorio no demuestra bloqueo humano de CD36/SR-A1. Es incorrecto afirmar que solo LDL oxidada es aterogénica: la retención arterial de lipoproteínas ApoB también es fundamental. La química antioxidante no elimina la evaluación de concentración y exposición acumulada a LDL.
Nrf2–Keap1–ARE regula la adaptación a estrés electrófilo y oxidativo. Estabilización de Nrf2, interacción con pequeñas Maf y transcripción pueden modificar síntesis de glutatión y enzimas protectoras. SOD convierte superóxido en H₂O₂ y no es enzima del ciclo del glutatión. GPX usa glutatión reducido para reducir peróxidos; HO-1 degrada hemo en biliverdina, CO y hierro que necesita manejo seguro. El contexto se amplía en GPX4 y peróxidos lipídicos y SOD2 mitocondrial.
Los experimentos de lesión tóxica en hepatocitos aislados y animales (Adzet et al., 1987; Gebhardt y Fausel, 1997; Speroni et al., 2003) no demuestran recuperación en todas las enfermedades hepáticas humanas. La fisiología general de Nrf2 no establece modificaciones específicas de Keap1, GSH/GSSG >100:1 universal, cierre de mPTP o prevención de muerte celular en cada paciente.
Resultados clínicos y límites
Área
Evaluación
Incertidumbre
Lípidos
Ensayos breves de extractos concretos y resultados agrupados
Experimento pequeño con administración intestinal directa
Cápsulas habituales, transportadores y motilidad específicos
Hígado graso
Transaminasas y marcadores de imagen
Remisión histológica de MASH, fibrosis y desenlaces clínicos
Dispepsia
Escalas de síntomas en ensayo controlado
Mecanismo biliar obligatorio e indicación universal
SII
Subgrupo sin control placebo adecuado
Eficacia causal en distintos fenotipos
Englisch et al. (2000) estudiaron 1800 mg/día seis semanas en 143 adultos. El porcentaje de cambio dentro del grupo difiere del efecto ajustado frente a placebo. Sahebkar et al. (2018) agrupó ensayos breves: una estimación en mg/dl no garantiza un porcentaje para cualquier LDL-C basal. La revisión Cochrane de Wider et al. (2013) no establece prevención de eventos cardiovasculares. Las diferencias de composición, dosis y población limitan la inferencia.
Kirchhoff et al. (1994) administraron 1,92 g directamente en el duodeno a 20 participantes, con comparación placebo. No es un régimen oral habitual ni demuestra obligatoriedad de tomarlo 20–30 minutos antes de comer.
Panahi et al. (2018) realizaron un piloto de NAFLD con 600 mg/día durante dos meses; Rangboo et al. (2016) evaluaron transaminasas. NAFLD/NASH históricos no equivalen automáticamente a MASH confirmada histológicamente. ALT, AST, FLI, ecografía y biopsia miden cosas distintas. FLI combina antropometría y laboratorio, no mide directamente la grasa hepática. No se usan como pruebas cifras exactas sin verificar ni el supuesto «SteatoChoke-Study 2026».
Holtmann et al. (2003) reclutaron 247 pacientes con dispepsia: 2×320 mg tres veces al día, 1920 mg/día durante seis semanas, no 640 mg/día. Bundy et al. (2004) es un análisis de subgrupo, no una demostración controlada con placebo de tratamiento del SII. La mejoría sintomática no demuestra desaparición de estasis biliar; la dispepsia funcional tiene mecanismos múltiples.
Farmacocinética y calidad
Los ésteres cafeoilquínicos y glucósidos flavonoides sufren hidrólisis y metabolismo; la microbiota modifica el espectro. Glucuronidación, sulfatación y metilación generan metabolitos con distribución y actividad distintas. La concentración de luteolina original en células no equivale a exposición plasmática tras extracto oral (Wittemer et al., 2005).
Sin experimentos de transporte, MCT1/MCT4, PEPT1, SGLT1 u OATP1B1/1B3 no son rutas universales demostradas de cinarina y todos los conjugados. PEPT1 transporta principalmente di- y tripéptidos; su nombre no demuestra transporte de polifenoles. Desconjugación y reciclaje enterohepático posibles no garantizan concentraciones terapéuticas continuas ni una semivida única de 6–12 horas.
Para comparar productos hacen falta especie, órgano, disolvente, DER, masa de extracto nativo, excipientes y marcadores analíticos. DER es relación de masas de planta inicial y extracto obtenido, no potencia clínica. La suma de ácidos cafeoilquínicos expresada como marcador difiere de cinarina pura. «5%» sin identificar la fracción es insuficiente.
No se puede atribuir a todas las farmacopeas un DER obligatorio 4–6:1 ni cinarina universal de 2,5–5%. EMA considera preparados distintos, incluidos acuosos y hoja triturada; prohibir todo té es excesivo. Reproducibilidad analítica no demuestra eficacia por sí sola.
Dosis, combinaciones y seguridad
Las dosis de ensayos corresponden a productos y objetivos concretos, no a un protocolo universal de 500–1800 mg/día. El ensayo de dispepsia utilizó otro régimen. No se han establecido horarios preventivos obligatorios, volumen fijo de agua o beneficio de todas las combinaciones.
El arroz de levadura roja contiene monacolinas farmacológicamente activas; intolerancia a estatinas no lo hace automáticamente seguro. CoQ10 añadida no garantiza eliminar síntomas musculares ni compensar completamente isoprenoides. Los fitoesteroles modifican absorción intestinal de manera más compleja que inhibición directa universal de NPC1L1. Mezclas con berberina y fosfolípidos necesitan evidencia propia y evaluación de interacciones. Los mecanismos sugeridos no prueban sinergia; véase berberina y dihidroberberina para AMPK y LDLR/PCSK9.
La automedicación no es apropiada ante obstrucción biliar, colangitis o enfermedad hepática/biliar que requiera supervisión; los cálculos necesitan valoración. Importa la alergia a alcachofa/Asteraceae. Pueden aparecer diarrea, espasmos abdominales, náuseas, ardor y reacciones alérgicas. Ensayos pequeños y breves no establecen seguridad prolongada. Los datos de embarazo, lactancia e infancia son limitados; cuentan las instrucciones del preparado y el contexto médico (EMA, 2018).
Dolor, ictericia, fiebre o signos de obstrucción requieren diagnóstico, no aumentar la dosis. Ecografía y análisis dependen del caso, sin umbral universal del tamaño de cálculo o intervalo obligatorio. La dislipidemia se evalúa con riesgo cardiovascular y lípidos alcanzados; la enfermedad hepática, con causa y gravedad.
Método e interpretación
Este material narrativo sigue los temas originales y verifica específicamente mecanismos discutibles y datos clínicos el 8 de octubre de 2026. Se utilizaron publicaciones primarias disponibles, resúmenes, el registro PDB y material regulatorio; algunas páginas de editoriales y EMA no fueron accesibles, como consta en el registro de trabajo. No se realizó búsqueda sistemática, evaluación GRADE independiente ni revisión externa.
La alcachofa sigue siendo un objeto de investigación por su química compleja y algunas señales clínicas. Interpretar requiere identificar preparado, objetivo y nivel de evidencia. La cinarina como marcador, posibles efectos biliares y regulación experimental de esteroles no justifican prometer tratamiento de MASH, eliminación de cálculos o sustitución de terapias con desenlaces clínicos establecidos.
Preguntas frecuentes
¿La cinarina explica todos los efectos?
No. Es marcador de una mezcla; luteolina, glucósidos y otros componentes difieren en actividad y metabolismo.
¿Se ha demostrado bloqueo de CYP51A1?
No está establecido. 3LD6 contiene ketoconazol; el acoplamiento computacional no sustituye cinética y datos clínicos.
¿Coleresis y colecinesis son iguales?
No. La primera es producción de bilis; la segunda es vaciamiento vesicular coordinado con la resistencia de salida.
¿Existe una dosis universal?
No. Las dosis corresponden a extractos y objetivos concretos, no a un protocolo para todas las personas.
¿Puede usarse con cálculos?
Los cálculos y enfermedades biliares requieren valoración médica; estimular bilis no elimina una obstrucción mecánica.