
Екстракт листя артишоку й цинарин: жовч, ферменти та ліпіди
Хімія цинарину, лютеоліну й цинаропікрину; холерез, холекінез, транспортери жовчі, CYP51A1/HMGCR та клінічні результати. Відмінності фізіології, клітинних дослідів і людських доказів.
Хімія цинарину, лютеоліну й цинаропікрину; холерез, холекінез, транспортери жовчі, CYP51A1/HMGCR та клінічні результати. Відмінності фізіології, клітинних дослідів і людських доказів.
Екстракт листя артишоку — суміш, яку досліджують при диспепсії та порушеннях ліпідного обміну. Цинарин може бути хімічним маркером, але не пояснює всі ефекти. Потрібно розрізняти хімічні реакції, фізіологічні шляхи організму й результати застосування певного препарату в людей. Особливої перевірки потребує пряме інгібування CYP51A1: наявність структури людського ферменту не доводить дію артишоку.
Культурний артишок належить до Cynara cardunculus родини Asteraceae; історичне Cynara scolymus широко вживають у фармакологічних публікаціях. Середземноморське походження та спорідненість із кардоном допомагають зрозуміти різноманіття сортів. Історичне використання не замінює перевірку сучасного екстракту.
Їстівне квітколоже й основи приквітків незрілого суцвіття відрізняються від справжнього листя — лікарської сировини Cynarae folium. Їжа містить воду, клітковину та фруктани, зокрема інулін із переважними β-(2→1)-зв’язками. Маса овочевої порції, порошку листя й сухого екстракту не взаємозамінна. Екстракція змінює склад: інулін у рослині не означає клінічно значущої кількості в кожній капсулі.
Фенілпропаноїдний шлях через PAL, C4H і 4CL пов’язаний з утворенням гідроксикоричних кислот; HQT бере участь у синтезі кофеїлхінних похідних. Терпеноїдний обмін забезпечує сесквітерпенові лактони. Сорт, орган, стадія росту, умови, сушіння та розчинник змінюють співвідношення груп. Фіксовані відсотки цинарину чи лютеоліну не можна поширювати на всю сировину.
Флавони й фенольні кислоти беруть участь у захисті рослини від світлового та окисного стресу, а гіркі лактони — у хімічному захисті. Катехольні групи можуть віддавати електрони або водень і взаємодіяти з металами. Це пояснює дослідницький інтерес, але гіркота чи антиоксидантний тест не визначають дозу для людини.
Цинарин — естер хінної кислоти з двома залишками кавової кислоти: C₂₅H₂₄O₁₂, близько 516,45 г/моль. Назви 1,3- і 1,5-ди-O-кофеїлхінна кислота зустрічаються за різних систем нумерації. Порівнюючи аналізи, слід перевіряти структуру, а не трактувати номери як доказ різних активних речовин. Хлорогенова кислота, зазвичай 5-O-кофеїлхінна в сучасній нумерації, має формулу C₁₆H₁₈O₉ і масу 354,31 г/моль; кавова кислота — C₉H₈O₄ і 180,16 г/моль.
Естерифікація, позиційна ізомерія й гідроліз змінюють розчинність та взаємодії. Катехольні фрагменти можуть стабілізувати феноксильні радикали й зв’язувати метали. Реакція в розчині не доводить дію в мембрані гепатоцита: важливі концентрація, середовище та метаболіти. Цинарин також не є автоматично підтвердженим інгібітором усіх ферментів ліпідного обміну.
Лютеолін — 3′,4′,5,7-тетрагідроксифлавон, C₁₅H₁₀O₆, близько 286,24 г/моль. Спряжена флавонова система й катехольне кільце B визначають реактивність. Цинарозид — лютеолін-7-O-глюкозид, C₂₁H₂₀O₁₁, 448,38 г/моль; сколімозид — лютеолін-7-O-рутинозид, C₂₇H₃₀O₁₅, 594,52 г/моль. Глікозидний зв’язок не є звичайним естерним.
Цукор змінює водорозчинність і надходження в клітину, а гідроліз може вивільняти аглікон. Тому досліди з вільним лютеоліном і його глікозидом мають різну експозицію. Посилення клітинного ефекту після додавання β-глюкозидази не встановлює печінкову концентрацію вільного лютеоліну після перорального продукту (Gebhardt, 2002).
Цинаропікрин — гіркий гваянолід, C₁₉H₂₂O₆, близько 346,37 г/моль, зі сполученими кільцями та α-метилен-γ-лактонною групою. Ця електрофільна група здатна до приєднання Міхаеля з тіолами; реактивність важлива і для досліджень, і для сенсибілізації. Серед споріднених речовин є гросгеймін. Сколімозид належить до флавоноідних глікозидів, тому його не слід зараховувати до лактонів.
Гіркота не вимірює клінічний холекінетичний ефект. Навіть розпізнавання рецептором потребує окремих даних про кишкову експозицію, гормональну секрецію та моторику людини.
Холерез — утворення та секреція жовчі печінкою з подальшою зміною в протоках. Холекінез — спорожнення жовчного міхура, для якого потрібне узгодження скорочення стінки з опором на виході. Збільшення дуоденальної жовчі саме по собі не визначає внесок обох процесів.
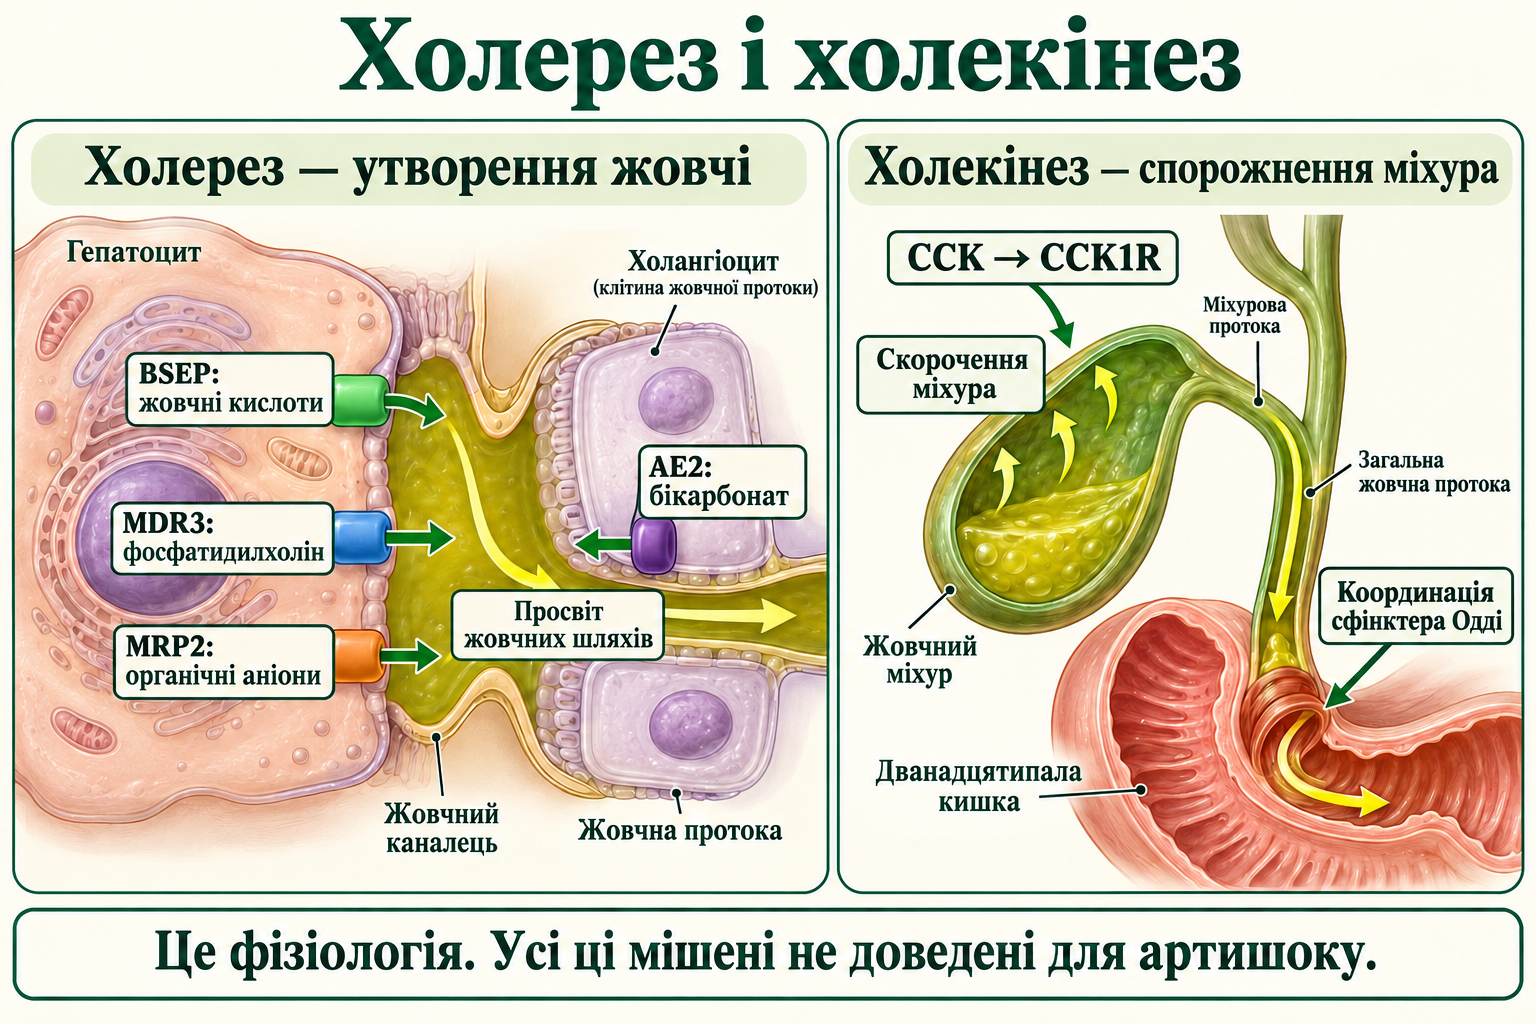
Каналікулярний BSEP/ABCB11 експортує жовчні солі; MDR3/ABCB4 переносить фосфатидилхолін до зовнішнього шару мембрани; MRP2/ABCC2 виводить органічні аніони, зокрема кон’югати білірубіну. Їхні субстрати відрізняються. Фосфатидилхолін бере участь у змішаних міцелах, що зменшують ушкоджувальну дію вільних жовчних кислот. Секреція розчинених речовин створює осмотичну складову руху води. Це фізіологія, а не підтверджена карта мішеней артишоку (Trauner і Boyer, 2003).
Клітини проток додають бікарбонат і воду. AE2/SLC4A2 здійснює електронейтральний обмін Cl⁻/HCO₃⁻, залежний від градієнтів і сполучених систем. Карбоангідраза прискорює оборотну реакцію, не утворюючи бікарбонат незалежно від рівноваги:
Бікарбонатний шар біля апікальної поверхні обмежує проникнення певних протонованих жовчних кислот. Концепція захисту не доводить активацію CA-II, AE2 чи аквапоринів артишоком, гарантоване розрідження жовчі або запобігання каменям. Універсальний відсоток незалежного від жовчних кислот потоку чи незмінний захисний pH також потребують контексту моделі (Medina, 2011).
Жовчні кислоти сигналізують через FXR/NR1H4, що взаємодіє з RXRα/NR2B1. Печінкова вісь FXR–SHP і кишкова FXR–FGF19 беруть участь у негативному зворотному зв’язку синтезу жовчних кислот; CYP7A1 каталізує ранню стадію класичного шляху. Тому активацію FXR і стимуляцію CYP7A1 не можна об’єднувати в одну позитивну стрілку без прямого доказу.
Виявлення рецептора жовчних кислот (Makishima et al., 1999) пояснює регуляцію, але не селективну дію цинарину. Спільна індукція BSEP, MDR3 і MRP2 зі збереженням CYP7A1 потребує вимірювань експресії, активності й експозиції певного екстракту. Порівняння із синтетичним агоністом таких вимірювань не замінює.
TAS2R існують також поза язиком. Гіркі стимули можуть спричиняти кальцієвий сигнал і вивільнення холецистокініну, CCK, у модельних клітинах (Chen et al., 2006). Це не встановлює ланцюг цинаропікрин–TAS2R10/14–людська I-клітина–CCK після звичайної дози.
Хемосенсорний каскад може включати G-білки, PLC, гідроліз PIP₂ до DAG та IP₃, вихід Ca²⁺ з ендоплазматичного ретикулума, TRPM5 і потенціалзалежні канали. Ізоформи, субодиниці та чутливість треба підтверджувати у відповідній системі. Деталі з пухлинної мишачої лінії STC-1 не можна автоматично переносити на людські I-клітини.
CCK1R бере участь у регуляції міхура. Кальцій–кальмодулін активує MLCK, яка фосфорилює регуляторний легкий ланцюг міозину; баланс із MLCP впливає на скоротливість. Нервові шляхи NO–sGC–cGMP і VIP–cAMP можуть сприяти розслабленню вихідного сфінктера. Проте його опір не обов’язково стає нульовим, а фізіологічна координація не гарантує безпечного відтоку при камені чи стриктурі. Більша кількість жовчі не підтверджує кожну ланку запропонованої дії екстракту.
HMG-CoA-редуктаза, HMGCR, перетворює HMG-CoA на мевалонат на початку синтезу стеролів. AMPK може знижувати її активність через фосфорилювання, зокрема Ser872 людського ферменту. Thr172 AMPK стосується регуляції самої кінази: ці позиції належать різним білкам.
Gebhardt (1998) запропонував непряму регуляцію HMGCR у клітинній моделі; цинарин не був головним активним компонентом. Робота не встановила послідовність LKB1/CaMKKβ–AMPK–Ser872. Фізіологічно можливий шлях не є доведеним механізмом перорального екстракту, а «непрямий» не означає еквівалентність статину.
Епоксидування й циклізація сквалену утворюють ланостерол. CYP51A1 — мікросомальна стерол-14α-деметилаза з гемом і редокс-партнером POR. Послідовні окиснення видаляють 14α-метильну групу; наступні реакції утворюють інші стерольні проміжні продукти. Це обов’язкова стадія, але не перший фермент після сквалену й не універсальне єдине лімітуюче звено. Гілки Блоха та Кандютша–Рассела відрізняються порядком змін бічного ланцюга.
PDB 3LD6 — людський CYP51 із кетоконазолом (Strushkevich et al., 2010), а не лютеоліном або цинарином. Докінг припускає положення ліганду; доказ інгібування потребує кінетики ферменту, концентрацій і селективності. Повний блок CYP51 чи скваленсинтази цинарином не встановлений. Їх не слід зображати доведеними мішенями екстракту.
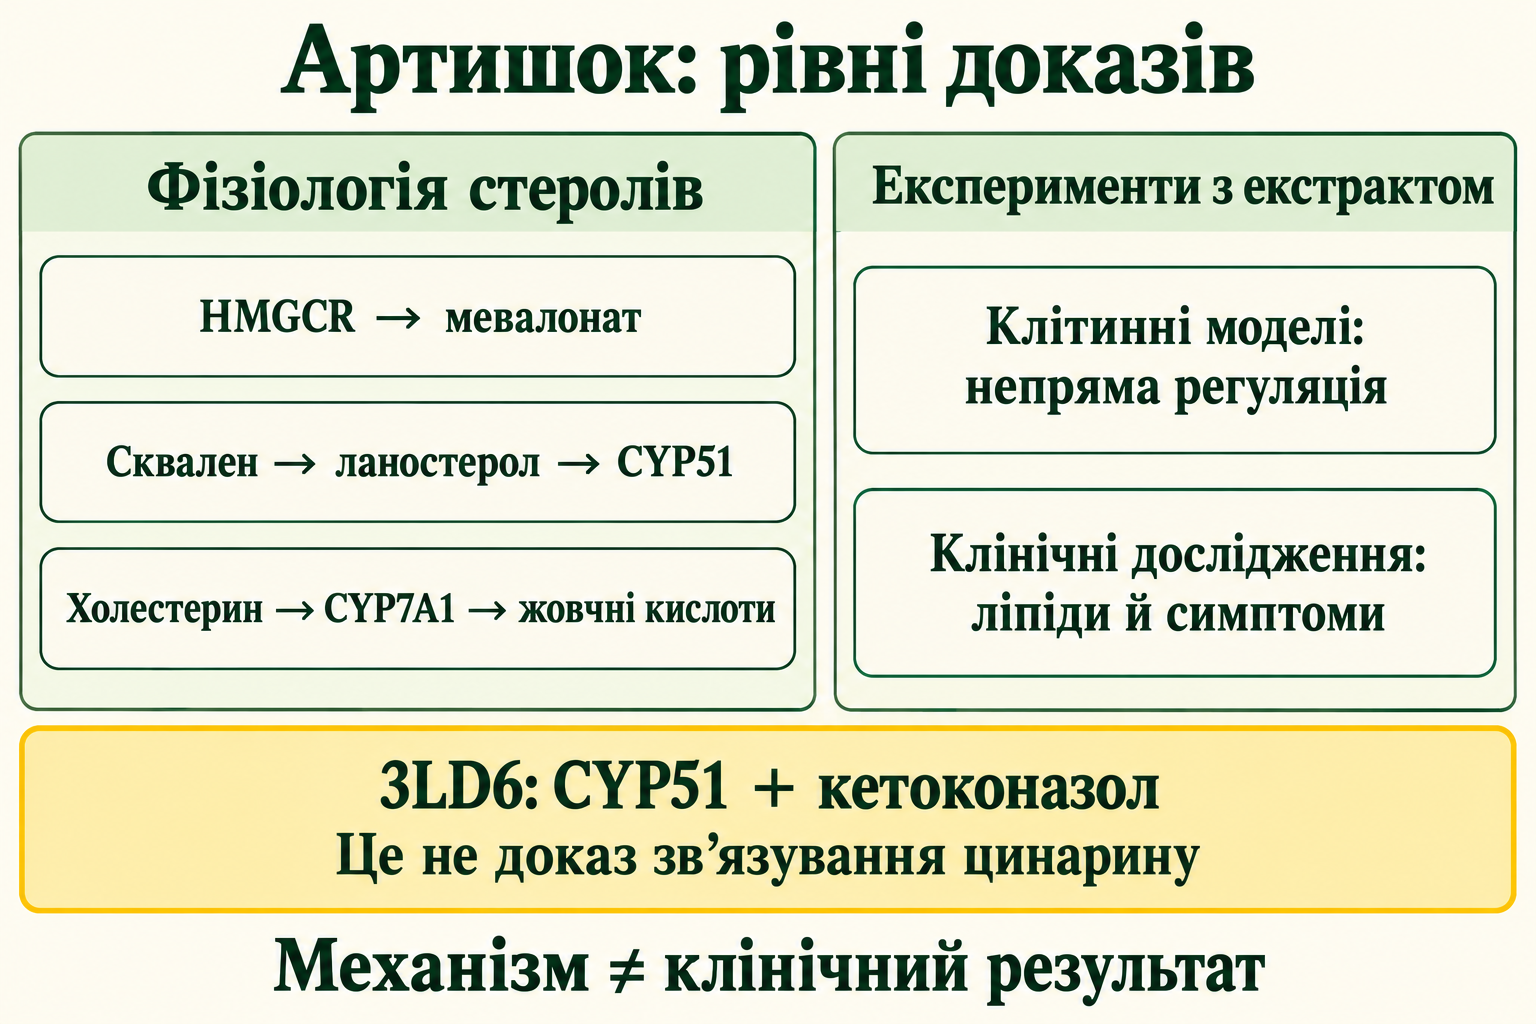
CYP7A1 гідроксилює холестерин у класичному шляху жовчних кислот:
Це функція ферменту, а не доведена індукція артишоком. ABCG5/ABCG8 беруть участь у секреції стеролів, ASBT — у кишковій реабсорбції жовчних кислот. Секреція в жовч відрізняється від виведення з організму: значна частина повертається ентерогепатично. Заява про зв’язування «інуліном екстракту» потребує даних складу й фекального балансу.
Зниження стеролу в ретикулумі може вивільняти SCAP–SREBP-2 з утримання INSIG. Транспорт до Гольджі й протеоліз S1P/S2P утворюють ядерний фактор, що регулює LDLR і ферменти синтезу холестерину. Тотальне пригнічення та активація SREBP-2 не становлять єдиного пояснення. LDLR розпізнає LDL через ApoB-100, а певні ремнанти через ApoE; усі апоB-частинки не є однаковими субстратами. Клінічне зниження LDL-C не визначає механізм LDLR.
Флавоноїди артишоку досліджували щодо експресії eNOS в ендотеліальних культурах (Li et al., 2004). Кількість ферменту й фосфорилювання — різні рівні регуляції. Конкретні зміни Ser1177, Thr495 або Sp1/GATA потребують відповідних вимірювань. Поліпшення судинного сурогату також не доводить зменшення інфарктів.
Лютеоліновмісний екстракт досліджували при окисненні виділених LDL (Brown і Rice-Evans, 1998). Затримка лабораторного окиснення не доводить блокаду CD36/SR-A1 у людини. Твердження, що тільки окиснені LDL атерогенні, хибне: утримання апоB-ліпопротеїнів у стінці артерії саме є важливим. Антиоксидантна хімія не усуває оцінювання концентрації й накопиченої експозиції LDL.
Nrf2–Keap1–ARE регулює адаптацію до електрофільного й окисного стресу. Стабілізація Nrf2, взаємодія з малими Maf і транскрипція можуть змінювати синтез глутатіону та захисні ферменти. SOD перетворює супероксид на H₂O₂ і не належить до глутатіонового циклу. GPX витрачає відновлений глутатіон для відновлення пероксидів; HO-1 розщеплює гем до білівердину, CO і заліза, що потребує безпечного зв’язування. Деталі наведено в матеріалах про GPX4 і ліпідні пероксиди та мітохондріальну SOD2.
Досліди токсичного ушкодження гепатоцитів і тварин (Adzet et al., 1987; Gebhardt і Fausel, 1997; Speroni et al., 2003) не доводять відновлення при всіх хворобах людської печінки. Загальна біологія Nrf2 не встановлює конкретних змін Keap1, універсального GSH/GSSG >100:1, закриття mPTP або запобігання загибелі клітин у кожного пацієнта.
| Сфера | Що оцінювали | Невизначеність |
|---|---|---|
| Ліпіди | Короткі випробування певних екстрактів і об’єднані результати | Серцево-судинні події, тривала безпека, взаємозамінність |
| Дуоденальна жовч | Малий дослід із прямим кишковим введенням | Звичайні капсули, конкретні транспортери й моторика |
| Жирова хвороба печінки | Трансамінази й візуалізаційні сурогати | Гістологічна ремісія MASH, фіброз, клінічні наслідки |
| Диспепсія | Симптомні шкали контрольованого дослідження | Обов’язковий біліарний механізм, універсальні показання |
| СПК | Підгрупа без належного плацебо-контролю | Причинна ефективність у різних фенотипах |
Englisch et al. (2000) досліджували 1800 мг/добу шість тижнів у 143 дорослих. Відсоток зміни всередині групи відрізняється від ефекту порівняно з плацебо. Sahebkar et al. (2018) об’єднали короткі дослідження: оцінка в мг/дл не гарантує відсоток при будь-якому вихідному LDL-C. Cochrane-огляд Wider et al. (2013) не встановлює профілактику серцево-судинних подій. Відмінності складу, доз і популяцій обмежують висновки.
Kirchhoff et al. (1994) вводили 1,92 г безпосередньо в дванадцятипалу кишку 20 учасникам із порівнянням плацебо. Це не звичайний пероральний режим і не доказ обов’язкового прийому за 20–30 хвилин до їжі.
Panahi et al. (2018) провели двомісячне пілотне дослідження NAFLD із 600 мг/добу; Rangboo et al. (2016) оцінювали трансамінази. Історичні NAFLD/NASH не дорівнюють автоматично гістологічно підтвердженій MASH. ALT, AST, FLI, УЗД і біопсія — різні показники. FLI поєднує антропометрію й лабораторію, а не прямо вимірює жир печінки. Неперевірені точні числа та заявлений «SteatoChoke-Study 2026» не використовуються як докази.
Holtmann et al. (2003) включили 247 людей із диспепсією: 2×320 мг тричі на день, разом 1920 мг/добу шість тижнів, а не 640 мг/добу. Bundy et al. (2004) — аналіз підгрупи, не плацебо-контрольований доказ лікування СПК. Симптомне покращення не доводить усунення біліарного стазу; функціональна диспепсія має кілька механізмів.
Кофеїлхінні естери та флавоноїдні глікозиди гідролізуються й метаболізуються; мікробіота змінює спектр речовин. Глюкуронування, сульфатування й метилування утворюють метаболіти з іншою активністю та розподілом. Концентрація початкового лютеоліну в клітинному досліді не відповідає плазменній експозиції після перорального екстракту (Wittemer et al., 2005).
Без транспортних дослідів MCT1/MCT4, PEPT1, SGLT1 або OATP1B1/1B3 не можна називати універсальними шляхами цинарину й усіх кон’югатів. PEPT1 переносить переважно ди- й трипептиди; назва не доводить транспорт поліфенолів. Можливі декон’югація та ентерогепатичний цикл не гарантують безперервної терапевтичної концентрації чи спільного періоду напіввиведення 6–12 годин.
Для порівняння потрібні вид, орган, розчинник, DER, маса нативного екстракту, допоміжні речовини й аналітичні маркери. DER — співвідношення мас вихідної рослини та екстракту, а не клінічна потужність. Сума кофеїлхінних кислот у перерахунку на маркер відрізняється від чистого цинарину. «5%» без назви фракції недостатньо.
Не можна приписувати всім фармакопеям обов’язковий DER 4–6:1 чи універсальні 2,5–5% цинарину. EMA розглядає різні препарати, включно з водними формами й подрібненим листям; повна заборона чаю надмірна. Аналітична відтворюваність сама не доводить ефективність.
Дози випробувань стосуються конкретних препаратів і цілей, а не універсального протоколу 500–1800 мг/добу. Навіть диспепсичне дослідження використало інший режим. Обов’язковий профілактичний час, об’єм води та користь усіх поєднань не встановлені.
Червоний дріжджовий рис містить фармакологічно активні монаколіни; непереносимість статинів не робить його автоматично безпечним. CoQ10 не гарантує усунення м’язових симптомів чи повної компенсації ізопреноїдів. Фітостероли впливають на всмоктування складніше, ніж пряме універсальне інгібування NPC1L1. Поєднання з берберином і фосфоліпідами потребують власних даних і оцінювання взаємодій. Припущення не доводять синергію; різницю AMPK і LDLR/PCSK9 розглянуто в берберині й дигідроберберині.
Самолікування недоречне при обструкції жовчних шляхів, холангіті й хворобах печінки або жовчних шляхів, що потребують нагляду; камені вимагають медичного оцінювання. Важлива алергія на артишок/Asteraceae. Можливі діарея, спазми живота, нудота, печія й алергічні реакції. Малі короткі випробування не встановлюють тривалу безпеку. Дані вагітності, лактації та дитячого віку обмежені; слід ураховувати інструкцію препарату та медичний контекст (EMA, 2018).
Біль, жовтяниця, гарячка й порушення відтоку потребують діагностики, а не більшої дози. УЗД та лабораторний нагляд залежать від ситуації, без універсального розміру каменя чи інтервалу аналізів. При дисліпідемії важливі загальний серцево-судинний ризик і досягнуті ліпіди; при хворобі печінки — причина й тяжкість.
Цей наративний науковий матеріал зберігає теми оригіналу й адресно перевіряє спірні механізми та клінічні деталі 8 жовтня 2026 року. Використано доступні первинні публікації, реферати, запис PDB та регуляторні матеріали; частина сторінок видавців і EMA була недоступна, що зафіксовано в журналі. Систематичний пошук, незалежне GRADE-оцінювання та зовнішнє рецензування не проводилися.
Артишок залишається об’єктом досліджень завдяки складній хімії та окремим клінічним сигналам. Висновок потребує зазначити препарат, мету й рівень доказів. Маркер цинарин, можливі жовчні ефекти й експериментальна регуляція стеролів не виправдовують обіцянки лікування MASH, видалення каменів чи заміни терапії з доведеними клінічними наслідками.
Ні. Це маркер суміші; лютеолін, глікозиди та інші компоненти мають різну активність і метаболізм.
Ні. 3LD6 містить кетоконазол; докінг не замінює кінетику ферменту й клінічні дані.
Ні. Перший — утворення жовчі, другий — спорожнення міхура з координацією опору виходу.
Ні. Дози стосуються конкретних екстрактів і цілей випробувань, не спільного протоколу.
Камені й хвороби жовчних шляхів потребують лікарського оцінювання; стимуляція жовчі не усуває обструкцію.