NNMT: nicotinamida, SAM y efectos tisulares — NutriFit
NNMT: metabolismo de la nicotinamida, flujo de metilos y efectos tisulares
NNMT conecta el metabolismo de nicotinamida y NAD⁺ con el consumo de SAM. Reacción, estructura, sumidero de metilos, eje hepático 1-MNA–SIRT1, tejido adiposo, estroma tumoral, piridonas y límites de la traducción clínica.
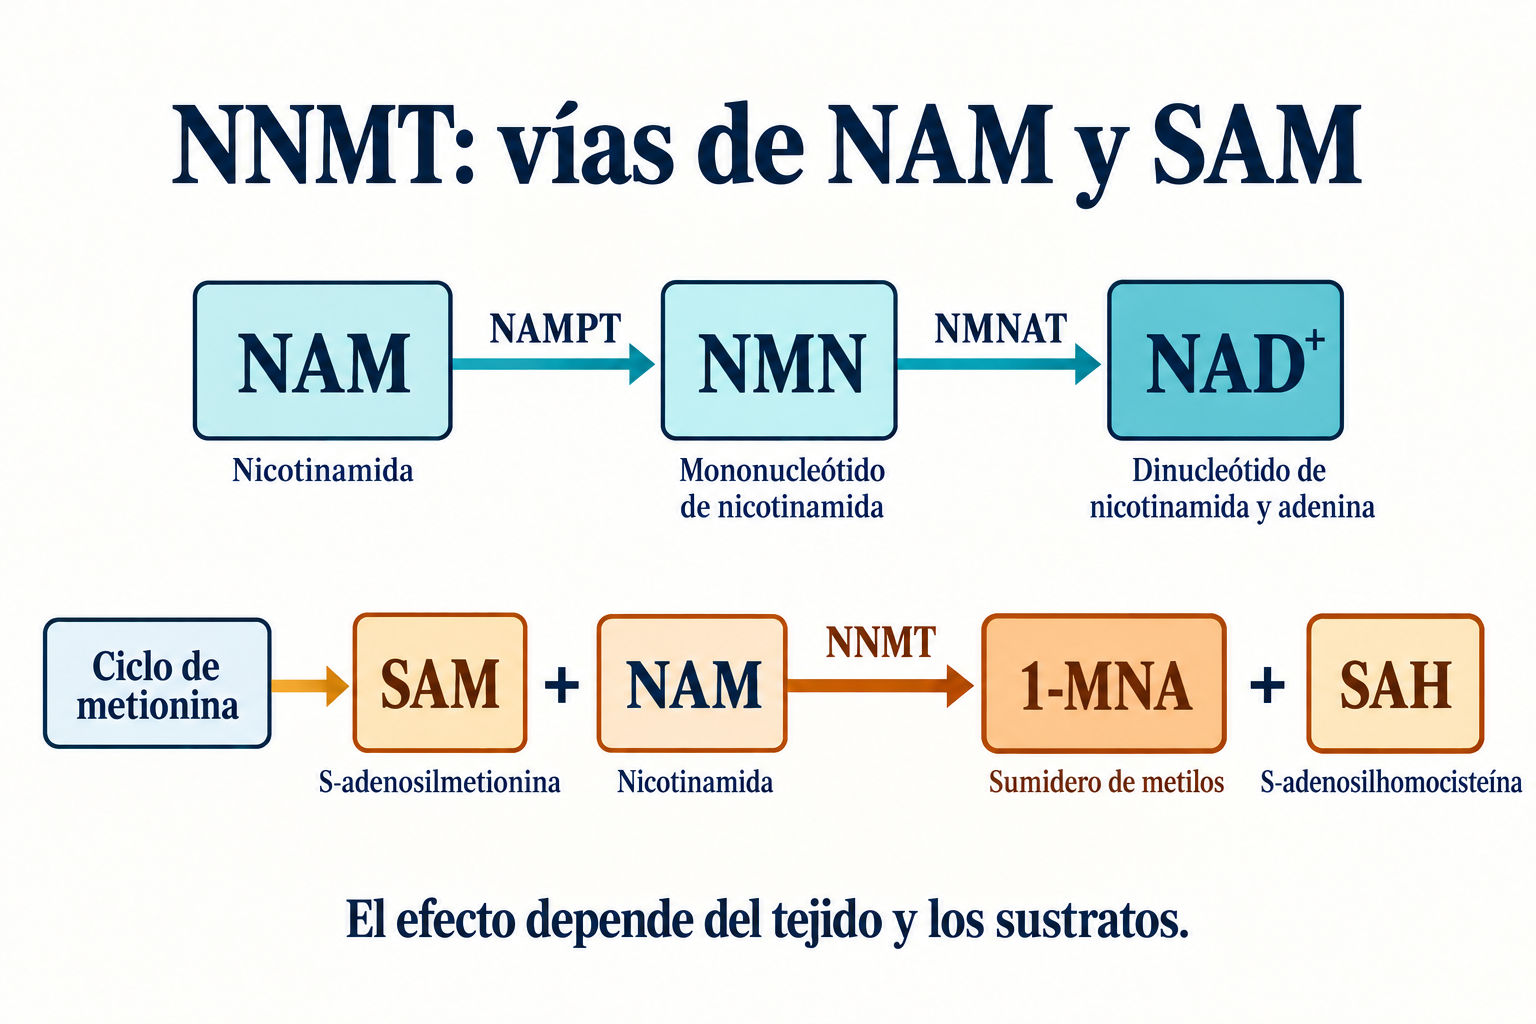
La nicotinamida N-metiltransferasa (NNMT, EC 2.1.1.1) es una enzima citosólica que transfiere un grupo metilo de la S-adenosilmetionina (SAM, también SAMe) a la nicotinamida (NAM). La reacción consume simultáneamente un precursor de NAD⁺ y un donante de metilos, y produce 1-metilnicotinamida (1-MNA) y S-adenosilhomocisteína (SAH). Así conecta el metabolismo de la vitamina B₃, el metabolismo de un carbono y procesos sensibles a la metilación. Esta conexión la convierte en una diana de investigación, pero no implica que toda actividad de la enzima sea perjudicial.
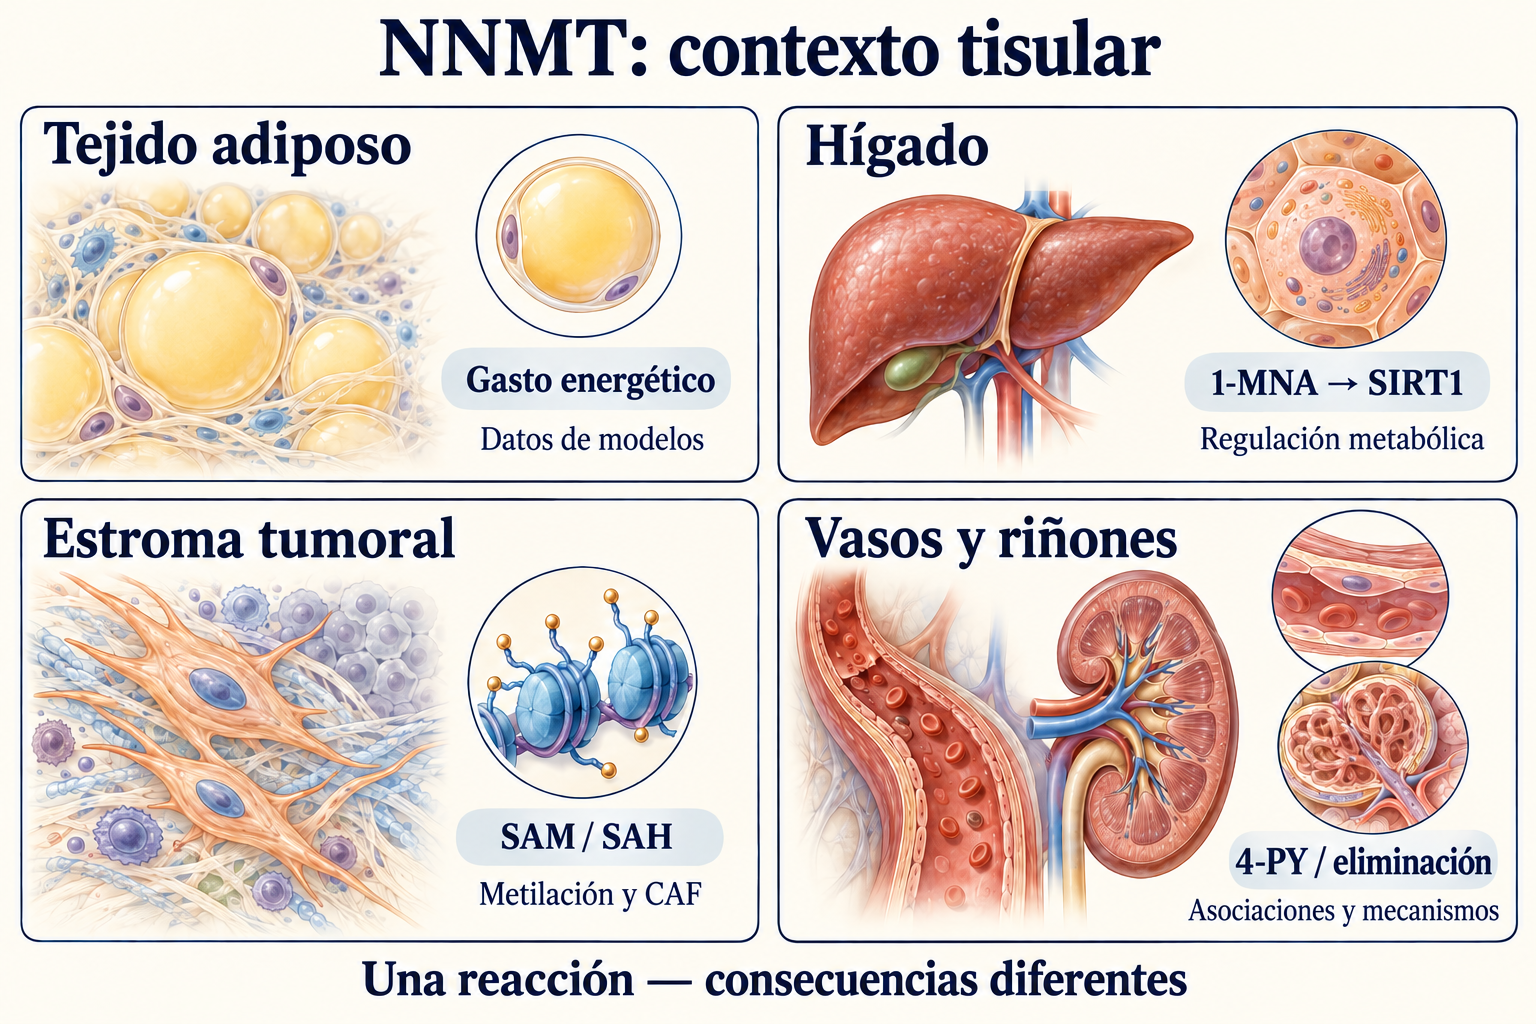
En células cancerosas y fibroblastos, NNMT puede generar un «sumidero de metilos»: los grupos pasan a un producto que no regresa directamente al ciclo de SAM. En el hígado, 1-MNA puede participar en efectos reguladores beneficiosos, mientras que la supresión de NNMT en tejido adiposo modificó el gasto energético en ratones. Los metabolitos posteriores 2-PY y 4-PY interesan por su eliminación renal y sus asociaciones con el riesgo cardiovascular. Ningún resultado establece un nivel universal de NNMT por debajo del cual deba situarse toda persona.
1. La reacción de NNMT en el metabolismo de NAD⁺
1.1. De la eliminación de una vitamina a la regulación del flujo
NNMT se consideró inicialmente una enzima del metabolismo de la nicotinamida y otros heterociclos nitrogenados. NAM procede de los alimentos y de la degradación de NAD⁺ por sirtuinas, PARP e hidrolasas de NAD, incluida CD38. A diferencia de la transferencia reversible de electrones entre NAD⁺ y NADH, estas reacciones consumen la molécula del cofactor y exigen su reposición.
La metilación desvía parte de NAM de su reciclaje directo. Sin embargo, su concentración y la velocidad de formación de 1-MNA dependen de toda la red: aporte de sustrato, cantidad de NNMT, vía de rescate, metabolismo de SAM y eliminación de productos. Una expresión elevada no equivale a un flujo elevado si faltan sustratos. El contexto del consumo del cofactor se explica en el artículo sobre agotamiento de NAD⁺, CD38 y PARP1.
1.2. Estequiometría y consumo de metilos
Cada molécula de nicotinamida metilada requiere un grupo metilo de SAM. El nombre 1-MNA designa la metilación del nitrógeno piridínico, que genera un producto con carga positiva. Aquí NMN significa mononucleótido de nicotinamida, no N-metilnicotinamida; algunas publicaciones antiguas sobre transportadores utilizaron esa abreviatura para esta última.
NAM+SAMNNMT1−MNA++SAH
No se conoce una vía ordinaria de los mamíferos que devuelva directamente el metilo de 1-MNA a SAM y convierta el producto de nuevo en NAM para el rescate de NAD⁺. Esto sustenta el concepto de sumidero. No demuestra una velocidad ilimitada, el agotamiento completo de SAM ni la imposibilidad termodinámica incondicional de cualquier transformación de la molécula.
1.3. NAMPT y NMNAT: otro destino de NAM
En el rescate, NAMPT une la nicotinamida al grupo fosforribosilo de PRPP y forma NMN. NMNAT adenila después NMN utilizando ATP. Así el fragmento piridínico vuelve a NAD⁺ en lugar de dirigirse a productos metilados de eliminación. Ambas ramas pueden funcionar simultáneamente; su contribución depende del tejido y del estado fisiológico.
NAM+PRPPNAMPTNMN+PPiNMN+ATPNMNATNAD++PPi
NAMPT puede limitar el flujo de rescate, pero comparar dos constantes de Michaelis no determina el destino de toda NAM. Se necesitan las cantidades de enzimas, la disponibilidad de PRPP y ATP, la compartimentación y mediciones del flujo. Las diferencias entre NR y NMN se desarrollan en el artículo sobre precursores de NAD⁺ y cinética del rescate.
1.4. Ciclo de la metionina y eliminación de SAH
La metionina adenosiltransferasa (MAT) sintetiza SAM a partir de metionina y ATP. Tras la transferencia del metilo, la hidrolasa de SAH (AHCY) conecta la metilación con adenosina y homocisteína. Su reacción es reversible: la hidrólisis neta requiere retirar los productos. Por ello, un aumento de producción de SAH no se traduce mecánicamente en un incremento fijo de homocisteína sanguínea.
La homocisteína se remetila mediante metionina sintasa, con folato y B₁₂, y en tejidos apropiados mediante BHMT y betaína. La transulfuración por CBS y CTH dirige azufre hacia cisteína y después glutatión. Estas ramas conectan nutrición, metilación y metabolismo redox, pero su disponibilidad tisular difiere. El papel general del donante se analiza en el artículo sobre SAM y metabolismo de un carbono.
2. Estructura, catálisis y cinética
2.1. Proteína y expresión tisular
NNMT humana es una proteína pequeña de la familia de metiltransferasas con plegamiento de unión a SAM de clase I. El hígado es un lugar importante de expresión, pero la enzima aparece también en tejido adiposo y determinadas poblaciones celulares tumorales. Su cantidad cambia con la diferenciación, las señales del microambiente y el estado metabólico.
Una muestra tisular contiene una mezcla de células. Más NNMT en una biopsia puede reflejar más fibroblastos, un cambio de los hepatocitos o expresión propia de las células malignas. El ARNm, la inmunohistoquímica, la actividad enzimática y la metabolómica responden por tanto a preguntas diferentes. No se deben trasladar resultados entre tejidos sin identificar su origen celular.
2.2. Qué muestran las estructuras PDB
La cristalografía explica la relación espacial entre los lugares de unión a NAM y al cofactor. La estructura 3ROD contiene NNMT humana con NAM y SAH; SAH es el producto desmetilado, no SAM. Peng y colaboradores combinaron estructura y mutagénesis, permitiendo valorar la función de los contactos y no solo distancias en una imagen estática. Peng et al., 2011.
Estructura
Resolución experimental
Contenido y uso apropiado
3ROD
2,72 Å
NNMT con NAM y SAH; reconocimiento del sustrato
6PVS
2,58 Å
NNMT con el inhibidor bisustrato LL320
5YJF
2,49 Å
NNMT con un análogo de nicotinamida del programa JBSNF-000088
Las resoluciones corresponden a los registros 3ROD, 6PVS y 5YJF. Un complejo estructural ayuda a diseñar moléculas, pero no establece eficacia ni seguridad humanas. Constructos, mutaciones, ligandos y condiciones de cristalización también distinguen la proteína experimental de la enzima de una célula viva.
2.3. Reconocimiento de NAM y transferencia del metilo
Tyr20 y Asp197 contribuyen a organizar el centro activo. Sus sustituciones redujeron la eficiencia catalítica; el efecto puede incluir cambios en la unión de ambos sustratos y en la conformación. La mutagénesis no demuestra que un único enlace de hidrógeno explique toda la actividad.
La transferencia se describe mediante sustitución Sₙ2: el nitrógeno piridínico de NAM ataca el metilo de SAM, y SAH constituye la parte saliente del donante. Es N-metilación, no desmetilación ni extracción de un protón del anillo aromático. La orientación importa, pero la geometría del estado de transición no es idéntica a las distancias de un complejo con producto.
2.4. Dos sustratos y orden de unión
El estudio cinético de Loring y Thompson respaldó un mecanismo Bi–Bi ordenado de equilibrio rápido: SAM se une antes que NAM y, después de la reacción, se liberan el producto metilado y SAH. Es una conclusión de un conjunto experimental concreto. Un análisis anterior con quinolina como aceptor de metilos apoyó un modelo secuencial aleatorio; importan las condiciones y el sustrato. Loring & Thompson, 2018.
Ambos modelos requieren dos sustratos. La abundancia de uno no compensa la ausencia del otro. Para los inhibidores, cambiar NAM o SAM puede modificar el efecto medido. Una IC₅₀ sin condiciones del ensayo no es una propiedad invariable de un fármaco.
2.5. Por qué el sumidero no es literalmente insaturable
Con SAM fijo y suficiente, la dependencia de velocidad respecto a NAM puede ilustrarse con una curva saturable corriente. Es una aproximación didáctica, no la ecuación completa de la reacción bisustrato en el organismo. La velocidad máxima es proporcional a la cantidad de enzima activa y la constante aparente depende de las condiciones.
La aproximación lineal solo sirve con NAM bajo. Si una concentración hipotética iguala la constante, la velocidad es la mitad de la máxima; si la quintuplica, es cinco sextos. Es un ejemplo matemático, no un intervalo fisiológico. No se puede afirmar que la concentración supera ampliamente la constante y extrapolar indefinidamente la linealidad de concentraciones bajas.
3. Sumidero de metilos y epigenética
3.1. Balance de SAM: el flujo importa además de la concentración
SAM es necesario para numerosas metiltransferasas. DNMT1 mantiene la metilación del ADN, DNMT3A/B participan en establecerla, y PRC2, SUV39 y COMPASS modifican distintas lisinas de histonas. Fuera del núcleo se consume en síntesis de creatina por GAMT, fosfatidilcolina por PEMT y reacciones de COMT, PNMT y HNMT.
Estos procesos no deben sumarse en porcentajes universales de un «pool celular total»: sus aportes cambian entre tejidos y dependen del intercambio y los compartimentos. Más consumo por NNMT puede compensarse con síntesis o limitar otras reacciones. La cuestión central es el balance entre producción y consumo, no la mera existencia de otra metiltransferasa.
dtd[SAM]=JMAT−JNNMT−∑Jothermethylation
Es un balance conceptual de un pool seleccionado; deben añadirse transporte y otras vías cuando corresponda. La concentración estacionaria puede conservarse aunque aumente mucho el recambio. El trazado isotópico complementa la medición de abundancia del metabolito y no la duplica.
3.2. Relación SAM/SAH y sus límites
SAH es producto de la metilación dependiente de SAM y puede inhibir muchas metiltransferasas. La relación SAM/SAH indica características del medio en que ocurren las reacciones. No mide de manera absoluta la metilación de todos los loci del ADN ni tiene un umbral clínico único de NNMT válido para cualquier tejido.
RSAM/SAH=[SAH][SAM]
Una misma relación puede aparecer con concentraciones absolutas y flujos diferentes. Importan la sensibilidad de cada enzima a SAH, la disponibilidad local de SAM, el tiempo y la composición celular. La relación plasmática no equivale a la del núcleo de un fibroblasto tumoral o un hepatocito. La interpretación causal exige mediciones independientes de cromatina y expresión génica.
3.3. Las marcas de histonas tienen significados distintos
H3K27me3 se relaciona con represión mediada por Polycomb; H3K9me3, con heterocromatina y silenciamiento de secuencias repetidas. H3K4me3, en cambio, caracteriza numerosos promotores activos. Perder estas marcas no produce un único resultado transcripcional: reducir una marca activadora no equivale automáticamente a activar oncogenes.
La respuesta depende del locus, las enzimas que escriben y borran marcas, los metabolitos y los factores de transcripción. Metilación del ADN y de histonas tampoco son intercambiables. Medir la suma de péptidos metilados aporta información diferente de cartografiar una marca concreta en un promotor. Estos análisis no justifican afirmar que NNMT apaga completamente todas las metiltransferasas.
3.4. Qué estableció el estudio del methylation sink
Ulanovskaya, Zuhl y Cravatt relacionaron la actividad de NNMT en las células cancerosas estudiadas con consumo de unidades metilo, producción de 1-MNA estable y cambios de metilación y expresión. La combinación de metabolómica y manipulación de la expresión enzimática respaldó un mecanismo más allá de la correlación. Ulanovskaya et al., 2013.
«Sumidero» describe aquí una dirección de flujo y una influencia sobre la metilación dependiente de las condiciones. No demuestra carcinogénesis inevitable por nicotinamida, una caída universal de SAM ni comportamiento idéntico de todas las células normales. La disponibilidad de metionina y la capacidad de reponer SAM pueden modificar el mecanismo.
Figura 1. NNMT conecta el consumo de NAM y SAM. El rescate de NAM a NAD⁺ y la reposición de SAM forman ramas paralelas; el sumidero tiene un contexto tisular y de sustratos.
4. 1-MNA, piridonas y eliminación renal
4.1. 1-MNA no siempre es biológicamente inerte
No devolver directamente el metilo a SAM no implica ausencia de señales biológicas. En modelos experimentales de trombosis, Chlopicki y colaboradores observaron actividad antitrombótica vinculada a COX-2/prostaciclina. La manipulación farmacológica de esa vía ayudó a establecer el mecanismo del efecto. Chlopicki et al., 2007.
Esto no convierte 1-MNA en tratamiento estándar para prevenir trombosis. Administración exógena en un modelo, concentración endógena y desenlaces humanos son niveles diferentes de evidencia. Tampoco puede trasladarse el efecto a 2-PY o 4-PY por compartir origen en vitamina B₃.
4.2. Eje hepático 1-MNA–SIRT1
Hong y colaboradores mostraron que los efectos hepáticos de NNMT pueden estar mediados por 1-MNA y estabilización de la proteína SIRT1. En los modelos murinos estudiados, 1-MNA mejoró determinadas medidas del metabolismo lipídico. Es un contraejemplo importante a la idea de que más NNMT siempre significa el mismo estado desfavorable. Hong et al., 2015.
Estabilizar una proteína, activar directamente su catálisis y aumentar NAD⁺ son mecanismos distintos. Una mayor persistencia de SIRT1 no establece por sí sola unión de 1-MNA a un dominio alostérico concreto. Al hablar de PGC-1α, FOXO1, gluconeogénesis y lípidos deben considerarse el estado nutricional y el desenlace funcional medido.
4.3. AOX1 y formación de 2-PY/4-PY
1-MNA experimenta oxidación posterior asociada a aldehído oxidasa y forma metabolitos piridónicos. Aquí 2-PY significa N¹-metil-2-piridona-5-carboxamida y 4-PY, N¹-metil-4-piridona-3-carboxamida. Los nombres señalan posiciones diferentes de oxidación del anillo; no son productos intercambiables.
La oxidación y excreción completan parte del metabolismo de nicotinamida. La proporción depende de especie, tejido, actividad enzimática y función renal; un reparto fijo del 80/20 no es una constante fisiológica universal. La capacidad enzimática de generar especies reactivas de oxígeno tampoco demuestra daño oxidativo clínico cada vez que funciona esta rama.
4.4. Interpretar 4-PY y riesgo vascular
Ferrell y colaboradores asociaron concentraciones altas de metabolitos terminales de niacina con futuros eventos cardiovasculares adversos en cohortes observacionales. Experimentos separados respaldaron efectos inflamatorios vasculares de 4-PY, incluida expresión de VCAM-1 y adhesión leucocitaria. Esta combinación de asociación humana y mecanismo no equivale a una prueba aleatorizada de causalidad del infarto humano. Ferrell et al., 2024.
El estudio no establece que toda exposición a NR/NMN genere una concentración peligrosa de 4-PY ni un umbral validado para decidir tratamiento. La función renal, la alimentación y las enfermedades de base influyen en el valor medido. Tanto 2-PY como 4-PY son moléculas pequeñas; clasificarlas como «moléculas medianas» urémicas es incorrecto.
4.5. Transporte de 1-MNA: formar no equivale a acumular
La eliminación renal de 1-MNA incluye transportadores de cationes orgánicos: OCT2 participa en la captación basolateral y MATE1/MATE2-K en la salida apical. Ito y colaboradores lo estudiaron como sonda endógena de interacciones farmacológicas de transporte. Allí N-metilnicotinamida se abrevia NMN; no es mononucleótido de nicotinamida precursor de NAD. Ito et al., 2012.
La concentración plasmática depende de producción, distribución y eliminación. Menos aclaramiento puede elevar 1-MNA sin aumentar NNMT. No debe asignarse automáticamente el mismo transporte a todas las piridonas ni considerar una medición aislada de 1-MNA patrón diagnóstico universal de la enzima.
5. Tejido adiposo, gasto energético e hígado
5.1. Supresión de NNMT en modelos de obesidad
Kraus y colaboradores encontraron que reducir Nnmt con oligonucleótidos antisentido protegía a ratones frente a obesidad por dieta rica en grasa y modificaba el metabolismo adiposo. El resultado respalda un papel en el balance energético más allá de producir un metabolito excretado. Kraus et al., 2014.
Un efecto en un modelo murino concreto no establece un tratamiento humano. Importan el lugar de supresión, la dieta, el sexo, la duración y la compensación. Ausencia genética, silenciamiento temporal e inhibición por una molécula pequeña pueden producir resultados diferentes.
5.2. Poliaminas y consumo de energía
El mecanismo propuesto vinculó la disponibilidad de SAM y NAD con expresión de enzimas del metabolismo de poliaminas. La metilación de H3K4 participaba en la regulación de esos genes. Síntesis y catabolismo pueden formar un ciclo que consume recursos aunque el pool total de poliaminas apenas cambie.
Para sintetizar espermina y espermidina se usan grupos aminopropilo de SAM descarboxilado, una transformación distinta de la transferencia ordinaria de metilos. La acetilación por SAT1 consume acetil-CoA. El coste energético incluye regeneración de sustratos y metabolismo acoplado; afirmar que cada reacción de ODC hidroliza ATP directamente es incorrecto. Un ciclo fútil describe recambio metabólico, no necesariamente una función fisiológica inútil.
5.3. Gasto energético no equivale a UCP1
Más consumo de oxígeno puede reflejar síntesis y degradación de metabolitos, bombeo iónico, acoplamiento mitocondrial alterado o comportamiento animal. No establece un pardeamiento adiposo obligatorio ni una cadena completa AMPK–PGC-1α–UCP1. Cada elemento exige comprobación en el modelo correspondiente.
UCP1 desacopla de manera especializada respiración y síntesis de ATP, como explica el artículo sobre UCP1 y termogénesis. El recambio de poliaminas y el desacoplamiento por UCP1 pueden afectar el balance mediante vías diferentes. Distinguirlos evita convertir NNMT en un «interruptor universal para quemar grasa».
5.4. Resistencia a insulina y MASH: límites de una vía única
Brachs y colaboradores encontraron que la deficiencia genética de Nnmt en ratones machos mejoraba la sensibilidad a insulina en obesidad dietética, pero no la tolerancia a glucosa. Incluso desenlaces metabólicos relacionados pueden divergir. Brachs et al., 2019.
La metilación hepática participa en fosfatidilcolina, metabolismo de metionina y protección frente al estrés, por lo que NNMT resulta pertinente para investigar esteatosis y fibrosis. Pero no está probada una cadena universal «NNMT → déficit de PEMT → 4-PY → MASH». Exportación lipídica, glutatión, tipos celulares e inflamación requieren mediciones propias; el eje beneficioso 1-MNA–SIRT1 impide una interpretación única de todos los estados hepáticos.
6. Células malignas y estroma
6.1. Expresión, pronóstico y origen celular
Se ha encontrado NNMT elevada en distintos cánceres, a veces junto a migración, resistencia al estrés o mal pronóstico. La asociación con supervivencia depende de tumor, estadio, ensayo y células que contienen la proteína. La expresión «marcador panoncogénico» oculta esa heterogeneidad.
Distinguir células malignas, fibroblastos e inmunitarias es esencial. La expresión global puede aumentar por la composición del estroma. Un biomarcador requiere método reproducible, validación independiente y prueba de que mejora decisiones respecto a factores ya establecidos.
6.2. EMT e invasión
La disponibilidad de metilos puede afectar genes de adhesión y plasticidad. La transición epitelio-mesénquima implica remodelación epitelial, factores SNAIL/ZEB y programas mesenquimales, frecuentemente mediante estados intermedios. E-cadherina pertenece a uniones adherentes, no es la principal proteína de uniones estrechas.
Un efecto de NNMT sobre migración en una línea celular no establece la misma secuencia H3K27me3–SNAIL–E-cadherina en todos los tumores. Deben estudiarse marcas por locus, expresión, comportamiento y rescates experimentales. Invasión, entrada vascular y crecimiento metastásico posterior son etapas distintas.
6.3. Fibroblastos asociados al cáncer
Eckert y colaboradores compararon compartimentos tumoral y estromal del cáncer seroso de ovario. NNMT estromal se vinculó al programa de fibroblastos asociados al cáncer (CAF), y las intervenciones apoyaron su papel funcional. Cambios de SAM, metilación de histonas, expresión y matriz extracelular conectaron el metabolismo estromal con apoyo al crecimiento tumoral. Eckert et al., 2019.
Es una base sólida para estudiar una diana estromal. No implica irreversibilidad de todos los CAF ni eliminación completa de cáncer humano al inhibir NNMT. El estroma es heterogéneo y la intervención puede afectar funciones normales. Selección de diana, duración y combinaciones terapéuticas siguen siendo preguntas traslacionales.
6.4. Resistencia farmacológica y contexto inmunitario
El metabolismo puede modificar sensibilidad a fármacos; el estroma, acceso, inflamación y composición inmunitaria. Para NNMT estas relaciones deben evaluarse por fármaco y modelo. Una observación no demuestra activación universal de ABCB1 ni resistencia idéntica a cisplatino, taxanos y temozolomida.
También debe interpretarse con cautela el escape inmunitario: cambiar un metabolito, el número de células CD8⁺ o la citotoxicidad funcional no es equivalente. El efecto directo de 1-MNA sobre linfocitos y el indirecto de CAF sobre microambiente son hipótesis distintas. El beneficio clínico de combinar un inhibidor con inmunoterapia requiere ensayos específicos.
Figura 2. La misma reacción puede tener consecuencias diferentes en tejido adiposo, hígado, CAF y contextos vascular y renal. El nombre de la enzima no determina la dirección del efecto.
7. Precursores de NAD⁺ y demanda de metilos
7.1. Vías competidoras sin desvío inevitable
NAM es sustrato tanto del rescate como de NNMT. NR puede convertirse primero en NMN por NR-cinasas; NMN entra en reacciones posteriores tras procesamiento y transporte dependientes del tejido. Absorción, conversión intestinal, hígado y microbiota modifican el destino del compuesto administrado.
Los estudios isotópicos de Liu cuantificaron síntesis y degradación de NAD en modelos; Trammell mostró cambios del metaboloma con NR. No establecen que un 80–90 % fijo de cualquier dosis de NR/NMN se transforme en NAM en toda situación ni que una dosis mínima sature necesariamente NAMPT. Liu et al., 2018, Trammell et al., 2016.
7.2. Mediciones en humanos
En el ensayo de Conze con 140 adultos con sobrepeso, en general sanos, los grupos estudiados hasta 1000 mg/día de NR durante ocho semanas no mostraron aumento de homocisteína plasmática frente al inicio o placebo. Es un resultado experimental, no una dosis recomendada. Contradice una hiperhomocisteinemia obligatoria causada por NR. Conze et al., 2019.
NR-SAFE estudió 20 personas con enfermedad de Parkinson durante cuatro semanas. Con 3000 mg/día apareció un pequeño aumento de homocisteína sérica, pero sangre total no mostró agotamiento de SAM ni cambios de SAH o relación SAM/SAH. Tamaño, duración y matriz limitan la extrapolación a uso prolongado y otros tejidos. Berven et al., 2023.
7.3. Homocisteína y «apoyo de metilos»
La homocisteína depende de función renal, vitaminas, metabolismo de metionina, genética y algunos medicamentos. No es específica de NNMT. Aunque un precursor aumente demanda de metilos, la compensación del ciclo de metionina puede mantener SAM. La hipótesis requiere mediciones, no asumir déficit inevitable.
Betaína, folato, B₁₂ y colina participan en vías relacionadas. Esto no establece TMG obligatoria en relación 1:1 o 2:1 con NR/NMN, suplementación con SAM ni un cóctel vitamínico fijo. Los ensayos citados no validaron tales regímenes universales. Corregir una carencia concreta y acompañar experimentalmente un precursor son tareas clínicas distintas.
7.4. Niacina, lípidos y causalidad de 4-PY
AIM-HIGH y HPS2-THRIVE no hallaron la reducción vascular adicional esperada con sus regímenes de niacina junto al tratamiento contemporáneo; HPS2-THRIVE incluyó laropiprant. Corresponden a ácido nicotínico y circunstancias clínicas concretas, no a NR, NMN o inhibición de NNMT. AIM-HIGH, 2011, HPS2-THRIVE, 2014.
4-PY aporta una hipótesis para investigar parte del riesgo, pero no prueba que explique completamente esos resultados. Se requieren datos directos de intervención, exposición y desenlaces. Suficiencia dietética de B₃, niacina farmacológica y aumento experimental de NAD son contextos distintos.
8. Inhibidores de NNMT: herramientas y traslación
8.1. Estrategias químicas
Los inhibidores utilizan el bolsillo de nicotinamida, el sitio de SAM o ambos. Los análogos bisustrato pueden ser muy potentes con enzima purificada, pero polaridad y tamaño limitan a veces la entrada celular. Importan exposición tisular libre e inhibición real de la diana, además de IC₅₀ bioquímica.
Estrategia
Ejemplo confirmado
Qué muestra el experimento
Preguntas abiertas
Análogo bisustrato
LL320
Unión a ambos bolsillos; estructura y ensayos enzimáticos
Entrega, exposición celular, seguridad
Inhibidor pequeño cargado
5-amino-1MQ
Efectos metabólicos y regenerativos en ratones
Eficacia y régimen humanos
Análogo de nicotinamida
JBSNF-000088
Inhibición y cambios metabólicos en animales
Tolerabilidad y desenlaces clínicos
Supresión de expresión
ASO/modelos genéticos
Contribución de NNMT en tejido o modelo definido
Selectividad tisular y compensación
8.2. LL320 e información estructural
Chen y colaboradores diseñaron LL320 con un enlace propargilo entre dos fragmentos. La constante de inhibición medida fue 1,6 ± 0,3 nM en el ensayo; 6PVS mostró contacto con los sitios de sustrato y cofactor. Es un ejemplo de diseño racional de un potente inhibidor experimental. Chen et al., 2019.
Constante de inhibición e IC₅₀ no son idénticas. Con unión estrecha, la concentración de enzima influye en el ensayo; en células se añaden transporte, proteínas y competencia metabólica. Ordenar moléculas por una sola cifra sin condiciones dice poco sobre elegir un medicamento futuro.
8.3. 5-amino-1MQ y regeneración muscular
Neelakantan y colaboradores investigaron pequeños inhibidores en obesidad dietética. Los resultados respaldan viabilidad farmacológica en animales, pero no ausencia de cualquier efecto adverso durante uso prolongado. Neelakantan et al., 2018.
El estudio de 2019 encontró mejor regeneración y función contráctil tras daño muscular experimental en ratones viejos. Lesión aguda y respuesta de células satélite no equivalen a tratamiento de sarcopenia humana ni rejuvenecimiento sistémico. Dosis y vías animales no constituyen un protocolo clínico. Neelakantan et al., 2019.
8.4. JBSNF-000088 y supresión de expresión
El estudio primario de Kannt describe JBSNF-000088 como un pequeño análogo de nicotinamida que modifica medidas metabólicas animales. 5YJF ayuda a explicar la interacción con NNMT, pero no convierte el compuesto en tratamiento clínicamente validado. Kannt et al., 2018.
ASO y modelos genéticos separan efectos enzimáticos de propiedades de la molécula. La ausencia completa puede generar compensación y la supresión hepática o adiposa diferir en consecuencias. Se excluye una eficacia prolongada demostrada de GalNAc-ASO en primates porque los estudios primarios utilizados no aportan respaldo.
9. Evaluar biomarcadores e hipótesis clínicas
9.1. Mediciones y límites
Investigar NNMT exige coordinar origen celular, expresión, actividad, metabolitos y función tisular. LC–MS mide SAM, SAH, 1-MNA y piridonas, pero preparación, método y aclaramiento renal afectan resultados. Un análisis correcto no se convierte automáticamente en indicación clínica para intervenir.
Medición
Pregunta útil
Limitación importante
ARNm/proteína NNMT
¿Dónde se expresa la enzima?
Composición celular y actividad pueden diferir
SAM, SAH y relación
¿Cambió el medio de metilación del pool elegido?
La sangre no representa todos los compartimentos
1-MNA
¿Cambió formación o eliminación?
Transporte renal y dieta afectan su nivel
2-PY/4-PY
¿Cambió el metabolismo terminal de nicotinamida?
Sin umbral terapéutico universal de NNMT
Homocisteína
¿Cuál es el estado integrado de vías relacionadas?
No es específica de NNMT
Cromatina y función
¿Tiene consecuencias el cambio de flujo?
Requiere mediciones funcionales y por locus
9.2. Biología circadiana sin hora universal
Ramsey y colaboradores conectaron relojes moleculares, NAMPT y oscilaciones de NAD en ratones. Esto respalda la interacción metabólica y circadiana. No establece un pico matutino humano único en todos los tejidos ni que tomar un precursor en la primera hora al despertar evite consumo de metilos. Ramsey et al., 2009.
La fase depende de especie, actividad, comidas y tejido. Elegir un horario clínico exige estudios comparativos de administración con desenlaces apropiados. La vía mecanística permite formular una hipótesis, pero no sustituye esos ensayos.
9.3. Requisitos para aplicación clínica
Un inhibidor necesita evidencia de selectividad, distribución tisular, interacción con la diana, seguridad prolongada y beneficio en una enfermedad elegida. Un biomarcador necesita validación independiente y mejores decisiones. El apoyo de metilos requiere probar el régimen, no solo conocer la bioquímica de betaína o folato.
Un experimento informativo distingue cantidad y velocidad de formación del metabolito, efectos hepáticos y estromales, inhibición bioquímica y beneficio clínico. Así se conserva el potencial de NNMT sin convertirla en causa universal de obesidad, fibrosis, cáncer y efectos adversos de cualquier exposición a B₃.
10. Modelo científico resultante
NNMT consume NAM y SAM, produce SAH y 1-MNA y puede modificar la disponibilidad relativa para sintetizar NAD⁺ y metilar. En determinados modelos tumorales y estromales el flujo se vincula a reprogramación epigenética; en tejido adiposo, a gasto energético; y en hígado, también a regulación por 1-MNA. Metabolismo de piridonas y eliminación renal añaden un nivel sistémico.
Un modelo sólido debe explicar estas diferencias. El sumidero es útil como mecanismo, pero insuficiente como diagnóstico o instrucción universal para inhibir la enzima. La traslación depende de dónde, cuándo y cuánto cambia el flujo, qué metabolito actúa y qué desenlace clínico se mide.
Método y límites de la revisión
Esta revisión científica narrativa se preparó a partir del material original completo, con comprobación selectiva de fuentes primarias necesarias y conflictos bibliográficos concretos el 8 de octubre de 2026. Se comprobaron registros estructurales de NNMT, estudios del sumidero y CAF, eje hepático 1-MNA–SIRT1, inhibidores, 4-PY y mediciones humanas de metilación durante exposición a NR. No se consideraron leídos textos completos inaccesibles; las afirmaciones que exigían detalles sin confirmar se limitaron o eliminaron.
No es búsqueda sistemática de toda la literatura, metaanálisis, evaluación GRADE ni recomendación clínica. Evidencia de enzima purificada, células, animales, cohortes y ensayos aleatorizados tiene fuerza y aplicabilidad distintas. La ausencia de un régimen universal no niega el mecanismo, sino que delimita lo establecido.
Preguntas frecuentes
¿Todo el mundo debería reducir NNMT?
No existe un objetivo universal ni un régimen clínico establecido. La actividad importa según el tejido, los sustratos, la eliminación de productos y la enfermedad; los modelos celulares y murinos no sustituyen los ensayos humanos.
¿1-MNA es siempre un residuo perjudicial?
No devuelve directamente su grupo metilo a SAM, pero posee efectos biológicos propios. La regulación hepática mediante SIRT1 y los efectos antitrombóticos experimentales muestran por qué la palabra residuo resulta demasiado limitada.
¿NR y NMN requieren suplementos de TMG?
La estequiometría de NNMT no establece una dosis de betaína ni una proporción obligatoria de suplementos. Los ensayos humanos de NR no respaldan un agotamiento universal de SAM; cada combinación necesita una evaluación propia de eficacia.
¿Un resultado de 1-MNA o 4-PY justifica un inhibidor de NNMT?
Una concentración aislada no identifica el origen, el flujo ni la causalidad. La dieta, la función renal y el transporte influyen en ella; el tratamiento requiere una medida clínica validada y pruebas de seguridad y beneficio de la intervención.