NNMT: обмін нікотинаміду, потік метильних груп і тканинні ефекти
NNMT поєднує обмін нікотинаміду й NAD⁺ з витрачанням SAM. Реакція, структура, метильний стік, печінкова вісь 1-MNA–SIRT1, жирова тканина, пухлинна строма, піридони та межі клінічного перенесення.
Нікотинамід-N-метилтрансфераза (NNMT, EC 2.1.1.1) — цитозольний фермент, який переносить метильну групу із S-аденозилметіоніну (SAM, також SAMe) на нікотинамід (NAM). Реакція одночасно витрачає попередник NAD⁺ і донор метилу, утворюючи 1-метилнікотинамід (1-MNA) та S-аденозилгомоцистеїн (SAH). Тому NNMT поєднує обмін вітаміну B₃, одновуглецевий метаболізм і процеси, чутливі до метилювання. Цей зв’язок робить фермент дослідницькою мішенню, але не означає, що будь-яка його активність шкідлива.
У ракових клітинах і фібробластах NNMT може створювати «метильний стік»: метильні групи переходять у продукт, який безпосередньо не повертається до циклу SAM. У печінці 1-MNA здатний брати участь у корисних регуляторних ефектах, а пригнічення NNMT у жировій тканині змінювало енерговитрати мишей. Наступні метаболіти 2-PY і 4-PY привертають увагу через ниркове виведення та зв’язок із серцево-судинним ризиком. Жоден із результатів не встановлює універсального рівня NNMT, нижче якого має перебувати кожна людина.
1. Реакція NNMT у мережі обміну NAD⁺
1.1. Від виведення вітаміну до регуляції потоку
Спочатку NNMT розглядали переважно як фермент метаболізму нікотинаміду та деяких інших азотовмісних гетероциклів. NAM надходить із їжею та утворюється під час розщеплення NAD⁺ сиртуїнами, PARP і NAD-гідролазами, зокрема CD38. На відміну від оборотного перенесення електронів між NAD⁺ і NADH, ці реакції справді витрачають молекулу коферменту та потребують її відновлення.
Метилювання відводить частину NAM від безпосередньої реутилізації. Однак його концентрація та швидкість утворення 1-MNA залежать від усієї мережі: надходження субстрату, кількості NNMT, шляху порятунку, обміну SAM і видалення продуктів. Висока експресія не дорівнює високому потоку за нестачі субстратів. Ширший контекст витрат коферменту розглянуто в статті про виснаження NAD⁺, CD38 і PARP1.
1.2. Стехіометрія та сенс витрат метилу
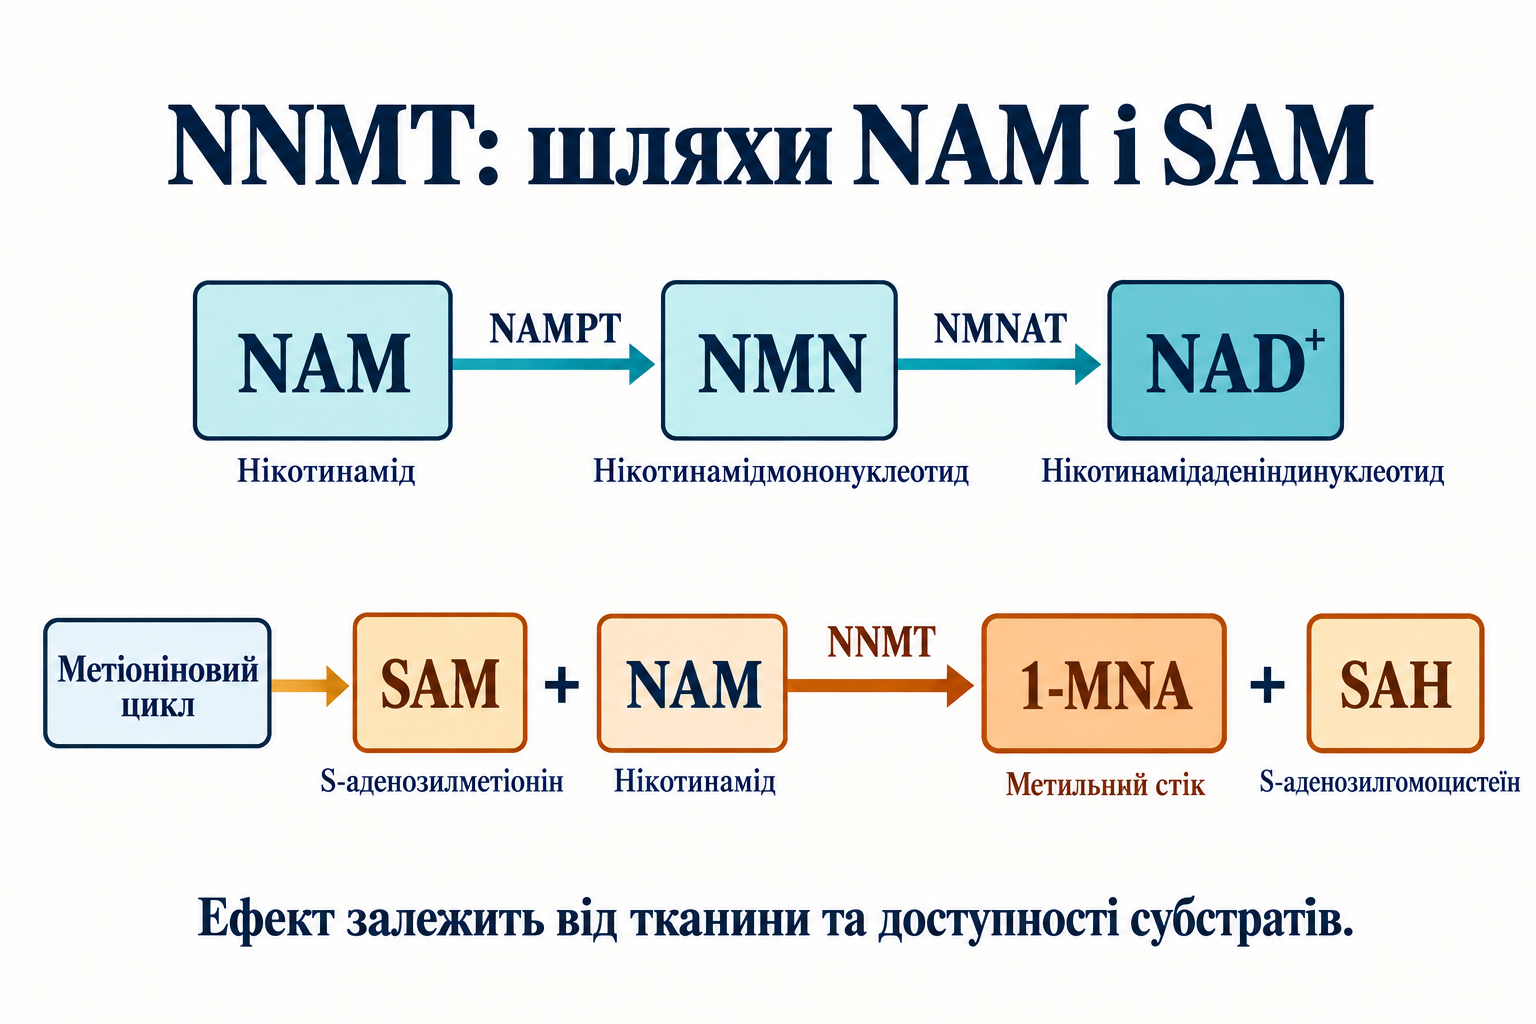
На кожну молекулу метильованого нікотинаміду припадає одна метильна група SAM. Назва 1-MNA означає метилювання піридинового азоту; продукт має позитивний заряд. У цьому тексті NMN — нікотинамідмононуклеотид, а не N-метилнікотинамід: таке неоднозначне скорочення трапляється в давніших транспортних роботах.
NAM+SAMNNMT1−MNA++SAH
У ссавців немає встановленого звичайного шляху, що безпосередньо повертав би метильну групу 1-MNA до SAM і перетворював продукт назад на NAM для синтезу NAD⁺. Це підтримує поняття стоку. Воно не доводить необмеженої швидкості реакції, повного виснаження SAM чи безумовної термодинамічної неможливості будь-яких перетворень молекули.
1.3. NAMPT і NMNAT: альтернативна доля NAM
У шляху порятунку NAMPT поєднує нікотинамід із фосфорибозильною групою PRPP, утворюючи NMN. Далі NMNAT аденілює NMN із використанням ATP. Піридиновий фрагмент повертається до NAD⁺ замість переходу в метильовані продукти виведення. Обидві гілки можуть працювати одночасно; їхній внесок залежить від тканини та фізіологічного стану.
NAM+PRPPNAMPTNMN+PPiNMN+ATPNMNATNAD++PPi
NAMPT може обмежувати потік реутилізації, але порівняння двох констант Міхаеліса не визначає долю всього NAM. Потрібні дані про кількість ферментів, PRPP і ATP, компартменталізацію та вимірювання потоку. Відмінності NR і NMN обговорюються в матеріалі про попередники NAD⁺ і кінетику реутилізації.
1.4. Метіоніновий цикл і видалення SAH
Метіонінаденозилтрансфераза (MAT) синтезує SAM із метіоніну та ATP. Після перенесення метилу SAH-гідролаза (AHCY) пов’язує метилювання з аденозином і гомоцистеїном. Її реакція оборотна: для гідролізу необхідне видалення продуктів. Тому збільшення утворення SAH не можна механічно переводити у фіксоване підвищення гомоцистеїну крові.
Гомоцистеїн реметилюється через метіонінсинтазу за участю фолату й B₁₂, а у відповідних тканинах — через BHMT із бетаїном. Транссульфурація через CBS і CTH спрямовує сірку до цистеїну, а далі до глутатіону. Ці гілки поєднують харчування, метилювання і редокс-обмін, але мають різну тканинну доступність. Загальну роль донора розглядає стаття про SAM та одновуглецевий обмін.
2. Структура, каталіз і кінетика
2.1. Білок і тканинна експресія
Людська NNMT — невеликий білок родини метилтрансфераз із SAM-зв’язувальною укладкою класу I. Печінка є важливим місцем експресії, однак фермент трапляється також у жировій тканині та окремих популяціях пухлинних клітин. Його кількість змінюється залежно від диференціювання, сигналів мікрооточення й метаболічного стану.
Тканинний зразок містить суміш клітин. Підвищення NNMT у біопсії може відображати збільшення кількості фібробластів, зміну гепатоцитів або власну експресію злоякісних клітин. Тому мРНК, імуногістохімія, ферментативна активність і метаболоміка відповідають на різні запитання. Перенесення результату між тканинами потребує встановлення клітинного джерела.
2.2. Що показують структури PDB
Кристалографія пояснює просторовий зв’язок ділянок зв’язування NAM і кофактора. Структура 3ROD містить людську NNMT із NAM та SAH; SAH є деметильованим продуктом, а не SAM. Peng і співавтори поєднали структурну роботу з мутагенезом, що дозволяє оцінювати функцію контактів, а не лише відстані у статичному знімку. Peng et al., 2011.
Структура
Експериментальна роздільна здатність
Вміст і коректне призначення
3ROD
2,72 Å
NNMT із NAM і SAH; розпізнавання субстрату
6PVS
2,58 Å
NNMT із бісубстратним інгібітором LL320
5YJF
2,49 Å
NNMT з аналогом нікотинаміду програми JBSNF-000088
Значення наведено за записами 3ROD, 6PVS і 5YJF. Комплекс допомагає проєктувати молекули, але не встановлює їхньої ефективності чи безпеки для людини. Конструкти, мутації, ліганди й умови кристалізації також відрізняють дослідний білок від ферменту живої клітини.
2.3. Розпізнавання NAM і перенесення метилу
Tyr20 і Asp197 важливі для організації активного центру. Їхні заміни знижували каталітичну ефективність; ефект може охоплювати зв’язування обох субстратів і конформацію білка. Тому мутагенез не доводить, що один водневий зв’язок пояснює всю активність.
Перенесення метилу описують механізмом заміщення Sₙ2: піридиновий азот NAM атакує метильну групу SAM, а SAH стає частиною донора, що відходить. Це N-метилювання, а не деметилювання чи видалення протона з ароматичного кільця. Правильна орієнтація важлива, але геометрія перехідного стану не тотожна відстаням у комплексі з продуктом.
2.4. Два субстрати й порядок зв’язування
Кінетична робота Loring і Thompson підтримала швидкорівноважний упорядкований Bi–Bi-механізм: SAM зв’язується раніше за NAM, а після реакції вивільняються метильований продукт і SAH. Це висновок конкретного набору дослідів. Раніший аналіз з іншим акцептором, хіноліном, підтримував випадкову послідовну модель; умови й субстрат мають значення. Loring & Thompson, 2018.
Спільна необхідна риса — участь двох субстратів. Надлишок одного не компенсує відсутності іншого. Для інгібіторів це означає, що зміна NAM або SAM у тесті може змінити виміряний ефект. IC₅₀ без умов аналізу не є незмінною властивістю препарату.
2.5. Чому стік не є буквально ненасичуваним
За фіксованої достатньої кількості SAM залежність швидкості від NAM можна ілюструвати звичайною кривою насичення. Це навчальне наближення, а не повне рівняння двосубстратної реакції в організмі. Максимальна швидкість пропорційна кількості активного ферменту, а уявна константа залежить від умов.
Лінійне наближення працює лише за низького NAM. Коли умовна концентрація дорівнює константі, швидкість становить половину максимальної; за п’ятикратного перевищення — п’ять шостих. Це математичний приклад, а не фізіологічний референс. Не можна одночасно стверджувати значне перевищення константи й нескінченно екстраполювати низькоконцентраційну лінійність.
3. Метильний стік та епігенетика
3.1. Баланс SAM: потік важливий поряд із концентрацією
SAM потрібний багатьом метилтрансферазам. DNMT1 підтримує метилювання ДНК, DNMT3A/B беруть участь у його встановленні, а PRC2, SUV39 і COMPASS модифікують різні лізини гістонів. Поза ядром SAM витрачається, наприклад, у синтезі креатину через GAMT, фосфатидилхоліну через PEMT і реакціях COMT, PNMT та HNMT.
Ці процеси не слід складати в універсальні відсотки «загального клітинного пулу»: їхній внесок різний у тканинах, а обмін і компартменти мають значення. Зростання витрат через NNMT може компенсуватися синтезом або обмежувати інші реакції. Ключове питання — баланс швидкостей виробництва й споживання, а не сама наявність ще однієї метилтрансферази.
dtd[SAM]=JMAT−JNNMT−∑Jothermethylation
Це концептуальний баланс обраного пулу; за потреби додають транспорт та інші шляхи. Стаціонарна концентрація може зберігатися при значно швидшому обігу SAM. Тому ізотопне вимірювання потоку доповнює, а не дублює визначення кількості метаболіту.
3.2. Співвідношення SAM/SAH та його межі
SAH є продуктом SAM-залежного метилювання й може пригнічувати багато метилтрансфераз. Співвідношення SAM/SAH використовують як індикатор середовища цих реакцій. Воно не є абсолютною мірою метилювання кожного локусу ДНК і не має єдиного клінічного порога NNMT для всіх тканин.
RSAM/SAH=[SAH][SAM]
Однакове співвідношення можливе за різних абсолютних концентрацій і потоків. Важливі чутливість конкретного ферменту до SAH, локальна доступність SAM, час і клітинний склад. Плазмове значення не дорівнює значенню в ядрі пухлинного фібробласта чи гепатоцита. Причинна інтерпретація потребує незалежних вимірювань хроматину й експресії генів.
3.3. Різні гістонові мітки мають різний зміст
H3K27me3 пов’язана з репресією Polycomb, а H3K9me3 — з гетерохроматином і пригніченням повторів. Натомість H3K4me3 характерна для багатьох активних промоторів. Втрата цих міток не створює однакового транскрипційного результату: зменшення активувальної мітки не можна автоматично називати ввімкненням онкогенів.
Відповідь залежить від локусу, ферментів запису й стирання міток, метаболітів і факторів транскрипції. Метилювання ДНК та гістонів також не взаємозамінні. Загальна сума метильованих пептидів дає інший рівень інформації, ніж картування конкретної мітки в промоторі. З цих вимірювань не випливає повне вимкнення всіх метилтрансфераз NNMT.
3.4. Що встановила робота про methylation sink
Ulanovskaya, Zuhl і Cravatt пов’язали активність NNMT у досліджених ракових клітинах із витратами метильних одиниць, утворенням стабільного 1-MNA та змінами метилювання й експресії. Поєднання метаболоміки з втручаннями в експресію підтримало механізм, що виходить за межі кореляції. Ulanovskaya et al., 2013.
«Стік» тут означає певний напрямок потоку та залежний від умов вплив на метилювання. Дослід не встановлює неминучого канцерогенезу від нікотинаміду, універсальної величини падіння SAM чи однакової поведінки нормальних клітин. Доступність метіоніну й відновлення SAM можуть змінювати прояв механізму.
Рисунок 1. NNMT поєднує витрати NAM і SAM. Повернення NAM до NAD⁺ і відновлення SAM утворюють паралельні гілки; метильний стік має тканинний і субстратний контекст.
4. 1-MNA, піридони та ниркове виведення
4.1. 1-MNA не завжди біологічно інертний
Відсутність безпосереднього повернення метилу до SAM не означає відсутності сигнальних ефектів. У моделях тромбозу Chlopicki і співавтори виявили антитромботичну дію, пов’язану з COX-2/простацикліном. Фармакологічне втручання допомагало встановити механізм відповіді. Chlopicki et al., 2007.
Це не робить 1-MNA стандартним засобом профілактики тромбозів. Екзогенне введення в моделі, ендогенна концентрація та клінічний наслідок у людини — різні рівні доказів. Ефект також не можна переносити на 2-PY та 4-PY лише через спільне походження від вітаміну B₃.
4.2. Печінкова вісь 1-MNA–SIRT1
Hong і співавтори показали, що печінкові ефекти NNMT можуть бути опосередковані 1-MNA та стабілізацією білка SIRT1. У досліджених мишачих моделях 1-MNA покращував окремі показники ліпідного обміну. Це важливий контрприклад твердженню, що більше NNMT завжди означає однаковий несприятливий стан. Hong et al., 2015.
Стабілізація білка, пряма активація каталізу й збільшення NAD⁺ — різні механізми. Триваліше збереження SIRT1 саме по собі не доводить зв’язування 1-MNA з певним алостеричним доменом. Обговорюючи PGC-1α, FOXO1, глюконеогенез і ліпіди, необхідно враховувати харчовий стан і виміряну функцію.
4.3. AOX1 та утворення 2-PY/4-PY
1-MNA далі окиснюється за участю альдегідоксидази з утворенням піридонових метаболітів. Тут 2-PY означає N¹-метил-2-піридон-5-карбоксамід, а 4-PY — N¹-метил-4-піридон-3-карбоксамід. Назви описують різні положення окиснення кільця; продукти не взаємозамінні.
Окиснення та виведення завершують частину обміну нікотинаміду. Співвідношення залежить від виду, тканини, активності ферменту й ниркової функції; поділ 80/20 не є універсальною константою. Можливість утворення реактивних кисневих сполук також не доводить клінічно значущого окисного ушкодження за будь-якої активності гілки.
4.4. Як трактувати 4-PY і судинний ризик
Ferrell і співавтори пов’язали підвищені кінцеві метаболіти ніацину з наступними несприятливими серцево-судинними подіями в спостережних когортах. Окремі досліди підтримали прозапальну судинну дію 4-PY, зокрема експресію VCAM-1 і адгезію лейкоцитів. Поєднання людської асоціації й механізму не дорівнює рандомізованому доказу причинності інфаркту в людини. Ferrell et al., 2024.
Робота не встановлює, що будь-який прийом NR/NMN створює небезпечний рівень 4-PY, і не дає валідованого порога призначення лікування. Ниркова функція, харчування та фонові хвороби впливають на вимірювання. 2-PY і 4-PY є малими молекулами; називати їх «середніми молекулами» уремічної класифікації некоректно.
4.5. Транспорт 1-MNA: утворення не дорівнює накопиченню
Нирковий кліренс 1-MNA охоплює транспорт органічних катіонів: OCT2 бере участь у базолатеральному захопленні, MATE1/MATE2-K — в апікальному виведенні. Ito і співавтори досліджували його як ендогенну пробу транспортних лікарських взаємодій. У тій роботі N-метилнікотинамід скорочено NMN; це не попередник NAD нікотинамідмононуклеотид. Ito et al., 2012.
Рівень у плазмі залежить від виробництва, розподілу й видалення. Зниження кліренсу може підвищити 1-MNA без зростання активності NNMT. Не можна автоматично приписувати однаковий транспорт усім піридонам чи вважати одиночне вимірювання універсальним діагностичним стандартом ферменту.
5. Жирова тканина, енерговитрати й печінка
5.1. Пригнічення NNMT у моделях ожиріння
Kraus і співавтори показали, що зниження Nnmt антисмисловими олігонуклеотидами захищало мишей від ожиріння за високожирового раціону й змінювало жировий обмін. Це підтримує роль у енергетичному балансі поза утворенням екскретованого метаболіту. Kraus et al., 2014.
Ефект у конкретній мишачій моделі не встановлює лікування ожиріння людини. Важливі місце пригнічення, раціон, стать, тривалість і компенсація. Генетична відсутність, тимчасовий нокдаун і мала молекула також можуть давати різні наслідки.
5.2. Поліаміни та витрати енергії
Запропонований механізм пов’язував доступність SAM і NAD з експресією ферментів обміну поліамінів. Метилювання H3K4 брало участь у регуляції відповідних генів. Синтез і катаболізм можуть утворити цикл, що витрачає ресурси навіть за малої зміни загального пулу поліамінів.
Для синтезу сперміну й спермідину використовуються амінопропільні групи декарбоксильованого SAM — окреме перетворення, а не звичайне перенесення метилу. Ацетилювання через SAT1 витрачає ацетил-CoA. Енергетична ціна охоплює відновлення субстратів і спряжений обмін; кожна реакція ODC не гідролізує ATP безпосередньо. Холостий цикл означає метаболічний обіг, а не обов’язкову фізіологічну марність.
5.3. Енерговитрати не тотожні UCP1
Зростання споживання кисню може відображати синтез і руйнування метаболітів, іонні насоси, зміну мітохондріального спряження чи поведінку тварини. Воно не доводить обов’язкового «бежевіння» жиру та повного каскаду AMPK–PGC-1α–UCP1. Кожна ланка потребує перевірки у відповідній моделі.
UCP1 забезпечує спеціалізоване роз’єднання дихання та синтезу ATP; його описано в статті про UCP1 і термогенез. Поліаміновий обіг і UCP1-залежне роз’єднання впливають на баланс різними шляхами. Це розрізнення не дозволяє перетворити NNMT на універсальний «перемикач спалювання жиру».
5.4. Інсулінорезистентність і MASH: межі єдиної схеми
У роботі Brachs генетичний дефіцит Nnmt у самців мишей покращував чутливість до інсуліну при дієтичному ожирінні, але не толерантність до глюкози. Отже, навіть споріднені метаболічні кінцеві точки можуть розходитися. Brachs et al., 2019.
Печінкове метилювання бере участь у фосфатидилхоліні, метіоніновому обміні й захисті від стресу, тому NNMT доречно досліджувати при стеатозі та фіброзі. Проте універсальний ланцюг «NNMT → дефіцит PEMT → 4-PY → MASH» не доведено. Ліпідний експорт, глутатіон, клітинні типи й запалення потрібно вимірювати окремо; корисна вісь 1-MNA–SIRT1 виключає однозначну оцінку всіх станів печінки.
6. Пухлинні клітини та строма
6.1. Експресія, прогноз і клітинне джерело
Високу NNMT виявляли в різних пухлинних контекстах, іноді разом із міграцією, стійкістю до стресу чи несприятливим прогнозом. Зв’язок із виживаністю залежить від раку, стадії, аналізу й клітин, що містять білок. Термін «панонкогенний маркер» приховує неоднорідність.
Особливо важливо відокремлювати злоякісні клітини від фібробластів та імунних клітин. Загальна експресія може зростати через склад строми. Біомаркер потребує відтворюваного методу, незалежної валідації й доказу покращення клінічних рішень понад відомі фактори.
6.2. EMT та інвазія
Доступність метильних груп може впливати на гени адгезії й пластичність. Епітеліально-мезенхімальний перехід охоплює перебудову епітеліальних властивостей, SNAIL/ZEB і мезенхімальні програми, часто через проміжні стани. E-кадгерин належить до адгезійних контактів, а не є головним білком щільних контактів.
Вплив NNMT на міграцію в одній лінії не встановлює однакового каскаду H3K27me3–SNAIL–E-кадгерин для всіх пухлин. Потрібні локусні мітки, експресія, поведінка та рятувальні експерименти. Інвазія, потрапляння в судини й подальший ріст метастазу — різні етапи.
6.3. Фібробласти, асоційовані з раком
Eckert і співавтори порівняли пухлинний та стромальний компартменти серозного раку яєчників. Стромальна NNMT була пов’язана з програмою асоційованих із раком фібробластів (CAF), а втручання підтримали її функціональну роль. Зміни SAM, гістонового метилювання, експресії й позаклітинного матриксу поєднали обмін строми з підтримкою росту пухлини. Eckert et al., 2019.
Це вагома підстава вивчати стромальну мішень. Вона не означає незворотності всіх CAF чи повного усунення людського раку інгібуванням NNMT. Строма неоднорідна, а втручання може зачепити нормальні функції. Вибір мішені, тривалість і поєднання з іншими методами залишаються трансляційними питаннями.
6.4. Лікарська стійкість та імунний контекст
Метаболізм змінює чутливість до ліків, а строма — їхню доступність, запалення й імунний склад. Для NNMT зв’язки потрібно оцінювати за препаратом і моделлю. Одна стійкість не встановлює універсальної активації ABCB1 чи однакової резистентності до цисплатину, таксанів і темозоломіду.
Імунне уникнення також потребує обережності: зміни метаболіту, кількості CD8⁺ і функціональної цитотоксичності не тотожні. Прямий вплив 1-MNA на лімфоцит і непрямий вплив CAF на оточення — різні гіпотези. Клінічна користь поєднання інгібітора з імунотерапією потребує окремих випробувань.
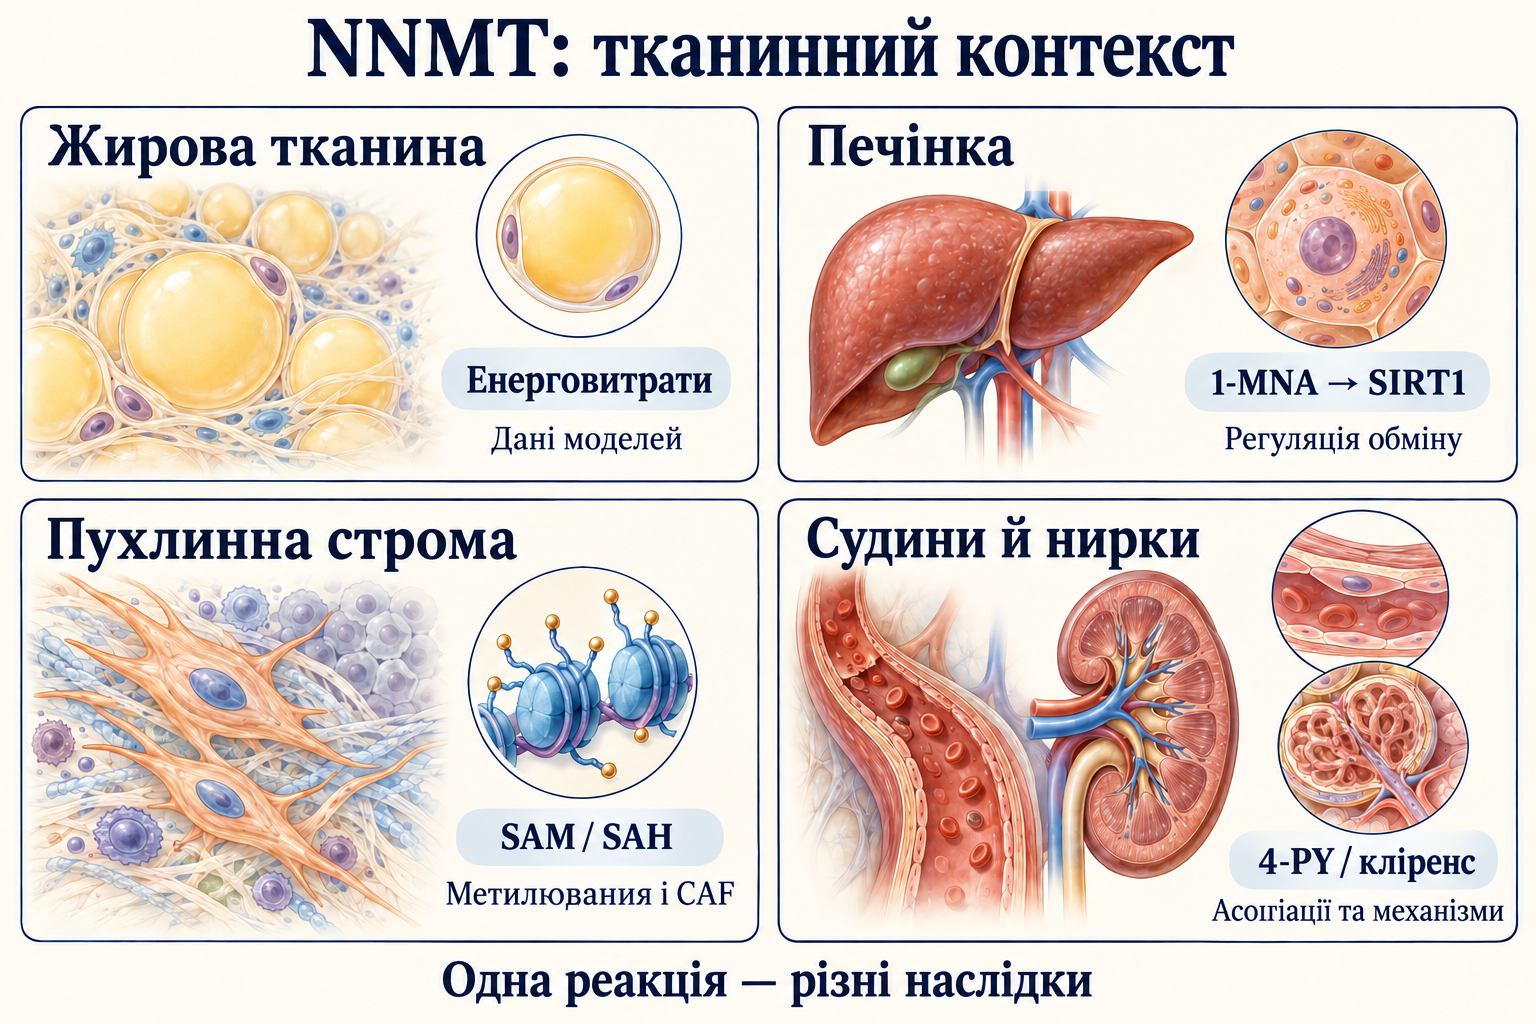
Рисунок 2. Та сама реакція NNMT має різні наслідки в жировій тканині, печінці, CAF та судинному/нирковому контексті. Напрямок ефекту не визначається лише назвою ферменту.
7. Попередники NAD⁺ і метильне навантаження
7.1. Конкуренція шляхів без неминучого відведення
NAM є субстратом і реутилізації, і NNMT. NR може спочатку перетворюватися на NMN через NR-кінази; NMN входить у наступні реакції після тканиннозалежної обробки й транспорту. Всмоктування, кишкові перетворення, печінка та мікробіота змінюють долю введеної речовини.
Ізотопні досліди Liu кількісно описували синтез і розпад NAD у моделях; Trammell показав зміни NAD-метаболому при NR. Вони не встановлюють, що фіксовані 80–90 % будь-якої дози NR/NMN завжди стають NAM або що NAMPT неминуче насичується мінімальною дозою. Liu et al., 2018, Trammell et al., 2016.
7.2. Людські вимірювання
У випробуванні Conze за участю 140 переважно здорових дорослих із надлишковою масою тіла досліджені групи NR до 1000 мг/добу протягом восьми тижнів не показали зростання плазмового гомоцистеїну відносно початку чи плацебо. Це результат випробування, а не рекомендована доза. Він суперечить обов’язковій гіпергомоцистеїнемії від NR. Conze et al., 2019.
NR-SAFE досліджував 20 людей із хворобою Паркінсона протягом чотирьох тижнів. При 3000 мг/добу спостерігали невелике зростання сироваткового гомоцистеїну, але цільна кров не показала виснаження SAM, змін SAH чи SAM/SAH. Розмір, тривалість і матриця зразків обмежують перенесення на тривале застосування й інші тканини. Berven et al., 2023.
7.3. Гомоцистеїн і «метильна підтримка»
Гомоцистеїн залежить від нирок, вітамінів, метіонінового обміну, генетики та деяких ліків. Він не специфічний для NNMT. Навіть при зростанні метильних витрат компенсація метіонінового циклу може зберігати SAM. Гіпотезу треба перевіряти вимірюваннями, а не припущенням неминучого дефіциту.
Бетаїн, фолат, B₁₂ і холін справді беруть участь у пов’язаних шляхах. Але це не встановлює обов’язкового TMG у співвідношенні 1:1 чи 2:1 до NR/NMN, прийому SAM або фіксованого вітамінного набору. Наведені випробування не підтвердили таких універсальних схем. Корекція конкретного дефіциту й дослідний супровід попередника — різні клінічні завдання.
7.4. Ніацин, ліпіди й причинність 4-PY
AIM-HIGH і HPS2-THRIVE не виявили очікуваного додаткового зменшення судинних подій при відповідних режимах ніацину на тлі сучасного лікування; HPS2-THRIVE також включав ларопіпрант. Це випробування нікотинової кислоти за конкретних умов, а не NR, NMN чи інгібування NNMT. AIM-HIGH, 2011, HPS2-THRIVE, 2014.
Дані 4-PY дають гіпотезу для дослідження частини ризику, але не доводять повного пояснення результатів ніацинових випробувань. Потрібні прямі дані втручання, експозиції й наслідків. Харчова достатність B₃, фармакологічний ніацин та експериментальне збільшення NAD — різні контексти.
8. Інгібітори NNMT: інструменти й трансляція
8.1. Хімічні підходи
Інгібітори використовують нікотинамідну кишеню, ділянку SAM або обидві. Бісубстратні аналоги бувають дуже сильними з очищеним ферментом, але полярність і розмір можуть обмежувати проникнення. Вільна тканинна експозиція та реальне пригнічення мішені важливі поряд із біохімічною IC₅₀.
Підхід
Підтверджений приклад
Що показує дослід
Відкриті питання
Бісубстратний аналог
LL320
Зв’язування обох кишень; структурні й ферментні тести
Доставка, клітинна експозиція, безпека
Заряджений малий інгібітор
5-amino-1MQ
Метаболічні й регенеративні ефекти в мишей
Ефективність і режим у людей
Аналог нікотинаміду
JBSNF-000088
Пригнічення й метаболічні зміни у тварин
Переносимість і клінічні наслідки
Пригнічення експресії
ASO/генетичні моделі
Внесок NNMT у визначеній тканині чи моделі
Тканинна вибірковість і компенсація
8.2. LL320 і структурні дані
Chen і співавтори створили LL320 із пропаргільним з’єднанням двох фрагментів. Константа інгібування становила 1,6 ± 0,3 нМ у використаній системі; 6PVS показувала взаємодію з субстратною й кофакторною ділянками. Це приклад раціонального дизайну сильного дослідницького інгібітора. Chen et al., 2019.
Константа інгібування та IC₅₀ не тотожні. За сильного зв’язування впливає концентрація ферменту, а в клітині додаються транспорт, білкове зв’язування й конкуренція метаболітів. Рейтинг за одним числом без умов мало говорить про вибір майбутніх ліків.
8.3. 5-amino-1MQ і регенерація м’яза
Neelakantan і співавтори досліджували малі інгібітори NNMT у дієтичному ожирінні. Результати підтримують фармакологічну здійсненність у тварин, але не відсутність усіх небажаних ефектів за тривалого застосування. Neelakantan et al., 2018.
У роботі 2019 року пригнічення NNMT покращувало регенерацію та скоротливу функцію після дослідної травми м’яза старих мишей. Гостра травма й клітини-сателіти не еквівалентні лікуванню людської саркопенії чи системному омолодженню. Тваринні дози й шляхи введення не формують клінічного протоколу. Neelakantan et al., 2019.
8.4. JBSNF-000088 і пригнічення експресії
Первинна робота Kannt описує JBSNF-000088 як малий аналог нікотинаміду з впливом на тваринні метаболічні показники. 5YJF допомагає пояснювати взаємодію з NNMT, але не робить сполуку клінічно валідованим засобом. Kannt et al., 2018.
ASO і генетичні моделі відокремлюють ефект ферменту від властивостей молекули. Повна відсутність білка може спричинити компенсацію, а печінкове й жирове пригнічення — різні наслідки. Твердження про доведену тривалу ефективність GalNAc-ASO у приматів виключено: використані первинні роботи не дають підтвердження.
9. Оцінка біомаркерів і клінічних гіпотез
9.1. Вимірювання та їхні межі
Дослідження NNMT потребує узгодження клітинного джерела, експресії, активності, метаболітів і функції тканини. LC–MS вимірює SAM, SAH, 1-MNA та піридони, але підготовка, метод і нирковий кліренс впливають на результат. Навіть точний тест не стає автоматично показанням до втручання.
Вимірювання
Корисне дослідницьке питання
Важливе обмеження
NNMT мРНК/білок
Де експресується фермент?
Клітинний склад і активність можуть різнитися
SAM, SAH і співвідношення
Чи змінилося середовище обраного пулу?
Кров не відображає всі тканинні компартменти
1-MNA
Чи змінилися утворення й видалення?
Нирковий транспорт і раціон впливають на рівень
2-PY/4-PY
Як змінився кінцевий обмін нікотинаміду?
Немає універсального терапевтичного порога NNMT
Гомоцистеїн
Який інтегральний стан пов’язаних шляхів?
Не специфічний для NNMT
Хроматин і функція
Чи є наслідки зміни потоку?
Потрібні локусні та функціональні вимірювання
9.2. Циркадна біологія без універсальної години прийому
Ramsey і співавтори показали зв’язок молекулярних годинників, NAMPT і коливань NAD у мишей. Це підтримує взаємодію метаболізму й циркадної системи. Воно не встановлює єдиного ранкового піка людини для всіх тканин і не доводить, що прийом у першу годину після пробудження запобігає метильним витратам. Ramsey et al., 2009.
Фаза залежить від виду, активності, харчування та тканини. Вибір часу клінічного втручання потребує порівняльних дослідів із відповідними кінцевими точками. Механістична схема підтримує гіпотезу, але не замінює випробувань.
9.3. Що потрібно для клінічного переходу
Інгібітор потребує доказів вибірковості, тканинного розподілу, досягнення мішені, тривалої безпеки й користі при обраній хворобі. Біомаркер — незалежної валідації та покращення рішень. Метильна підтримка — випробування самої схеми, а не лише знання ролі бетаїну чи фолату.
Інформативний дослід розрізняє кількість метаболіту й швидкість утворення, печінковий і стромальний вплив, біохімічне пригнічення й клінічний результат. Це зберігає потенціал NNMT, не перетворюючи її на універсальну причину ожиріння, фіброзу, раку й побічних ефектів будь-якого B₃.
10. Підсумкова наукова модель
NNMT витрачає NAM і SAM, утворює SAH та 1-MNA й може змінювати відносну доступність субстратів синтезу NAD⁺ і метилювання. У певних пухлинних і стромальних моделях потік пов’язаний з епігенетичним перепрограмуванням; у жировій тканині — з енерговитратами, у печінці — також із регуляцією 1-MNA. Піридоновий обмін і ниркове видалення додають системний рівень.
Сильна модель має пояснювати ці відмінності. Метильний стік корисний як механізм, але недостатній як діагноз чи універсальна інструкція пригнічувати фермент. Трансляція залежить від того, де, коли й наскільки змінено потік, який метаболіт діє і який наслідок виміряно.
Метод і межі огляду
Це оповідний науковий огляд на основі повного вихідного матеріалу з вибірковою перевіркою необхідних первинних джерел і конкретних бібліографічних суперечностей 8 жовтня 2026 року. Перевірялися структурні записи NNMT, роботи про метильний стік і CAF, печінкову вісь 1-MNA–SIRT1, інгібітори, 4-PY та людські вимірювання метильного обміну при NR. Недоступний повний текст не вважався прочитаним; твердження, що вимагали непідтверджених деталей, обмежено або виключено.
Огляд не є систематичним пошуком усієї літератури, метааналізом, оцінкою GRADE чи клінічною рекомендацією. Докази очищеного ферменту, клітин, тварин, спостережних когорт і рандомізованих випробувань різні за силою й застосовністю. Відсутність універсальної схеми не заперечує механізму, а визначає межу підтвердженого.
Часті питання
Чи потрібно кожній людині знижувати NNMT?
Універсального цільового рівня або клінічної схеми не встановлено. Значення активності залежить від тканини, субстратів, видалення продуктів і захворювання; клітинні та мишачі моделі не замінюють дослідження в людей.
Чи завжди 1-MNA є шкідливим відходом?
Він не повертає метил безпосередньо в SAM, але має власні біологічні ефекти. Печінкова регуляція через SIRT1 та експериментальні антитромботичні ефекти показують, чому слово відхід надто вузьке.
Чи потребують NR і NMN обов’язкового додавання TMG?
Стехіометрія NNMT не встановлює дози бетаїну або обов’язкового співвідношення добавок. Людські випробування NR не підтверджують універсального виснаження SAM; конкретна комбінація потребує власної оцінки ефективності.
Чи можна за рівнем 1-MNA або 4-PY призначити інгібітор NNMT?
Одна концентрація не визначає джерела, потоку й причинності. Харчування, функція нирок і транспорт впливають на рівень; втручання потребує валідованого клінічного показника та доказів його безпеки й користі.