DHEA-S, SULT2A1, adrenopausia e inmunidad — NutriFit
DHEA-S: síntesis suprarrenal, intracrinología, adrenopausia e inmunidad
CYP17A1, POR y b5; SULT2A1, PAPS y STS; transporte y conversión tisular. Descenso por edad, mecanismos neuroesteroideos e inmunitarios, ensayos clínicos y límites de suplementación.
El sulfato de dehidroepiandrosterona, DHEA-S o DHEAS, es uno de los principales esteroides suprarrenales C19 circulantes. Su reserva relativamente abundante y persistente abastece a tejidos capaces de importar sulfatos esteroideos y transformarlos en otros esteroides. Para entenderla hay que distinguir producción suprarrenal, sulfatación, transporte, desulfatación local y formación de ligandos de receptores androgénicos o estrogénicos. Además, DHEA y DHEA-S muestran acciones experimentales que no encajan en un modelo exclusivamente de precursor hormonal.
Sus concentraciones suelen disminuir durante el envejecimiento adulto. De ahí surgieron el término adrenopausia y las hipótesis que relacionan el descenso androgénico suprarrenal con el envejecimiento inmunitario, metabólico y neurológico. Sin embargo, una asociación con la edad, un mecanismo celular y un beneficio de suplementación son afirmaciones diferentes. Los ensayos respaldan algunos efectos específicos en poblaciones seleccionadas; no establecen DHEA como intervención general contra envejecimiento, infecciones, demencia, sarcopenia o muerte prematura.
Organización suprarrenal y desarrollo
La corteza adulta tiene una zona glomerulosa externa, una fasciculada más extensa y una reticular interna próxima a la médula. La glomerulosa produce principalmente mineralocorticoides bajo regulación del sistema renina–angiotensina y del potasio; la fasciculada produce cortisol, regulado principalmente por ACTH. El perfil enzimático reticular favorece DHEA y su sulfato. Los porcentajes aproximados de cada zona corresponden a muestras y métodos concretos, no a proporciones invariantes. Las células reticulares suelen presentar menos lípidos, organelos esteroidogénicos desarrollados y lipofuscina relacionada con la edad, pero su aspecto no cuantifica la secreción (Miller y Auchus, 2011; Rege y Rainey, 2012).
La fisiología fetal es distinta: una zona fetal prominente suministra DHEA-S para la síntesis estrogénica fetoplacentaria, junto con el hígado fetal y la placenta. Esa zona involuciona después del nacimiento. Posteriormente, la adrenarquia implica desarrollo de secreción androgénica suprarrenal, a menudo apreciable alrededor de los seis a ocho años. Es diferente de la gonadarquia, que corresponde a activación del eje hipotálamo–hipófisis–gónadas. DHEA-S suele alcanzar máximos adultos al comienzo de la edad adulta y descender después, con diferencias importantes entre sexos e individuos (Rainey et al., 2004; Rege y Rainey, 2012).
La producción humana de esteroides C19 no debe deducirse directamente de experimentos habituales en roedores. Las suprarrenales de ratones y ratas adultos normalmente carecen de la producción androgénica CYP17A1-dependiente importante del ser humano. Expresión enzimática, concentraciones circulantes y exposición tras administrar una dosis difieren entre especies. Esto no significa que solo los humanos sinteticen DHEA ni que todos los mamíferos compartan la misma vía suprarrenal.
Del colesterol a DHEA: compartimentos y electrones
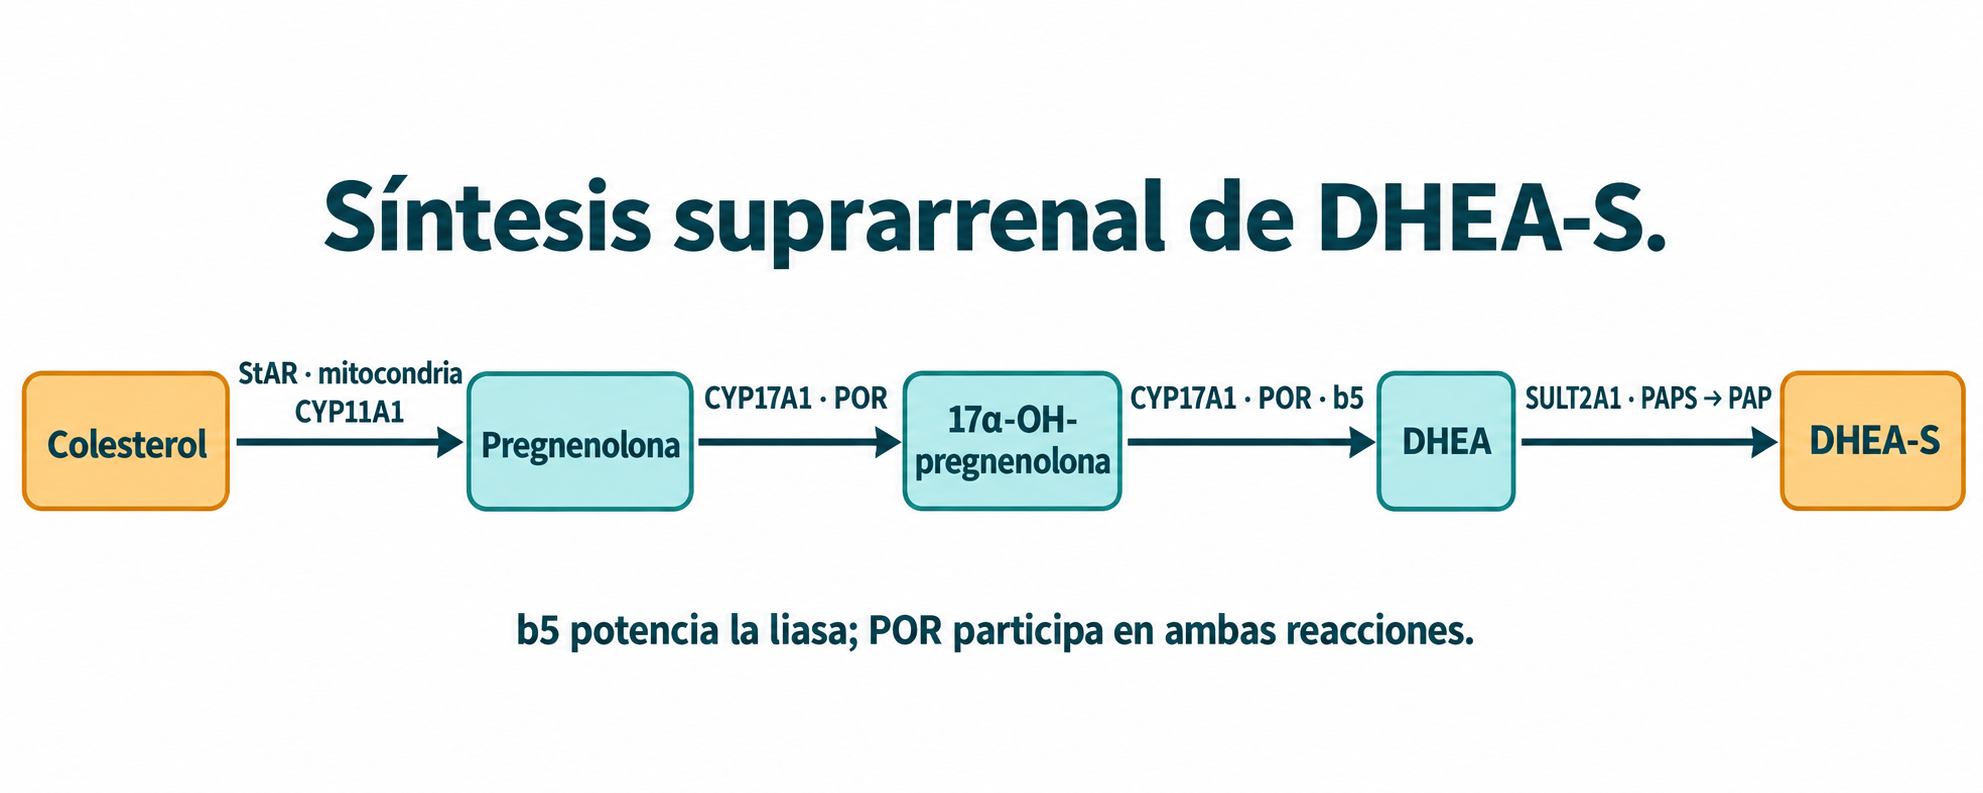
El colesterol suprarrenal procede de captación de lipoproteínas, depósitos celulares y síntesis propia. Contribuyen el receptor LDL, la entrega mediante SR-BI y la vía de HMG-CoA reductasa, en proporciones dependientes del contexto. StAR facilita la entrega agudamente regulada de colesterol a la membrana mitocondrial interna; es un regulador del transporte, no la enzima que escinde la cadena lateral.
CYP11A1 convierte allí colesterol en pregnenolona mediante hidroxilaciones sucesivas y escisión. Las hidroxilaciones en C22 y C20 preceden a la rotura del enlace C20–C22, pasando de un sustrato C27 a un esteroide C21. Los electrones de NADPH llegan a CYP11A1 mediante ferredoxina reductasa y ferredoxina, habitualmente FDXR y FDX1. Este sistema mitocondrial es distinto de POR, utilizado por CYP17A1 microsomal (Miller y Auchus, 2011).
La pregnenolona participa después en reacciones asociadas al retículo endoplásmico. CYP17A1 humano cataliza tanto 17α-hidroxilación como actividad 17,20-liasa. La importante ruta Δ5 puede resumirse así:
Ambas reacciones requieren equivalentes reductores suministrados por la NADPH–citocromo P450 oxidorreductasa, POR. La hidroxilación no funciona independientemente de un donante de electrones. El citocromo b5 potencia preferentemente la reacción liasa. CYP17A1, POR y b5, junto con actividad relativamente baja de HSD3B2, ayudan a explicar la orientación reticular hacia DHEA.
HSD3B2 transforma esteroides Δ5 en Δ4, incluidos pregnenolona a progesterona y DHEA a androstenediona. CYP17A1 humano tiene eficiencias diferentes con sustratos Δ5 y Δ4; la ruta de hidroxipregnenolona es especialmente relevante. Baja expresión de HSD3B2 no equivale a ausencia. El metaboloma suprarrenal contiene rutas adicionales, incluidas vías alternativas y andrógenos 11-oxigenados; no es una cadena única completamente aislada (Rege y Rainey, 2012).
Auchus, Lee y Miller (1998) demostraron potenciación de la liasa por b5 sin transferencia directa de electrones en su sistema reconstituido, apoyando una explicación alostérica. La magnitud depende del sustrato y configuración experimental. Estudios posteriores de interacciones específicas del sustrato impiden afirmar que b5 nunca pueda contribuir a efectos de transferencia electrónica. La fosforilación también puede modificar interacciones y actividad de CYP17A1, pero asignaciones concretas de quinasas y aumentos experimentales no constituyen una explicación cuantitativa universal del envejecimiento humano. (Liu et al., 2021).
SULT2A1 y sulfato activado
DHEA posee un grupo 3β-hidroxilo. SULT2A1 citosólica transfiere a él un grupo sulfo activado y forma DHEA-S. Pertenece a las sulfotransferasas citosólicas y puede formar dímeros; cada monómero tiene aproximadamente 34–35 kDa. Su gen está en el cromosoma 19. Estas propiedades difieren de las de la esteroide sulfatasa asociada a membrana que desulfata el producto.
El donante es PAPS, 3′-fosfoadenosina 5′-fosfosulfato. Las siguientes son esquemas bioquímicos que omiten estados de protonación:
APS designa adenosina 5′-fosfosulfato; PAP, 3′-fosfoadenosina 5′-fosfato; PPi, pirofosfato inorgánico. Las PAPS sintasas bifuncionales realizan activación del sulfato y fosforilación de APS. PAPSS2 resulta especialmente relevante para sulfatación de andrógenos suprarrenales. Esta vía consume ATP; no es una reacción dependiente de coenzima A. La participación del pantotenato en coenzima A no demuestra restauración de la producción suprarrenal de PAPS mediante vitamina B5.
La interpretación estructural exige identificar la enzima correcta. La histidina catalítica de SULT2A1 humana es His99; asignarle His108 de otra sulfotransferasa es incorrecto. Las estructuras 1EFH con PAP y 1J99 con DHEA muestran organización del sitio dependiente del ligando. Flexibilidad proteica y posición del sustrato contribuyen a la especificidad. PDB 4GRA corresponde a SULT1A1, no SULT2A1, y no demuestra los residuos de su bolsillo esteroideo. La sulfotransferasa de estrógenos SULT1E1 también es diferente, aunque utilice sulfato activado. (Cook et al., 2010).
La sulfatación incrementa masa y polaridad. DHEA tiene una masa molar aproximada de 288,42 g/mol; la forma de ácido libre de DHEA-S, 368,49 g/mol. El éster sulfato circulante es predominantemente aniónico. Las masas del anión aislado y de sales farmacéuticas difieren, de modo que una conversión analítica debe respetar la convención química del resultado.
La sulfatación disminuye el acceso inmediato a activación androgénica o estrogénica convencional y crea una reserva transportable de precursor. No equivale a eliminación irreversible. Tampoco conviene llamar a DHEA-S totalmente inerte, porque tiene efectos neuroactivos experimentales. La deficiencia de PAPSS2 demuestra por qué DHEA-S bajo no implica necesariamente poca acción androgénica: la sulfatación deficiente puede desviar DHEA hacia andrógenos activos. Estudios humanos de familias afectadas muestran metabolismo alterado y exceso androgénico pese a DHEA-S bajo, con diferencias de fenotipo y concentraciones circulantes (Oostdijk et al., 2015).
Esteroide sulfatasa y acceso local
STS hidroliza ésteres sulfato de esteroides, incluidos DHEA-S y sulfato de estrona. Su gen ligado al X está en Xp22; su deficiencia causa ictiosis ligada al X y altera el metabolismo de sulfatos esteroideos. STS se asocia al retículo endoplásmico, con dominio catalítico orientado hacia su luz y una región asociada a membrana. La estructura placentaria 1P49 respalda esta organización (Hernandez-Guzman et al., 2003).
Su residuo catalítico peculiar es formilglicina, generada a partir de una cisteína precursora por la enzima codificada por SUMF1. La formilglicina hidratada participa en la escisión del éster sulfato. No es una oxidación P450 ni una inversión de SULT2A1 utilizando PAPS. Una reacción neta simplificada es:
DHEAS+H2OSTSDHEA+sulfato inorgaˊnico.
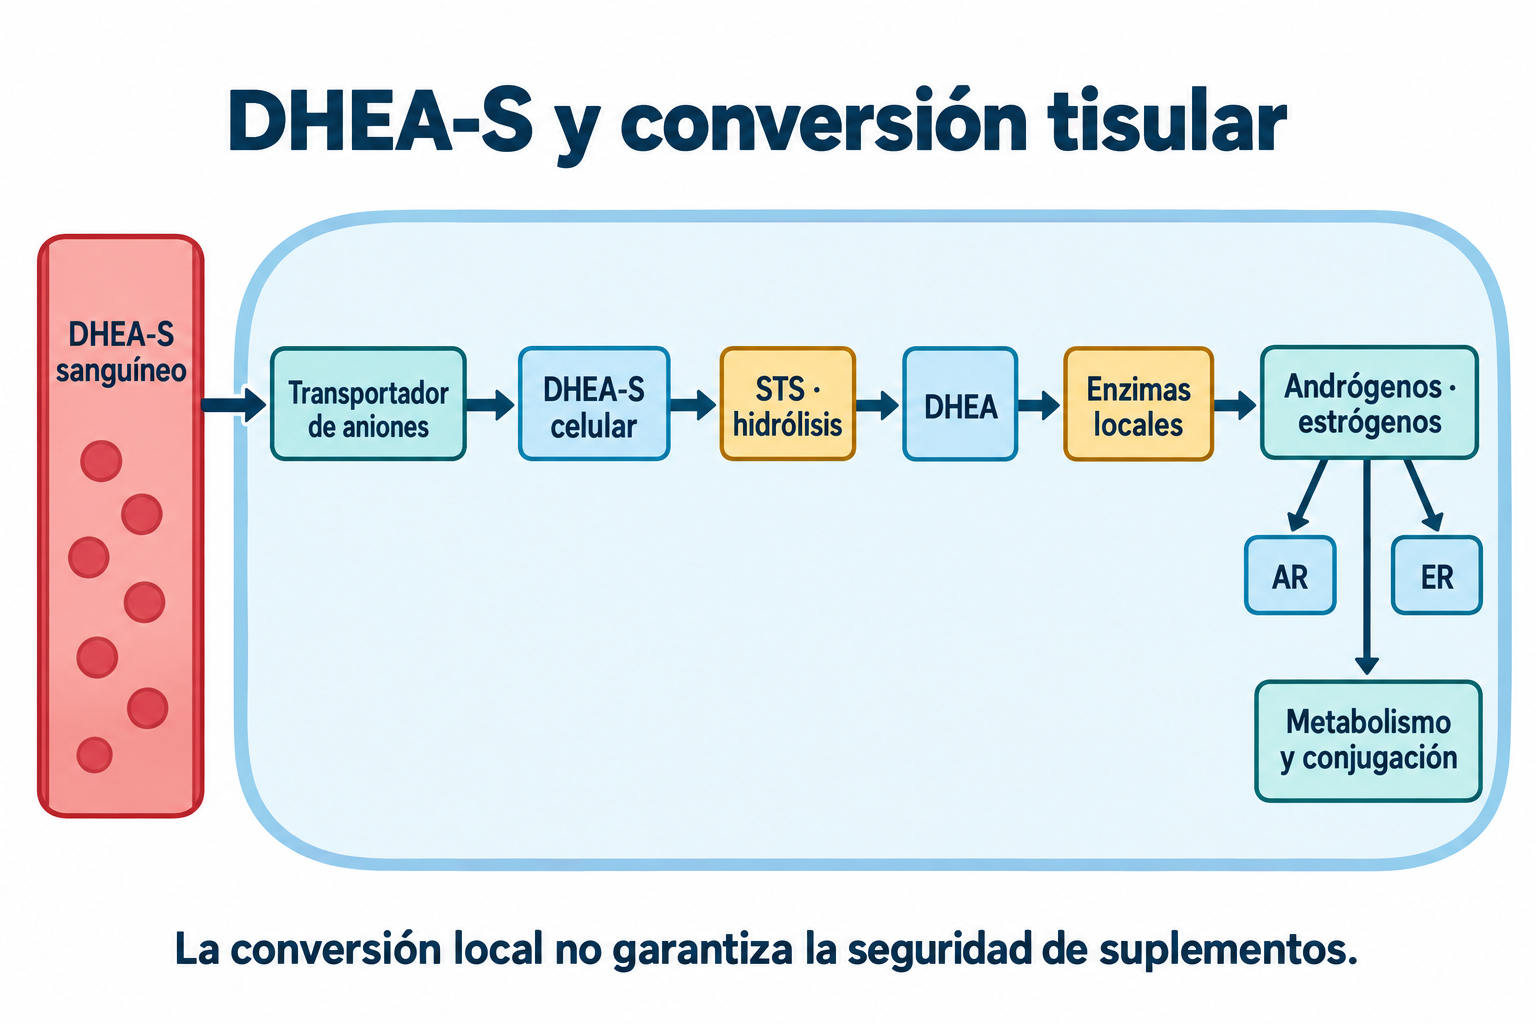
El balance iónico preciso depende de la convención de protonación. Importación, expresión de STS y acceso a enzimas celulares determinan cuánto precursor circulante utiliza un tejido. Expresión extendida no significa actividad idéntica ni una vía completa de síntesis androgénica y estrogénica en cada célula.
Concentraciones, unión y eliminación
DHEA-S suele alcanzar concentraciones molares mucho mayores que DHEA y tiene recambio circulante más lento. Se asocia sustancialmente a albúmina y no reproduce el patrón de unión de alta afinidad a SHBG de la testosterona. Las fracciones ligadas dependen de condiciones y contexto; no resulta adecuado imponer un porcentaje universal ni afirmar que la unión a albúmina nunca cambia.
Característica
DHEA
DHEA-S
Interpretación
Forma química
Esteroide relativamente lipófilo
Éster sulfato polar, predominantemente aniónico
Cambian paso por membranas y transporte
Escala de concentración
ng/mL o nmol/L
µg/mL, µg/dL o µmol/L
Toda comparación necesita unidades explícitas
Recambio circulante
Generalmente más rápido
Generalmente más lento
Semividas de trazador, dosis oral y reserva total no son equivalentes
Variación temporal
Puede mostrar variación por ACTH y ritmo diario
Habitualmente menos pronunciada
Relativa estabilidad no significa independencia del tiempo
Acceso tisular
La lipofilia facilita acceso
Importan transportadores
Abundancia sérica no equivale a exposición de ligandos activos
Por ejemplo, 1–10 ng/mL DHEA corresponde a aproximadamente 3,47–34,7 nmol/L; 1–4,5 µg/mL DHEA-S corresponde a aproximadamente 2,71–12,21 µmol/L, usando masa de ácido libre. Son ejemplos de conversión, no intervalos de referencia universales. La razón molar entre DHEA-S y testosterona depende del sexo, edad y valores concretos: no existe un factor constante de «300–500 veces».
El aclaramiento endógeno difiere de la curva posterior a DHEA oral. La conversión considerable a DHEA-S y otros metabolitos hace el perfil más complejo que el aclaramiento de un trazador aislado. Por ello, las semividas publicadas necesitan forma, vía y método de medición (Kroboth et al., 1999; Arlt et al., 1998).
Los transportadores de aniones orgánicos participan en movimientos de sulfatos esteroideos. Determinados OATP y OAT4 actúan en tejidos concretos; localización y dirección son esenciales. Una recaptación renal apical no describe por sí sola retorno a sangre: también intervienen transporte basolateral y procesamiento renal. Exportación biliar, desconjugación y microbiota pueden influir en metabolitos, sin demostrar un circuito enterohepático único y dominante. La hidroxilación de DHEA implica diversas enzimas; la 7α-hidroxilación se relaciona especialmente con CYP7B1 y no debe atribuirse globalmente a CYP3A4. Función renal o hepática, inflamación y medicamentos pueden modificar resultados. Relativa estabilidad no significa independencia de estos factores (Mueller et al., 2015).
Intracrinología y conversión tisular
La intracrinología describe producción y acción de esteroides activos dentro del tejido que recibe un precursor, frente a secreción de un producto activo por una glándula distante. DHEA-S puede entrar por un transportador aniónico, desulfatarse mediante STS y aportar DHEA a una red enzimática propia del tejido (Labrie et al., 2001).
Una ruta utiliza HSD3B para formar androstenediona y actividad reductora de 17β-hidroxiesteroide deshidrogenasa para formar testosterona. AKR1C3 es relevante en varios tejidos periféricos; HSD17B3 se asocia especialmente al testículo y no debe suponerse la enzima principal de cualquier tejido. Otra ruta reduce primero DHEA a androstenediol y después utiliza HSD3B. SRD5A1 o SRD5A2 convierten testosterona en dihidrotestosterona, DHT. Aromatasa CYP19A1 convierte andrógenos apropiados en estrógenos; interconversión estrona–estradiol depende de enzimas 17β-HSD reductoras y oxidantes. HSD17B1 favorece formación de estradiol donde se expresa, mientras HSD17B2 puede oxidar 17β-hidroxiesteroides activos.
La señalización de receptores androgénicos y estrogénicos depende, por tanto, de transporte, STS, enzimas locales, competencia entre rutas, abundancia de receptor e inactivación, además del precursor. La producción periférica de estrógenos adquiere importancia tras la menopausia, pero DHEA-S no es su único precursor: también contribuyen DHEA, androstenediona y producción ovárica residual de andrógenos. En hombres, la secreción testicular sigue siendo una fuente principal de testosterona circulante; una proporción fija de «la mitad de todos los andrógenos» procedente de DHEA suprarrenal no describe esa fisiología.
La acción local se acompaña de metabolismo y conjugación en grado variable. Reducciones por AKR1C y otras transformaciones pueden preceder a glucuronidación mediante UGT2B7, UGT2B15 y UGT2B17. Glucurónidos de androsterona y 3α-androstanediol reflejan aspectos del metabolismo androgénico periférico, pero no son indicadores específicos de DHEA-S. Los productos pueden salir del tejido, y DHEA administrada puede elevar testosterona y estradiol circulantes. La intracrinología no garantiza ausencia de consecuencias hormonales sistémicas.
Hueso, músculo, tejido adiposo y piel ilustran esta diversidad. Las señales sexuales influyen en osteoblastos y equilibrio OPG–RANKL, relevante para formación de osteoclastos. La señal androgénica muscular se cruza con síntesis proteica, pero el precursor por sí solo no determina ganancia muscular. Células estromales adiposas pueden expresar aromatasa y contribuir a estrógenos periféricos, sin que todos los adipocitos tengan actividad idéntica. Conversión cutánea afecta glándulas sebáceas y folículos, explicando acné o hirsutismo junto con cambios de hidratación. Tumores hormonodependientes también pueden aprovechar precursores y enzimas locales; la conversión es pertinente tanto para función normal como enfermedad (Labrie et al., 2001; Mueller et al., 2015).
Adrenopausia, cortisol e interpretación de biomarcadores
La adrenopausia es el descenso gradual de producción androgénica suprarrenal relacionado con la edad. No es la transición ovárica abrupta de la menopausia ni un diagnóstico para cualquier síntoma de envejecimiento. En un estudio longitudinal de 614 adultos, DHEA-S descendió en promedio aproximadamente 2% anual durante cinco años, mientras DHEA bajó más deprisa. El promedio no fija la trayectoria individual ni demuestra que recuperar una concentración anterior restaure la edad biológica (Nafziger et al., 1998).
Cambios de estructura reticular, expresión enzimática, interacciones de cofactores y regulación son contribuyentes plausibles. No obstante, porcentajes universales de pérdida celular, multiplicadores fijos de reducción de b5 o deficiencia obligatoria de PAPS requieren pruebas humanas directas. Modelos de progenitores y señalización en roedores no establecen regeneración de la zona reticular humana. Que PAPS requiera ATP tampoco prueba un déficit mitocondrial de ATP como causa de adrenopausia individual.
Cortisol y DHEA-S pueden seguir trayectorias diferentes. ACTH estimula los compartimentos pertinentes, pero organización enzimática y regulación difieren. Secreción, ritmo, unión y retrocontrol del cortisol cambian con edad, enfermedad y estrés. Es excesivo decir que cortisol siempre permanece intacto mientras solo desciende DHEA-S, o deducir que DHEA compite directamente con cortisol en el receptor glucocorticoide.
La razón cortisol:DHEA-S requiere unidades y condiciones explícitas:
R=CDHEAS(nmol/L)Ccortisol(nmol/L).
Ambas concentraciones son molares y la razón es adimensional. Si DHEA-S aparece en µmol/L, su valor debe multiplicarse por 1000 antes de compararlo con cortisol en nmol/L. Valores hipotéticos de 300/10000 dan 0,03 y 450/1000 dan 0,45: diferencia de quince veces. Ilustran aritmética, no perfiles normales jóvenes y mayores ni un umbral terapéutico.
Phillips et al. (2010) estudiaron 4255 veteranos varones de la época de Vietnam con muestras matutinas y seguimiento de mortalidad. DHEA-S bajo y razón alta se asociaron con varios desenlaces de mortalidad. Una asociación observacional admite confusión, cambios hormonales por enfermedad y distintas vías causales. No demuestra menor mortalidad al suplementar, no valida 0,10 como indicación y no permite atribuir a ese estudio lesión hipocampal por resonancia o acortamiento telomérico. DHEA-S sérica mide un esteroide suprarrenal, no un reloj de edad, reserva inmunitaria o función mitocondrial validado de forma independiente.
Neuroesteroides: mecanismos y evidencia humana
DHEA y DHEA-S se consideran neuroactivos por sus efectos sobre señalización neuronal. Se ha investigado síntesis nerviosa, pero la contribución del cerebro humano frente al suministro periférico sigue necesitando matices. DHEA lipófila y DHEA-S aniónica difieren en acceso a través de barreras. Concentraciones altas en cerebro animal o persistencia tras una manipulación endocrina no establecen el mismo origen o cociente cerebro:plasma humano (Baulieu, 1997; Maninger et al., 2009).
DHEA-S puede modular negativamente corrientes GABA-A en experimentos. Reducir una corriente inhibitoria no prueba que una cápsula mejore alerta o memoria con seguridad. Efectos relacionados con NMDA y sigma-1 dependen de concentración, preparación e interacciones indirectas. Una estructura genérica de esos receptores no identifica un sitio de DHEA-S ni demuestra unión de alta afinidad a todas las subunidades propuestas. (Majewska et al., 1990).
Sigma-1 es una chaperona intracelular asociada a contactos entre retículo endoplásmico y mitocondrias. Interacciones con BiP y señalización de receptores IP3 pueden modificar manejo de calcio. Los receptores IP3 son canales, no bombas de calcio. Cambios posteriores en función mitocondrial, respuesta oxidativa, CREB–BDNF y supervivencia celular aportan hipótesis de neuroprotección; no equivalen a prevención humana establecida de daño isquémico, Alzheimer o depresión mediante suplementación rutinaria (Maurice y Su, 2009).
Los pequeños ensayos de depresión merecen descripción aparte. Schmidt et al. (2005) estudiaron 46 adultos de 45–65 años mediante un ensayo cruzado aleatorizado y doble ciego. Seis semanas de DHEA con una pauta experimental de dosis altas mejoraron puntuaciones depresivas respecto a placebo. El resultado corresponde a una población sintomática seleccionada y un ensayo corto; no valida rejuvenecimiento cognitivo general ni automedicación. Por contraste, DAWN no mostró mejora general de cognición o calidad de vida en adultos mayores. Población, desenlace y duración delimitan cada conclusión. (Kritz-Silverstein et al., 2008).
Endotelio y óxido nítrico
DHEA puede estimular señalización endotelial experimental. Liu y Dillon (2002) describieron en preparaciones de endotelio aórtico bovino unión membranaria de alta afinidad y activación de eNOS asociada a Gi2/Gi3. El trabajo apareció en Journal of Biological Chemistry. Se caracterizó un mecanismo receptor propuesto, no un gen de receptor DHEA clonado y universalmente aceptado.
Otras investigaciones experimentales relacionan exposición con Src, PI3K, Akt y eNOS. El óxido nítrico activa guanilato ciclasa soluble, incrementa cGMP y relaja músculo vascular. Sitios de fosforilación dependen de vía y convención proteica. Estos mecanismos explican el interés vascular, pero no prueban prevención de infarto, trombosis o muerte cardiovascular. También al analizar ApoB y carga de partículas aterogénicas importa separar mecanismos endoteliales de evaluación clínica del riesgo.
Homeostasis inmunitaria e inmunosenescencia
Glucocorticoides y esteroides relacionados con andrógenos suprarrenales influyen en células inmunitarias mediante mecanismos distintos. Señalización del receptor glucocorticoide regula transcripción inflamatoria, supervivencia linfocitaria y respuestas tisulares según dosis, duración y contexto. Efectos experimentales de DHEA sobre citocinas, apoptosis o metabolismo glucocorticoide no la convierten en antagonista competitivo universal del cortisol ni demuestran conservación clínica del timo.
Estudios celulares y animales muestran cambios de NF-κB, citocinas y respuestas linfocitarias. Hay que especificar estímulo, célula y concentración: una reducción experimental no implica un descenso fijo de 40–60% de IL-6, TNF o IL-1 en humanos. Los estudios humanos pequeños ilustran la heterogeneidad (Hazeldine et al., 2010).
Estudio
Diseño y medición
Qué apoya
Qué no establece
Casson et al., 1993
Once mujeres posmenopáusicas; exposición corta cruzada con placebo
Cambios de subpoblaciones, respuesta a mitógenos y citotoxicidad NK
Menos infecciones, mejor vacunación o inmunidad rejuvenecida
Khorram et al., 1997
Nueve hombres mayores; dos semanas placebo y después veinte semanas DHEA
Cambios de citocinas estimuladas y medidas NK
Ensayo aleatorizado paralelo o menor incidencia de infección/cáncer
Trabajos mecanísticos
Cultivos y animales
Vías potencialmente sensibles a esteroides
Dosis humana validada o respuesta antiinflamatoria universal
Casson observó aumento de citotoxicidad NK junto con cambios que incluían menor representación CD4 y alteración de respuestas mitogénicas. Presentarlo únicamente como mejora de inmunidad T sería engañoso. Khorram observó aumentos de IL-2 e IL-6 estimuladas, no supresión universal de IL-6; recuentos y subpoblaciones T no simplemente regresaron a juventud. Número NK, citotoxicidad y secreción de citocinas son resultados distintos; ninguno sustituye supervivencia libre de infecciones.
La inmunosenescencia incluye cambios de compartimentos vírgenes y de memoria, diferenciación terminal y respuestas funcionales variables. CD45RA solo no identifica una célula T virgen: células de memoria terminalmente diferenciadas pueden reexpresarlo. Pérdida de CD28 y expresión CD57 caracterizan algunas poblaciones, pero senescencia, agotamiento y fenotipo secretor asociado a senescencia no son sinónimos para todas ellas. La evidencia citada no establece restauración de telomerasa, regeneración tímica, reversión de todos esos fenotipos o mejor protección vacunal con DHEA.
Músculo, metabolismo de glucosa y hueso
El potencial anabólico ha motivado investigación en sarcopenia. Señales androgénicas y relacionadas con IGF pueden activar Akt, afectar regulación TSC–Rheb de mTORC1 y modificar síntesis proteica dependiente de p70S6 quinasa y 4E-BP1. Miostatina y degradación proteica añaden regulación. Son mecanismos celulares; no implican que una dosis oral aporte una cantidad fija de músculo a cada mayor.
Villareal y Holloszy (2006) estudiaron DHEA durante diez meses, añadiendo entrenamiento de fuerza en los últimos cuatro. Una interacción con ejercicio en ese contexto es diferente de DHEA sola. Nair et al. (2006), durante dos años en mayores con DHEA-S bajo, no encontraron mejoría relevante de fuerza, capacidad aeróbica, composición corporal, sensibilidad insulínica ni calidad de vida atribuible a DHEA. Diferencias de participantes, ejercicio y medición impiden generalizar una observación positiva como protocolo anabólico universal.
Mecanismos metabólicos experimentales incluyen AMPK, regulación TBC1D4 del tráfico GLUT4, expresión de genes gluconeogénicos y oxidación lipídica mediante PPARα, CPT1 y enzimas peroxisomales. La regulación por fosforilación de una proteína activadora de GTPasa Rab es más precisa que decir que AMPK inhibe una enzima y elimina glucosa. La mayoría exige distinguir modelos animales de resultados humanos. La discusión de AMPK en investigaciones de berberina ayuda a entender este salto, sin que los efectos de un compuesto demuestren los de otro.
Apostolova et al. (2005) mostraron menor amplificación de acción glucocorticoide en sistemas adiposos experimentales, vinculada con regulación de expresión 11β-HSD1 y factores como H6PD y C/EBPα. No prueba inhibición humana directa no competitiva clínicamente establecida. Villareal y Holloszy (2004), en un ensayo pequeño de seis meses, observaron menos grasa abdominal y mejoría de una medida de acción insulínica. El estudio negativo posterior de dos años impide prometer reducciones universales de HOMA-IR o tratamiento demostrado de diabetes.
Los efectos óseos pueden reflejar conversión local o circulante de esteroides sexuales, señales osteoblásticas y osteoclásticas y diferencias entre sitios. Runx2, colágeno, osteocalcina y OPG–RANKL son conceptos relevantes, pero sus cambios no demuestran prevención de fracturas. Jankowski et al. (2006) aleatorizaron 140 mayores a 50 mg/día DHEA o placebo durante doce meses. Hubo aumento lumbar de densidad mineral en mujeres y efectos modestos de cadera dependientes del análisis. No fue un estudio de dos años ni demostró aumento universal de masa magra; su DOI correcto es 10.1210/jc.2005-2484. Nair también encontró cambios óseos pequeños en sitios determinados sin mejora funcional general.
Suplementación: formulaciones, dosis y seguridad
DHEA micronizada oral, preparados tópicos y otras vías producen exposiciones distintas. Absorción, sulfatación de primer paso y conversión sexual dependen del producto y persona. SULT2A1 importa para DHEA; SULT1E1 de estrógenos no sustituye a su enzima principal. Un pico plasmático de un preparado no se aplica a todos ni demuestra rescate cognitivo mediante vía sublingual.
Los 50 mg/día frecuentes proceden de protocolos particulares, no de una recomendación general antienvejecimiento. Arlt et al. (1998) estudiaron nueve mujeres jóvenes con supresión por dexametasona; 100 mg produjeron exposición suprafisiológica. El posterior ensayo cruzado de insuficiencia suprarrenal incluyó 24 mujeres y períodos de cuatro meses; mejoraron algunos aspectos de bienestar y sexualidad y disminuyó colesterol HDL. Esas poblaciones difieren de personas mayores sanas (Arlt et al., 1999).
Pregunta clínica
Límite de evidencia
¿Puede aumentar DHEA-S?
Sí; restauración bioquímica no demuestra rejuvenecimiento
¿Un año demuestra seguridad a largo plazo?
No; cáncer y otros resultados infrecuentes necesitan mayor duración y potencia
¿Hay efectos óseos?
Algunos modestos y específicos de sitio/sexo; prevención de fracturas no demostrada
¿Se restaura inmunidad?
Resultados de laboratorio pequeños no prueban menos infecciones ni mejor protección vacunal
¿DHEA-S bajo por edad basta para tratar?
No hay umbral universal ni objetivo juvenil validado por resultados
¿Se extrapola insuficiencia suprarrenal a adrenopausia?
No; enfermedad endocrina definida y envejecimiento ordinario difieren
DHEAge administró 50 mg/día o placebo durante un año a 280 adultos de 60–79 años. Encontró cambios seleccionados de hueso, piel y libido, sobre todo en subgrupos femeninos, sin acumulación perjudicial de los esteroides estudiados durante ese año (Baulieu et al., 2000). No fue metaanálisis ni demostró seguridad oncológica vitalicia o protección global frente al envejecimiento. Los resultados de dos años de Nair pesan especialmente al evaluar promesas amplias.
DHEA puede elevar exposición androgénica y estrogénica. Acné, hirsutismo, cambios capilares androgénicos y perfil lipídico son efectos adversos relevantes. Enfermedad hormonodependiente necesita valoración específica: conversión intracelular no protege mama, endometrio o próstata de señales esteroideas. Ausencia de grandes cambios PSA en una prueba pequeña y corta no establece seguridad respecto al cáncer prostático. Un supuesto equilibrio entre señales androgénicas y estrogénicas tampoco prueba prevención tumoral.
La guía Endocrine Society de 2014 aconseja evitar prescripción rutinaria de DHEA en mujeres con andrógenos bajos, por beneficios insuficientes y falta de información sobre riesgos prolongados. La guía de insuficiencia suprarrenal primaria de 2016 sugiere un ensayo limitado en determinadas mujeres con libido baja, síntomas depresivos o poca energía persistentes pese a reemplazo glucocorticoide y mineralocorticoide optimizado. Implica enfermedad definida, reevaluación y suspensión sin beneficio; no es un protocolo general de longevidad.
Laboratorio y suplementos acompañantes propuestos
Un resultado exige intervalo de referencia del método, edad y sexo, además de pregunta clínica, medicación y enfermedad. Inmunoensayos y LC-MS/MS pueden diferir. Fatiga, ánimo deprimido, libido baja, problemas cognitivos y pérdida muscular son inespecíficos; DHEA-S bajo solo no diagnostica insuficiencia suprarrenal. Cortisol, ACTH y otras pruebas se eligen por hallazgos clínicos, no como panel universal antienvejecimiento.
La conversión de unidades es esencial:
CDHEAS(μmol/L)=0.02714×CDHEAS(μg/dL).
Un µmol/L equivale aproximadamente a 36,849 µg/dL. Así, 4,5–7 µmol/L equivale aproximadamente a 166–258 µg/dL y 7–11 µmol/L a 258–405 µg/dL. Son ejemplos aritméticos, no objetivos recomendados. Elegir para toda persona mayor el tercio superior de valores juveniles no está validado por resultados clínicos. Ni el tercio inferior del intervalo de edad ni una razón superior a 0,10 establecen necesidad universal de terapia.
El original proponía vitamina C, pantotenato, fosfatidilserina, ashwagandha, acetil-L-carnitina y coenzima Q10. Cada sustancia tiene sus propias razones biológicas o experimentales; no demuestran restauración de zona reticular humana, b5, PAPS ni desenlaces inmunitarios. Vitamina C no es donante obligatorio del sistema CYP17A1–POR. Pantotenato en coenzima A no es sustrato de PAPS. Cambiar una medida de estrés mediante fosfatidilserina o ashwagandha no prueba corregir adrenopausia. Funciones mitocondriales generales de acetil-L-carnitina y CoQ10 no demuestran reversión de un defecto suprarrenal de ATP identificado. Las dosis combinadas propuestas no constituyen un protocolo endocrino basado en pruebas.
Si DHEA se considera por un motivo clínico definido, se valoran síntomas, exposición esteroidea, efectos adversos y enfermedad subyacente. Cribado oncológico sigue guías e individualización de riesgo, no una pauta inventada de fracciones PSA, imágenes o exámenes semestrales para cualquier usuario. Vigilar una concentración sirve solamente junto a una pregunta terapéutica justificada y evaluación de beneficio.
Investigación pendiente
Fisiología androgénica humana, sulfatación y desulfatación local, neuroactividad y respuestas inmunitarias siguen siendo temas importantes. Modulación selectiva de SULT2A1, STS o interacciones CYP17A1–b5 es una posibilidad mecanística de investigación, no una herramienta validada para restaurar suprarrenales jóvenes. La investigación de inhibidores STS en enfermedad hormonodependiente demuestra también que aumentar disponibilidad no sigue una regla simple de «más es mejor».
DHEA-S conecta desarrollo suprarrenal, transferencia electrónica, activación del sulfato, transporte y metabolismo sexual local. Sus trayectorias y asociaciones merecen investigación. La evidencia respalda esa importancia biológica, pero deja sin demostrar promesas de rejuvenecimiento inmunitario, longevidad, prevención de demencia y suplementación antienvejecimiento estandarizada.
Preguntas frecuentes
¿DHEA-S bajo siempre significa insuficiencia suprarrenal?
No. Importan edad, sexo, método, fármacos y enfermedad; el diagnóstico necesita evaluación clínica.
¿La conversión intracelular garantiza seguridad?
No. DHEA puede elevar esteroides sexuales circulantes y tejidos hormonodependientes usan precursores.
¿Cambios NK prueban menos infecciones?
No. Recuentos, citocinas estimuladas y citotoxicidad difieren de desenlaces clínicos.
¿ 50 mg/día y un objetivo juvenil son un protocolo antienvejecimiento?
No. Dosis de investigación y situaciones seleccionadas de insuficiencia no validan tratar rutinariamente la edad.
¿Una razón cortisol:DHEAS alta demuestra menor mortalidad con DHEA?
No. La cohorte de veteranos encontró asociación, no efecto terapéutico.