
DHEA-S: синтез у наднирниках, інтракринологія, адренопауза та імунітет
CYP17A1, POR і b5; SULT2A1, PAPS і STS; транспорт і тканинні перетворення. Вікове зниження, нейростероїдні й імунні механізми, клінічні дослідження та межі приймання DHEA.
CYP17A1, POR і b5; SULT2A1, PAPS і STS; транспорт і тканинні перетворення. Вікове зниження, нейростероїдні й імунні механізми, клінічні дослідження та межі приймання DHEA.
Дегідроепіандростерон-сульфат, DHEA-S або DHEAS, — один з основних циркулюючих наднирникових C19-стероїдів. Його відносно великий і стійкий пул постачає тканини, здатні захоплювати сульфатовані стероїди й перетворювати їх на інші гормони. Для розуміння цього резерву слід розрізняти наднирникове утворення, сульфатування, транспорт, місцеве десульфатування та синтез лігандів андрогенових і естрогенових рецепторів. У DHEA та DHEA-S також описані експериментальні дії, які не зводяться лише до ролі попередника статевих гормонів.
Концентрація зазвичай зменшується з віком. Це стало підставою терміна «адренопауза» та гіпотез про зв’язок наднирникових андрогенів з імунним, метаболічним і неврологічним старінням. Однак вікова асоціація, клітинний механізм і користь від приймання препарату — різні твердження. Дослідження підтримують окремі ефекти у визначених групах, але не встановлюють DHEA як універсальний засіб проти старіння, інфекцій, деменції, саркопенії чи передчасної смерті.
Кора дорослого наднирника має зовнішню клубочкову, ширшу пучкову та внутрішню сітчасту зони біля мозкової речовини. Клубочкова переважно утворює мінералокортикоїди під впливом ренін–ангіотензинової системи й калію; пучкова — кортизол, головним чином під контролем АКТГ. Ферментний профіль сітчастої зони сприяє DHEA та його сульфату. Орієнтовні частки зон залежать від зразка, віку й методу, тому не є незмінними відсотками кожної залози. Для сітчастих клітин характерні менші ліпідні запаси, розвинені стероїдогенні органели та віковий ліпофусцин, але морфологія сама по собі не вимірює продукцію гормонів (Miller і Auchus, 2011; Rege і Rainey, 2012).
Наднирник плода організований інакше. Виражена фетальна зона забезпечує DHEA-S для фетоплацентарного синтезу естрогенів за участю печінки плода та плаценти. Після народження вона інволюціонує. Пізніше адренархе означає розвиток наднирникової секреції андрогенів, часто помітний приблизно у шість–вісім років. Це відрізняється від гонадархе — активації гіпоталамо-гіпофізарно-гонадної осі. Найвищі дорослі концентрації DHEA-S зазвичай спостерігаються на початку дорослого життя, далі знижуються з істотними статевими й індивідуальними відмінностями (Rainey та співавт., 2004; Rege і Rainey, 2012).
Людську продукцію наднирникових C19-стероїдів не можна автоматично виводити зі стандартної моделі гризунів. Наднирники дорослих мишей і щурів зазвичай не мають значної CYP17A1-залежної андрогенної секреції, характерної для людини. Відрізняються експресія ферментів, циркулюючі концентрації та експозиція після введення дози. Це не означає, що DHEA синтезує виключно людина або що всі ссавці мають однаковий наднирниковий шлях.
Холестерин надходить із ліпопротеїнів, внутрішньоклітинних запасів і власного синтезу. Беруть участь LDL-рецептор, перенесення через SR-BI та шлях HMG-CoA-редуктази; їхні внески залежать від умов. StAR забезпечує гостро регульовану доставку холестерину до внутрішньої мембрани мітохондрій. Це регулятор транспорту, а не фермент відщеплення бічного ланцюга.
На внутрішній мембрані CYP11A1 перетворює холестерин на прегненолон через послідовні гідроксилювання й розщеплення. Гідроксилювання при C22 та C20 передують розриву зв’язку C20–C22: C27-субстрат стає C21-стероїдом. Електрони NADPH надходять через ферредоксинредуктазу та ферредоксин, зазвичай FDXR і FDX1. Ця мітохондріальна система відрізняється від POR, що обслуговує мікросомальний CYP17A1 (Miller і Auchus, 2011).
Прегненолон далі вступає в реакції, пов’язані з ендоплазматичним ретикулумом. CYP17A1 людини каталізує 17α-гідроксилювання та 17,20-ліазну реакцію. Важливий Δ5-шлях:
Обидві реакції потребують відновних еквівалентів від NADPH–цитохром-P450-оксидоредуктази POR. Гідроксилювання не є незалежним від електронного донора. Цитохром b5 переважно посилює ліазну реакцію. CYP17A1, POR і b5 разом із відносно низькою HSD3B2 допомагають пояснити напрям сітчастої зони до DHEA.
HSD3B2 переводить Δ5-стероїди у Δ4, зокрема прегненолон у прогестерон і DHEA в андростендіон. Ефективність людського CYP17A1 різна для Δ5- і Δ4-субстратів; гідроксипрегненолоновий шлях особливо важливий. Низька експресія HSD3B2 не дорівнює відсутності. Наднирниковий метаболом містить альтернативні та 11-оксигеновані андрогенні шляхи, а не одну повністю ізольовану лінійну послідовність (Rege і Rainey, 2012).
Auchus, Lee і Miller (1998) показали, що b5 посилює ліазу без безпосереднього перенесення електронів у їхній реконструйованій системі, підтримавши алостеричну модель. Розмір ефекту залежить від субстрату й умов. Пізніші субстрат-специфічні дослідження не дозволяють категорично виключати електронні ефекти b5 за будь-яких обставин. Фосфорилювання також може змінювати активність і взаємодії CYP17A1, але окремі кінази та експериментальні кратності не є універсальним кількісним поясненням старіння людини. (Liu et al., 2021).
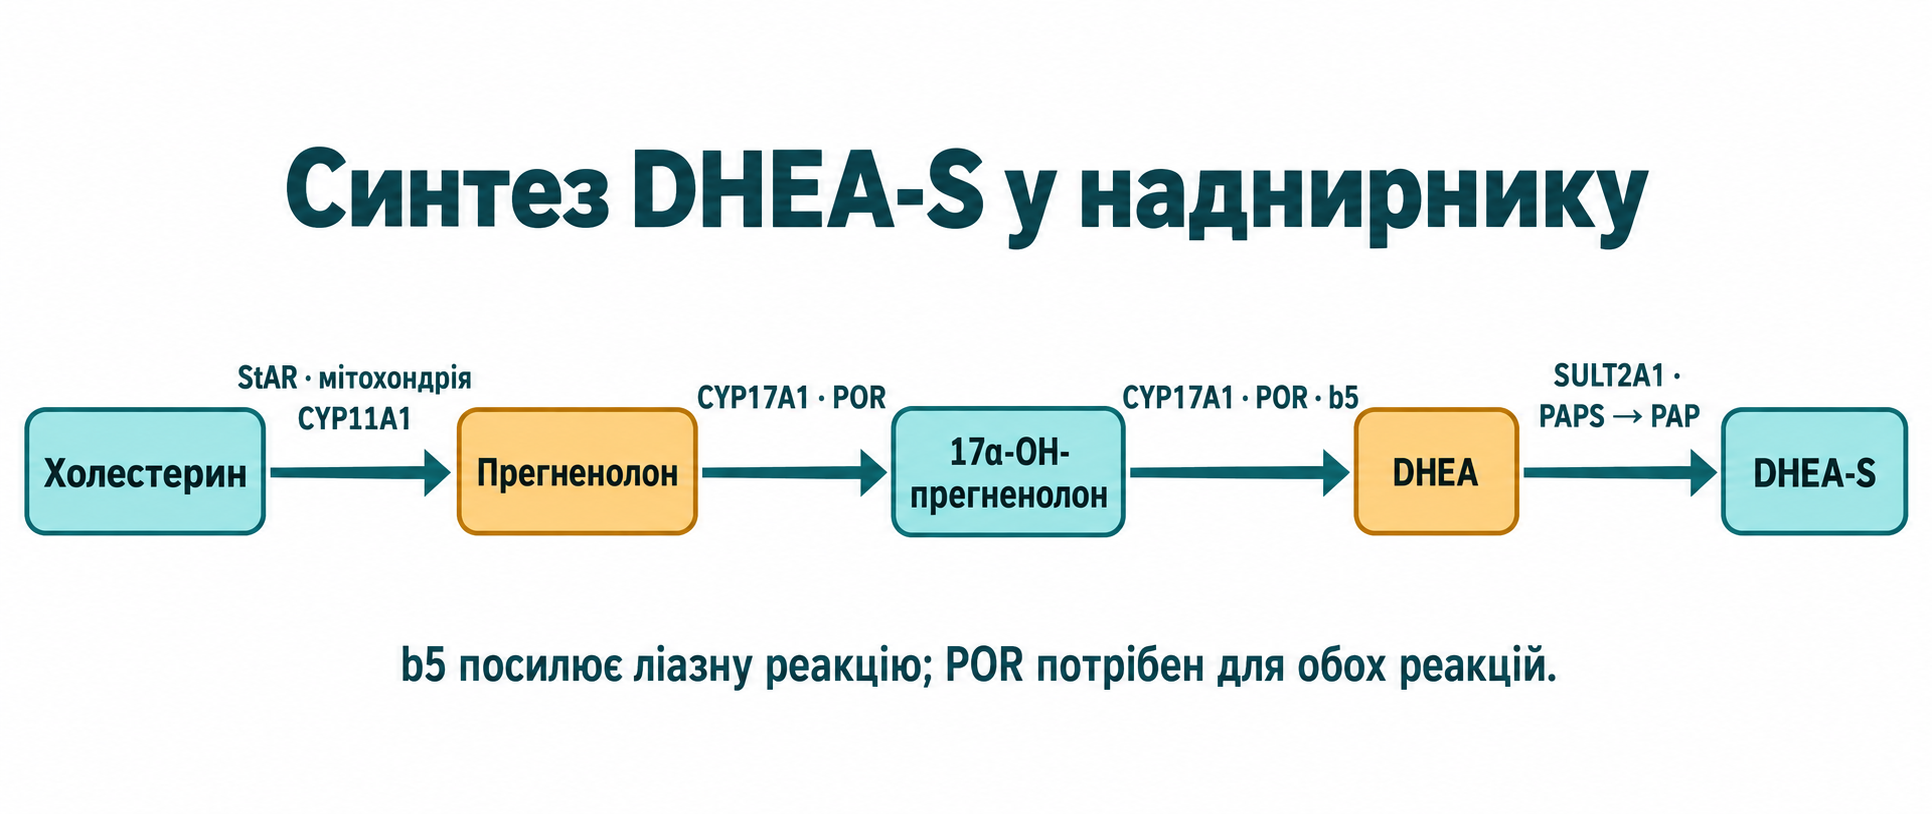
DHEA має 3β-гідроксильну групу. Цитозольна SULT2A1 переносить на неї активовану сульфогрупу, утворюючи DHEA-S. Вона належить до цитозольних сульфотрансфераз і може утворювати димери; мономер має приблизно 34–35 кДа. Ген міститься на хромосомі 19. Це відрізняється від мембраноасоційованої стероїдсульфатази, що здійснює десульфатування.
Донор — PAPS, 3′-фосфоаденозин-5′-фосфосульфат. Наведені схеми опускають стани протонування:
APS — аденозин-5′-фосфосульфат, PAP — 3′-фосфоаденозин-5′-фосфат, PPi — неорганічний пірофосфат. Біфункціональні PAPS-синтази активують сульфат і фосфорилюють APS. PAPSS2 особливо важлива для сульфатування наднирникових андрогенів. Шлях використовує ATP, але не залежить від коензиму A. Участь пантотенату в коензимі A не доводить відновлення наднирникового PAPS прийманням вітаміну B5.
Структурні дані треба відносити до правильного ферменту. Каталітичний гістидин людської SULT2A1 — His99; приписування His108 з іншої сульфотрансферази є помилкою. Структури 1EFH з PAP та 1J99 з DHEA показують залежність організації ділянки зв’язування від ліганда. Рухливість білка й позиція субстрату визначають специфічність. PDB 4GRA представляє SULT1A1, не SULT2A1, і не підтверджує амінокислотний склад її стероїдної кишені. Естрогенсульфотрансфераза SULT1E1 також є окремим ферментом, хоча використовує активований сульфат. (Cook et al., 2010).
Сульфатування збільшує масу та полярність. Молярна маса DHEA близько 288,42 г/моль, вільної кислотної форми DHEA-S — 368,49 г/моль. У крові сульфат переважно аніонний. Маси ізольованого аніона та лікарських солей відрізняються, тому перерахунок має відповідати хімічній конвенції аналізу.
Сульфатування зменшує негайний доступ до класичної андрогенної й естрогенної активації та створює транспортований резерв попередника, а не лише необоротне виведення. Назва «повністю інертний» також не враховує експериментальної нейроактивності DHEA-S. Дефіцит PAPSS2 показує, чому низький DHEA-S не завжди означає слабку андрогенну дію: порушення сульфатування може спрямувати DHEA до активних андрогенів. Людські сімейні дослідження виявляють змінений метаболізм і андрогенний надлишок за низького DHEA-S; фенотип і циркулюючі андрогени різняться (Oostdijk та співавт., 2015).
Стероїдсульфатаза STS гідролізує сульфатні ефіри, зокрема DHEA-S та естрон-сульфат. Її X-зчеплений ген міститься у Xp22; дефіцит спричиняє X-зчеплений іхтіоз та змінює обмін стероїдних сульфатів. STS асоційована з ендоплазматичним ретикулумом, із каталітичним доменом у його просвіті та мембранною ділянкою. Плацентарна структура 1P49 підтримує цю організацію (Hernandez-Guzman та співавт., 2003).
Особливий каталітичний залишок — формілгліцин, утворений із цистеїну ферментом, кодованим SUMF1. Гідратована форма бере участь у розщепленні сульфатного ефіру. Це не P450-окиснення та не зворотна робота SULT2A1 з PAPS. Спрощена сумарна реакція:
Іонний баланс залежить від стану протонування. Захоплення субстрату, експресія STS та внутрішньоклітинний доступ визначають використання резерву. Поширена експресія не означає однакову активність або повний андрогенний та естрогенний шлях у кожній клітині.
Молярні концентрації DHEA-S зазвичай значно вищі за DHEA, а циркулюючий пул оновлюється повільніше. DHEA-S істотно пов’язаний з альбуміном і не повторює високоспоріднений до SHBG профіль тестостерону. Частки залежать від умов і стану; точний універсальний відсоток та незмінність альбумінового зв’язування не виправдані.
| Ознака | DHEA | DHEA-S | Значення |
|---|---|---|---|
| Хімічна форма | Відносно ліпофільний стероїд | Полярний, переважно аніонний сульфат | Змінюються мембранний доступ і транспорт |
| Масштаб концентрацій | нг/мл або нмоль/л | мкг/мл, мкг/дл або мкмоль/л | Потрібні явні одиниці |
| Оновлення пулу | Зазвичай швидше | Зазвичай повільніше | Напіввиведення мітки, пероральної дози та всього пулу не тотожні |
| Часова мінливість | Можливий помітний зв’язок з АКТГ і добовим ритмом | Зазвичай менш виражена | Стабільність не означає відсутності ритму |
| Тканинний доступ | Ліпофільність полегшує доступ | Важливі переносники | Велика концентрація не дорівнює активній гормональній експозиції |
Наприклад, 1–10 нг/мл DHEA — приблизно 3,47–34,7 нмоль/л, а 1–4,5 мкг/мл DHEA-S — приблизно 2,71–12,21 мкмоль/л за масою вільної кислоти. Це приклади перерахунку, не загальні віково-статеві референси. Кратність різниці між DHEA-S і тестостероном залежить від статі, віку й значень; універсальне «у 300–500 разів» не описує всіх людей.
Ендогенний кліренс відрізняється від кривої після приймання DHEA: значне утворення DHEA-S та інших метаболітів ускладнює часовий профіль порівняно з ізольованою міткою. Оцінки напіввиведення повинні вказувати форму, шлях введення й метод (Kroboth та співавт., 1999; Arlt та співавт., 1998).
У русі стероїдних сульфатів беруть участь органічні аніонні переносники, зокрема певні OATP й OAT4 у відповідних тканинах. Значення мають локалізація та напрям: апікальний нирковий захват не є повним поверненням у кров без базолатерального транспорту. Біліарне виведення, декон’югація й мікробіота впливають на метаболіти, не доводячи єдиного домінувального ентерогепатичного циклу. Гідроксилювання DHEA забезпечують різні ферменти; 7α-гідроксилювання особливо пов’язане з CYP7B1 і не повинно повністю приписуватися CYP3A4. Печінка, нирки, запалення й ліки змінюють аналіз, тож відносна стабільність не означає незалежності від них (Mueller та співавт., 2015).
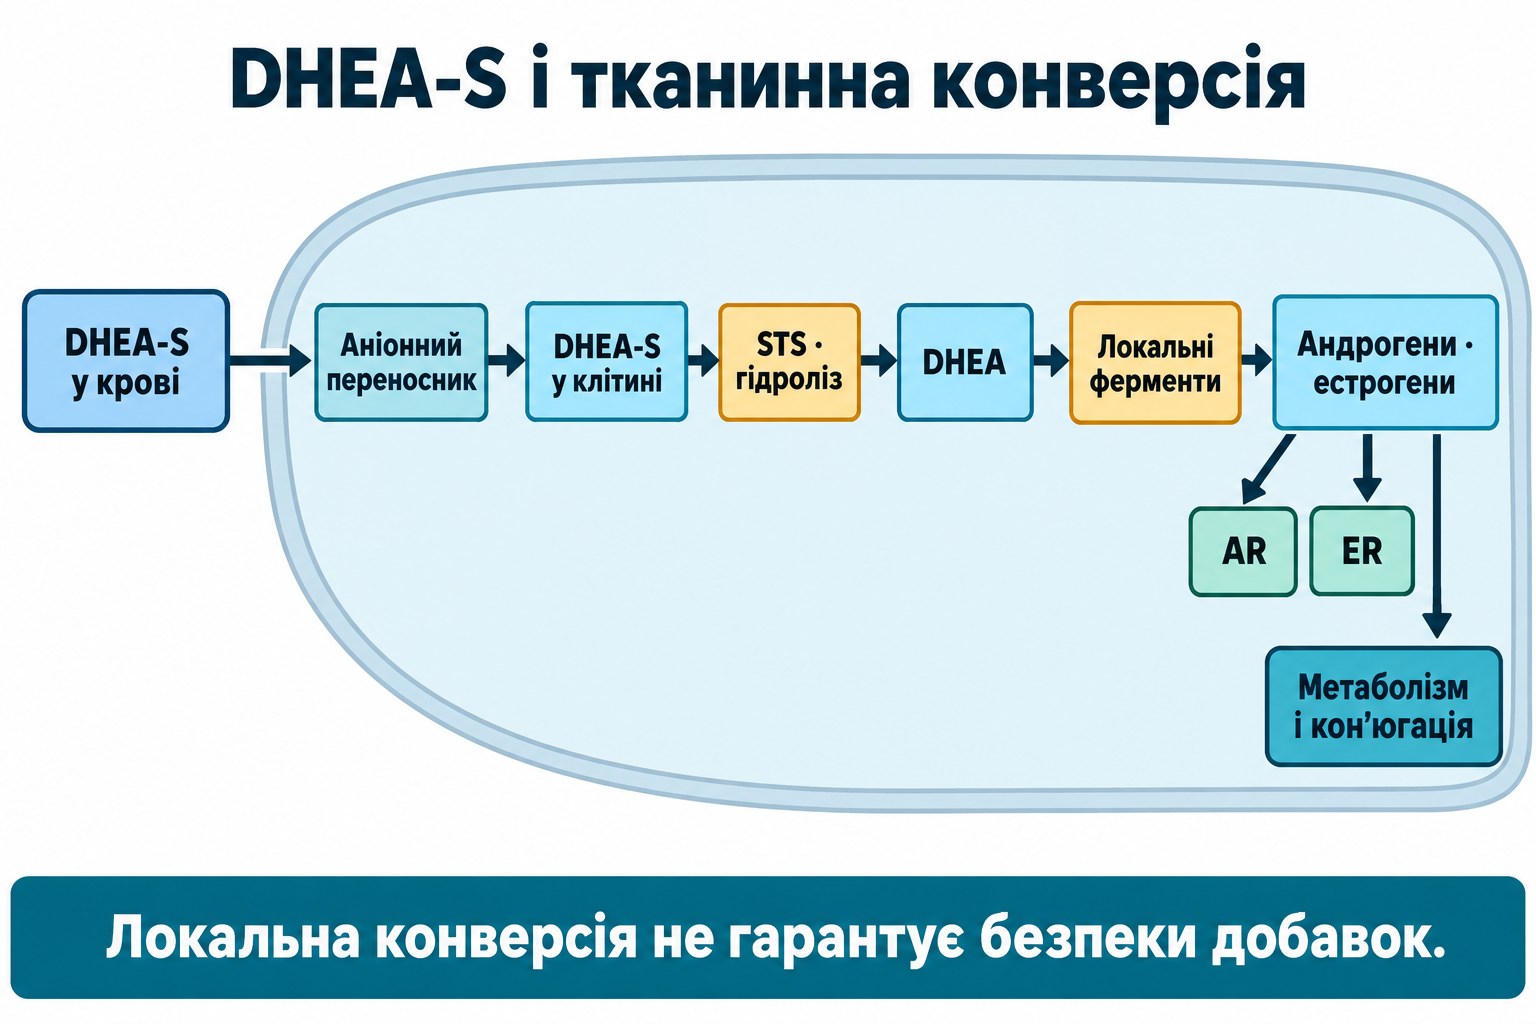
Інтракринологія — утворення та дія активних стероїдів у тканині, що отримала попередник, на відміну від секреції активного продукту віддаленою залозою. DHEA-S надходить через переносник, десульфатується STS і постачає DHEA до тканинної ферментної мережі (Labrie та співавт., 2001).
HSD3B може утворити андростендіон, а відновна 17β-гідроксистероїддегідрогеназна активність — тестостерон. AKR1C3 важлива у низці периферичних тканин; HSD17B3 переважно пов’язана з яєчками й не є однаковим головним ферментом кожної тканини. Інший шлях спочатку відновлює DHEA до андростендіолу, а потім використовує HSD3B. SRD5A1 або SRD5A2 утворюють дигідротестостерон DHT із тестостерону. Ароматаза CYP19A1 переводить відповідні андрогени в естрогени; естрон–естрадіольний обмін залежить від відновних та окисних 17β-HSD. HSD17B1 сприяє естрадіолу у відповідних тканинах, HSD17B2 може окиснювати активні 17β-гідроксистероїди.
Рецепторна дія залежить від транспорту, STS, ферментів, конкуруючих шляхів, рецепторів і інактивації, а не лише від попередника. Після менопаузи периферичне утворення естрогенів особливо важливе, але DHEA-S не є єдиним джерелом: залучені DHEA, андростендіон і залишкова оваріальна продукція андрогенів. У чоловіків яєчка залишаються основним джерелом циркулюючого тестостерону; фіксована «половина всіх андрогенів з наднирникового DHEA» не відтворює цю фізіологію.
Місцева дія супроводжується різним ступенем метаболізму й кон’югації. Відновлення через AKR1C та інші перетворення можуть передувати глюкуронуванню за участю UGT2B7, UGT2B15 і UGT2B17. Андростерон-глюкуронід і 3α-андростандіол-глюкуронід відображають аспекти периферичного андрогенного обміну, не специфічно DHEA-S. Продукти можуть виходити з тканини; введений DHEA здатний підвищувати тестостерон і естрадіол у крові. Інтракринологія не гарантує відсутності системних наслідків.
Кістка, м’яз, жирова тканина й шкіра демонструють відмінності мережі. Статеві сигнали впливають на остеобласти та OPG–RANKL-баланс розвитку остеокластів. М’язова андрогенна дія перетинається з білковим синтезом, але попередник сам не визначає приріст м’язів. Ароматаза стромальних клітин жирової тканини бере участь у периферичних естрогенах; однакову активність не можна приписувати всім адипоцитам. Шкірний обмін впливає на сальні залози та фолікули, пояснюючи акне й гірсутизм поряд зі змінами зволоження. Гормонозалежні пухлини також використовують попередники й місцеві ферменти. Тому перетворення важливе і для фізіології, і для хвороби (Labrie та співавт., 2001; Mueller та співавт., 2015).
Адренопауза — поступове вікове зниження наднирникових андрогенів, а не різкий оваріальний перехід або пояснення всіх вікових скарг. У поздовжньому дослідженні 614 дорослих середнє зниження DHEA-S за п’ять років становило приблизно 2% на рік; DHEA знижувався швидше. Середня швидкість не задає індивідуальної траєкторії й не доводить повернення біологічного віку після відновлення концентрації (Nafziger та співавт., 1998).
Зміни сітчастої зони, ферментної експресії, кофакторів та регуляції можуть сприяти зниженню. Проте універсальні відсотки втрати клітин, фіксована кратність b5 або обов’язковий дефіцит PAPS потребують прямої людської перевірки. Моделі попередників клітин і сигналів гризунів не встановлюють людський механізм регенерації. Потреба ATP для PAPS сама по собі не доводить, що саме мітохондріальний дефіцит ATP спричиняє індивідуальну адренопаузу.
Кортизол і DHEA-S можуть змінюватися по-різному: хоча АКТГ стимулює відповідні зони, ферментна організація відрізняється. Секреція кортизолу, ритм, зв’язування й зворотний зв’язок залежать від віку, стресу й хвороби. Тому «кортизол завжди незмінний» — надмірне узагальнення, а різниця концентрацій не доводить прямої конкуренції DHEA за глюкокортикоїдний рецептор.
Відношення кортизол:DHEA-S потребує явних одиниць і умов забору:
Обидві концентрації молярні, тому відношення безрозмірне. DHEA-S у мкмоль/л потрібно чисельно помножити на 1000 перед зіставленням із кортизолом у нмоль/л. Умовні 300/10000 дають 0,03, 450/1000 — 0,45, різницю у п’ятнадцять разів. Це арифметика, не нормальні молодий і старший профілі та не лікувальний поріг.
Phillips та співавт. (2010) дослідили 4255 чоловіків-ветеранів епохи В’єтнамської війни з ранковими зразками й подальшим спостереженням смертності. Нижчий DHEA-S та вище відношення асоціювалися з низкою смертельних наслідків. Спостереження допускає змішування факторів, гормональні зміни через хворобу та різні причинні шляхи. Воно не доводить меншої смертності від DHEA, не валідовує 0,10 і не встановлює МРТ-ушкодження гіпокампа або втрати теломер як результати цієї роботи. DHEA-S — вимір наднирникового стероїду, не самостійно валідований годинник віку, запас імунітету або функції мітохондрій.
DHEA та DHEA-S впливають на нейронний сигналінг і тому розглядаються як нейроактивні стероїди. Місцевий нервовий синтез досліджувався, проте його внесок у мозку людини порівняно з периферичним постачанням потребує уточнення. Ліпофільний DHEA і аніонний DHEA-S по-різному перетинають бар’єри. Концентрація в мозку тварини або збереження після ендокринної маніпуляції не задає такого самого джерела чи співвідношення мозок:плазма в людини (Baulieu, 1997; Maninger та співавт., 2009).
DHEA-S експериментально може негативно модулювати GABA-A-струми. Менший гальмівний струм не доводить безпечного поліпшення бадьорості чи пам’яті після капсули. NMDA- та sigma-1-пов’язані ефекти залежать від концентрації, препарату й непрямих взаємодій. Загальна структура рецептора не виявляє місце DHEA-S і не доводить високоспорідненого зв’язування з кожною запропонованою субодиницею. (Majewska et al., 1990).
Sigma-1 — внутрішньоклітинний шаперон контактів ендоплазматичного ретикулума й мітохондрій. Взаємодії з BiP та IP3-рецепторами можуть змінювати кальцієвий обмін. IP3-рецептори — канали, не кальцієві насоси. Мітохондріальні, окисні, CREB–BDNF- та антиапоптотичні відповіді створюють гіпотези нейропротекції, а не встановлене запобігання людській ішемії, хворобі Альцгеймера чи депресії рутинним DHEA (Maurice і Su, 2009).
Schmidt та співавт. (2005) дослідили 46 осіб 45–65 років у рандомізованому подвійному сліпому перехресному випробуванні депресії. Шість тижнів DHEA з високою експериментальною дозовою схемою поліпшили оцінки порівняно з плацебо. Це короткий результат відібраної симптомної групи, а не загальне когнітивне омолодження або протокол самолікування. DAWN у старших дорослих не продемонструвало загального поліпшення когнітивної функції чи якості життя. Популяція, тривалість і показник визначають межі висновку. (Kritz-Silverstein et al., 2008).
DHEA може стимулювати ендотеліальні сигнали експериментально. Liu і Dillon (2002) у препаратах аортального ендотелію великої рогатої худоби описали високоспоріднене мембранне зв’язування та Gi2/Gi3-пов’язану активацію eNOS. Робота вийшла у Journal of Biological Chemistry. Вона характеризувала припущений рецепторний механізм, не загальновизнаний клонований ген DHEA-рецептора.
Інші експерименти пов’язують DHEA зі Src, PI3K, Akt і eNOS. Оксид азоту активує розчинну гуанілатциклазу, підвищує cGMP і розслаблює судинний гладкий м’яз. Фосфорильовані позиції залежать від конкретного шляху та номенклатури білка. Це обґрунтовує дослідження, але не запобігання інфаркту, тромбозу чи серцево-судинній смерті. Різниця між ендотеліальним механізмом і клінічним ризиком важлива також для ApoB та кількості атерогенних частинок.
Глюкокортикоїди та наднирникові андроген-пов’язані стероїди впливають на імунні клітини різними шляхами. Глюкокортикоїдний рецептор регулює запальну транскрипцію, виживання лімфоцитів і тканинні відповіді залежно від дози, часу та стану. Експериментальні зміни цитокінів, апоптозу чи обміну кортизолу не роблять DHEA універсальним конкурентним антагоністом і не доводять збережену продукцію тимуса.
Клітинні й тваринні моделі описують NF-κB, цитокіни та лімфоцитарні відповіді. Потрібні стимул, тип клітини й концентрація: зниження в одному експерименті не означає фіксоване зменшення IL-6, TNF та IL-1 на 40–60% у людей. Малі людські роботи показують неоднорідність (Hazeldine та співавт., 2010).
| Робота | Дизайн і показники | Підтриманий висновок | Не встановлено |
|---|---|---|---|
| Casson та співавт., 1993 | 11 жінок після менопаузи; коротке перехресне порівняння з плацебо | Зміни субпопуляцій, мітогенних відповідей та NK-цитотоксичності | Менше інфекцій, краща вакцинація або молодий імунітет |
| Khorram та співавт., 1997 | Дев’ять старших чоловіків; два тижні плацебо, потім двадцять тижнів DHEA | Зміни стимульованих цитокінів і NK-показників | Паралельне рандомізоване випробування чи менше інфекцій/раку |
| Механістичні дослідження | Клітини й тварини | Потенційні стероїд-чутливі шляхи | Валідована доза та універсальний протизапальний ефект |
Casson спостерігали більшу NK-цитотоксичність поряд зі зменшенням представленості CD4 й змінами мітогенних відповідей. Опис лише як поліпшення T-імунітету вводить в оману. Khorram показали зростання стимульованих IL-2 та IL-6, не універсальне пригнічення IL-6; T-клітинні кількість і субпопуляції не просто повернулися до молодого стану. Число NK, цитотоксичність і секреція цитокінів — різні результати, не клінічна частота інфекцій.
Імуносенесценція охоплює зміни наївних і пам’яті популяцій, термінальну диференціацію та різну функцію. CD45RA не визначає наївну клітину самостійно: термінально диференційована пам’ять може повторно його експресувати. Втрата CD28 та CD57 характеризують певні популяції, але сенесценція, виснаження й секреторний фенотип старіння не є синонімами для всіх клітин. Ці джерела не встановлюють відновлення теломерази, регенерації тимуса, усіх фенотипів або вакцинного захисту за допомогою DHEA.
Анаболічні можливості стимулювали дослідження саркопенії. Андрогенні та IGF-пов’язані шляхи можуть активувати Akt, змінювати TSC–Rheb-регуляцію mTORC1 та впливати на p70S6-кіназу і 4E-BP1-залежний синтез білка. Міостатин і протеоліз додають регуляцію. Це клітинні механізми, не обіцянка фіксованого приросту м’язів після певної дози.
Villareal і Holloszy (2006) вивчали десятимісячний DHEA з силовими тренуваннями в останні чотири місяці. Взаємодію з навантаженням треба відрізняти від препарату без тренувань. Nair та співавт. (2006), у дворічному дослідженні старших людей з низьким DHEA-S, не виявили суттєвого DHEA-залежного поліпшення сили, аеробної працездатності, складу тіла, інсулінової чутливості чи якості життя. Відмінності учасників, вправ і методів не дозволяють перетворити один позитивний результат на загальний анаболічний протокол.
Експериментальні метаболічні шляхи включають AMPK, TBC1D4-регуляцію переміщення GLUT4, експресію генів глюконеогенезу та окиснення жирів за участю PPARα, CPT1 і пероксисомальних ферментів. Фосфорилювання регулятора Rab-GTPase точніше за пояснення «AMPK пригнічує фермент і глюкоза зникає». Треба розділяти тваринні й людські дані. Обговорення AMPK у дослідженнях берберину ілюструє перехід від механізму до результату, не доводячи однакові ефекти різних сполук.
Apostolova та співавт. (2005) показали менше посилення глюкокортикоїдної дії в експериментальному жирі, пов’язане з експресією 11β-HSD1, H6PD і C/EBPα. Це не клінічно встановлене пряме неконкурентне інгібування у людини. Villareal і Holloszy (2004) у малому шестимісячному дослідженні виявили менший абдомінальний жир та кращий показник інсулінової дії. Пізніше негативне дворічне дослідження не дозволяє обіцяти універсальне зниження HOMA-IR чи лікування діабету.
Костні ефекти можуть залежати від статевих стероїдів, остеобластів, остеокластів і ділянки скелета. Runx2, колаген, остеокальцин та OPG–RANKL важливі, але їхні зміни не доводять запобігання переломам. Jankowski та співавт. (2006) рандомізували 140 старших учасників на 50 мг/добу DHEA чи плацебо на дванадцять місяців. Було зростання поперекової мінеральної щільності у жінок і невеликі, залежні від аналізу зміни стегна. Це не дворічна робота й не доказ універсального приросту безжирової маси; правильний DOI 10.1210/jc.2005-2484. Nair теж показали невеликі зміни окремих кісткових ділянок без загального функціонального поліпшення.
Пероральний мікронізований DHEA, місцеві препарати й інші шляхи дають різну експозицію. Всмоктування, сульфатування першого проходження та конверсія у статеві гормони залежать від засобу й людини. SULT2A1 важлива для DHEA; естрогенова SULT1E1 не є її заміною. Пік однієї форми не описує всі продукти й не доводить когнітивного порятунку сублінгвальним прийманням.
Поширені 50 мг/добу походять із конкретних протоколів, не загальної рекомендації проти старіння. Arlt та співавт. (1998) дослідили дев’ять молодих жінок після дексаметазонового пригнічення: 100 мг давали надфізіологічну експозицію. Подальше перехресне дослідження недостатності включило 24 жінки й чотиримісячні періоди. Поліпшилися деякі оцінки самопочуття та сексуальності, водночас зменшився HDL-холестерин. Ця популяція відрізняється від здорових старших людей (Arlt та співавт., 1999).
| Клінічне питання | Межа даних |
|---|---|
| Чи можна підвищити DHEA-S? | Так; біохімічне відновлення не доводить омолодження |
| Чи рік доводить довготривалу безпеку? | Ні; рак і рідкісні наслідки потребують триваліших і більших випробувань |
| Чи є кісткові ефекти? | Невеликі за окремими ділянками й статтю; запобігання переломам не встановлено |
| Чи відновлюється імунітет? | Малі лабораторні роботи не доводять менше інфекцій або кращий вакцинний захист |
| Чи низький віковий DHEA-S є показанням? | Універсальної границі й молодої цілі за клінічними наслідками не валідовано |
| Чи недостатність тотожна адренопаузі? | Ні; визначена ендокринна хвороба й звичайне старіння різні |
DHEAge призначило 50 мг/добу або плацебо 280 особам 60–79 років на рік. Виявлено окремі зміни кістки, шкіри й лібідо, особливо у жіночих підгрупах, без шкідливого накопичення вимірюваних стероїдів упродовж року (Baulieu та співавт., 2000). Це не метааналіз, не пожиттєва онкологічна безпека й не загальний захист від старіння. При широких обіцянках особливо важливі дворічні результати Nair.
DHEA підвищує андрогенну та естрогенну експозицію. Акне, гірсутизм, андрогенові зміни волосся й ліпідів є суттєвими небажаними ефектами. Гормонозалежні хвороби потребують оцінки: внутрішньоклітинна конверсія не захищає молочну залозу, ендометрій чи простату від стероїдів. Відсутність значного PSA-зсуву в малій короткій роботі не доводить безпеки щодо раку простати. Гіпотеза балансу статевих сигналів також не підтверджує профілактики раку.
Endocrine Society у 2014 році рекомендувало уникати рутинного DHEA жінкам з низькими андрогенами через недостатню користь і відсутність довготривалих ризикових даних. Настанова 2016 року з первинної наднирникової недостатності допускає обмежену пробу для окремих жінок зі стійким зниженням лібідо, депресивними симптомами чи енергією попри оптимізовані глюкокортикоїди й мінералокортикоїди. Це конкретна хвороба з переоцінкою та припиненням без користі, не загальна схема довголіття.
Аналіз інтерпретують за метод-залежним віково-статевим референсом, клінічним питанням, ліками й хворобою. Імуноаналіз і LC-MS/MS можуть відрізнятися. Втома, депресивність, низьке лібідо, когнітивні скарги й втрата м’язів неспецифічні; DHEA-S сам не діагностує недостатності. Кортизол, АКТГ та інші тести обирають за клінікою, не як універсальну панель проти старіння.
Перерахунок одиниць:
Один мкмоль/л — приблизно 36,849 мкг/дл. Тому 4,5–7 мкмоль/л — близько 166–258 мкг/дл, а 7–11 — 258–405 мкг/дл. Це арифметика, не лікувальні цілі. Верхня третина молодого референсу для всіх старших не валідована за клінічними наслідками. Нижня третина вікового інтервалу чи відношення понад 0,10 не визначають універсального початку терапії.
В оригіналі запропоновано вітамін C, пантотенат, фосфатидилсерин, ашваганду, ацетил-L-карнітин і коензим Q10. Кожний має власні біологічні чи експериментальні підстави, але вони не доводять відновлення людської сітчастої зони, b5, PAPS чи імунних результатів. Вітамін C не є обов’язковим електронним донором CYP17A1–POR. Пантотенат у коензимі A не є субстратом PAPS. Зміна стресового показника від фосфатидилсерину чи ашваганди не коригує доведено адренопаузу. Загальна мітохондріальна роль ацетил-L-карнітину та CoQ10 не доводить усунення визначеного наднирникового ATP-дефекту. Дозовий перелік комбінації не можна подавати як доказовий ендокринний протокол.
За визначеної клінічної причини DHEA оцінюють симптоми, стероїдну експозицію, побічні ефекти та основну хворобу. Онкологічний скринінг відповідає настановам й індивідуальному ризику, а не вигаданому обов’язковому графіку фракцій PSA, візуалізації чи піврічних оглядів усіх користувачів добавок. Моніторинг концентрації корисний разом з обґрунтованим лікувальним питанням та оцінкою користі.
Людські андрогени, місцеве сульфатування й десульфатування, нейроактивність та імунні відповіді залишаються важливими напрямами. Селективна регуляція SULT2A1, STS чи CYP17A1–b5 — механістична можливість, не доступний валідований спосіб повернути молодий наднирник. Дослідження STS-інгібіторів при гормонозалежних хворобах також показує, що доступність попередника не підкоряється правилу «більше — краще».
DHEA-S поєднує розвиток наднирників, електронний перенос, активацію сульфату, транспорт і місцевий статевий обмін. Його траєкторії та асоціації заслуговують дослідження. Наявні дані підтверджують біологічну важливість, але не широкі обіцянки імунного омолодження, довголіття, запобігання деменції або стандартизованого приймання проти старіння.
Ні. Враховують вік, стать, метод, ліки й хворобу; потрібна клінічна оцінка.
Ні. DHEA може підвищувати циркулюючі статеві стероїди, а гормонозалежні тканини використовують попередники.
Ні. Кількість, стимульовані цитокіни та цитотоксичність відрізняються від клінічних наслідків.
Ні. Дози досліджень і окремі випадки недостатності не валідовують рутинного лікування старіння.
Ні. Когорта ветеранів показала асоціацію, не ефект терапії.