
ApoB і LDL-C: кількість частинок та атеросклеротичний ризик
Біологія ApoB-100/48, дискордантність, sdLDL, утримування в артерії, лабораторні методи й лікування. Механізми, клінічні результати та межі доказів добавок.
Біологія ApoB-100/48, дискордантність, sdLDL, утримування в артерії, лабораторні методи й лікування. Механізми, клінічні результати та межі доказів добавок.
Холестерин ЛПНЩ і аполіпопротеїн B описують різні властивості транспорту ліпідів. LDL-C визначає холестерин, віднесений до фракції ЛПНЩ, а ApoB — масову концентрацію структурного білка, який міститься в одній копії на відповідній частинці. Однаковий LDL-C може супроводжуватися різною кількістю частинок, особливо за гіпертригліцеридемії, діабету, інсулінорезистентності або лікування. Дискордантність доповнює оцінку, але не скасовує користі зниження LDL-C і не перетворює один аналіз на повний опис ризику.
Це наративний науковий огляд молекулярної біології, лабораторних методів, спостережних досліджень і випробувань ліків. Клітинний механізм, зміна маркера й запобігання інфаркту — різні рівні доказів.
Експерименти Анічкова та Халатова, дослідження Гофмана, Framingham і відкриття LDLR Брауном та Голдштейном сформували взаємодоповнювальні уявлення. Генетичні, епідеміологічні й рандомізовані дані підтримують причинну роль тривалого впливу атерогенних ліпопротеїнів. 4S, WOSCOPS, LIPID, HPS і PROVE-IT підтвердили зменшення подій зі статинами. Залишковий ризик не означає, що 60–70% усіх лікованих обов’язково мають повторну подію за п’ять років: частка відносного ризику, яка залишається, не дорівнює частці пацієнтів із подією.
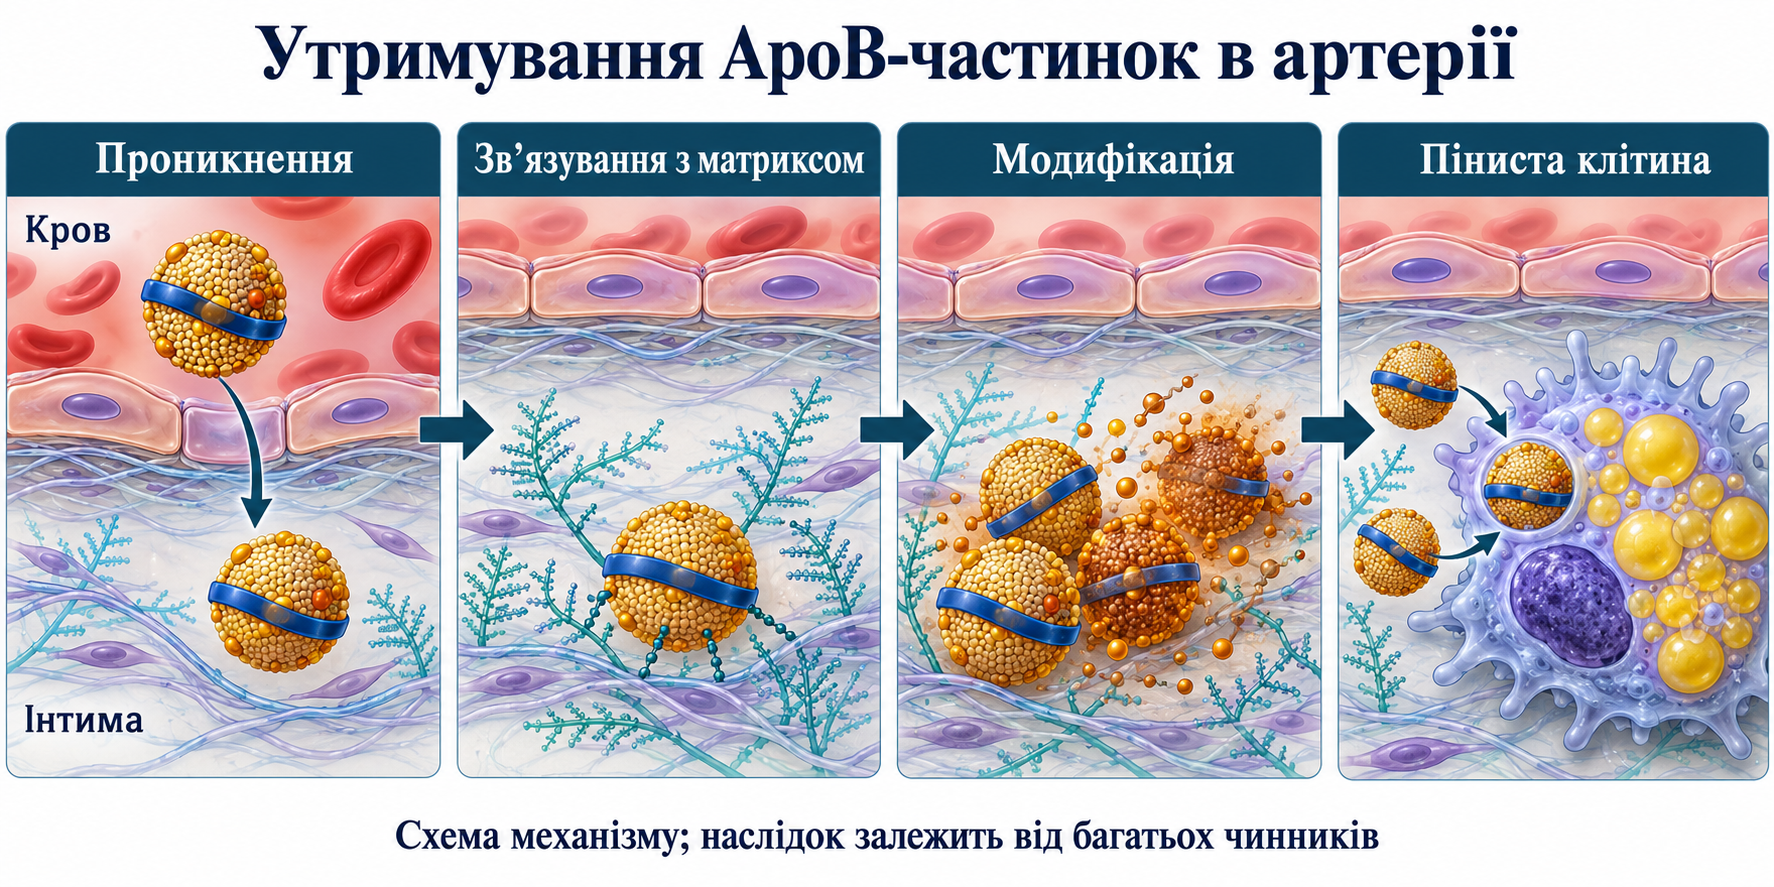
Ліпопротеїн має гідрофобне ядро тригліцеридів та ефірів холестерину, оточене моношаром фосфоліпідів, вільного холестерину й білків. Це не везикула з бішаровою мембраною. Кишкові хіломікрони переносять харчові ліпіди; печінкові VLDL після ліполізу утворюють IDL і LDL. Система забезпечує енергетичний обмін, мембрани та стероїдогенез. Тривале утримування частинок з ApoB в інтимі сприяє атеросклерозу.
Кількість частинок, тривалість впливу, проникнення й утримування пояснюють процес концептуально. Їхній добуток не є валідованою формулою особистого ризику: важливі також вік, тиск, куріння, діабет, запалення, генетика та стан бляшки.
APOB розташований у 2p24.1 і містить 29 екзонів; особливо великий екзон 26 кодує значну частину білка. Основні місця синтезу — печінка й кишківник. HNF4α та інші фактори впливають на експресію, проте доступність ліпідів, трансляція й деградація визначають кількість секретованого білка.
В ентероцитах APOBEC1 перетворює цитидин на уридин у мРНК. У традиційній нумерації C6666→U змінює CAA на UAA, утворюючи стоп замість Gln2153. ApoB-48 містить перші 2152 залишки зрілого білка, приблизно 48% його довжини, а не точно половину маси. A1CF і RBM47 беруть участь у розпізнаванні РНК та організації комплексу; вони не є повністю взаємозамінними обов’язковими кофакторами в усіх тканинах. Powell і Chen (1987), Teng (1993) встановили механізм. Печінка дорослої людини синтезує повнорозмірний ApoB-100 із 4536 амінокислот зрілої послідовності; нумерація попередника включає сигнальний пептид.
ApoB-48 є структурою хіломікронів і ремнантів. Він не має C-кінцевої області ApoB-100, залученої до LDLR, однак ремнанти видаляються через ApoE за участі LDLR і LRP1. Відсутність ApoB-100 не виключає рецепторний кліренс. Кінетика залежить від розміру, харчування й обміну; швидке нормальне видалення не робить накопичені ремнанти неатерогенними. Великі хіломікрони та менші залишкові частинки мають різну здатність проникати в артерію.
Транслокація ApoB-100 через Sec61 поєднана з ліпідуванням MTP — гетеродимером MTTP і протеїн-дисульфід-ізомерази. Перенесення нейтральних ліпідів і фосфоліпідів забезпечує складання в ендоплазматичному ретикулумі. Недостатньо ліпідований ApoB може спрямовуватися до ERAD та протеасоми; діють і інші шляхи контролю якості. Секреція не визначається лише кількістю мРНК.
Історична модель Segrest (2001) описувала п’ять амфіпатичних областей:
Глобулярний N-кінець бере участь у складанні, β-області контактують із ліпідною поверхнею, інші сегменти пристосовуються до розмірів. Приблизні межі моделі не слід видавати за незалежні домени, доведені атомарно. У нумерації зрілого білка сайт B близько 3359–3369 вивчали як область зв’язування протеогліканів; Arg3500Gln пов’язаний із сімейним дефектом ApoB, Cys4326 — з ковалентним зв’язком apo(a) у Lp(a). Необхідно зазначати прийняту нумерацію.
Berndsen і Cassidy (2025) показали інтегративну структуру з глобулярним N-кінцем і протяжним β-поясом навколо LDL. У PDB 9EA7 зазначено 9 Å. Reimund та співавтори (2025) дослідили комплекс ApoB-100–LDLR; 9BDT має 5,4 Å. Тому спільні 3,4 Å і рік 2024 у вихідному тексті виправлено. Зв’язування включає кілька інтерфейсів і розподілені основні ділянки, а не лише три залишки сайту B та LA4/LA5. Локальне уточнення й інтегративне моделювання не надають однакової точності всім залишкам.
VLDL, IDL, LDL і Lp(a) зазвичай мають одну молекулу ApoB-100, кишкові частинки — одну ApoB-48. Це принцип біогенезу, а не висновок лише з розміру LDL: VLDL значно більші. Звичайний аналіз визначає масу білка як практичний показник загальної кількості частинок. Він не рахує кожну окремо, не визначає розмір, походження, LDL-P чи концентрацію Lp(a).
Якщо припустити молярну масу ApoB-100 550000 г/моль і незначний внесок ApoB-48:
c_m — г/л, M — г/моль, n — моль/л, N_A≈6,022×10²³ моль⁻¹, N_V — частинки/л. Для 100 мг/дл=1 г/л:
Початкове 10¹⁵ частинок/мл завищене в тисячу разів. Навчальний розрахунок приблизний: значення залежать від молярної маси, глікозилювання, ApoB-48 та аналізатора. Це не нове лабораторне калібрування.
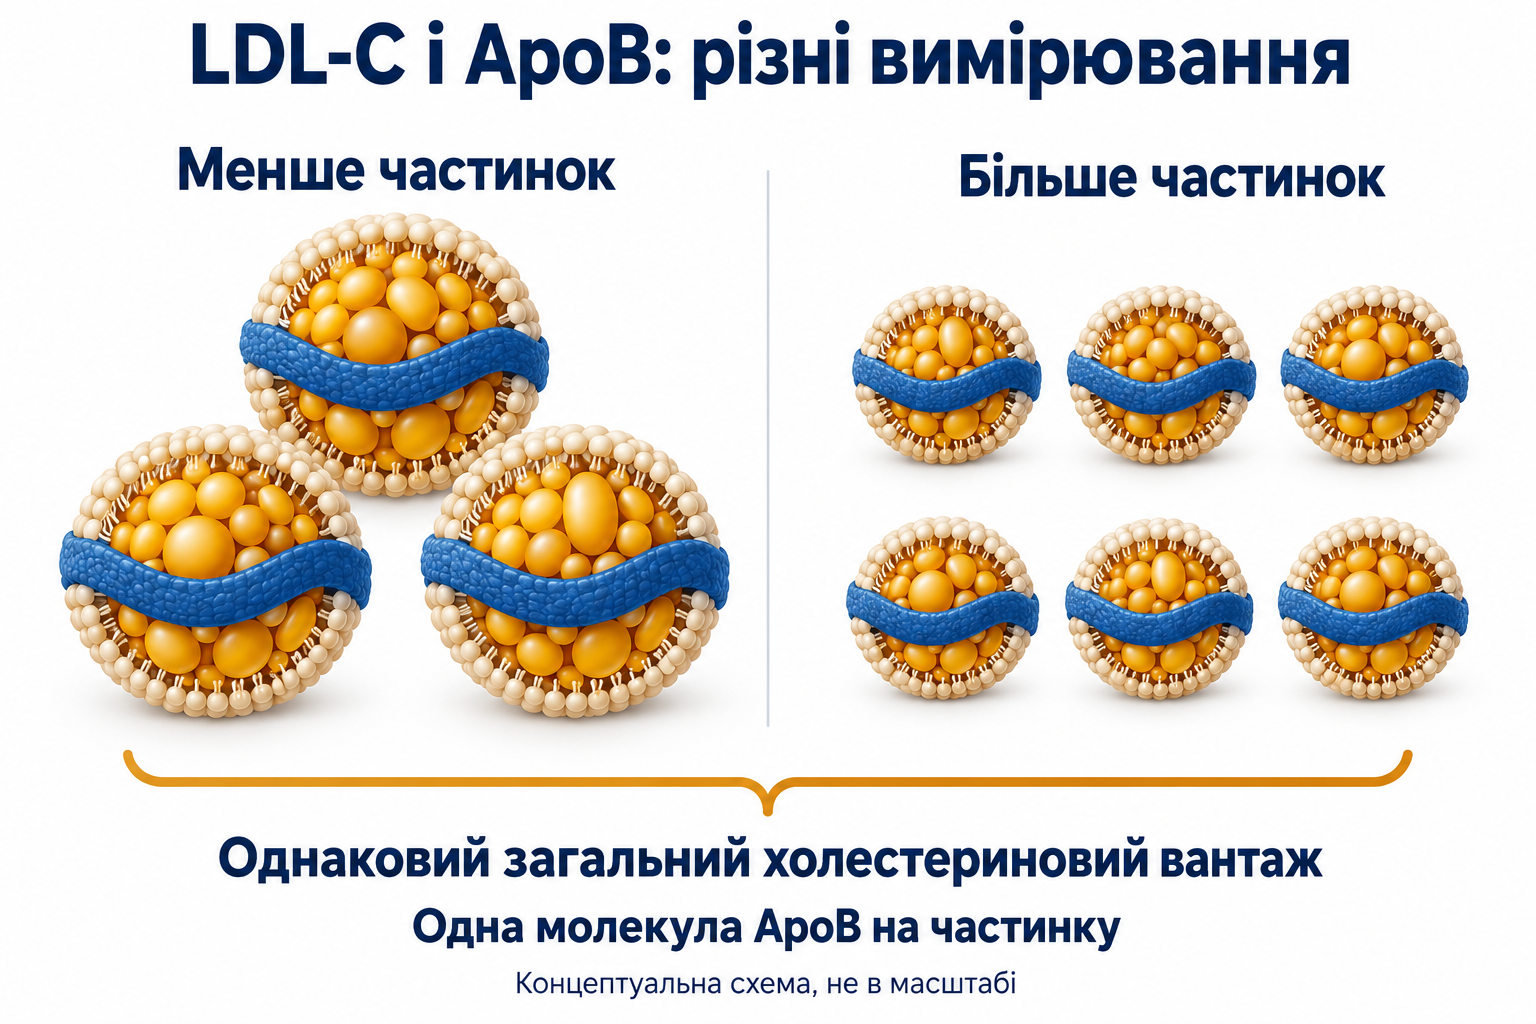
Холестериновий вміст змінюється з розміром і ремоделюванням. Фіксовані 500–2700 молекул ефірів та обов’язкова різниця кількості у 2–2,5 раза не універсальні. Метод, склад, вільний та естерифікований холестерин і інші класи в загальному ApoB мають значення.
Friedewald (1972) використовує припущення щодо TG і холестерину VLDL:
TC — загальний холестерин, TG — тригліцериди. Класична формула непридатна за TG≥400 мг/дл, близько 4,5 ммоль/л. За низького LDL-C та підвищених TG вона часто занижує LDL-C, але не на універсальні 15–40%. Martin–Hopkins (2013) обирає адаптивний дільник за TG та non-HDL-C:
Запис стосується мг/дл і відповідної таблиці. Той самий дільник не переноситься механічно на ммоль/л. Нові або розширені формули потребують перевірки у відповідному діапазоні TG. Прямі гомогенні методи з селективними реагентами та ферментами можуть давати методозалежні відхилення за складних дисліпідемій. Жоден LDL-C не визначає кількість частинок.
Non-HDL-C=TC−HDL-C включає холестерин LDL, ремнантів і Lp(a), доступний зі звичайної ліпідограми й корисний за високих TG. Проте він також вимірює вантаж і може дискордувати з ApoB. «Нормальний» популяційний інтервал не дорівнює індивідуальній цілі.
Електрофорез, ультрацентрифугування, іонна рухливість і ЯМР поділяють LDL за різними ознаками; пороги не взаємозамінні. Pattern A — переважно більші, Pattern B — менші частинки. Електрофоретична межа близько 25,5 нм не застосовується автоматично до ЯМР.
| Ознака | Більші LDL | Малі щільні LDL |
|---|---|---|
| Типові класи | LDL-I/II | LDL-III/IV |
| Ілюстративна щільність | 1,019–1,034 г/мл | 1,034–1,063 г/мл |
| Діаметр і вантаж | Зазвичай більші | Зазвичай менші; методозалежні |
| Контекст | Не виключає високого ризику | Часто високі TG, низький HDL-C, інсулінорезистентність |
| Оцінка | Високий ApoB важливий | Не замінює ApoB та загальний ризик |
Austin і Krauss пов’язували sdLDL із коронарними подіями. Незмінне незалежне збільшення ризику у 3–5 разів після врахування ApoB та інших факторів не встановлено. Великі частинки не стають безпечними; потреба в рутинному аналізі субфракцій для всіх також не випливає з цих даних.
Ремоделювання змінює конформацію ApoB, спорідненість до рецепторів, циркуляцію, окиснення й взаємодію з протеогліканами. Кривина κ=1/R зростає зі зменшенням радіуса, але геометрія не доводить конкретної деформації сайту B у кожного. Універсальні Kd, період напіввиведення 4,5–5 діб і трансцитоз у 2,5–3 рази швидше не є підтвердженими клінічними константами.
У формулі Стокса–Ейнштейна D — дифузія, k_B — стала Больцмана, T — абсолютна температура, η — динамічна в’язкість, r_H — гідродинамічний радіус. За інших рівних умов менша частинка дифундує швидше. Рецепторний транспорт через SR-B1 і ALK1 не описується тільки цією формулою. Фіксовані числа молекул токоферолу та трикратна зміна лаг-фази окиснення також не універсальні. Гіперглікемія сприяє глікуванню ApoB; глікоокиснення й AGE пояснюють пов’язану хімію, не визначаючи ризик одним механізмом.
Послаблення антиліполітичного ефекту інсуліну збільшує потік неестерифікованих жирних кислот через ATGL і HSL. Вісцеральний портальний потік — лише частина; харчові жири, ліпогенез de novo, окиснення та експорт визначають печінковий баланс. SREBP-1c і ChREBP реагують на інсулін та вуглеводні сигнали, а не тільки на притік жирних кислот.
Надлишок TG сприяє секреції VLDL1. CETP переносить нейтральні ліпіди, збагачуючи LDL/HDL тригліцеридами та VLDL ефірами. Його гідрофобна порожнина не доводить завжди еквімолярний обмін або єдиний безперервний міст. LIPC гідролізує TG і фосфоліпіди, сприяючи меншим LDL. LIPG переважно фосфоліпаза, особливо важлива для HDL, а не головна TG-ліпаза утворення sdLDL. Ремоделювання HDL може збільшувати дисоціацію й катаболізм ApoA-I. Високі TG, низький HDL-C і надлишок ApoB часто поєднуються, проте підвищення HDL-C саме по собі не замінює зниження атерогенного навантаження.
Медіани, процентилі, регресійні залишки та лікувальні пороги визначають дискордантність по-різному. Матриця є порівнянням, а не універсальною класифікацією абсолютного ризику:
| Співвідношення | Значення |
|---|---|
| Обидва нижчі | Менше виміряне навантаження; загальний ризик залишається |
| Обидва вищі | Високе навантаження за обома показниками |
| ApoB вищий, LDL-C нижчий | Більше частинок, ніж очікують за холестерином |
| ApoB нижчий, LDL-C вищий | Менше частинок, ніж очікують; високий LDL-C не нешкідливий |
Роботи Sniderman, аналіз Marston (2022) UK Biobank і лікованих популяцій, Johannesen (2021) Copenhagen та Framingham підтримують додаткову інформацію ApoB. Спостережні моделі не доводять ризику виключно через ApoB або рівного ризику всіх квадрантів. N=389529 і 90197 та точні підгрупові HR вихідного тексту не збережено як перевірені результати. PMID 33736829 стосується іншої статті; DOI Johannesen залишено.
Johannesen (2021): 13015 учасників на статинах, медіана спостереження 8 років; високий ApoB/низький LDL-C за медіанами: HR інфаркту 1,49 (95% ДІ 1,15–1,92). Спостережний зв’язок; медіани не лікувальні цілі.
INTERHEART — міжнародне дослідження випадок–контроль, а не проспективна когорта; воно оцінювало, зокрема, ApoB/ApoA-I. Популяційна атрибутивна частка близько 49% не є особистою ймовірністю інфаркту чи ефектом лікування. Pencina (2019) вивчав траєкторії non-HDL-C у Framingham, а не рандомізовано порівнював цілі ApoB.
Гіпотеза response-to-retention Williams і Tabas пов’язує початок процесу з утримуванням ліпопротеїнів у матриксі інтими. Основні ділянки ApoB взаємодіють із сульфатами та карбоксильними групами глікозаміногліканів. Біглікан, версикан, декорин і перлекан мають різну будову та функції; матрикс і гемодинаміка впливають на затримку. Borén (1998) визначив важливу ділянку зв’язування. Зменшення зв’язування й атеросклерозу у тварин не доводить повного запобігання хворобі в людей. У цьому експерименті заміна основного кластера порушувала обидві функції; K3363E зберігала рецепторне зв’язування за порушеної взаємодії з протеогліканами, R3500Q показувала протилежне. Це не доказ повної відсутності атеросклерозу в людини.
Секреторна кисла сфінгомієліназа утворює церамід та сприяє агрегації LDL. Фосфоліпази A₂ утворюють лізофосфоліпіди й жирні кислоти; окиснення — MDA та 4-HNE, що модифікують білки. MPO утворює HOCl з H₂O₂ і хлоридом. Пероксинітрит переважно виникає з NO та супероксиду, а не просто як обов’язковий продукт MPO за наявності NO.
Макрофагальні CD36 та SR-A1 і LOX-1 у відповідних клітинах розпізнають модифіковані ліпопротеїни. Їхня регуляція відрізняється від пригнічення LDLR холестерином, але не є повністю відсутньою. Захоплення агрегатів, макропіноцитоз, естерифікація SOAT1/ACAT1 і відтік холестерину формують баланс пінистих клітин. Ліпіди також накопичують клітини гладком’язового походження.
Кристали холестерину й ушкодження лізосом можуть активувати NLRP3, ASC, каспазу-1 і дозрівання IL-1β/IL-18. Запалення, загибель, недостатній ефероцитоз і металопротеїнази сприяють некротичному ядру та тоншій покришці. Колагенази MMP-1/13 і желатинази MMP-2/9 мають різні субстрати. Історична морфологічна межа 65 мкм не є індивідуальним лабораторним прогнозом. Розрив або ерозія може викликати тромбоз, але не обов’язково трансмуральний інфаркт у кожного.
ESC/EAS залишає LDL-C основною ціллю; ApoB і non-HDL-C доповнюють оцінку за діабету, ожиріння, високих TG чи дуже низького LDL-C. ApoB не замінює окремого Lp(a).
| ESC/EAS 2019 | LDL-C | Вторинна non-HDL-C | Вторинна ApoB |
|---|---|---|---|
| Дуже високий ризик | <55 мг/дл і зниження ≥50% | <85 мг/дл | <65 мг/дл |
| Високий | <70 мг/дл і зниження ≥50% | <100 мг/дл | <80 мг/дл |
| Помірний | <100 мг/дл | <130 мг/дл | <100 мг/дл |
Після повторної судинної події протягом двох років на максимально переносимій терапії можуть розглядати LDL-C<40 мг/дл. Це не універсальна «екстремальна» категорія з обов’язковим ApoB<55. Вік сам не визначає помірний ризик. Оновлення 2025 зберегло LDL-C-цілі й додало нові лікувальні дані; таблиця ApoB прив’язана до 2019. AHA/ACC і NLA використовують власні підходи, а поріг посилення лікування не завжди є ціллю.
Статини пригнічують HMG-CoA-редуктазу й підвищують LDLR через зменшення печінкового холестерину. LDL-C може знижуватися пропорційно більше за ApoB, але не з незмінним розривом 10–15% і не тільки через переважне видалення великих частинок. Езетиміб обмежує всмоктування через NPC1L1; IMPROVE-IT підтвердив користь додавання після гострого коронарного синдрому.
Еволокумаб і алірокумаб запобігають PCSK9-залежній деградації LDLR; FOURIER і ODYSSEY OUTCOMES довели менше подій у відповідних популяціях. Інклісіран — GalNAc-кон’югована siRNA, яка зменшує печінковий синтез PCSK9 через RISC. Зниження LDL-C не встановлює автоматично однакову клінічну користь усіх препаратів. Помірні зміни Lp(a) на антитілах не пояснюються лише звичайним LDLR-кліренсом.
Бемпедоєва кислота активується переважно печінковою ACSVL1 та пригнічує ATP-цитратліазу. Незначна активація в м’язах не означає абсолютної безпеки. CLEAR Outcomes: 13970 учасників, первинний результат 11,7% проти 13,3%, HR 0,87; абсолютна різниця 1,6 процентного пункту. HR 0,77 для інфаркту — окремий результат. Враховують сечову кислоту, подагру та жовчнокам’яну хворобу. Призначення залежить від діагнозу й переносимості.
В’язкі волокна псиліуму та β-глюкани впливають на в’язкість, абсорбцію й обмін жовчних кислот. Їхні втрати можуть збільшити потребу печінки в холестерині через CYP7A1, FXR/FGF19 та SREBP2–LDLR. Волокна не є доведеними прямими інгібіторами ASBT; екскреція у 2,5–3,5 раза й однакова відповідь ApoB не універсальні. Кількість, молекулярна маса, обробка та раціон змінюють ефект. Поліпшення LDL-C не доводить запобігання інфаркту конкретною добавкою.
Фітостероли й станоли обмежують абсорбцію через міцелярну конкуренцію та NPC1L1/ABCG5/8. Часто досліджували близько 2 г/добу, але це не універсальна доза та не доказ меншої кількості подій. Ситостеролемія й довгострокові результати потребують уваги. Не встановлено повного усунення компенсаторної абсорбції на статинах.
Kong (2004) і Cameron (2008) досліджували берберин, стабільність мРНК LDLR і PCSK9, включно з клітинними моделями. AMPK, ERK і HNF1α підтримують гіпотези, а не еквівалентність статинам. Дані дигідроберберину обмежені; п’ятиразова абсорбція й зниження ApoB на 12–18% не універсальні. Берберин і дигідроберберин розглядаються з розмежуванням моделей та клініки. Якість, взаємодії й переносимість важливі; механізми не створюють готового протоколу.
Ікосапент етил — рецептурний очищений ефір EPA. REDUCE-IT вивчав 4 г/добу зі статинами у високоризикових людей з TG 135–499 і LDL-C 41–100 мг/дл. За медіану 4,9 року первинний результат 17,2% проти 22,0%, HR 0,75: відносне зниження 25%, абсолютна різниця 4,8 процентного пункту. Частіше госпіталізували з фібриляцією/тріпотінням передсердь, оцінювали серйозні кровотечі. Це не доводить користі будь-якого риб’ячого жиру чи зникнення sdLDL. Ефекти на TG, окиснення, ліпогенез і запалення не встановлюють обов’язкової блокади DGAT/CETP або переходу кожного в Pattern A.
Енергетичний баланс, заміна насичених жирів ненасиченими, волокна, активність і припинення куріння є частинами загального управління ризиком. Надлишок солодких напоїв і фруктози може посилювати ліпогенез, проте не вся фруктоза безмежно перетворюється на жир. Зниження VLDL на 30–35% за місяць не можна обіцяти всім. Часові вікна харчування й CLOCK/BMAL1/PER досліджують; 16/8 не є обов’язковим доведеним способом нормалізувати ApoB або лікувати стеатоз через TFEB.
Починають із ризику та TC, HDL-C, TG, LDL-C із методом і non-HDL-C. ApoB допомагає, коли холестериновий вантаж може приховувати кількість частинок. Перевіряють одиниці, вторинні причини, ліки та умови забору; несподівані розбіжності іноді потребують повторення. Високий ApoB з цільовим LDL-C обговорюють із лікарем за ризиком, переносимістю та доказами. Це не автоматичний діагноз sdLDL чи вимога EPA–берберин–псиліум. Досягнення цілі зменшує навантаження, не усуваючи ризику; строки контролю залежать від лікування й стану, а не завжди становлять рік.
Використано повний вихідний матеріал з адресною перевіркою одиниць, структур і вибраних первинних публікацій 8 жовтня 2026 року. Доступні RCSB, абстракт REDUCE-IT, CLEAR Outcomes і офіційна інформація ESC 2025. Частина DOI й пошуків не дала придатних результатів; це зазначено в журналі. Усі бібліографічні записи не пройшли вичерпної незалежної перевірки. Непідтверджені точні коефіцієнти й лікувальні обіцянки не подані як факти. Систематичного пошуку, власної GRADE-оцінки, зовнішнього рецензування чи клінічної валідації не проводили.
ApoB пояснює кількість носіїв і дискордантність, а LDL-C залишається доказаною лікувальною ціллю. Спільне розуміння показників, експозиції та контексту корисніше за їх протиставлення.
Він додає інформацію про частинки; LDL-C залишається доказаною ціллю. Рішення враховують загальний ризик.
Це більше частинок щодо холестеринового вантажу, але аналіз не визначає розмір чи конкретну субфракцію.
Ні. Зниження допомагає, але експозиція, тиск, куріння, діабет і бляшки також важливі.
Ні. Клітинні механізми не встановлюють універсальний протокол; дані рецептурної EPA не стосуються кожного риб’ячого жиру.