TNF‑α va uning retseptorlari: TNFR1 va TNFR2 yallig‘lanish, yashab qolish va tiklanishni qanday bog‘laydi
TNFning ikki shakli, TNFR1 ubikvitin platformalari, kaspaza-8, MLKL, TNFR2 signali va hujayra mexanizmini klinik terapiyaga ko‘chirish chegaralari.
Bitta sitokin himoyalovchi yallig‘lanish javobini qo‘llab, to‘qima shikastini cheklashi va hujayra o‘limida qatnashishi mumkin. TNF‑α molekula nomi ta’sirni oldindan belgilamasligini ko‘rsatadi: «o‘sma nekrozi omili» retseptor bilan har bir aloqa nekroz bilan tugaydi degani emas. Natija ligand shakli, hujayra turi, mavjud hujayra ichki oqsillari, to‘qima holati va ta’sir davomiyligiga bog‘liq. Asosiy ikki retseptor — TNFR1 va TNFR2 — farqi bu mantiqni tushuntiradi, ammo uni «yomon» va «yaxshi» signalning sodda qarama-qarshiligiga aylantirmaydi.
Sitokinlarning sharoitga bog‘liq biologiyasiga yana bir misol — IL‑6 klassik va trans-signalizatsiyasi: signal uzatish o‘zgarsa, javob beruvchi hujayralar doirasi ham o‘zgaradi. TNFR1 yallig‘lanish transkripsiyasi va yashab qolishni, nazorat buzilganda esa apoptoz yoki nekroptozni boshlashi mumkin. TNFR2 ayrim immun va to‘qima hujayralarining o‘sishi, chidamliligi va vazifalarini qo‘llaydi; bu tiklanishda foydali, o‘sma muhitida nomaqbul bo‘lishi mumkin. Butun TNFni neytrallash, bitta retseptorni bloklash va bitta retseptorni rag‘batlantirish turli aralashuvlardir. Birining natijasini boshqasiga avtomatik ko‘chirish mumkin emas.
TNFning ikki shakli va hujayralar aloqasining ahamiyati
TNF retseptorga bog‘lanuvchi qismi hujayradan tashqari bo‘shliqqa qaragan membrana oqsili sifatida sintezlanadi. ADAM17, ya’ni TACE fermenti bu qismni proteolitik ajratib, eruvchan shaklni hosil qiladi. Membranadagi va eruvchan TNF retseptorlar bilan ta’sirlashadi, lekin aloqa geometriyasi, sirtda saqlanish va kattaroq retseptor klasterlari shakllanishi farq qiladi. Membranada molekulalar konsentratsiyasi bilan birga fazoviy tashkil topish ham muhim.
Funksional ustunlik TNFR2 uchun ayniqsa sezilarli: membranadagi TNF uni oddiy eruvchan trimerdan samaraliroq faollashtiradi. Grell va hamkasblari buni immun hujayra tizimlarida ko‘rsatib, membrana ligandi o‘sma hujayralarining sitotoksik ta’sirga sezgirligini o‘zgartira olishini aniqladi. Membrana shaklining TNFR2ni afzal faollashtirishi bu signal doim yallig‘lanishga qarshi degani emas. Faollashtirish samaradorligini «eruvchan TNF TNFR2ga umuman bog‘lanmaydi» degan mutlaq da’vo bilan ham almashtirib bo‘lmaydi.
TNFR1 ko‘plab hujayra turlarida mavjud, TNFR2 ekspressiyasi esa hujayra holatiga ko‘proq bog‘liq va ayrim immun hamda tomir populyatsiyalarida muhim. Retseptor ekspressiyasi yo‘l faolligiga teng emas. Signal uchun ligand, retseptor kompleksining mos tashkil topishi va hujayra ichki adapterlari kerak; ayni vaqtda endotsitoz, retseptorlarni sirtdan olib tashlash va manfiy qayta aloqa ishlaydi.
ADAM17 retseptorlarning o‘z tashqi qismlarini ajratishda ham qatnashishi mumkin. Eruvchan TNFR1 va TNFR2 TNFni bog‘lab, mavjudligini o‘zgartiradi, ammo qondagi miqdori mos retseptorning hujayra ichki faolligini bevosita o‘lchamaydi. Oqsil hosil bo‘lishi, sirtdan ajralishi va chiqarilishi, jumladan buyrak faoliyati ta’sir qiladi. Eruvchan retseptorlar nisbati «buzilish va regeneratsiya»ning tayyor individual shkalasi emas.
TNFR1: avval signal platformasi, keyin hujayra taqdiri
TNFR1 ichki qismida mos adapterlar bilan oqsil aloqalarini ta’minlaydigan death domain mavjud. Domen o‘zi oqsillarni parchalab, kaspaza vazifasini bajarmaydi. Nomi o‘limni boshlashga qodir komplekslarda qatnashishini bildiradi, ammo TNFga dastlabki javob ko‘pincha himoya transkripsiyasini ham o‘z ichiga oladi. Bu bosqichlarni ajratish Micheau va Tschopp ishining asosiy natijalaridan edi.
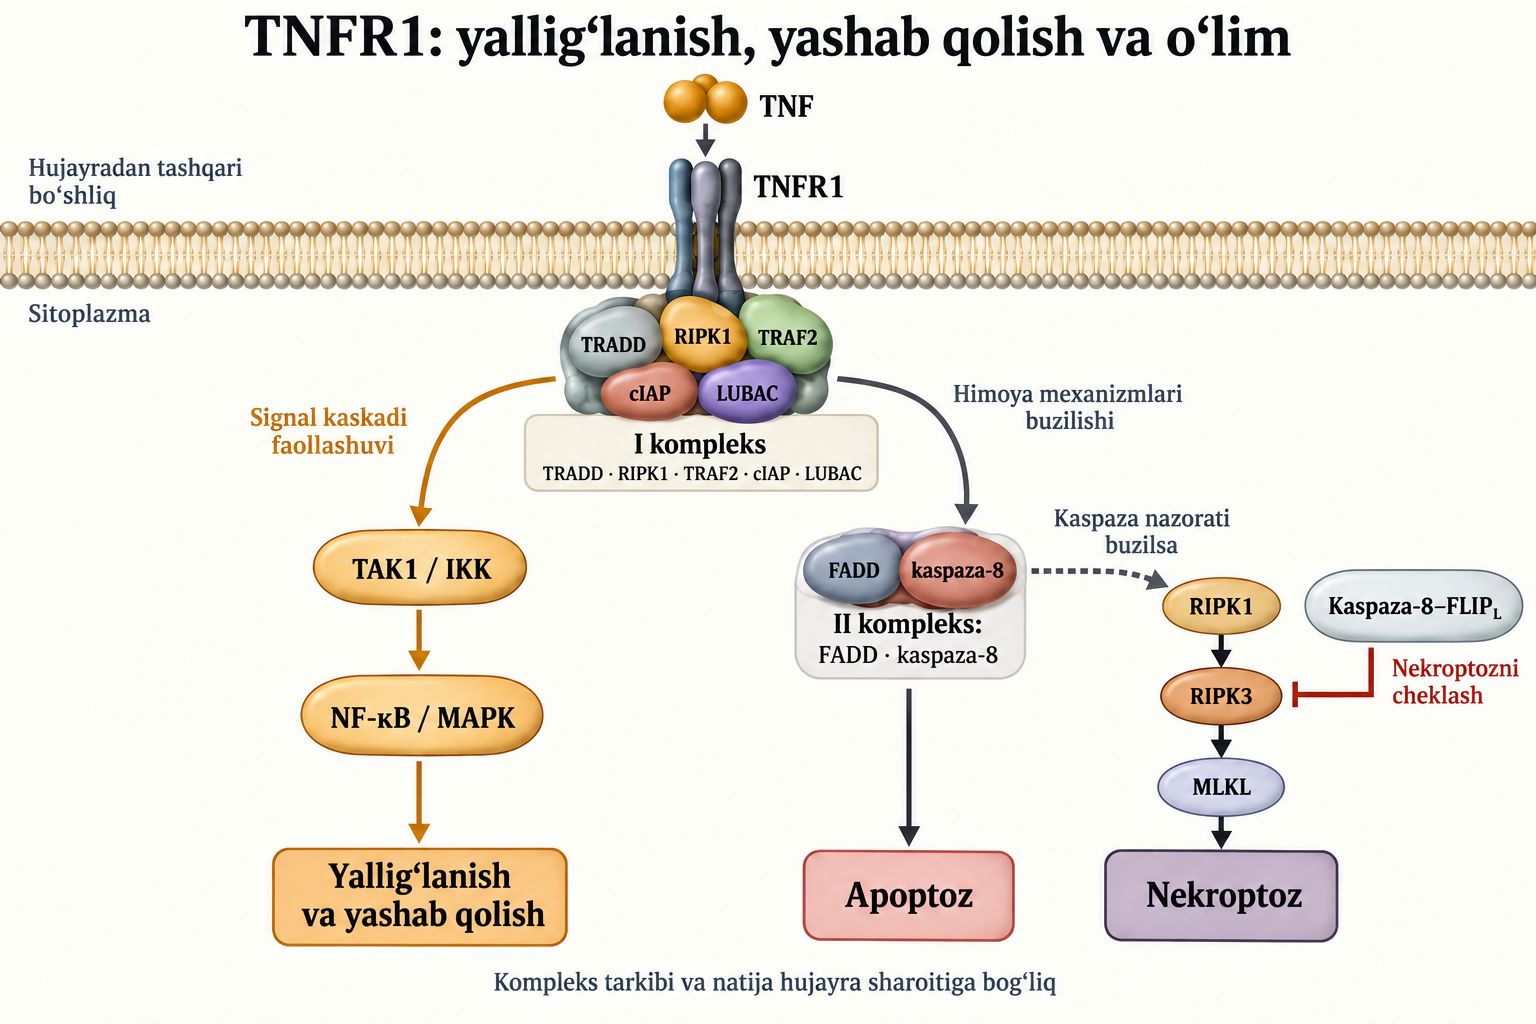
Dastlabki I kompleks plazma membranasi yonida hosil bo‘lib, retseptor, TRADD, RIPK1 va TRAF2ni o‘z ichiga oladi; keyin cIAP va boshqa boshqaruvchilar qo‘shiladi. RIPK1 bu yerda tayanch vazifasini bajaradi, bu ayrim o‘lim yo‘llaridagi katalitik vazifadan farq qiladi. Oqsilni yo‘qotish va kinaza domenini to‘sish bir xil ta’sir emas. Shu sababli «RIPK1 paydo bo‘lsa, hujayra o‘ladi» soddalashtirishi noto‘g‘ri.
I kompleksdagi ubikvitin zanjirlari signal oqsillari bog‘lanadigan sirtlarni yaratadi. K63 orqali bog‘langan va chiziqli M1 zanjirlarini proteasomada majburiy yo‘qotishning oddiy belgisi deb bo‘lmaydi. Ular TAK1–TAB va IKKni jamlovchi tayanch hosil qiladi. Chiziqli zanjirlarni katalitik HOIP va strukturaviy HOIL‑1, SHARPIN hamkorlari bo‘lgan LUBAC hosil qiladi. Platforma yig‘ilishi, barqarorligi va ajralishi javob transkripsion bo‘lib qoladimi yoki hujayra uchun xavfli bo‘ladimi, shuni belgilashda qatnashadi.
TAK1 va IKK signalni fosforlash bilan uzatadi: kinazalar ATPdan fosfatni oqsil substratlariga o‘tkazadi. Ubikvitinlash boshqa jarayon bo‘lib, E1, E2 va E3ning ketma-ket faoliyati hamda ubikvitinni faollashtirishga ATP sarflashni talab qiladi. cIAP va LUBAC kinazalarni almashtirmay, ubikvitin o‘zgarishlarini tashkil qiladi. Farq muhim: bir xil o‘q fizik bog‘lanish, fosfat ko‘chishi, zanjir yig‘ilishi yoki proteolitik kesishni ifodalashi mumkin, oqibatlar esa har xil.
Kanonik NF‑κB yo‘lida IKK IκB ingibitorlari fosforlanishini qo‘llaydi; keyingi ubikvitinlash va proteasoma parchalanishi transkripsiya omillariga yadroga o‘tishga imkon beradi. NF‑κB yallig‘lanish mediatorlari bilan birga o‘limni cheklaydigan oqsillarni boshqaradi. MAPK tarmoqlari ham transkripsiya, hujayra faollashuvi va stress javobiga qatnashadi. Bu hujayrani tirik saqlab, atrof to‘qimada yallig‘lanish yukini oshirishi mumkin: hujayra va to‘qima natijalari doim mos emas.
Nazorat nuqtalari bitta kalitga teng emas
A20, CYLD va OTULIN ubikvitin signalini cheklaydi yoki qayta tuzadi, ammo ularni shunchaki «himoyani olib, o‘lim chaqiradigan» fermentlar deb birlashtirib bo‘lmaydi. Substratlar, zanjir turlari, ta’sir joyi va qo‘shimcha aloqalari farq qiladi. A20 yallig‘lanishning manfiy qayta aloqasida qatnashib, ayrim sharoitda hujayrani himoyalashi mumkin. Natija o‘zgargan kompleks va qolgan kompensator mexanizmlarga bog‘liq.
Himoya transkripsiyasi nazoratning bir qismi xolos. Komponentlar fosforlanishi, cIAP mavjudligi, ubikvitin tayanchi yaxlitligi va kaspaza‑8 faoliyati gen ekspressiyasi o‘zgarmasidan oldin o‘limga o‘tishni cheklaydi. Shu bois erta nazorat buzilganda hujayra o‘lishi mumkin, hatto odatiy sxema NF‑κBni yagona asosiy to‘siq sifatida ko‘rsatsa ham. Aksincha, yallig‘lanish transkriptlari aniqlanishi nekroptozni avtomatik isbotlamaydi.
Apoptoz va nekroptoz: komplekslar va ferment vazifalari farq qiladi
Dastlabki membrana platformasi o‘zgargach, FADD va kaspaza‑8 qatnashgan sitoplazmatik komplekslar paydo bo‘lishi mumkin. Klassik modelda ular II kompleks deb ataladi. IIa, IIb va «ripoptosoma» turli tarkib hamda yig‘ilish sharoitini ifodalaydi; shartsiz sinonimlar emas. Tajribani tushunishda TRADD va RIPK1 ishtiroki, RIPK1 kinaza faolligi kerakligi va qarshi oqsillar mavjudligini bilish muhimroq.
Kaspaza‑8 ayrim substratlarni aspartat qoldig‘idan keyin kesadigan sistein proteazadir. Mos platformada faollashuvi bajaruvchi kaspazalar va apoptozni boshlaydi. Ba’zi hujayralarda BID kesilishi mitoxondrial kuchaytirishni ulaydi: tBID BAX/BAK faollashuvi va mitoxondriyaning tashqi membranasi o‘tkazuvchanligiga yordam beradi. Sitoxrom c chiqishi apoptosoma yig‘ilishi va kaspaza‑9 faollashuvini qo‘llaydi, ammo kuchaytirishga bog‘liqlik hujayra sharoitiga qarab farq qiladi.
FLIP_L tuzilishi kaspaza‑8ga o‘xshaydi, lekin o‘z kaspazasimon domeni odatiy proteaza ishini bajarmaydi. Bu FLIP_L–kaspaza‑8 geterodimeri albatta butunlay nofaol degani emas. Oberst va hamkasblari proteolitik faol kompleks to‘liq apoptozni boshlamay, RIPK3ga bog‘liq nekrotik o‘limni cheklashini ko‘rsatdi. Bir kaspaza bir o‘lim turini bajarib, boshqasidan himoyalashi mumkin.
Nekroptoz RIPK3 va uning MLKL substrati faollashuvi bilan bog‘liq. TNFga bog‘liq sharoitda RIPK1 RIPK3 bilan platforma yig‘ilishida qatnashadi; bu bosqichning ahamiyati tizim va muqobil aktivatorlarga bog‘liq. Fosforlangan MLKL konformatsiyani o‘zgartiradi, oligomerlanadi va membranalar bilan ta’sirlashib yaxlitlikni buzadi. MLKL bajaruvchi kaspaza emas, shu sababli nekroptoz kaspazaga bog‘liq apoptozning boshqa ko‘rinishi emas.
Membrana buzilishi hujayra ichki moddalari chiqishi va yallig‘lanishga yordam beradi, lekin «apoptoz sokin, nekroptoz doim yallig‘lanishli» ham sharoitni talab qiladi. O‘lgan hujayralar vaqtida tozalanishi, to‘qima holati va zararlangan hujayralar soni muhim. Umumiy o‘limni mexanizmsiz o‘lchash aniq tarmoqni ko‘rsatmaydi. Ilmiy xulosa bitta universal marker emas, bir nechta mos belgiga tayanadi.
TNFR2: yashab qolish va immun vazifani muvofiqlashtirish
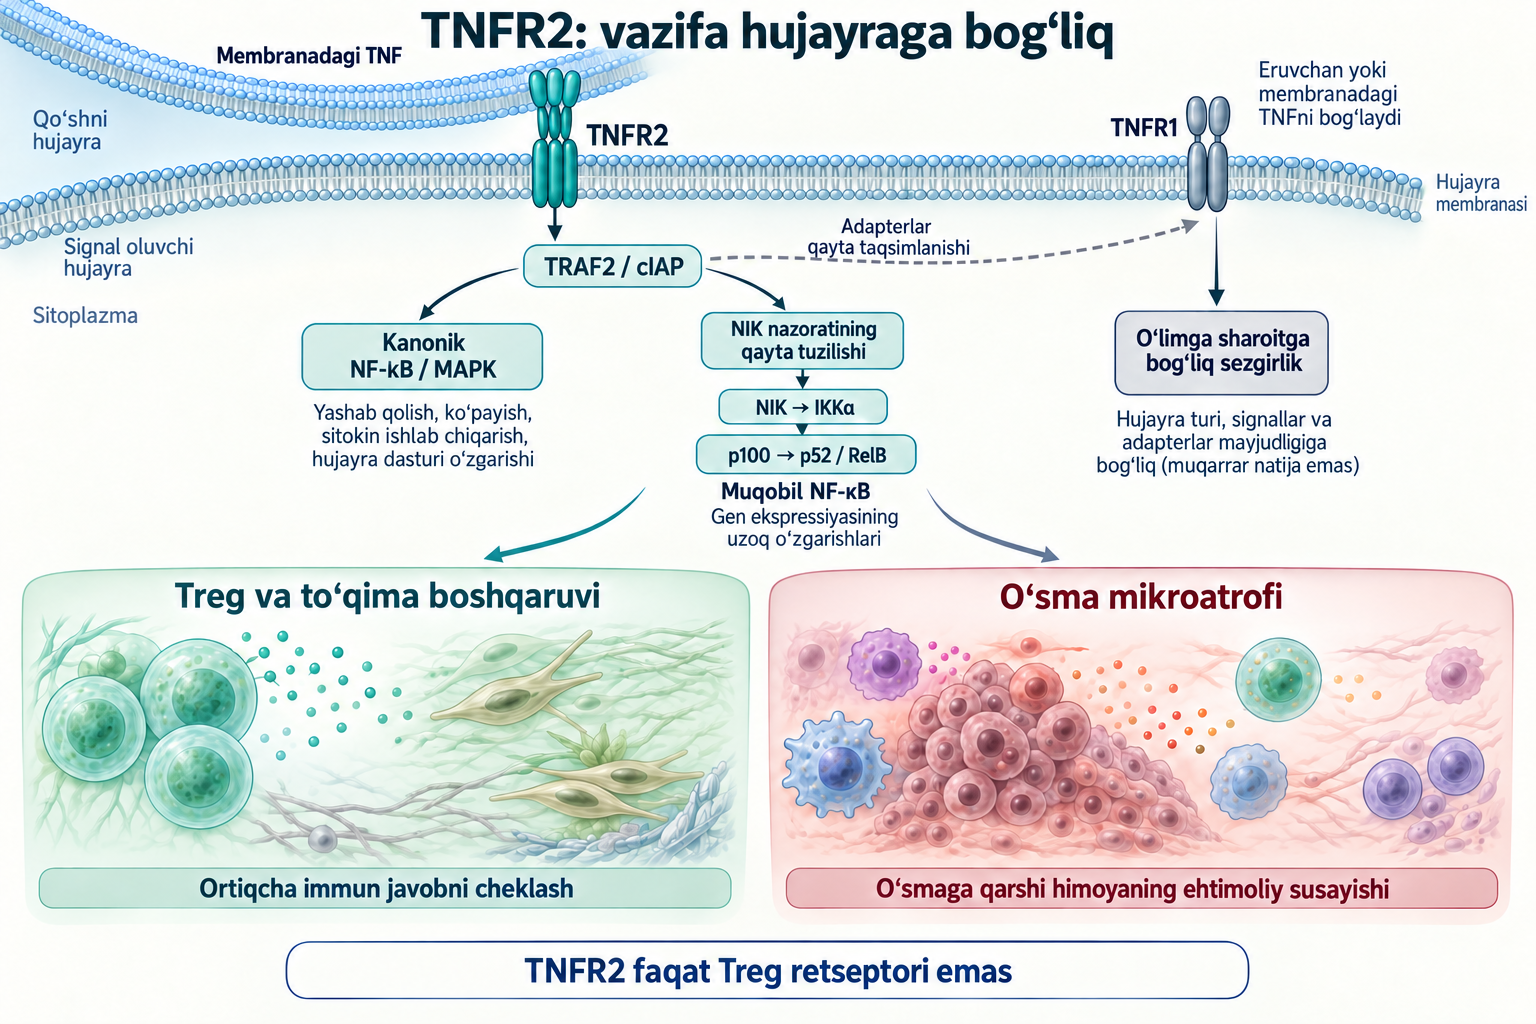
TNFR2da death domain yo‘q va boshlang‘ich aloqalar boshqa. U TRAF2 hamda bog‘langan cIAPni jalb qilib, kanonik NF‑κB, MAPK va sharoitga bog‘langan o‘sish hamda yashash yo‘llarini faollashtirishi mumkin. Bu to‘qima tiklanishiga kafolat emas. Foydali regulyator hujayra va o‘sma hujayrasi o‘sishi qisman umumiy mexanizmlarga tayansa ham, organizmga oqibatlari qarama-qarshi.
TNFR2ning muhim xususiyati tinch holatda NIKni past ushlaydigan TRAF2–TRAF3–cIAP kompleksi mavjudligiga ta’siridir. Tizim qayta tuzilsa, NIK to‘planib, IKKαni faollashtirishi mumkin. p100ning cheklangan proteasoma ishlovi p52ni hosil qiladi; u RelB bilan nokanonik NF‑κBga qatnashadi. p100 ishlovi IκBning to‘liq yo‘qolishidan farq qiladi: proteoliz transkripsiya omilining faol shaklini yaratadi.
Kanonik va nokanonik tarmoqlar tashkil topish va kinetikada farqlanadi, lekin barcha hujayraga bir xil daqiqa yoki soat jadvali berib bo‘lmaydi. Tezlik boshlang‘ich oqsillar, stimul kuchi va davomiyligi, retseptorlar va parallel signallarga bog‘liq. Nokanonik yo‘l odatda NIK yig‘ilishi va komplekslar qayta tuzilishini talab qiladi deyish, modelsiz universal vaqt jadvalidan aniqroq.
TNFR2 qachon TNFR1ga sezgirlikni oshiradi
Retseptorlar hujayra ichki resurslarini qisman bo‘lishadi. Ayrim sharoitda TNFR2 TRAF2/cIAPni qayta taqsimlaydi yoki mavjudligini kamaytirib, TNFR1 himoyasini susaytiradi. Hujayra TNFdan keyingi o‘limga sezgirroq bo‘lishi mumkin. Bu TNFR2 death domain olganini anglatmaydi: ta’sir signal muhitining o‘zaro boshqarilishidan keladi.
Bu aloqa selektiv dorilar uchun muhim. TNFR1 bloklanganda TNFR2ni saqlash, TNFR1 faol qolganida TNFR2ni rag‘batlantirish bilan bir xil emas. Ta’sir ikkala retseptor, ligand shakli va hujayraning himoya komplekslarini saqlashiga bog‘liq. To‘g‘ri savol — muayyan to‘qima va kasallik bosqichida qaysi hujayra qanday signal oladi; qaysi retseptor foydaliroq emas.
Regulyator T-hujayralar: sharoitga bog‘liq narxi bor to‘qima himoyasi
TNFR2 ko‘pincha faol va funksiyasi kuchli regulyator T-hujayralar bilan bog‘liq, ammo ularning yagona maxsus markeri emas. U boshqa immun populyatsiyalarda, jumladan faol oddiy T-hujayralarda ham uchraydi. Treg tavsifi kelib chiqish, transkripsiya dasturi, FOXP3 barqarorligi va aniq immun javobni bostirish qobiliyatini hisobga oladi. Faqat TNFR2 bo‘yash yetmaydi.
IL‑2 va STAT5 yo‘li Tregni saqlashda muhim. TNFR2 kostimulyatsiyasi tizimni to‘ldirishi mumkin, lekin ayni retseptor JAK–STAT mexanizmini bevosita majburiy ishga tushirish emas. FOXP3 ekspressiyasi o‘zgarishi ham barcha regulyator sohalarning barqaror epigenetik qayta tuzilishini bildirmaydi. Barqarorlik qisqa marker oshishi emas, aniq o‘lchovlar va kuzatuv davomiyligi bilan asoslanadi.
Mensink va hamkasblari inson qonidagi Tregni transkriptomika, proteomika, funksional migratsiya va to‘qima imzolari bilan solishtirib o‘rgandi. TNFR2 kostimulyatsiyasi to‘qima effektor Treg belgilarini qo‘lladi; CD28 bilan solishtirish turli differensiatsiya dasturlarini ko‘rsatdi. Bu mexanistik gipoteza va hujayraviy usullar uchun asosdir. Bemor organlari tiklanishi yoki klinik samarani isbotlagan terapiya sinovi emas.
Autoimmun yoki shikastlangan to‘qimada regulyator vazifa ortiqcha immun javobni cheklaydi. O‘sma mikroatrofida shu vazifa o‘smaga qarshi himoyaga to‘sqinlik qilishi mumkin. Natija o‘sma tarkibi, effektor hujayralar va o‘sma hujayralarining retseptor ekspressiyasiga ham bog‘liq. Shuning uchun bir klinik maqsad uchun TNFR2ni rag‘batlantirish boshqasida bloklashga zid bo‘lsa-da, biologiyaning o‘zida ziddiyat yo‘q.
Nerv to‘qimasi: sichqonda remiyelinizatsiya inson MSini davolash emas
Arnett va hamkasblari TNF va TNFR2ni kuprizonli sichqon modelida oligodendrotsit ajdod hujayralari ko‘payishi va remiyelinizatsiya bilan bog‘ladi. Bu TNF miyelin tiklanishida qatnashishini tushuntiradi. Ammo toksik miyelin shikasti insonning ko‘p omilli immun kasalligidan farq qiladi. Shikast sababi, vaqt ketma-ketligi va periferik immunitet hissasi turlicha.
Tajriba TNFR2 oshirilsa bemorda miyelin albatta tiklanishini isbotlamaydi. Aniq populyatsiya, dori shakli, yetarli ekspozitsiya va funksiyani hamda kasallik kechishini ko‘rsatadigan natijali klinik sinov kerak. Marker o‘zgarishi yoki ajdod hujayralar soni muhim oraliq kuzatuv, lekin klinik natija o‘rnini bosmaydi.
Lenersept sinovi gipotezani to‘g‘ridan-to‘g‘ri ko‘chirish xavfini ko‘rsatdi. Ikki tomonlama ko‘r, randomizatsiyalangan sinovga asosan qaytalanuvchi-remissiyali tarqoq sklerozli 168 bemor kiritildi; vena orqali 10, 50 yoki 100 mg har to‘rt haftada yoki platsebo 48 haftagacha berildi. MRT ko‘rsatkichlari sezilarli farq qilmadi, ammo zo‘rayishlar tez-tez va ertaroq bo‘ldi. EDSS sezilarli o‘zgarmadi; doriga antitanalar va eng past konsentratsiyalarning kam aniqlanishi ekspozitsiya talqinini chekladi.
Lenersept TNFni bog‘lovchi eruvchan TNFR1–Fc edi. U boshqa TNF aloqalari to‘liq saqlanishini kafolatlab membrana TNFR1ni selektiv bloklash o‘rniga ligandni neytralladi. Salbiy natija barcha zamonaviy retseptor-selektiv usulning bevosita sinovi emas. Biroq TNF yallig‘lanishda qatnashishi butun tizimni bostirishni MSda avtomatik foydali qilmasligini ko‘rsatadi.
Klinik samaradorlik kasallik va tanlangan natijaga bog‘liq
Revmatoid artritda anti-TNFning ijobiy natijalari TNF doim zararli degan farazni talab qilmaydi. ATTRACT barqaror metotreksat fonida faol artritli 428 bemorni platsebo yoki infliksimabning to‘rt sxemasiga randomizatsiya qildi: 3 yoki 10 mg/kg, keyin har to‘rt yoki sakkiz haftada. 30 haftada mos guruhlarda ACR20 — 53%, 50%, 58%, 52%, platsebo va metotreksatda 20% bo‘ldi. ACR50 — 29%, 27%, 26%, 31%, taqqoslashda 5%.
ACR20 yaxshilanishning aniq yig‘ma mezoni, har javob beruvchida kasallikning butunlay yo‘qolishi emas. Sinov tanlangan populyatsiyada metotreksatga infliksimab qo‘shishni baholadi, TNFR1 va TNFR2 hissasini ajratmadi. O‘ttiz hafta uzoq muddatdagi kam uchraydigan asoratlarni baholash o‘rnini bosmaydi. Aniq sxemaning klinik foydasi va retseptor gipotezasining mexanistik jozibasi turli dalil darajalaridir.
Etanersept TNFR2ning tashqi qismini Fc bilan birlashtiradi va ligandni bog‘laydi. Retseptor bo‘lagi ishlatilgani uni hujayra TNFR2 agonistiga aylantirmaydi. TNFga va retseptorning o‘ziga antitanalar ham boshqa bevosita nishonlarga ega. Dorini muhokamada oqsil nomidan xulosa chiqarish emas, nima bog‘lanishi, neytrallanishi yoki klasterlanishini aniqlash kerak.
Yurak yetishmovchiligi: marker pasayishi foyda kafolati emas
Ikki tomonlama ko‘r randomizatsiyalangan pilot ATTACH o‘rta-og‘ir surunkali yurak yetishmovchiligi, NYHA III–IV va chiqarish fraksiyasi 35%dan oshmagan 150 bemorni o‘rgandi. Infliksimab 5 yoki 10 mg/kg yoki platsebo 0, 2, 6 haftalarda berilib, kuzatuv 28 haftagacha davom etdi. 14 haftadagi birlamchi klinik holat bahosi yaxshilanish ko‘rsatmadi. Yallig‘lanish ko‘rsatkichlari pasayishi mos klinik foydaga aylanmadi.
10 mg/kgda 28 haftagacha har qanday sababli o‘lim yoki yurak yetishmovchiligi uchun yotqizilish xavfi yuqori edi: xavflar nisbati 2,84, 95% ishonch oralig‘i 1,01–7,97, nominal p=0,043. Bu aniq doza va populyatsiya, keng interval va pilot sinov cheklovlariga tegishli. Barcha anti-TNF har kim uchun bir xil xavfli ekanini isbotlamaydi. Lekin past yallig‘lanish markeri doim yaxshi organ funksiyasi degan universal farazni rad etadi.
Xavfsizlik TNFning fiziologik roliga bog‘liq
TNF normal immun himoya va hujayralar koordinatsiyasida qatnashadi, shu bois bloklash faqat patologik yallig‘lanishni o‘zgartirmaydi. Xavfsizlik infeksion asoratlar, birga qo‘llangan immunosupressiya va hamroh kasalliklarni hisobga oladi. Barcha dori, doza, infeksiya va populyatsiyaga yagona xavf ko‘paytirgichi noto‘g‘ri. Qisqa sinovda og‘ir infeksiyalar farqi yo‘qligi uzoq va keng foydalanishda topiladigan xavflarni inkor etmaydi.
Dori buyurish umumiy retseptor sxemasiga emas, uning ko‘rsatma va cheklovlariga bog‘liq. Klinik tanlov tashxis, tarix, tekshiruv va monitoringga tayanadi; maqola asosni tushuntiradi. Buyurilgan terapiyani mustaqil ravishda qo‘shimcha yoki sinalmagan «selektiv» usulga almashtirish gipotezani u isbotlamagan qaror darajasiga ko‘chiradi.
Ovqat va turmush tarzi isbotlangan retseptor kaliti emas
Metabolik holat, ratsion va surunkali yallig‘lanish stimullari immun muhitga ta’sir qiladi. Bu oziq molekulasi insonda TNFR1ni selektiv o‘chirib, TNFR2ni yoqishini bildirmaydi. Hujayralarda polifenollar, yog‘ kislotalari yoki mikrobiota metabolitlari gen ekspressiyasi, redoks muvozanati va signal oqsillarini o‘zgartiradi. Laboratoriya konsentratsiyasi, vaqt va kimyoviy shakl oddiy ovqat yoki qo‘shimchadan keyingi ekspozitsiyadan keskin farq qilishi mumkin.
Butirat faqat yallig‘lanish markerlarini o‘zgartirishi mumkin bo‘lgan modda emas: u retseptor va epigenetik boshqaruvga qatnashuvchi metabolitdir. Omega‑3dan hosil bo‘ladigan yallig‘lanish yakunlanishining ixtisoslashgan mediatorlari ham ko‘p aloqaga ega. Bir kuzatuv ikkala retseptorni selektiv klinik boshqarishni isbotlamaydi. Nekroptozning kafolatli bloklanishi yoki TNFR2ning universal bir necha baravar oshishi uchun aniq tizimda bevosita dalil kerak.
Oziq modda D vitamini, uning aylanma metabolitlari va faol kalsitriol bir xil laboratoriya ekspozitsiyasi emas. Resveratrol yoki EGCGning kulturadagi ta’siri ham autoimmun kasallik uchun dozalash protokolini yaratmaydi. Amaliy xulosalar bioo‘zlashtirilish, metabolitlar, klinik natijalar va noxush ta’sir dalillarini talab qiladi. Mexanistik maqola TNFR1/TNFR2ni o‘zgartirish uchun yuqori dozali qo‘shimcha buyurishni asoslamaydi.
Kelajakdagi retseptor-selektivlik tadqiqotlarini qanday o‘qish kerak
Axborotli tadqiqot nishon, hujayra sharoiti va natijani ajratadi. TNFR1 dorisi ligand bog‘lanishi, klaster yoki aniq ichki javobni bloklayaptimi — muhim. TNFR2 rag‘batlantirilsa qaysi hujayra signal olishi va TNFR1 faol qolishi muhim. Treg ko‘payishi yoki yallig‘lanish oqsili o‘zgarishi farmakodinamikani tasdiqlaydi, ammo bemor foydasini hali isbotlamaydi.
Organizmdan tashqari inson hujayralari, hayvon modeli va klinik sinovni farqlash kerak. Kultura dori tarqalishi va to‘qima aloqalarining ko‘p xususiyatini qamramaydi; hayvon modeli inson kasalligini to‘liq takrorlamaydi. Klinikada dastlabki og‘irlik, fon dorilari, davomiylik, birlamchi natija va noxush hodisalar muhim. Salbiy natijalar ishonarli biologik izohlar chegarasini ochgani uchun qimmatli.
TNF tizimi sharoitga bog‘liq biologiyani ko‘rsatadi: hujayrani saqlash, yallig‘lanishni kamaytirish va organ funksiyasini tiklash doim birga bo‘lmaydi. TNFR1 himoya va o‘lim komplekslarini tashkil qiladi, TNFR2 foydasi to‘qima va maqsadga bog‘liq vazifalarni qo‘llaydi. Ferment reaksiyalari, bo‘limlar va o‘zaro boshqaruvni tushunish terapiyani aniqroq muhokama qilishga yordam beradi. Har bir aralashuvning klinik natijasini tekshirish zaruratini bekor qilmaydi.
Tez-tez beriladigan savollar
TNFR1 har doim hujayrani o‘ldiradimi?
Yo‘q. I kompleks NF-κB, yallig‘lanish transkripsiyasi va yashab qolishni qo‘llashi mumkin. Apoptoz yoki nekroptoz nazorat va hujayra sharoitiga bog‘liq.
TNFR2 doim tiklanishga yordam beradimi?
Yo‘q. Regulyatsiya ortiqcha immunitetni cheklaydi, ammo o‘smada o‘smaga qarshi himoyaga to‘sqinlik qilishi mumkin. Retseptor Tregdan tashqarida ham bor.
Etanersept TNFR2ni rag‘batlantiradimi?
Tarkibidagi hujayra tashqi TNFR2–Fc bo‘lagi ligandni bog‘laydi. Bu dorini hujayra TNFR2 agonistiga aylantirmaydi.
Qo‘shimchalar retseptorlarni almashtiradimi?
Qo‘shimchalar bilan TNFR1/TNFR2ni selektiv klinik boshqarish isbotlanmagan. Hujayra ta’siri autoimmun kasallikka doza protokolini bermaydi.
Manbalar
- The transmembrane form of tumor necrosis factor is the prime activating ligand of the 80 kDa tumor necrosis factor receptor
- Induction of TNF receptor I-mediated apoptosis via two sequential signaling complexes
- Recruitment of the linear ubiquitin chain assembly complex stabilizes the TNF-R1 signaling complex and is required for TNF-mediated gene induction
- Catalytic activity of the caspase-8-FLIP(L) complex inhibits RIPK3-dependent necrosis
- Mixed lineage kinase domain-like protein mediates necrosis signaling downstream of RIP3 kinase
- Mixed lineage kinase domain-like protein MLKL causes necrotic membrane disruption upon phosphorylation by RIP3
- Tregs from human blood differentiate into nonlymphoid tissue-resident effector cells upon TNFR2 costimulation
- TNF alpha promotes proliferation of oligodendrocyte progenitors and remyelination
- TNF neutralization in MS: results of a randomized, placebo-controlled multicenter study
- Infliximab versus placebo in rheumatoid arthritis patients receiving concomitant methotrexate: a randomised phase III trial
- Randomized, double-blind, placebo-controlled, pilot trial of infliximab in patients with moderate-to-severe heart failure: results of the ATTACH trial
- Noncanonical NF-kappaB activation requires coordinated assembly of a regulatory complex of the adaptors cIAP1, cIAP2, TRAF2 and TRAF3 and the kinase NIK
- Apoptotic crosstalk of TNF receptors: TNF-R2-induces depletion of TRAF2 and IAP proteins and accelerates TNF-R1-dependent activation of caspase-8
- The tumor necrosis factor receptor 2 signal transducers TRAF2 and c-IAP1 are components of the tumor necrosis factor receptor 1 signaling complex