Таурин у ЦНС: астроцити, VRAC, GlyR і тРНК — NutriFit
Таурин у мозку: осморегуляція астроцитів, рецептори й мітохондрії
Як таурин переміщується між астроцитами й нейронами, бере участь у регуляції клітинного об’єму та модифікації мітохондріальної тРНК. Де біохімічні механізми підтверджені, а де клінічні обіцянки поки випереджають дані.
Таурин зручно розглядати на перетині двох процесів, які зазвичай описують окремо. Коли астроцит набухає, він виводить частину таурину разом з іншими осмотично активними речовинами, щоб відновити свій об’єм. Поза клітиною та сама молекула може взаємодіяти з рецепторами нейронів. Це цікавий зв’язок між водним балансом і гальмівною передачею, але він не означає, що приймання таурину зупинить набряк мозку або епілептичний напад.
Таурин — це 2-аміноетансульфонова кислота. Він не вбудовується у звичайні білки, проте присутній у багатьох тканинах як вільна молекула. У мозку його внутрішньоклітинна концентрація значно вища, ніж у міжклітинній рідині; цей запас підтримують синтез, переносник TauT і утримання в клітинах. Далі ми простежимо шлях молекули від сірковмісних амінокислот до астроцита, рецептора й мітохондріальної тРНК, а потім розглянемо, які з цих механізмів справді досліджували в людей.
Молекула, яку клітини можуть накопичувати
Формула таурину — C₂H₇NO₃S, молярна маса — близько 125,15 г/моль. На відміну від α-амінокислот, його аміногрупа розташована біля другого атома вуглецю від кислої групи, а замість карбоксилату є сульфонат. За фізіологічного pH переважає цвітер-іон H₃N⁺–CH₂–CH₂–SO₃⁻: аміногрупа має позитивний заряд, а сульфонат — негативний. Ця полярна молекула добре розчиняється у воді й погано проходить крізь ліпідну мембрану шляхом простої дифузії. Тому її рух визначають переносники й канали, а не лише різниця концентрацій по обидва боки мембрани.
Для осморегуляції це важливе поєднання властивостей. Таурин може збільшувати кількість розчинених частинок у цитозолі, не заміщуючи іони, потрібні для роботи ферментів, і не порушуючи структуру білків так різко, як деякі інші розчинені речовини. Але «сумісний осмоліт» не означає необмежений запас: його кількість залежить від надходження, синтезу, зворотного захоплення та ниркової реабсорбції.
Як утворюється та доставляється таурин
Основний шлях починається з сірковмісних амінокислот. Через цикл метилювання метіонін утворює гомоцистеїн; шлях транссульфурації за участю цистатіонін-β-синтази (CBS) і цистатіонін-γ-ліази (CSE) веде до цистеїну. Цистеїндіоксигеназа (CDO) приєднує кисень до сірки цистеїну й утворює цистеїнсульфінат. Далі цистеїнсульфінатдекарбоксилаза (CSAD), якій потрібен піридоксаль-5-фосфат — активна форма вітаміну B₆, — відщеплює CO₂ та утворює гіпотаурин. Окиснення гіпотаурину завершує синтез таурину:
Є також додаткова гілка: розпад коензиму A утворює пантетеїн, а потім цистеамін; цистеаміндіоксигеназа (ADO) окиснює його до гіпотаурину. Внесок цих шляхів відрізняється між тканинами й видами. Активність CSAD у людини нижча, ніж у багатьох тваринних моделей, використаних в експериментах, але з цього не можна автоматично вивести точну частку харчового та власного таурину або назвати його безумовно незамінним для кожного дорослого. Особливо важливо оцінювати надходження й обмін у недоношених дітей та за особливих станів харчування.
Таурин міститься переважно в продуктах тваринного походження, зокрема в рибі й морепродуктах; рослинна їжа зазвичай містить його мало. Однак наявність речовини в раціоні не показує, скільки її потрапить до мозку. Переносник TauT, кодований геном SLC6A6, захоплює таурин разом із Na⁺ і Cl⁻; часто описувана стехіометрія — 2 Na⁺ : 1 Cl⁻ : 1 таурин. Робота Na⁺/K⁺-АТФази підтримує натрієвий градієнт, який уможливлює накопичення. Гіпотаурин і β-аланін конкурують за переносник. За гіпертонічного стресу фактор NFAT5 сприяє експресії генів накопичення осмолітів, зокрема SLC6A6; регуляція положення TauT у мембрані також змінює швидкість захоплення.
Гематоенцефалічний бар’єр робить системний і локальний пули нерівнозначними. TauT виявляють в ендотелії мозкових капілярів і клітинах нервової тканини, але транспорт обмежений і регулюється з обох боків бар’єра. Тому підвищення таурину в плазмі після приймання добавки не можна прирівнювати до такого самого підвищення в астроциті або конкретному нейронному ансамблі.
У цьому ланцюзі є важливе біохімічне розгалуження. Цистеїнсульфінат не обов’язково має перетворитися на таурин: він може брати участь в інших шляхах обміну сірки. Тому активність CDO сама по собі не визначає кінцевий вихід таурину; важливі доступність субстрату, залежна від PLP CSAD і стан тканини. Гіпотаурин — не лише проміжний продукт: його окиснення може супроводжувати реакції з окисниками. Але було б неправильно перетворювати це спостереження на загальне твердження, що харчовий таурин безпосередньо «вловлює всі вільні радикали» в мозку.
Де міститься запас
Концентрації залежать від віку, виду, ділянки мозку та методу вимірювання. Експериментальні дослідження описують вищий вміст у деяких ділянках мозочка й нюхової системи та інший розподіл у корі, смугастому тілі, гіпокампі, стовбурі й спинному мозку. Порівняння мікромолів на грам сирої тканини з мілімолями на літр внутрішньоклітинної води потребує знання клітинного складу й не дає простої таблиці універсальних «норм» для людини.
Компартмент
Що вимірюють
Як читати результат
Астроцити й нейрони
Внутрішньоклітинний вільний таурин, в експериментальних системах часто мілімолярного порядку
Значний запас для осмотичної відповіді; показник змінюється залежно від клітини, віку й стану
Міжклітинна рідина
Значно менший, зазвичай мікромолярний пул
Навіть невелике вивільнення клітинного резерву може змінити місцеву концентрацію
Плазма й ендотелій ГЕБ
Субстрат, доступний для TauT
Рівень у крові не є прямою мірою концентрації в мозку
Регіональна картина цікава не лише середнім рівнем. У корі мозочка таурин виявляють у клітинах Пуркіньє й зернистих клітинах; у нюховій системі — у мітральних клітинах та інтернейронах. Смугасте тіло, гіпокамп, сенсорна кора, стовбур і спинний мозок відрізняються часткою глії, зрілістю нейронів і складом гальмівних мереж. Табличні діапазони для кожного регіону не варто переносити до клінічного довідника: порівняльні вимірювання тканин різних видів і методів не можна трактувати як єдиний норматив для крові, МР-спектроскопії або спинномозкової рідини людини.
TauT — не єдиний регулятор клітинного пулу. Якщо довкілля стає гіпертонічним, NFAT5 допомагає збільшити накопичення органічних осмолітів, щоб клітина не зневоднювалася; під час набухання пріоритет змінюється на їх виведення. Фосфорилювання та переміщення переносника між мембраною й внутрішньоклітинними компартментами можуть змінювати швидкість захоплення, хоча конкретна дія PKC і PKA залежить від дослідженої клітинної системи. Навіть часто цитовані значення спорідненості TauT не дають змоги автоматично зробити висновок, що переносник «завжди насичений» за звичайної концентрації в крові: швидкість також визначають іонний градієнт, щільність переносників, напрямок транспорту й доступність таурину з кожного боку ГЕБ.
Різниця між внутрішньо- та позаклітинним середовищем пояснює, чому таурин може швидко виходити з клітини, що набухає, за градієнтом через відкритий шлях. Вона також пояснює обмеження харчового втручання: підвищення в крові ще має пройти бар’єр і бути захопленим потрібною клітиною.
Що відбувається, коли астроцит набухає
Астроцити охоплюють мозкові капіляри своїми кінцевими ніжками. У цих мембранах зосереджений водний канал AQP4, тому осмотичні зміни швидко відбиваються на об’ємі клітини. У жорсткій порожнині черепа сумарний об’єм тканини, крові й спинномозкової рідини обмежений; значне набухання тканини небезпечно підвищує внутрішньочерепний тиск. Ця клінічна небезпека реальна, але дослід на окремому астроциті не доводить, що добавка таурину запобігає вклиненню або зберігає перфузію в пацієнта.
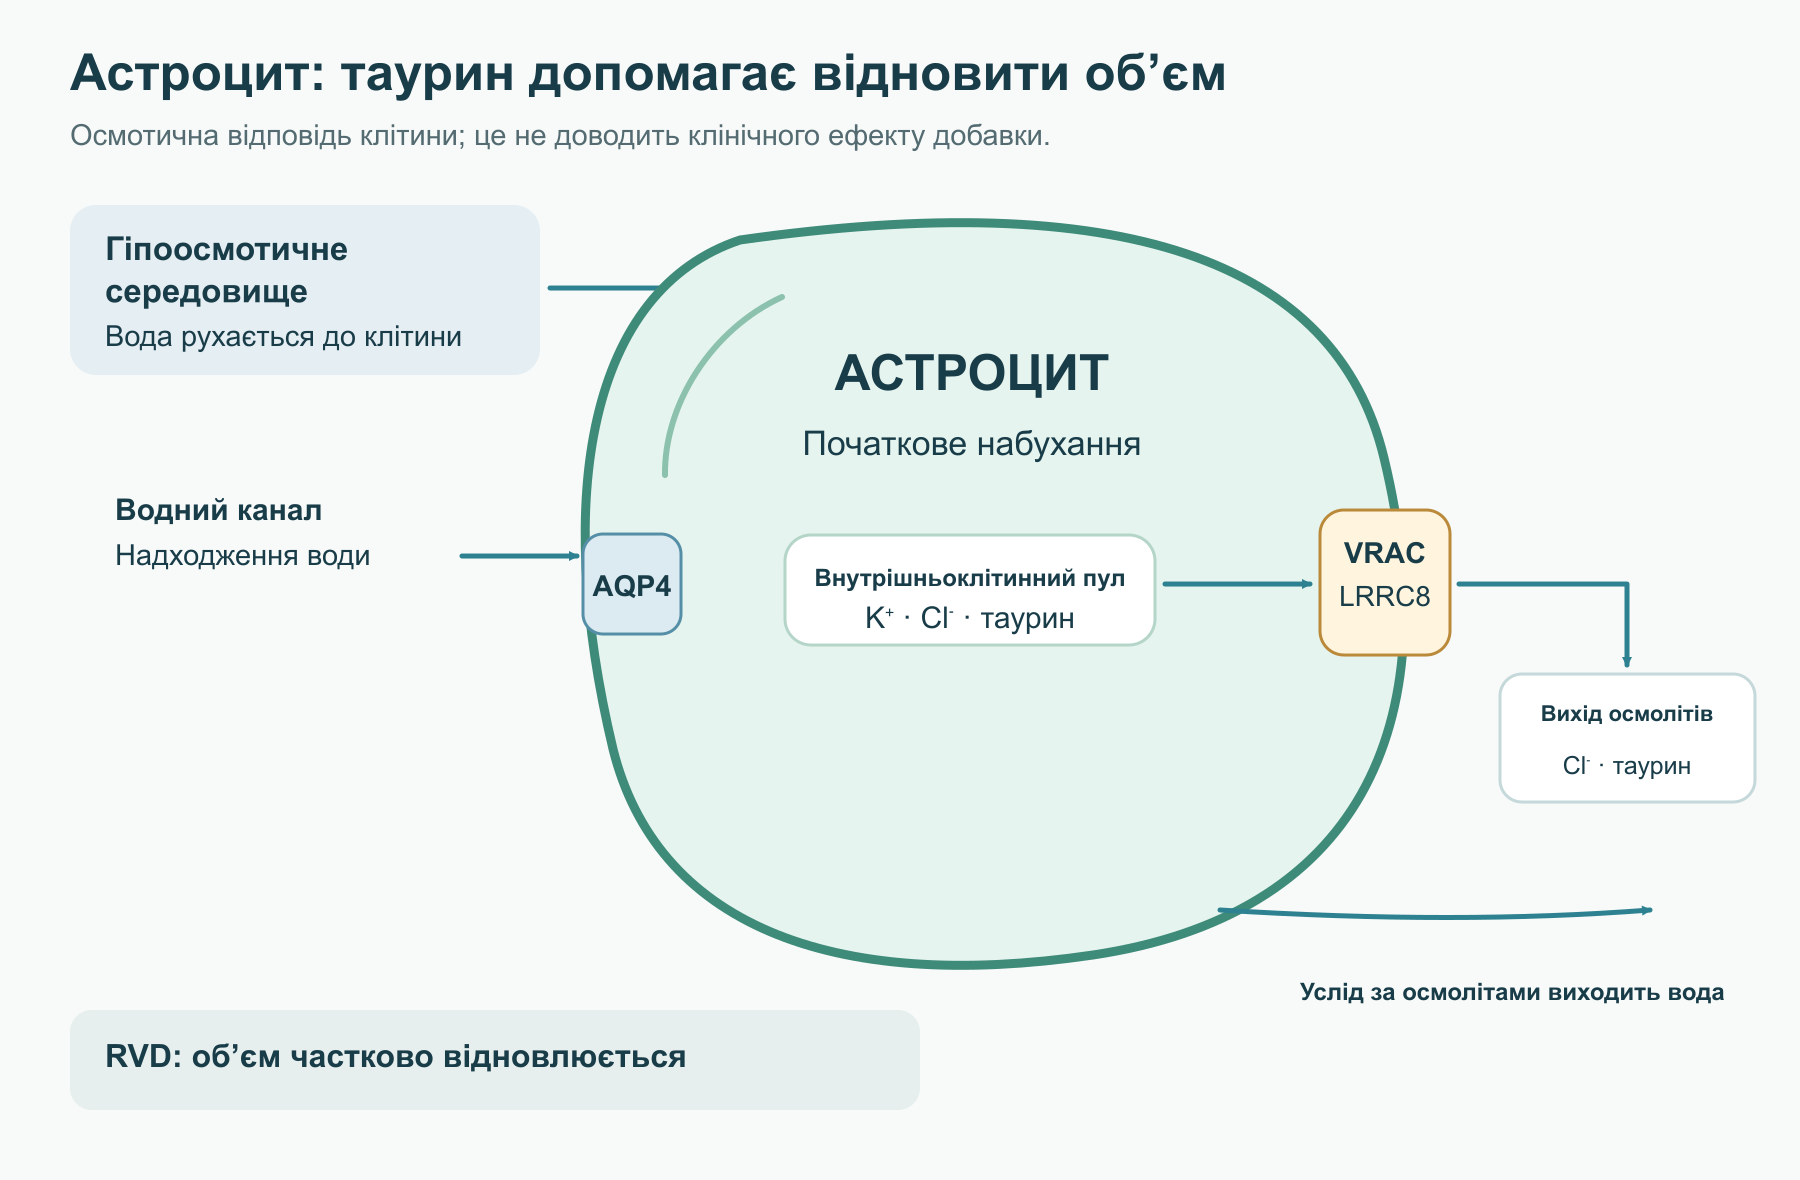
Коли позаклітинне середовище стає менш концентрованим, вода входить в астроцит. Клітина відповідає регуляторним зменшенням об’єму (RVD): виводить K⁺ і Cl⁻, а також органічні осмоліти, зокрема таурин. Зменшення кількості розчинених частинок знижує осмотичне притягання води до цитозолю; якщо здатність до адаптації збережена, частина води виходить, а об’єм клітини зменшується. Це не «вимкнення» набряку: результат залежить від причини, тривалості й тяжкості порушення, стану іонних насосів і сусідніх клітин.
Кінцеві ніжки астроцитів з AQP4 прилягають до капілярів, але вода рухається за осмотичним градієнтом, а AQP4 її не «накачує». Одним із прикладів гіпоосмотичного порушення в літературі є зниження натрію в плазмі. Однак сама концентрація натрію не визначає швидкості й тяжкості церебрального набряку: важливі осмоляльність, тривалість процесу, клітинна адаптація та інші розчинені речовини. За хронічної гіпонатріємії клітини поступово втрачають осмоліти; надто швидке відновлення позаклітинної осмоляльності вже загрожує іншим механізмом ушкодження. Цей перехід показує, чому RVD — не проста вказівка «додати таурин».
Один зі шляхів виходу таурину пов’язують з об’єм-регульованим аніонним каналом VRAC. Його обов’язкова субодиниця LRRC8A утворює гетеромери з іншими білками родини LRRC8; LRRC8D особливо важлива для проникності низки органічних сполук. Архітектура каналу й вибірковість до субстратів залежать від складу гетеромера, а відкриття пов’язане не лише з розтягненням мембрани, а й зі змінами внутрішньоклітинної іонної сили та клітинних сигналів. Різні субодиниці LRRC8C, LRRC8D і LRRC8E змінюють проникність гетеромера; виділення ролі LRRC8D для органічних сполук не означає, що всі канали в усіх астроцитах мають однаковий склад. Електрофізіологічна характеристика VRAC як аніонного струму та спостереження виходу молекули, сумарно нейтральної як цвітер-іон, описують різні властивості проникної пори. У втраті об’єму також беруть участь калієві канали, зокрема досліджувані BK/IK і KCNQ, та шляхи виходу хлориду. Іонні струми підтримують електронейтральність, а зменшення загальної кількості частинок створює рушійну силу для руху води.
В експериментах втрата таурину з клітини, що набухає, може випереджати зворотне захоплення через TauT. Після відновлення умов клітині знову доводиться поповнювати пул осмоліту.
Ішемія складніша за гіпотонічний стрес. Дефіцит АТФ послаблює Na⁺/K⁺-АТФазу та кальцієві насоси; Na⁺ й інші іони накопичуються в клітині, а за ними надходить вода. Набухлі відростки астроцитів можуть звужувати позаклітинний простір і впливати на мікроциркуляцію. За вазогенного набряку, навпаки, бар’єр порушується, і з судин виходить рідина з компонентами плазми. Ці механізми часто співіснують при інсульті чи травмі. Мікроциркуляторний феномен no-reflow після ішемії має кілька причин: набухання клітин, ушкодження ендотелію, зміни перицитів і мікротромби. Участь астроцита не доводить, що достатній запас таурину збереже просвіт капілярів або зупинить перехід пенумбри в інфаркт. При травмі мозку та субарахноїдальному крововиливі додатково діють судинні, запальні й механічні чинники. Збереження позаклітинного простору може полегшувати дифузію, але клінічне значення цього окремого шляху потрібно перевіряти за наслідками для пацієнтів.
Експериментальна участь таурину в RVD не дає змоги замінити корекцію натрію, реперфузію, контроль внутрішньочерепного тиску або інші заходи інтенсивної терапії.
Від осмоліту до сигналу між клітинами
Вихід таурину з астроцита створює локальну можливість для його дії на рецептори нейронів. За поєднанням позитивно зарядженої аміногрупи та негативно зарядженого кислого кінця таурин структурно нагадує гліцин і ГАМК. Ця подібність не робить його повноцінною заміною цих медіаторів: відповідь залежить від концентрації біля рецептора, складу субодиниць каналу, віку тканини й хлорного градієнта нейрона.
Порівняння фармакофорів допомагає пояснити дослідницьку гіпотезу: гліцин записують як H₃N⁺–CH₂–COO⁻, таурин — H₃N⁺–CH₂–CH₂–SO₃⁻, а ГАМК — H₃N⁺–(CH₂)₃–COO⁻. Важливі відстань і орієнтація заряджених груп, але схожий двовимірний малюнок не встановлює однакової ефективності агоніста або його концентрації біля рецептора in vivo.
Гліцинові рецептори (GlyR) — пентамерні канали, які пропускають переважно Cl⁻. У спинному мозку та стовбурі вони особливо важливі для гальмівної передачі; в інших ділянках трапляються також позасинаптичні пули. Таурин може активувати GlyR, а стрихнін блокує відповідний компонент рецепторної відповіді в експериментальній системі. Родина GlyR включає кілька α-субодиниць і β-субодиницю. Дорослі тканини й тканини, що розвиваються, відрізняються їхнім складом; неоднакова й локалізація рецепторів — від синапсів спинномозкових мотонейронів та інтернейронів до позасинаптичних рецепторів у деяких ділянках переднього мозку. Тому криву «концентрація — відповідь», отриману в культурі або на рекомбінантному рецепторі, не можна вважати нормою для всіх нейронів. Важливе й фармакологічне розділення: стрихнін вказує на компонент відповіді за участю GlyR, а блокування бікукуліном — на певні компоненти GABA_A; відсутність дії одного антагоніста не означає, що рецептори не взаємодіють у живій мережі.
Гефірин утримує синаптичні рецептори в комплексі з цитоскелетом. Але напрямок електричного ефекту не можна визначити фразою «Cl⁻ входить — мембрана гіперполяризується»: він залежить від рівноважного потенціалу Cl⁻. У зрілій мережі відкриття каналу часто спричиняє гіперполяризацію або шунтує збуджувальний струм; у тканині, що розвивається, або пошкодженій тканині хлорний градієнт може бути іншим.
Іонотропні рецептори GABA_A також пропускають Cl⁻. Класичні GABA_A-рецептори збираються з кількох типів субодиниць; комбінації α-, β-, γ- або δ-субодиниць змінюють локалізацію, кінетику й фармакологію. Для позасинаптичних варіантів із субодиницями α4/α6 і δ описано тривалий тонічний струм. Це відрізняється від фазичного синаптичного гальмування з коротким відкриттям каналу. Таламус, зубчасту звивину та зернисті клітини мозочка досліджували в різних роботах; їх не слід вважати єдиним однорідним пулом рецепторів.
В експериментах таурин активує деякі варіанти GABA_A, зокрема позасинаптичні рецептори таламуса, до складу яких входить δ-субодиниця. Такі рецептори підтримують тривалий тонічний струм, на відміну від короткої синаптичної відповіді. Пряме зв’язування таурину як агоніста за високої локальної концентрації та запропоноване алостеричне посилення дії ГАМК — різні гіпотези. Вивільнення з глії може створити короткочасну локальну концентрацію, вищу за середню в міжклітинній рідині, але для порівняння з кривою відповіді конкретного рецептора потрібні вимірювання мікрооточення. Експериментальну оцінку спорідненості не слід перетворювати на обов’язкову «терапевтичну концентрацію» після пероральної дози.
З окремих результатів для конкретних субодиниць не можна вивести єдину спорідненість, обов’язкове алостеричне посилення всіх GABA_A-рецепторів або однакову дію в усьому мозку. Дані про взаємодію з метаботропними GABA_B-рецепторами менш однозначні; канонічний шлях самого GABA_B включає Gi/o, зменшення цАМФ, відкриття GIRK-каналів і пригнічення пресинаптичного входу Ca²⁺. Пряму активацію цього шляху таурином слід розглядати як експериментальну гіпотезу, а не встановлену клінічну дію.
Чому про це говорять у зв’язку з епілепсією? У збудливій мережі повторні деполяризації та синхронізація клітин можуть спричиняти пароксизмальний деполяризаційний зсув із серією потенціалів дії. Відкриття Cl⁻-каналів зменшує вхідний опір мембрани: за того самого збуджувального струму зміна напруги менша, що виражає співвідношення ΔV = I × Rᵢₙ. Якщо умови сприятливі, це ускладнює досягнення порога Naᵥ-каналів і поширення розряду. GABA_B принципово відрізняється від GlyR і GABA_A: він не формує хлорної пори, а запускає G-білковий каскад. Його постсинаптична гілка може відкрити GIRK і спричинити повільну гіперполяризацію через K⁺; пресинаптична гілка зменшує надходження кальцію та вивільнення медіаторів. Ці добре описані ефекти активації GABA_B не доводять, що за звичайних умов таурин досягає рецептора в ефективній концентрації. Для GlyR і GABA_A первинне шунтування також може зменшувати амплітуду EPSP без обов’язкового зміщення мембрани до умовного значення −75 мВ, зображеного в початковій електрофізіологічній схемі.
Можливі зміни вивільнення глутамату, обміну ГАМК і роботи GAD65/67 досліджують окремо; без додаткових вимірювань їх не можна складати в гарантований «протисудомний комплекс» для пацієнта.
Судомні моделі з хімічними конвульсантами та кіндлінгом справді дають змогу перевіряти латентність і тяжкість нападів після введення таурину. Однак дози, шляхи введення й властивості мереж тварин не дорівнюють прийманню добавки людиною. Невеликі давні клінічні спостереження неоднорідні й не підтверджують стійкої ефективності монотерапії або додавання таурину до сучасного лікування рефрактерної епілепсії. Повідомлення про тимчасовий ефект не можна впевнено пояснити лише зниженням TauT без прямого вимірювання переносника. На підставі цих механізмів не можна змінювати протиепілептичне лікування.
Мітохондрії: дві різні розмови про таурин
Перша стосується кальцієвого перевантаження. Під час ішемії та сильного збудження нейрона Ca²⁺ входить через NMDA-рецептори й потенціалзалежні канали, зокрема L-типу. Мітохондрії захоплюють частину Ca²⁺ через уніпортер MCU. Якщо водночас бракує енергії та зростає оксидативний стрес, втрата мембранного потенціалу й перехід до високої проникності внутрішньої мембрани посилюють ушкодження. Кальцій активує кальпаїни, які розщеплюють білки цитоскелета, наприклад спектрин. За тяжкого ушкодження вивільнення цитохрому c пов’язане з програмою загибелі клітини.
У спокійній клітині вільний цитозольний Ca²⁺ підтримується на значно нижчому рівні, ніж позаклітинний. Тому навіть коротке відкриття NMDA-рецепторів або Caᵥ-каналів може різко змінити внутрішньоклітинний сигнал. За дефіциту енергії Na⁺/K⁺-АТФаза гірше підтримує натрієвий градієнт, а NCX може працювати у зворотному напрямку й додавати Ca²⁺ до цитозолю. PMCA потребує АТФ, щоб видаляти Ca²⁺. Через MCU мітохондрія тимчасово бере на себе частину навантаження, але ціна такого буферування зростає в міру виснаження енергетичного резерву. Поєднання Ca²⁺, активних форм кисню та падіння ΔΨₘ створює умови для переходу мембрани до високої проникності; руйнування іонного градієнта перешкоджає синтезу АТФ.
Кальпаїни — кальційзалежні протеази, а не окрема «програма таурину». Їх активація під час ушкодження змінює спектрин, білки мікротрубочок та інші структури дендритів і аксонів. Водночас співвідношення антиапоптотичних і проапоптотичних білків родини Bcl-2 впливає на цілісність зовнішньої мембрани мітохондрії та вихід цитохрому c. Ці гілки сходяться в ушкодженій клітині, але в експериментах їх вимірюють окремо; поліпшення одного маркера не доводить запобігання загибелі нейронів у людей.
У клітинних і тваринних моделях таурин пов’язували з меншим підвищенням цитозольного Ca²⁺, збереженням мітохондріального потенціалу й меншою активацією кальпаїнів. Обговорюють натрій-кальцієвий обмінник NCX, кальцієві насоси PMCA та білки родин Bcl-2 і Bax. Для NCX важливо розрізняти прямий режим виведення Ca²⁺ з клітини та зворотний режим за зміненого натрієвого градієнта: звичайний обмін переносить три Na⁺ проти одного Ca²⁺. Але з цих дослідів не можна зробити висновок, що таурин безпосередньо «закриває» NMDA-канал, завжди перемикає NCX або доведено блокує пору mPTP у людей. Молекулярний склад самої mPTP залишається предметом дискусії; циклофілін D — відомий регулятор чутливості пори, а не підстава описувати єдину остаточну конструкцію.
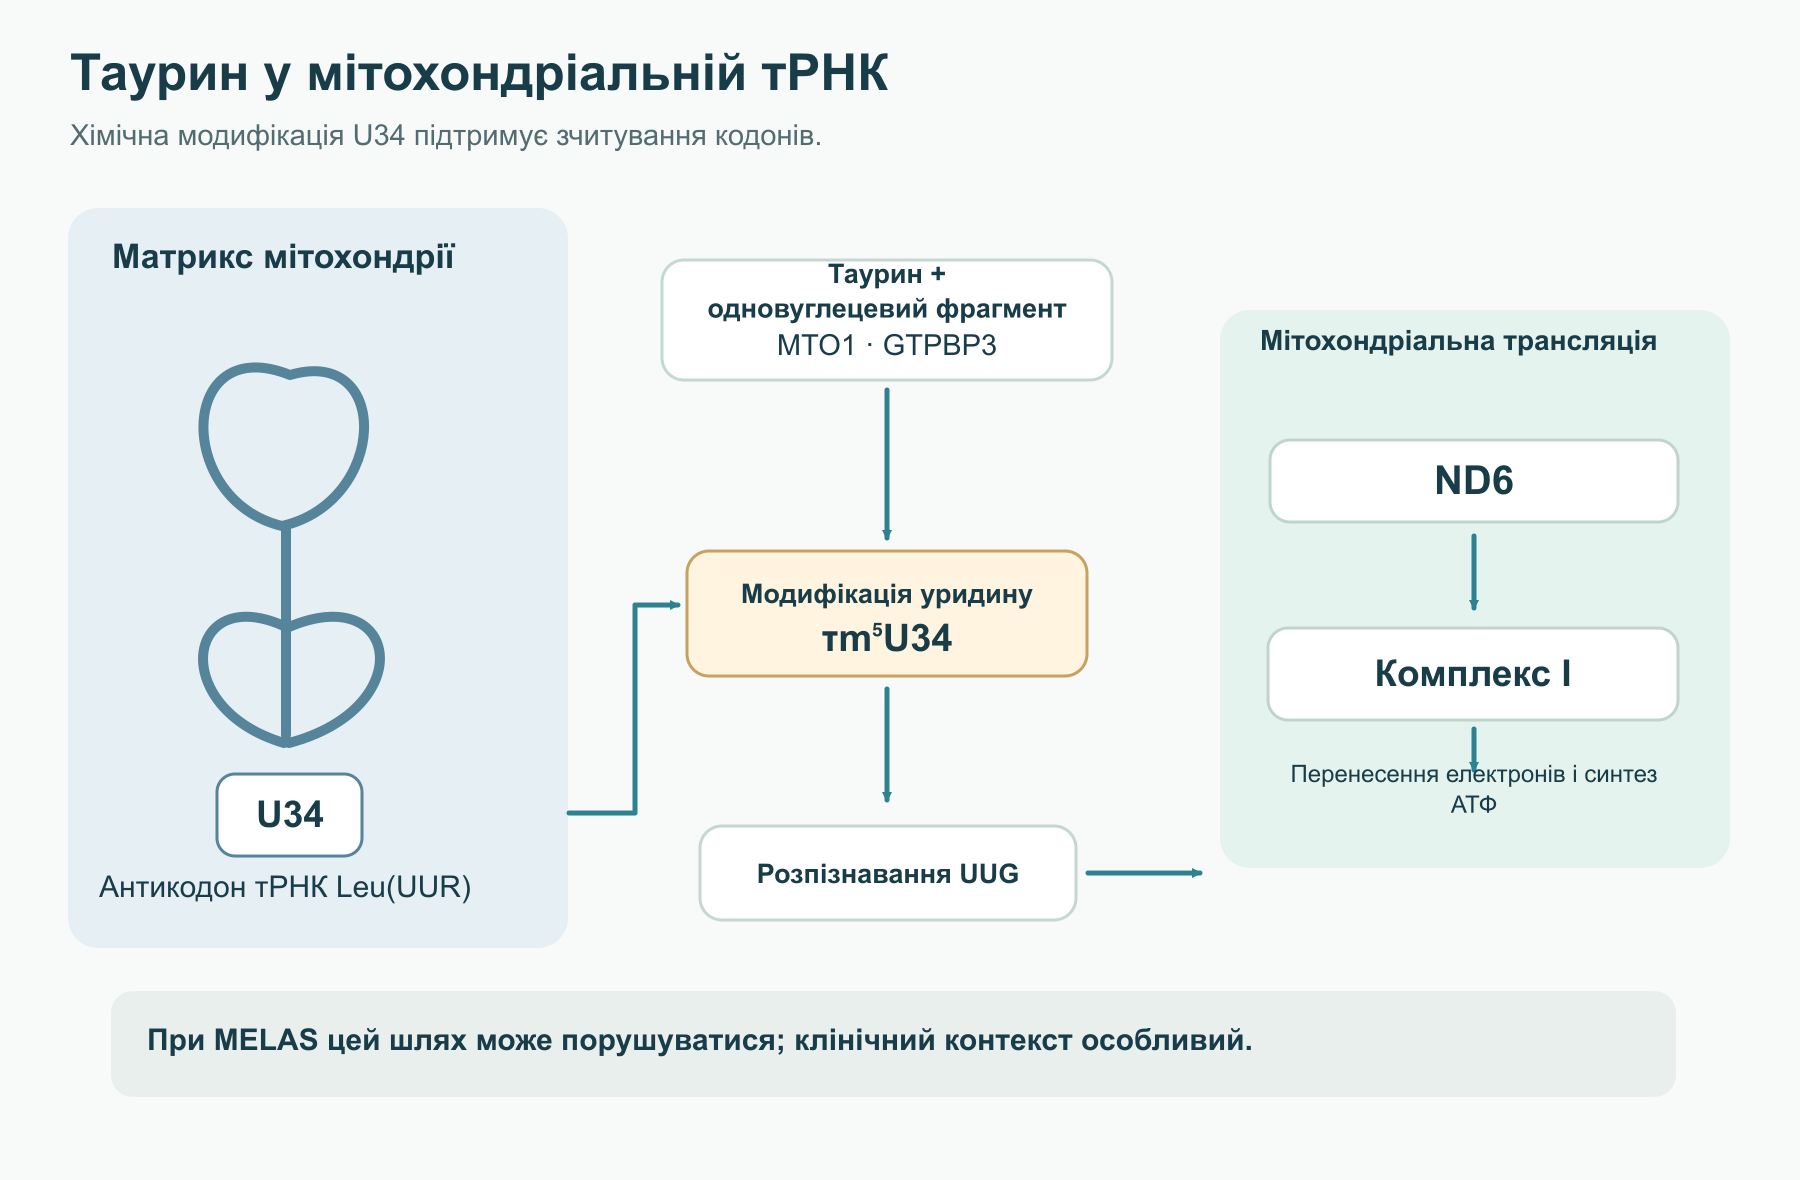
Друга розмова набагато конкретніша біохімічно: таурин бере участь у модифікації уридину антикодону деяких мітохондріальних тРНК. У позиції U34 тРНК лейцину Leu(UUR) утворюється 5-тауринометилуридин τm⁵U; для тРНК лізину описано 5-тауринометил-2-тіоуридин τm⁵s²U. У процесі беруть участь білки GTPBP3 і MTO1, а одновуглецевий фрагмент пов’язаний з обміном фолатів. Тут важливо не змішувати два типи хімії. У цитозолі таурин залишається вільним осмолітом; у тРНК він стає частиною ковалентно модифікованого нуклеозиду. «Wobble» позначає третю позицію кодону, яку розпізнає U34 антикодону. Зміна хімічної групи біля U34 може поліпшити розпізнавання певних кодонів; це впливає на швидкість і точність синтезу поліпептидів, закодованих мітохондріальним геномом. Для тРНК лейцину особливо обговорюють кодон UUG; для інших тауринзалежних тРНК контекст інший. Не можна стверджувати, що один немодифікований нуклеозид повністю припиняє синтез усього комплексу I в кожній клітині.
Модифікація допомагає розпізнавати потрібні кодони й підтримувати трансляцію білків, які мітохондрія виробляє сама. Мітохондріальний геном кодує 13 поліпептидів: сім для комплексу I (ND1–ND6 і ND4L), цитохром b комплексу III, COX1–3 комплексу IV та ATP6/ATP8 комплексу V.
Мутація m.3243A>G у мітохондріальному гені тРНК лейцину часто пов’язана із синдромом MELAS і порушенням модифікації wobble-уридину. У дослідженнях це пов’язують із менш ефективним зчитуванням UUG, зокрема під час синтезу субодиниці ND6, і з дисфункцією комплексу I. Ступінь порушення не зводиться до одного сталого відсотка втрати АТФ: мають значення частка мутантних копій мітохондріальної ДНК, тканина й вік. Мутація впливає на структуру тРНК, а не просто «блокує» доступ однієї молекули таурину. Частка мутантних мітохондріальних геномів у клітині — гетероплазмія — допомагає зрозуміти, чому тканинні прояви MELAS настільки різняться. Комплекс I отримує сім субодиниць із мітохондріального геному, тоді як інші компоненти дихального ланцюга частково кодуються в ядрі. Отже, зв’язок U34 → зчитування UUG → ND6 → комплекс I інформативний як конкретний шлях, а не як єдина причина всіх інсультоподібних епізодів.
Відкрите багатоцентрове дослідження фази III перевіряло високі дози таурину для запобігання інсультоподібним епізодам при MELAS. Це специфічна клінічна ситуація з власним протоколом, а не доказ універсального нейрозахисту або ефективності звичайних добавок при будь-якому захворюванні мозку.
Де закінчується модель і починається клініка
Сфера
Що показано
Чого поки не можна виснувати
Епілепсія
Вплив на рецептори й мережі; протисудомні результати в частині тваринних моделей; обмежені й неоднорідні спостереження в людей
Що таурин замінює протиепілептичні препарати або стабільно зменшує частоту нападів на тлі сучасного лікування
Ішемія й травма
Клітинна осморегуляція, кальцієві та мітохондріальні маркери; нейрозахист у низці експериментальних моделей
Що пероральний прийом запобігає набряку, зменшує вогнище інсульту або відновлює мозковий кровотік у людини
Діабетична енцефалопатія
Експериментальні зв’язки з оксидативним стресом, запаленням і порушенням обміну
Що таурин лікує когнітивні порушення при діабеті
Тинітус
Послаблення проявів у тваринній моделі; механістичний інтерес до гальмування слухових шляхів
Що аналогічний ефект встановлено в людей
MELAS
Відкрите клінічне дослідження при конкретному мітохондріальному синдромі
Що його результати поширюються на звичайне старіння або інші захворювання ЦНС
Діабетичну енцефалопатію обговорюють у зв’язку з хронічною гіперглікемією, судинними змінами, запаленням і змінами оксидативного обміну. В експериментальній тканині таурин може впливати на деякі з цих показників, але поняття «енцефалопатія» охоплює різні когнітивні й неврологічні фенотипи. Без визначеного результату, контрольної групи та клінічної вибірки неможливо оцінити, чи змінює втручання пам’ять або повсякденне функціонування пацієнта.
Під час ішемії разом із цитотоксичним набряком виникають запалення, ушкодження ендотелію та стрес реперфузії. У тваринних моделях досліджували розмір вогнища, цілісність гематоенцефалічного бар’єра, активність антиоксидантних шляхів, зокрема Nrf2/HO-1, і загибель нейронів. Ці показники пояснюють дослідницький інтерес, але не дають підстав призначати таурин замість доведеної допомоги при гострому інсульті. Така сама межа стосується травми й гіпонатріємії: осмотична поведінка клітини — частина патофізіології, а клінічне втручання має враховувати весь організм і темп корекції натрію.
Подібна обережність потрібна й у розмові про «додаткову» терапію епілепсії. Вальпроат, леветирацетам і бриварацетам, ламотриджин діють на різні мішені; схеми підбирають з урахуванням типу нападів, переносимості та взаємодій. Теоретична комплементарність GlyR/GABA_A і SV2A або натрієвих каналів ще не є клінічним доказом синергізму. Спостереження про захист від токсичності вальпроату в клітинних дослідах також не доводять профілактики ускладнень ліків у людей. Таурин не слід описувати як спосіб уникнути підвищення дози протиепілептичного препарату.
Тинітус особливо добре показує ризик надто прямого перенесення результатів моделі. Після ушкодження завитки слухові шляхи можуть змінювати підсилення сигналу: у дорсальному кохлеарному ядрі, нижніх горбках і слуховій корі досліджують спонтанну активність та зниження гальмування. У роботі Brozoski та співавторів додавання таурину послаблювало прояви тинітусу у тварин. Але суб’єктивний шум у людей неоднорідний; периферичне ушкодження, центральна адаптація та сприйняття звуку переплітаються. Ця модель сама по собі не встановлює дозу для людей і не доводить «відновлення GlyR у слуховій корі».
Надходження, дози й обережність
Склад добавки та шлях доставки мають значення: вільний таурин, харчова матриця та комбінований продукт не обов’язково дають однакову криву концентрації. Кишкове захоплення й канальцева реабсорбція використовують переносники; за високого надходження може змінитися частка таурину, що виводиться із сечею. Печінковий CYP450 не є основним шляхом перетворення таурину, але з цього не випливає відсутність фармакодинамічних взаємодій. Окремі показники біодоступності й Tₘₐₓ з вихідних досліджень не слід вважати властивістю кожної форми продукту без урахування умов дослідження.
Таурин всмоктується в кишківнику, потрапляє в кров і виводиться переважно нирками з регульованою канальцевою реабсорбцією. Плазмовий пік після разової дози не дорівнює тривалості змін у мозку: транспорт через ГЕБ є насичуваним і залежить від стану тканини. Дані про час до піку, біодоступність або період напіввиведення з окремих досліджень не слід перетворювати на універсальні параметри для всіх форм препарату й пацієнтів. Не слід також припускати, що пошкодження бар’єра завжди поліпшує доставку туди, де вона потрібна.
У вихідній літературі описані експериментальні дози та особливий лікувальний режим при MELAS, але для «профілактики набряку», епілепсії, посттравматичного стану, когнітивного «гомеостазу» й тинітусу немає доказових стандартних схем приймання. Тому таблиця нижче розділяє контексти, а не пропонує призначення.
Контекст
Коректне практичне тлумачення
Звичайне харчування
Споживання таурину залежить від раціону; його низький вміст у рослинній їжі сам по собі не доводить неврологічного дефіциту
Харчові добавки
У дослідженнях застосовували різні дози й тривалість; лабораторний вплив на рецептор не визначає ефективної пероральної дози
Епілепсія, інсульт, ЧМТ, гіпонатріємія
Самолікування та заміна призначеної терапії неприпустимі; клінічної схеми на основі механізмів VRAC або GlyR немає
MELAS
Режим високих доз належить до спеціалізованого нагляду й не переноситься на інші стани
Магній бере участь у вольтажзалежному блокуванні NMDA-рецептора, а піридоксаль-5-фосфат потрібен ферментам CSAD і GAD. Це реальні біохімічні зв’язки, але вони не доводять, що поєднання магнію, вітаміну B₆ та таурину посилює лікування нападів або запобігає ішемічному ушкодженню. L-теанін досліджують окремо; не можна стверджувати, що він гарантовано блокує AMPA/каїнатні рецептори в людей або має клінічний «синергізм» із таурином. Надлишок вітаміну B₆ може спричинити нейропатію, тому автоматичне додавання до таурину великих доз PLP особливо недоречне.
Історичні оцінки безпечного рівня споживання та дослідження високих доз при MELAS стосуються різних запитань. Жодне з них автоматично не встановлює «ідеального профілю» для довічного самостійного приймання або лікування набряку. Протипоказання й обмеження мають враховувати вік, вагітність, функцію нирок і супутні стани; для деяких груп даних мало. Комбінації з напоями, що містять кофеїн та інші складники, не можна оцінювати лише за таурином.
Таурин зазвичай добре переносили в досліджених умовах, але спостереження за обмеженою кількістю учасників і протягом обмеженого часу не доводять довічної безпеки будь-якої дози. Функція нирок, супутні захворювання й ліки потребують індивідуального оцінювання. Немає доведеного правила про обов’язкове посилення дії вальпроату, карбамазепіну, леветирацетаму, ламотриджину чи бензодіазепінів. За приймання літію зміни водно-сольового балансу важливі для контролю концентрації препарату; за гіпотонії або гіпотензивної терапії слід зважати на тиск і симптоми. Не можна оголошувати сумісність із усіма ліками лише тому, що таурин не є типовим субстратом CYP450.
Таурин — рідкісний приклад молекули, що поєднує клітинний об’єм, рецепторну фізіологію й точну хімічну модифікацію мітохондріальної тРНК. Найпевніші факти стосуються будови молекули, TauT, участі в осморегуляції та тауринзалежних нуклеозидів тРНК. Вплив на судомні мережі, набряк або слухові шляхи залишається важливим напрямом експериментів. Для більшості неврологічних станів клінічне питання відкрите: механізм пояснює, що перевіряти, але не замінює оцінювання користі й безпеки в пацієнтів.
Як підготовлено цей огляд
Це наративний огляд таурину в центральній нервовій системі, заснований на раніше зібраній добірці літератури. Редакційну роботу завершено 4 жовтня 2026 року. Систематичного пошуку за заздалегідь визначеним протоколом, метааналізу та формального оцінювання ризику упередженості кожного дослідження не проводили; добірка не претендує на вичерпне охоплення літератури.
Пояснення осморегуляції, рецепторних ефектів і мітохондріального метаболізму відокремлено від клінічних висновків. Для тлумачення кількісних результатів важливі вид, вік, тканина, шлях введення та метод вимірювання: показники, отримані на тваринах, не можна переносити на людей як діагностичні референтні значення. Клітинний захисний ефект або біологічно правдоподібний механізм самі по собі не підтверджують користі добавки при неврологічному захворюванні. Для оцінювання застосування потрібні дані щодо конкретної форми, популяції та клінічного результату.\n
Часті питання
Чому таурин виходить із набухлого астроцита?
У відповідь на зміну осмотичних умов клітина виводить іони й органічні осмоліти, зокрема таурин. Зменшення кількості розчинених частинок сприяє виходу води та відновленню об’єму.
Чи допомагає таурин при епілепсії?
Вплив на рецептори й результати тваринних моделей становлять дослідницький інтерес. Сучасної надійної клінічної схеми таурину для лікування епілепсії немає; він не замінює призначені препарати.
Чи можна застосовувати таурин від тинітусу?
Результат тваринної моделі тинітусу не можна переносити на людей. Ефективність і режим приймання для цієї мети не встановлені.
Як таурин пов’язаний із MELAS?
Він бере участь у модифікації мітохондріальної тРНК; при MELAS цей процес може порушуватися. Режим високих доз досліджували у спеціалізованому відкритому клінічному дослідженні, результати якого не можна переносити на інші хвороби.
Чи означає високий рівень таурину в крові високий рівень у мозку?
Ні. Проходження гематоенцефалічного бар’єра й захоплення клітинами залежать від регульованого, обмеженого транспорту TauT.