Taurina en el SNC: astrocitos, VRAC, GlyR y ARNt — NutriFit
Taurina en el cerebro: osmorregulación de astrocitos, receptores y mitocondrias
Cómo se desplaza la taurina entre astrocitos y neuronas, participa en la regulación del volumen celular y modifica el ARNt mitocondrial. Qué aspectos bioquímicos están establecidos y dónde las promesas clínicas aún superan los datos.
La taurina es útil para analizar la intersección de dos procesos que suelen estudiarse por separado. Cuando un astrocito se hincha, libera parte de la taurina junto con otras sustancias osmóticamente activas para recuperar su volumen. Fuera de la célula, la misma molécula puede interactuar con receptores neuronales. Es una conexión interesante entre el equilibrio hídrico y la señalización inhibitoria, pero no significa que tomar taurina vaya a detener el edema cerebral o una crisis epiléptica.
La taurina es ácido 2-aminoetanosulfónico. No se incorpora a las proteínas habituales, pero está presente en muchos tejidos como molécula libre. En el cerebro, su concentración intracelular es muy superior a la del líquido intersticial; esta reserva se mantiene mediante la síntesis, el transportador TauT y la retención celular. Seguiremos el recorrido de la molécula desde los aminoácidos azufrados hasta el astrocito, el receptor y el ARNt mitocondrial, y después veremos cuáles de estos mecanismos se han estudiado realmente en personas.
Una molécula que las células pueden acumular
La fórmula de la taurina es C₂H₇NO₃S y su masa molar es de aproximadamente 125,15 g/mol. A diferencia de los α-aminoácidos, su grupo amino está unido al segundo átomo de carbono desde el grupo ácido, y tiene un sulfonato en lugar de un carboxilato. A pH fisiológico predomina el ion dipolar H₃N⁺–CH₂–CH₂–SO₃⁻: el grupo amino tiene carga positiva y el sulfonato, negativa. Esta molécula polar se disuelve bien en agua y atraviesa mal las membranas lipídicas por difusión simple. Por eso, su movimiento depende de transportadores y canales, y no solo de la concentración a cada lado de la membrana.
Esta combinación de propiedades es importante para la osmorregulación. La taurina puede contribuir al número de partículas disueltas en el citosol sin sustituir a los iones que intervienen en la actividad enzimática ni alterar la estructura de las proteínas de forma tan marcada como algunos otros solutos. Sin embargo, ser un «osmólito compatible» no significa disponer de una reserva ilimitada: su cantidad depende del aporte, la síntesis, la recaptación y la reabsorción renal.
Cómo se forma y se transporta la taurina
La vía principal comienza con aminoácidos azufrados. A través del ciclo de metilación, la metionina da lugar a homocisteína; la vía de transulfuración, con participación de la cistationina β-sintasa (CBS) y la cistationina γ-liasa (CSE), conduce a la cisteína. La cisteína dioxigenasa (CDO) añade oxígeno al azufre de la cisteína y forma ácido cisteína sulfínico. Después, la descarboxilasa del ácido cisteína sulfínico (CSAD), que requiere piridoxal-5′-fosfato —la forma activa de la vitamina B₆—, elimina CO₂ y produce hipotaurina. La oxidación de la hipotaurina completa la síntesis de taurina:
Existe también una vía adicional: la degradación de la coenzima A produce panteteína y luego cisteamina; la cisteamina dioxigenasa (ADO) la oxida a hipotaurina. La contribución de estas vías varía entre tejidos y especies. La actividad de CSAD en humanos es inferior a la de muchos modelos animales utilizados en experimentación, pero esto no permite deducir automáticamente la proporción exacta de taurina dietética y endógena ni concluir que la taurina sea absolutamente esencial para todos los adultos. Es especialmente importante evaluar el aporte y el metabolismo en bebés prematuros y en situaciones nutricionales específicas.
La taurina se encuentra sobre todo en alimentos de origen animal, como el pescado y los mariscos; los alimentos vegetales suelen aportar poca. Sin embargo, que esté presente en la dieta no indica cuánto llegará al cerebro. TauT, codificado por SLC6A6, capta taurina junto con Na⁺ y Cl⁻; la estequiometría que suele describirse es 2 Na⁺ : 1 Cl⁻ : 1 taurina. La actividad de la Na⁺/K⁺-ATPasa mantiene el gradiente de sodio que hace posible su acumulación. La hipotaurina y la β-alanina compiten por el transportador. Durante el estrés hipertónico, el factor NFAT5 favorece la expresión de genes de acumulación de osmólitos, incluido SLC6A6; la regulación de la posición de TauT en la membrana también modifica la velocidad de captación.
La barrera hematoencefálica hace que los depósitos sistémicos y locales no sean equivalentes. TauT se encuentra en el endotelio de los capilares cerebrales y en células del tejido nervioso, pero el transporte es limitado y está regulado a ambos lados de la barrera. Por tanto, un aumento de taurina plasmática después de tomar un suplemento no equivale al mismo aumento en un astrocito o en un conjunto neuronal concreto.
En esta cadena existe una bifurcación bioquímica importante. El ácido cisteína sulfínico no tiene por qué convertirse en taurina: puede participar en otras vías del metabolismo del azufre. Por tanto, la actividad de CDO por sí sola no determina la producción final de taurina; importan la disponibilidad del sustrato, la CSAD dependiente de PLP y el estado del tejido. La hipotaurina no es solo un producto intermedio: su oxidación puede acompañar reacciones con oxidantes. Pero sería incorrecto convertir esta observación en una afirmación general de que la taurina de la dieta atrapa directamente «todos los radicales libres» del cerebro.
Dónde se encuentra la reserva
Las concentraciones dependen de la edad, la especie, la región cerebral y el método de medición. Los estudios experimentales describen un contenido mayor en algunas regiones del cerebelo y del sistema olfativo, y distribuciones distintas en la corteza, el cuerpo estriado, el hipocampo, el tronco encefálico y la médula espinal. Comparar micromoles por gramo de tejido húmedo con milimoles por litro de agua intracelular exige conocer la composición celular; no ofrece una tabla sencilla de valores «normales» universales para las personas.
Compartimento
Qué se mide
Cómo interpretar el resultado
Astrocitos y neuronas
Taurina libre intracelular, a menudo en el rango milimolar en sistemas experimentales
Una reserva amplia para la respuesta osmótica; el valor cambia según la célula, la edad y el estado
Líquido intersticial
Un depósito mucho menor, normalmente micromolar
Incluso una pequeña liberación de la reserva celular puede cambiar la concentración local
Plasma y endotelio de la barrera hematoencefálica
Sustrato disponible para TauT
El nivel en sangre no mide directamente la concentración en el cerebro
El patrón regional resulta interesante más allá del nivel medio. En la corteza cerebelosa, la taurina se detecta en las células de Purkinje y en las granulares; en el sistema olfativo, en las células mitrales y las interneuronas. El cuerpo estriado, el hipocampo, la corteza sensorial, el tronco encefálico y la médula espinal difieren en la proporción de glía, la madurez neuronal y la composición de los circuitos inhibitorios. Los rangos tabulados de cada región no deben trasladarse a una guía clínica de referencia: las mediciones comparativas de tejidos de distintas especies y métodos no equivalen a un único estándar para sangre, espectroscopia por resonancia magnética o líquido cefalorraquídeo humanos.
TauT no es el único regulador del depósito celular. Si el entorno se vuelve hipertónico, NFAT5 ayuda a aumentar la acumulación de osmólitos orgánicos para evitar la deshidratación celular; cuando la célula se hincha, la prioridad pasa a ser su liberación. La fosforilación y el desplazamiento del transportador entre la membrana y los compartimentos intracelulares pueden cambiar la velocidad de captación, aunque el efecto concreto de PKC y PKA depende del sistema celular estudiado. Ni siquiera los valores de afinidad de TauT citados con frecuencia permiten concluir automáticamente que el transportador «siempre está saturado» con las concentraciones sanguíneas habituales: la velocidad también depende del gradiente iónico, la densidad de transportadores, la dirección del transporte y la disponibilidad de taurina a cada lado de la barrera hematoencefálica.
La diferencia entre el medio intracelular y el extracelular explica por qué la taurina puede salir rápidamente de una célula hinchada siguiendo su gradiente por una vía abierta. También explica el límite de la intervención dietética: el aumento en sangre todavía debe atravesar la barrera y ser captado por la célula pertinente.
Qué ocurre cuando se hincha un astrocito
Los astrocitos rodean los capilares cerebrales con sus pies perivasculares. En esas membranas se concentra el canal de agua AQP4, por lo que los cambios osmóticos se reflejan rápidamente en el volumen celular. En la rígida cavidad craneal, el volumen conjunto del tejido, la sangre y el líquido cefalorraquídeo es limitado; una hinchazón importante del tejido puede elevar peligrosamente la presión intracraneal. Este peligro clínico es real, pero los resultados obtenidos en un astrocito aislado no demuestran que un suplemento de taurina prevenga la herniación o preserve la perfusión en un paciente.
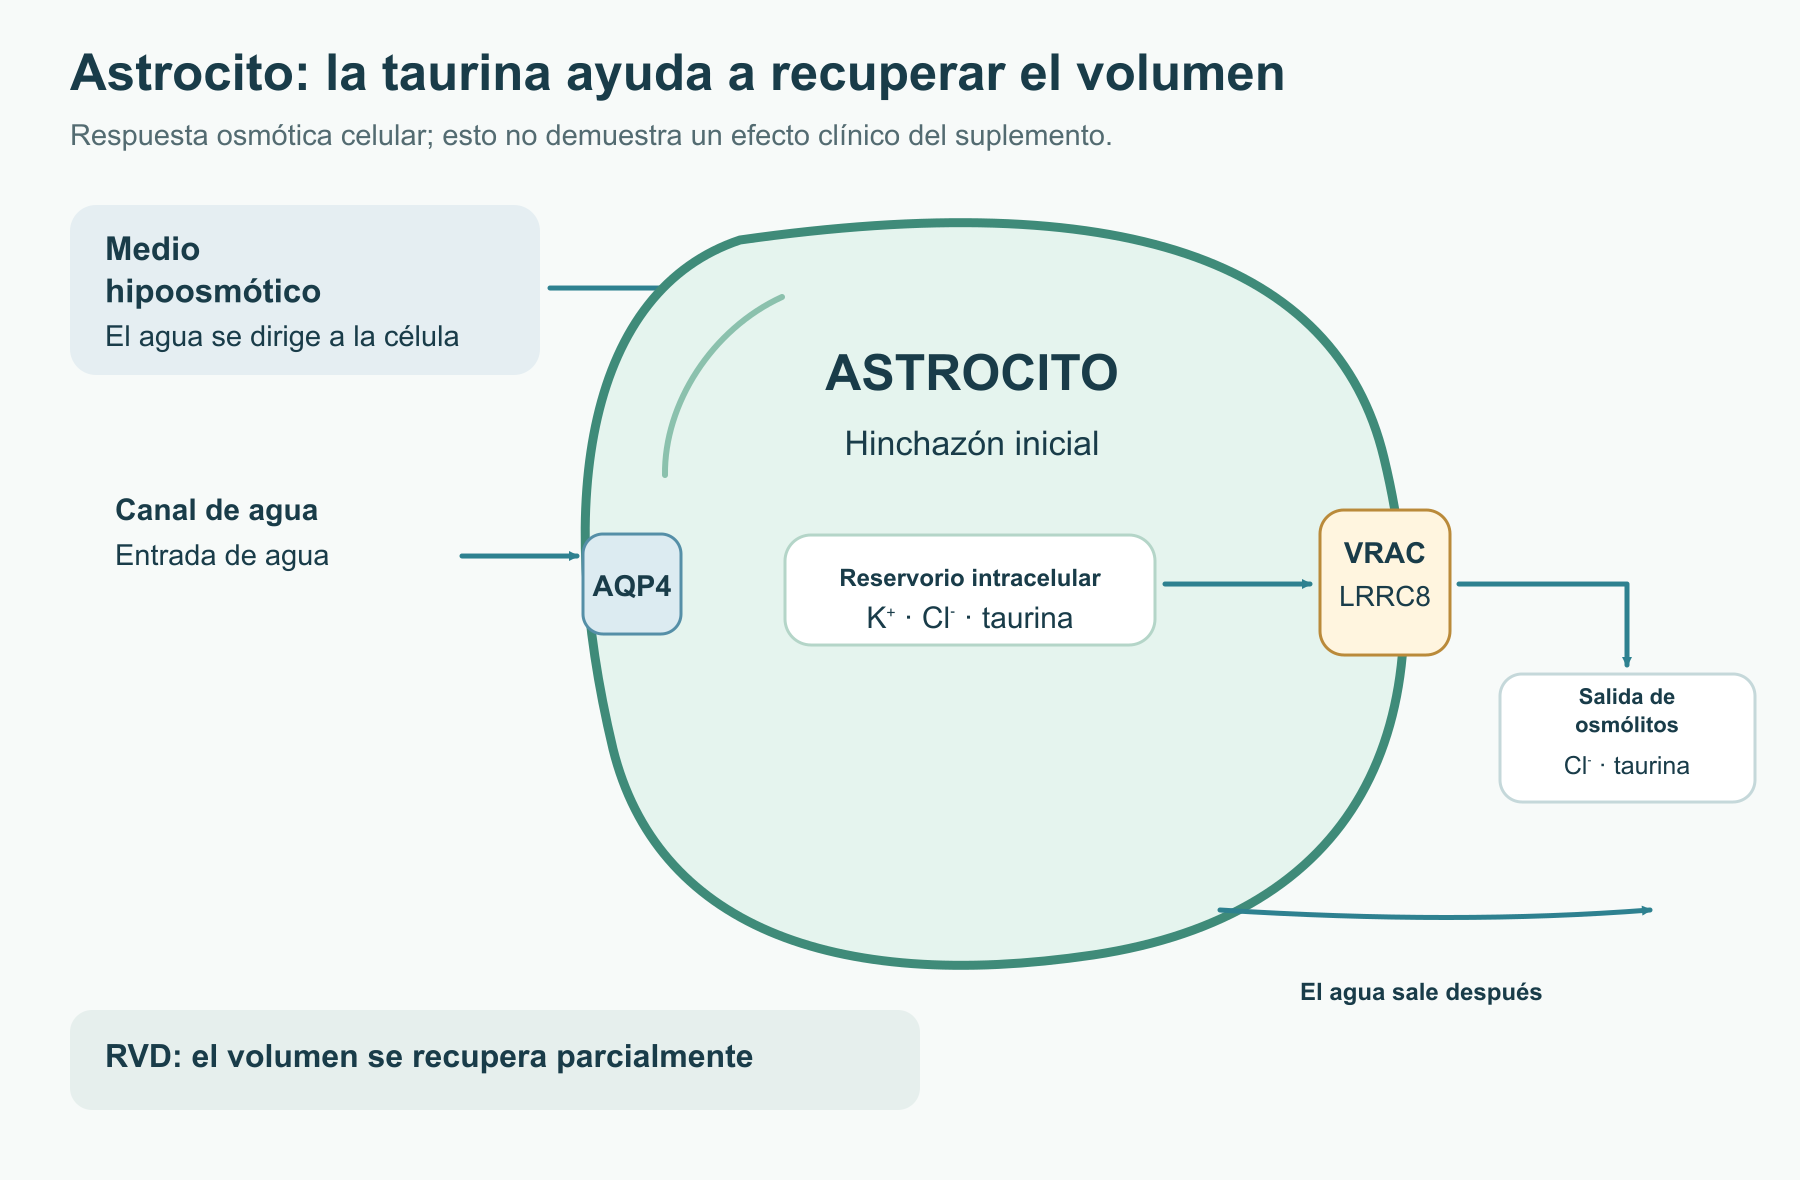
Cuando el medio extracelular se vuelve menos concentrado, el agua entra en el astrocito. La célula responde con una disminución reguladora del volumen (RVD): libera K⁺ y Cl⁻, además de osmólitos orgánicos como la taurina. La pérdida de partículas disueltas reduce la atracción osmótica del agua hacia el citosol; si se conserva la capacidad de adaptación, parte del agua sale y el volumen celular disminuye. Esto no «apaga» el edema: el resultado depende de la causa, la duración y la gravedad del trastorno, así como del estado de las bombas iónicas y de las células vecinas.
Los pies de los astrocitos que contienen AQP4 se sitúan junto a los capilares, pero el agua se desplaza a favor de un gradiente osmótico; AQP4 no la «bombea». Una caída del sodio plasmático es un ejemplo de alteración hipoosmótica citado en la literatura. Sin embargo, la concentración de sodio por sí sola no determina la velocidad ni la gravedad del edema cerebral: también importan la osmolalidad, la duración del proceso, la adaptación celular y otros solutos. En la hiponatremia crónica, las células van perdiendo osmólitos; restaurar demasiado rápido la osmolalidad extracelular puede causar otro mecanismo de lesión. Esta transición muestra por qué la RVD no es una instrucción sencilla de «añadir taurina».
Una vía de salida de taurina se relaciona con el canal aniónico regulado por volumen VRAC. Su subunidad obligatoria LRRC8A forma heterómeros con otras proteínas de la familia LRRC8; LRRC8D es especialmente importante para la permeabilidad a varios compuestos orgánicos. La arquitectura del canal y la selectividad por sustratos dependen de la composición del heterómero, y su apertura se relaciona no solo con el estiramiento de la membrana, sino también con cambios en la fuerza iónica intracelular y en las señales celulares. Las distintas subunidades LRRC8C, LRRC8D y LRRC8E modifican la permeabilidad del heterómero; destacar la función de LRRC8D para compuestos orgánicos no significa que todos los canales de todos los astrocitos tengan la misma composición. La caracterización electrofisiológica de VRAC como corriente aniónica y la observación de la salida de una molécula que, como ion dipolar, es neutra en conjunto describen propiedades distintas de un poro permeable. Los canales de potasio, incluidos los canales BK/IK y KCNQ estudiados, y las vías de salida del cloruro también contribuyen a la pérdida de volumen. Las corrientes iónicas mantienen la electroneutralidad, mientras que la reducción del número total de partículas genera la fuerza impulsora del movimiento de agua.
En los experimentos, la pérdida de taurina de una célula hinchada puede adelantarse a su recaptación por TauT. Cuando se restablecen las condiciones, la célula debe reponer su reserva de osmólitos.
La isquemia es más compleja que el estrés hipotónico. La falta de ATP debilita la Na⁺/K⁺-ATPasa y las bombas de calcio; el Na⁺ y otros iones se acumulan en la célula y, después, entra agua. Las prolongaciones astrocíticas hinchadas pueden estrechar el espacio extracelular y afectar a la microcirculación. En el edema vasogénico, en cambio, se altera la barrera y sale de los vasos líquido con componentes del plasma. Estos mecanismos suelen coexistir en el ictus o el traumatismo. El fenómeno microcirculatorio de no-reflow tras la isquemia tiene varios factores: hinchazón celular, lesión endotelial, cambios en los pericitos y microtrombos. La participación del astrocito no demuestra que una reserva adecuada de taurina mantenga abiertos los capilares o detenga la progresión de la penumbra al infarto. El traumatismo craneoencefálico y la hemorragia subaracnoidea incluyen además factores vasculares, inflamatorios y mecánicos. Mantener el espacio extracelular puede facilitar la difusión, pero la importancia clínica de esta vía debe evaluarse según los desenlaces de los pacientes.
La participación experimental de la taurina en la RVD no permite sustituir el manejo del sodio, la reperfusión, el control de la presión intracraneal ni otras medidas de cuidados intensivos.
Del osmólito a la señal entre células
La salida de taurina del astrocito crea una posibilidad local para que la molécula actúe sobre receptores neuronales. La taurina se parece estructuralmente a la glicina y al GABA por la combinación de un grupo amino con carga positiva y un extremo ácido con carga negativa. Esta similitud no la convierte en un sustituto pleno de estos neurotransmisores: la respuesta depende de su concentración junto al receptor, de la composición de subunidades del canal, de la edad del tejido y del gradiente de cloruro de la neurona.
La comparación de farmacóforos ayuda a explicar la hipótesis de investigación: la glicina se representa como H₃N⁺–CH₂–COO⁻, la taurina como H₃N⁺–CH₂–CH₂–SO₃⁻ y el GABA como H₃N⁺–(CH₂)₃–COO⁻. Importan la distancia y la orientación de los grupos cargados, pero un dibujo bidimensional parecido no establece una eficacia agonista igual ni la concentración que alcanza el receptor in vivo.
Los receptores de glicina (GlyR) son canales pentaméricos que conducen principalmente Cl⁻. Son especialmente importantes para la transmisión inhibitoria en la médula espinal y el tronco encefálico; también hay grupos extrasinápticos en otras regiones. La taurina puede activar GlyR, mientras que la estricnina bloquea el componente receptor correspondiente en sistemas experimentales. La familia GlyR incluye varias subunidades α y una subunidad β. Los tejidos adultos y en desarrollo difieren en su composición de subunidades, y la distribución de los receptores también varía: desde las sinapsis de motoneuronas e interneuronas espinales hasta receptores extrasinápticos en ciertas regiones del prosencéfalo. Por ello, una curva de «concentración-respuesta» obtenida en un cultivo o en un receptor recombinante no puede considerarse una norma para todas las neuronas. También importa la separación farmacológica: la estricnina señala un componente GlyR de la respuesta, mientras que el bloqueo por bicuculina apunta a ciertos componentes GABA_A; que un antagonista no tenga efecto no significa que los receptores no interactúen en una red viva.
La gefirina ancla los receptores sinápticos en un complejo con el citoesqueleto. Sin embargo, el efecto eléctrico no puede definirse con la frase «entra Cl⁻, así que la membrana se hiperpolariza»: depende del potencial de equilibrio del Cl⁻. En una red madura, la apertura del canal suele producir hiperpolarización o derivar la corriente excitadora; en tejidos en desarrollo o dañados, el gradiente de cloruro puede ser distinto.
Los receptores ionotrópicos GABA_A también conducen Cl⁻. Los receptores GABA_A clásicos se ensamblan a partir de varios tipos de subunidades; la combinación de subunidades α, β, γ o δ cambia su localización, cinética y farmacología. Se ha descrito que variantes extrasinápticas con subunidades α4/α6 y δ mantienen una corriente tónica prolongada. Esto difiere de la inhibición sináptica fásica, en la que el canal se abre brevemente. El tálamo, el giro dentado y las células granulares del cerebelo se han estudiado en trabajos distintos; no deben tratarse como un único grupo uniforme de receptores.
En experimentos, la taurina activa algunas variantes GABA_A, incluidos receptores extrasinápticos del tálamo que contienen la subunidad δ. Estos receptores mantienen una corriente tónica prolongada, a diferencia de la respuesta sináptica breve. La unión directa de la taurina como agonista a una concentración local alta y la propuesta de una potenciación alostérica de la acción del GABA son hipótesis distintas. La liberación desde la glía podría generar concentraciones locales breves superiores al promedio del líquido intersticial, pero hacen falta mediciones del microentorno para compararlas con la curva de respuesta de un receptor concreto. Una estimación experimental de afinidad no debe transformarse en una «concentración terapéutica» necesaria tras una dosis oral.
Los resultados obtenidos con subunidades concretas no permiten concluir que exista una afinidad universal, una potenciación alostérica obligatoria de todos los receptores GABA_A o el mismo efecto en todo el cerebro. Las pruebas de interacción con los receptores metabotrópicos GABA_B son menos claras; la vía canónica del propio GABA_B incluye Gi/o, reducción del AMPc, apertura de canales GIRK e inhibición de la entrada presináptica de Ca²⁺. La activación directa de esta vía por taurina debe considerarse una hipótesis experimental, no un efecto clínico establecido.
¿Por qué se habla de esto en relación con la epilepsia? En una red excitable, las despolarizaciones repetidas y la sincronización celular pueden generar un desplazamiento despolarizante paroxístico seguido de una serie de potenciales de acción. La apertura de canales de Cl⁻ reduce la resistencia de entrada de la membrana: para una misma corriente excitadora, el cambio de voltaje es menor, como expresa la relación ΔV = I × Rᵢₙ. Si las condiciones lo permiten, esto dificulta alcanzar el umbral de los canales Naᵥ y propagar la descarga. Los receptores GABA_B son fundamentalmente distintos de GlyR y GABA_A: en lugar de formar un poro de cloruro, inician una cascada de proteína G. Su rama postsináptica puede abrir GIRK y causar una hiperpolarización lenta mediante K⁺; la rama presináptica reduce la entrada de calcio y la liberación de neurotransmisores. Estos efectos bien descritos de la activación de GABA_B no demuestran que la taurina alcance habitualmente el receptor a una concentración eficaz. En GlyR y GABA_A, la derivación primaria también puede reducir la amplitud del EPSP sin llevar necesariamente la membrana hacia el valor ilustrativo de −75 mV mostrado en el esquema electrofisiológico original.
Los posibles cambios en la liberación de glutamato, el recambio de GABA y la actividad de GAD65/67 se estudian por separado; sin mediciones adicionales, no deben combinarse en un «paquete anticonvulsivo» garantizado para el paciente.
Los modelos de crisis con convulsivantes químicos y kindling permiten evaluar la latencia y la gravedad de las crisis tras administrar taurina. Sin embargo, las dosis, las vías de administración y las propiedades de las redes animales no equivalen a tomar un suplemento en personas. Las pequeñas observaciones clínicas antiguas son heterogéneas y no confirman una eficacia sostenida como monoterapia o como complemento al tratamiento moderno de la epilepsia farmacorresistente. Los informes de un efecto transitorio no pueden explicarse con seguridad solo por una reducción de TauT sin medir directamente el transportador. Estos mecanismos no justifican cambiar el tratamiento antiepiléptico.
Mitocondrias: dos conversaciones distintas sobre la taurina
La primera trata de la sobrecarga de calcio. Durante la isquemia y la excitación neuronal intensa, el Ca²⁺ entra por los receptores NMDA y por canales dependientes del voltaje, incluidos los de tipo L. Las mitocondrias captan parte del Ca²⁺ mediante el uniportador MCU. Si además escasea la energía y aumenta el estrés oxidativo, la pérdida del potencial de membrana y el paso a una elevada permeabilidad de la membrana interna amplifican el daño. El calcio activa calpaínas, que escinden proteínas del citoesqueleto como la espectrina. En lesiones graves, la liberación de citocromo c se relaciona con el programa de muerte celular.
En una célula en reposo, el Ca²⁺ libre del citosol se mantiene muy por debajo de su nivel extracelular. Por eso, incluso la apertura breve de receptores NMDA o canales Caᵥ puede cambiar bruscamente la señal intracelular. Durante el déficit energético, la Na⁺/K⁺-ATPasa mantiene peor el gradiente de sodio, y NCX puede funcionar en sentido inverso, añadiendo Ca²⁺ al citosol. PMCA necesita ATP para eliminar Ca²⁺. Mediante MCU, las mitocondrias absorben temporalmente parte de la carga, pero el coste de este amortiguamiento aumenta a medida que se agota la reserva energética. La combinación de Ca²⁺, especies reactivas de oxígeno y una caída de ΔΨₘ crea condiciones para que la membrana pase a tener una permeabilidad elevada; el colapso del gradiente iónico dificulta la síntesis de ATP.
Las calpaínas son proteasas dependientes del calcio, no un «programa de taurina» independiente. Su activación durante una lesión altera la espectrina, proteínas de microtúbulos y otras estructuras de dendritas y axones. A la vez, el equilibrio entre proteínas antiapoptóticas y proapoptóticas de la familia Bcl-2 influye en la integridad de la membrana mitocondrial externa y en la liberación de citocromo c. Estas vías convergen en la célula lesionada, pero se miden por separado en experimentos; mejorar un marcador no demuestra que se haya evitado la muerte neuronal en personas.
En modelos celulares y animales, la taurina se ha asociado con un menor aumento del Ca²⁺ citosólico, la conservación del potencial mitocondrial y una menor activación de calpaínas. Se estudian el intercambiador sodio-calcio NCX, las bombas de calcio PMCA y las proteínas de las familias Bcl-2 y Bax. En el caso de NCX, es importante distinguir el modo directo, que expulsa Ca²⁺ de la célula, del modo inverso cuando cambia el gradiente de sodio: el intercambio habitual mueve tres Na⁺ por cada Ca²⁺. Estos experimentos no demuestran que la taurina «cierre» directamente los canales NMDA, cambie siempre el modo de NCX o bloquee de forma demostrada el poro mPTP en personas. La composición molecular del propio mPTP sigue siendo objeto de debate; la ciclofilina D es un regulador conocido de la sensibilidad del poro, no un motivo para describir una única estructura definitiva.
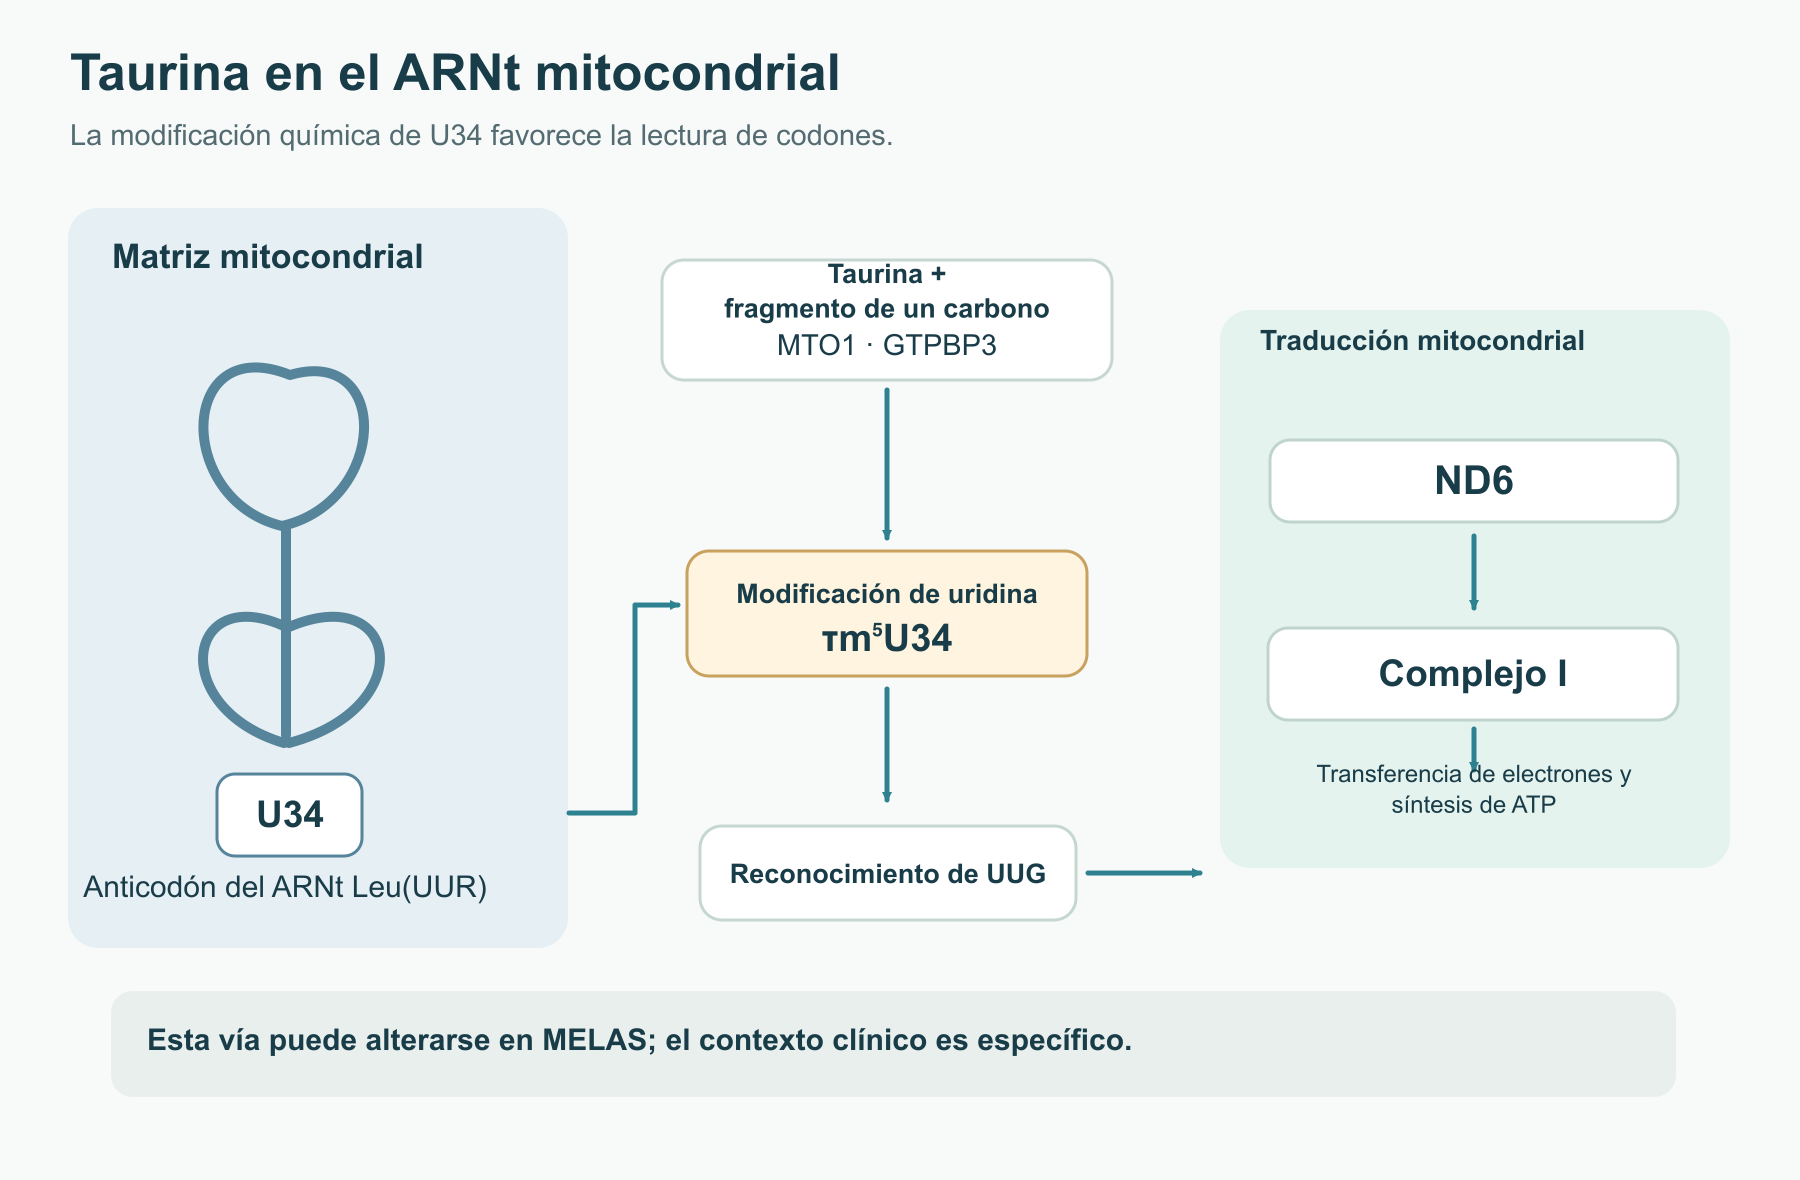
La segunda conversación es mucho más específica desde el punto de vista bioquímico: la taurina participa en la modificación del uridino del anticodón de algunos ARNt mitocondriales. En la posición U34, el ARNt^Leu(UUR) se modifica a 5-taurinometiluridina (τm⁵U); en el ARNt^Lys se ha descrito 5-taurinometil-2-tiouridina (τm⁵s²U). En el proceso participan las proteínas GTPBP3 y MTO1, y el fragmento de un carbono está relacionado con el metabolismo del folato. Aquí es importante no confundir dos tipos de química. En el citosol, la taurina permanece libre como osmólito; en el ARNt forma parte de un nucleósido modificado covalentemente. «Wobble» se refiere a la tercera posición del codón, reconocida por U34 del anticodón. Cambiar el grupo químico de U34 puede mejorar el reconocimiento de codones determinados, lo que afecta a la velocidad y precisión de la traducción de polipéptidos codificados por el genoma mitocondrial. Se presta especial atención al codón UUG en el caso del ARNt^Leu; otros ARNt dependientes de taurina tienen otro contexto. No sería correcto afirmar que un solo nucleósido no modificado detiene por completo la síntesis de todo el Complejo I en todas las células.
La modificación ayuda a reconocer los codones correspondientes y sostiene la traducción de proteínas que producen las propias mitocondrias. El genoma mitocondrial codifica 13 polipéptidos: siete del Complejo I (ND1–ND6 y ND4L), el citocromo b del Complejo III, COX1–3 del Complejo IV y ATP6/ATP8 del Complejo V.
La mutación m.3243A>G en el gen mitocondrial del ARNt^Leu se asocia con frecuencia al síndrome MELAS y a una alteración de la modificación del uridino wobble. En los estudios se relaciona con una lectura menos eficiente de UUG, incluida la síntesis de la subunidad ND6, y con disfunción del Complejo I. El grado de alteración no se reduce a un porcentaje fijo de pérdida de ATP: importan la proporción de copias mutantes de ADN mitocondrial, el tejido y la edad. La mutación afecta a la estructura del ARNt; no «bloquea» simplemente el acceso de una molécula de taurina. La proporción de genomas mitocondriales mutantes en una célula —heteroplasmia— ayuda a entender por qué las manifestaciones tisulares de MELAS varían tanto. El Complejo I recibe siete subunidades del genoma mitocondrial, mientras que otros componentes de la cadena respiratoria están codificados parcialmente en el núcleo. Por tanto, la secuencia U34 → lectura de UUG → ND6 → Complejo I es informativa como vía específica, no como causa única de todos los episodios similares a un ictus.
Un estudio multicéntrico abierto de fase III evaluó dosis altas de taurina para prevenir episodios similares a un ictus en MELAS. Se trata de un contexto clínico específico con su propio protocolo, no de una prueba de neuroprotección universal ni de eficacia de los suplementos habituales para cualquier trastorno cerebral.
Dónde termina el modelo y empieza la evidencia clínica
Área
Qué se ha mostrado
Qué todavía no puede concluirse
Epilepsia
Efectos sobre receptores y redes; resultados anticonvulsivos en algunos modelos animales; observaciones limitadas y heterogéneas en personas
Que la taurina sustituya a los fármacos antiepilépticos o reduzca de forma sostenida las crisis con el tratamiento actual
Isquemia y traumatismo
Osmorregulación celular, marcadores de calcio y mitocondriales; neuroprotección en varios modelos experimentales
Que la ingesta oral prevenga el edema, reduzca una lesión por ictus o restaure el flujo sanguíneo cerebral en personas
Encefalopatía diabética
Asociaciones experimentales con el estrés oxidativo, la inflamación y alteraciones metabólicas
Que la taurina trate el deterioro cognitivo en la diabetes
Tinnitus
Menos manifestaciones en un modelo animal; interés mecanístico en la inhibición de las vías auditivas
Que se haya establecido un efecto similar en personas
MELAS
Un estudio clínico abierto en un síndrome mitocondrial concreto
Que sus resultados sean aplicables al envejecimiento normal o a otros trastornos del SNC
La encefalopatía diabética se analiza en relación con la hiperglucemia crónica, los cambios vasculares, la inflamación y las alteraciones del metabolismo oxidativo. En tejido experimental, la taurina puede modificar algunas de estas medidas, pero «encefalopatía» abarca distintos fenotipos cognitivos y neurológicos. Sin definir el desenlace, el grupo de control y la muestra clínica, no se puede evaluar si la intervención cambia la memoria o el funcionamiento cotidiano del paciente.
Durante la isquemia, junto con el edema citotóxico aparecen inflamación, lesión endotelial y estrés de reperfusión. En modelos animales se han estudiado el tamaño de la lesión, la integridad de la barrera hematoencefálica, la actividad de vías antioxidantes como Nrf2/HO-1 y la muerte neuronal. Estos indicadores explican el interés investigador, pero no justifican prescribir taurina en lugar de la atención establecida para el ictus agudo. El mismo límite se aplica al traumatismo y a la hiponatremia: el comportamiento osmótico celular es una parte de la fisiopatología, mientras que la intervención clínica debe tener en cuenta el organismo completo y la velocidad de corrección del sodio.
También hace falta prudencia al hablar de tratamiento «adyuvante» de la epilepsia. El valproato, el levetiracetam y el brivaracetam, y la lamotrigina actúan sobre dianas distintas; las pautas se seleccionan según el tipo de crisis, la tolerabilidad y las interacciones. La complementariedad teórica entre GlyR/GABA_A y SV2A o los canales de sodio no constituye evidencia clínica de sinergia. Las observaciones de protección frente a la toxicidad del valproato en experimentos celulares tampoco demuestran que se prevengan complicaciones farmacológicas en personas. No se debe describir la taurina como una forma de evitar aumentar la dosis de un antiepiléptico.
El tinnitus ilustra especialmente bien el riesgo de extrapolar un modelo de manera demasiado directa. Tras una lesión coclear, las vías auditivas pueden cambiar la amplificación de la señal: se estudian la actividad espontánea y la disminución de la inhibición en el núcleo coclear dorsal, el colículo inferior y la corteza auditiva. En el trabajo de Brozoski y colaboradores, la suplementación con taurina redujo manifestaciones de tinnitus en animales. Pero el tinnitus subjetivo en personas es heterogéneo; se entrelazan la lesión periférica, la adaptación central y la percepción del sonido. Este modelo por sí solo no determina una dosis para personas ni demuestra una «restauración de GlyR en la corteza auditiva».
Aporte, dosis y precauciones
La composición del suplemento y la vía de administración importan: la taurina libre, una matriz alimentaria y un producto combinado no necesariamente producen la misma curva de concentración. La captación intestinal y la reabsorción tubular utilizan transportadores; con un aporte alto puede cambiar la proporción de taurina excretada en la orina. CYP450 hepático no es una vía principal de transformación de la taurina, pero esto no implica que no haya interacciones farmacodinámicas. Los valores individuales de biodisponibilidad y Tₘₐₓ descritos en estudios no deben tratarse como propiedades de todas las formas de producto sin considerar las condiciones del estudio.
La taurina se absorbe en el intestino, aparece en sangre y se excreta principalmente por los riñones mediante una reabsorción tubular regulada. El pico plasmático tras una dosis única no equivale a la duración de los cambios en el cerebro: el transporte por la barrera hematoencefálica es saturable y depende del estado del tejido. Los datos sobre el tiempo hasta el pico, la biodisponibilidad o la semivida de estudios individuales no deben convertirse en parámetros universales para todas las formulaciones y pacientes. Tampoco se debe suponer que una barrera dañada siempre mejora la llegada al lugar necesario.
La literatura de base describe dosis experimentales y un régimen terapéutico específico para MELAS, pero no existen pautas estándar basadas en evidencia para la «prevención del edema», la epilepsia, el estado postraumático, la «homeostasis» cognitiva o el tinnitus. Por eso, la tabla distingue contextos; no ofrece recetas.
Contexto
Interpretación práctica adecuada
Alimentación habitual
El consumo de taurina depende de la dieta; su bajo contenido en alimentos vegetales no demuestra por sí solo una deficiencia neurológica
Suplementos dietéticos
Los estudios han utilizado distintas dosis y duraciones; un efecto receptor en el laboratorio no determina una dosis oral eficaz
Epilepsia, ictus, TCE, hiponatremia
No corresponde automedicarse ni sustituir el tratamiento prescrito; no existe una pauta clínica basada en los mecanismos VRAC o GlyR
MELAS
El régimen de dosis altas pertenece a la atención especializada y no se extrapola a otras enfermedades
El magnesio participa en el bloqueo del receptor NMDA dependiente del voltaje, y el piridoxal-5′-fosfato es necesario para las enzimas CSAD y GAD. Son relaciones bioquímicas reales, pero no demuestran que combinar magnesio, vitamina B₆ y taurina potencie el tratamiento de las crisis o prevenga la lesión isquémica. La L-teanina se estudia por separado; no está justificado afirmar que bloquee de forma garantizada los receptores AMPA/cainato en personas ni que tenga «sinergia» clínica con la taurina. Un exceso de vitamina B₆ puede causar neuropatía, por lo que añadir automáticamente dosis altas de PLP a la taurina es especialmente inapropiado.
Las estimaciones históricas de ingesta segura y los estudios con dosis altas en MELAS responden a preguntas distintas. Ninguno establece automáticamente un «perfil ideal» para la toma autónoma de por vida o para tratar el edema. Las contraindicaciones y limitaciones deben considerar la edad, el embarazo, la función renal y las enfermedades concomitantes; los datos son limitados en algunos grupos. Las combinaciones con bebidas que contienen cafeína y otros ingredientes no pueden evaluarse atendiendo únicamente a la taurina.
La taurina se ha tolerado generalmente bien en las condiciones estudiadas, pero la observación de un número limitado de participantes durante periodos limitados no demuestra seguridad de por vida con cualquier dosis. La función renal, las enfermedades concomitantes y los medicamentos requieren una evaluación individual. No existe una regla demostrada según la cual la taurina necesariamente potencie el valproato, la carbamazepina, el levetiracetam, la lamotrigina o las benzodiacepinas. Si se toma litio, los cambios en el equilibrio hidroelectrolítico son relevantes para vigilar la concentración del fármaco; en caso de hipotensión o tratamiento antihipertensivo, deben considerarse la presión arterial y los síntomas. No se puede declarar compatibilidad con todos los medicamentos solo porque la taurina no sea un sustrato típico de CYP450.
La taurina es un ejemplo poco común de molécula que conecta el volumen celular, la fisiología de receptores y una modificación química precisa del ARNt mitocondrial. Los hechos más definidos se refieren a la estructura molecular, TauT, su participación en la osmorregulación y los nucleósidos de ARNt dependientes de taurina. Los efectos sobre redes convulsivas, el edema o las vías auditivas siguen siendo áreas importantes de investigación. Para la mayoría de los trastornos neurológicos, la cuestión clínica sigue abierta: el mecanismo explica qué investigar, pero no sustituye la evaluación de beneficios y seguridad en pacientes.
Cómo se preparó esta revisión
Esta es una revisión narrativa de la taurina en el sistema nervioso central, basada en una selección bibliográfica reunida previamente. El trabajo editorial concluyó el 4 de octubre de 2026. No se realizó una búsqueda sistemática con un protocolo predefinido, un metanálisis ni una evaluación formal del riesgo de sesgo de cada estudio; la selección no pretende abarcar exhaustivamente toda la literatura.
Las explicaciones de la osmorregulación, los efectos sobre los receptores y el metabolismo mitocondrial se mantienen separadas de las conclusiones clínicas. Para interpretar los resultados cuantitativos son importantes la especie, la edad, el tejido, la vía de administración y el método de medición: las medidas en animales no pueden trasladarse a las personas como valores diagnósticos de referencia. Un efecto protector celular o un mecanismo biológicamente plausible, por sí solos, no confirman que un suplemento beneficie una enfermedad neurológica. La evaluación de su uso requiere datos sobre la formulación, la población y el desenlace clínico concretos.\n
Preguntas frecuentes
¿Por qué sale taurina de un astrocito hinchado?
En respuesta a cambios osmóticos, la célula libera iones y osmólitos orgánicos, incluida la taurina. La reducción del número de partículas disueltas favorece la salida de agua y la recuperación del volumen.
¿Ayuda la taurina con la epilepsia?
Los efectos sobre receptores y los resultados de modelos animales son de interés para la investigación. No existe una pauta clínica moderna establecida de taurina para tratar la epilepsia; no debe sustituir a los medicamentos prescritos.
¿Se puede usar taurina para el tinnitus?
Un resultado en un modelo animal de tinnitus no puede extrapolarse a las personas. No se han establecido la eficacia ni una pauta de uso para este fin.
¿Qué relación tiene la taurina con MELAS?
Participa en la modificación del ARNt mitocondrial, proceso que puede alterarse en MELAS. Una pauta de dosis altas se estudió en un ensayo clínico abierto especializado y no puede extrapolarse a otras enfermedades.
¿Un nivel alto de taurina en sangre significa que también es alto en el cerebro?
No. El paso por la barrera hematoencefálica y la captación celular dependen del transporte TauT, limitado y regulado.