
Метиленовий синій: редокс-цикл, дихальний ланцюг і межі клінічних висновків
Механізм MB⁺/LMB, альтернативне перенесення та межі вимірювання дихання; дослідження тау, пам’яті й вазоплегії окремо від доклініки, з MAO-A, G6PD та фармакокінетикою.
Механізм MB⁺/LMB, альтернативне перенесення та межі вимірювання дихання; дослідження тау, пам’яті й вазоплегії окремо від доклініки, з MAO-A, G6PD та фармакокінетикою.
Метиленовий синій — лікарський барвник із кількома різними механізмами, які не можна об’єднати в один «мітохондріальний протокол». В еритроциті відновлена форма бере участь у перетворенні метгемоглобіну на гемоглобін; у клітинних і тваринних моделях спостерігали альтернативне перенесення електронів і зміни дихання; у судинній стінці сполука може пригнічувати сигнал NO–sGC–цГМФ. Випробування при деменції та невеликі нейровізуалізаційні роботи відповідають на інші питання, ніж досліди з ізольованими мітохондріями. Доза, шлях введення, окисно-відновний стан і лікарські взаємодії визначають, який механізм узагалі може проявитися.
Генріх Каро синтезував метилтіонінію хлорид наприкінці XIX століття як промисловий фенотіазиновий барвник. Пауль Ерліх використовував здатність речовини забарвлювати живі структури, а спільні з Паулем Гуттманом досліди при малярії стали історичним прикладом ранньої синтетичної хіміотерапії. Проте вибіркове забарвлення паразита або нейрона не доводить безпомилкового тропізму до хворої тканини: накопичення залежить від розподілу, мембран, редокс-середовища й часу експозиції. Концепція «магічної кулі» важлива для історії фармакології, але не доводить сучасної клінічної ефективності проти малярії чи нейродегенерації.
Окреме клінічне місце посідає лікування набутої метгемоглобінемії лікарським препаратом метиленового синього за встановленими показаннями. Метгемоглобін містить Fe³⁺ і не переносить кисень як функціональний гемоглобін Fe²⁺. Відновлений барвник, лейкометиленовий синій (LMB), може віддавати електрони метгемоглобіну та повертатися в окиснений стан. Фізіологічний шлях відновлення метгемоглобіну в еритроциті переважно використовує NADH і цитохром-b₅-редуктазу CYB5R3, тоді як для відновлення введеного метиленового синього важливий NADPH-залежний шлях. Це пояснює критичну роль дефіциту G6PD і доступності NADPH для відповіді на препарат. Реакція не забезпечує миттєвого відновлення оксигенації «за секунди» в кожного пацієнта; ефект і моніторинг залежать від тяжкості, причини та супутньої гіпоксії.
Застосування при післяопераційній вазоплегії та шоку досліджують окремо від метгемоглобінемії. Інгібування розчинної гуанілатциклази й зміна NO-залежної вазодилатації — можливий механізм підвищення судинного тонусу; роль iNOS і загальний ефект залежать від запалення та гемодинаміки. Доступність препарату для одного показання не перетворює кожне експериментальне застосування при вазоплегії чи сепсисі на стандарт лікування. Так само досліди в нейрональних культурах і на тваринах не встановлюють терапії хвороб Альцгеймера та Паркінсона.
Метилтіонінію хлорид — сіль катіона з фенотіазиновим каркасом і двома диметиламіногрупами. Безводна сіль має формулу і молярну масу близько ; гідрат містить додаткову воду, тому вміст речовини та масу конкретної лікарської форми слід розрізняти. Спряжена π-система пояснює видиме поглинання та синій колір окисненої форми. Максимум смуги й димеризація залежать від розчинника, pH, іонної сили, концентрації та оптичної методики. Значення 664 і 605 нм можуть описувати конкретні умови, але «суворо понад 10 мкМ завжди димери» і «всі наномолярні молекули виключно мономери» не є універсальними властивостями.
Двоелектронний перехід схематично записують як . MB⁺ — забарвлений катіон, LMB — відновлена лейкоформа; зворотна реакція в клітині повертає переносник до окисненого стану. Формальний заряд, протонування й розподіл між мембраною та водою впливають на доступність реагентів. Різниця кольору корисна для аналітики, але сама зміна кольору не вимірює потік електронів через мітохондріальний комплекс. Твердження про фіксований двогранний кут 110–115°, універсальну пару та незмінно швидку дифузію LMB через кожен бар’єр потребують вимірювань у конкретному середовищі.
Для пари в довідкових умовах часто наводять порядку при pH 7. Це не потенціал будь-якої клітини: фактичний потенціал залежить від MB⁺/LMB, pH і зв’язування; для двоелектронного переходу його зсув описує рівняння Нернста. Потенціали NAD⁺/NADH, флавінів, Fe–S-центрів, убіхінону й цитохрому c також залежать від білкового оточення. Окремі Fe–S-центри та мембранні пули не поводяться як вільні розчини. Додатна різниця стандартних потенціалів робить перенесення термодинамічно правдоподібним, але не «гарантує» реакцію без доступу до центру, відповідного донора та швидкості обміну.
Для двоелектронного кроку зв’язок стандартної енергії з потенціалами має вигляд , де , а — стала Фарадея. Підстановка довідкових , і дає від’ємні значення для умовного ланцюга NADH→MB→цитохром c. Однак сума описує енергетику заданих стандартних пар, а не виміряний вихід ATP чи повний обхід III у нейроні. В організмі змінюються активності компонентів і протонний градієнт; барвник може відновлюватися іншими ферментами та віддавати електрони іншим акцепторам, зокрема кисню. Образ «нездоланного електронного стоку» некоректний для зворотного редокс-циклу.
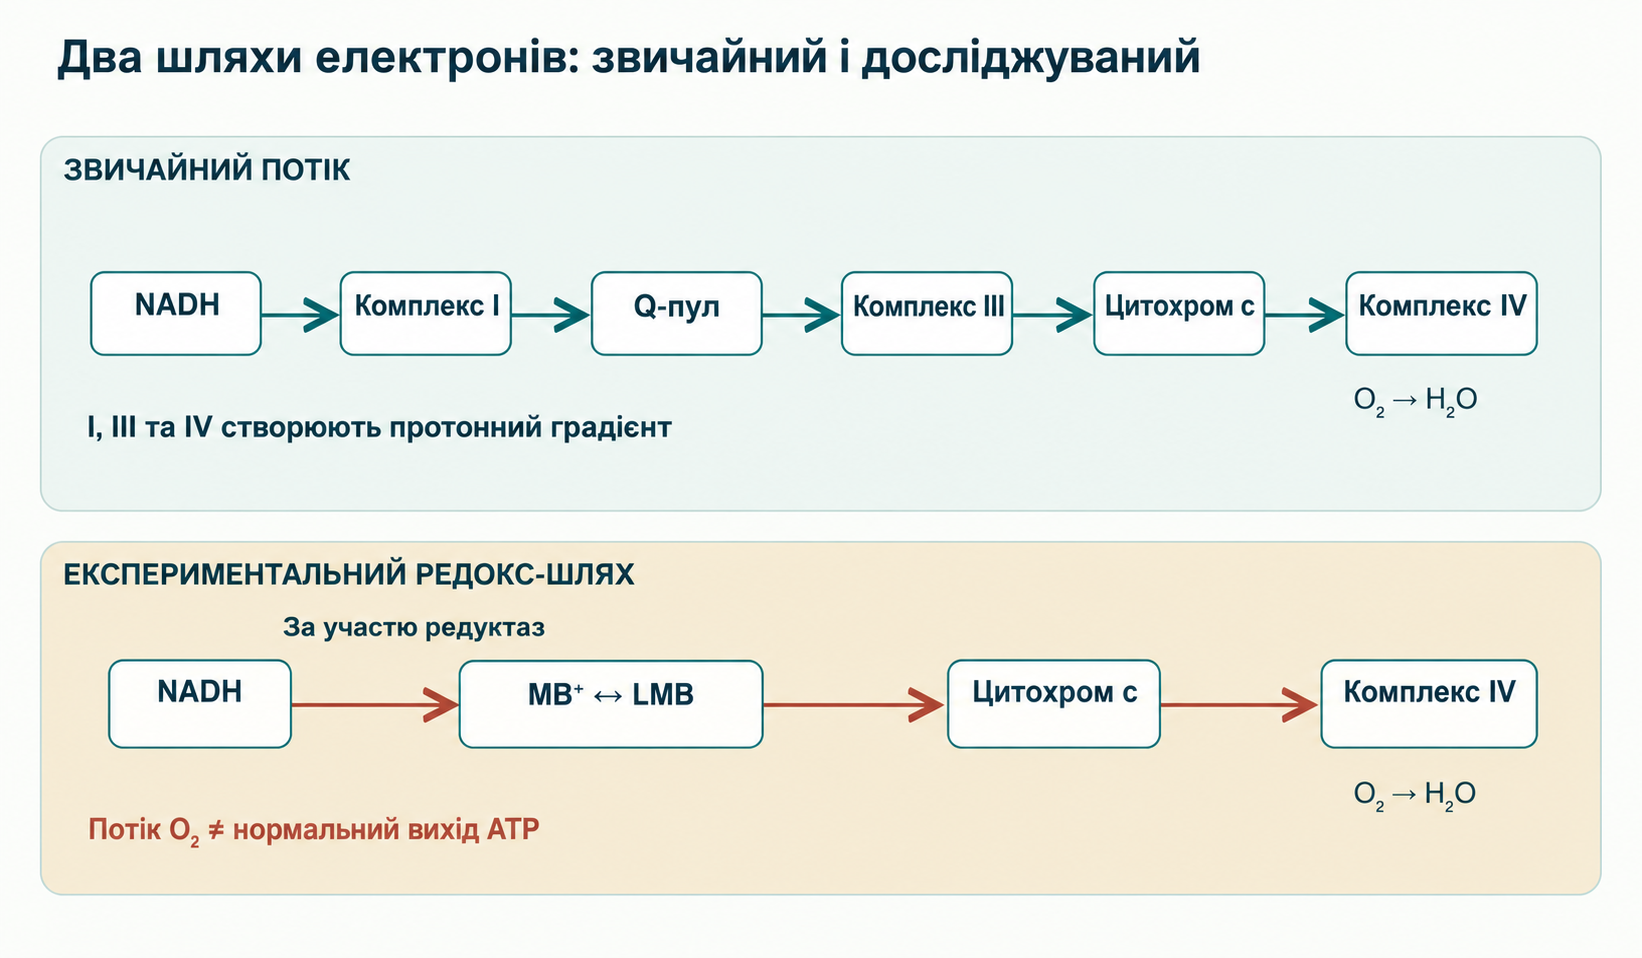
Внутрішня мембрана мітохондрії спряжує перенесення електронів із виведенням протонів із матриксу. Комплекс I приймає електрони NADH на флавінмононуклеотид (FMN), далі через Fe–S-центри передає їх убіхінону. Відновлений убіхінон живить III, який передає електрони рухомому цитохрому c; IV відновлює кисень до води. I, III та IV створюють протонорушійну силу, яку ATP-синтаза використовує для синтезу ATP. Простий баланс на пару електронів NADH у повністю спряженому ланцюзі дає приблизно 4, 4 і 2 транслокованих протони відповідно. Це ідеалізована модель; фактичний вихід залежить від витоків, транспорту фосфату й аденіннуклеотидів та стану клітини.
Матриксна гілка I з NDUFV1/FMN і Fe–S-центрами відділена від мембранної ділянки зв’язування убіхінону; складна архітектура пов’язує редокс-реакцію з протонною помпою. Ротенон блокує Q-ділянку, а MPP⁺ порушує I у токсичних моделях; при ішемії та реперфузії важливі накопичення сукцинату, відновленість Q-пулу й конформація ферменту. Структури показують кілька Fe–S-центрів, але число й порядок перенесення стосуються названого виду та структури, а не всіх варіантів. «Блокада I» не дорівнює миттєвому нульовому потенціалу: інші субстрати, II, гідроліз ATP і стан мембрани змінюють відповідь.
Wen і колеги досліджували барвник як альтернативний переносник у експериментальних системах. Схема передбачає відновлення MB⁺ доступними донорами поблизу матриксного боку I або іншими флавопротеїнами та подальшу передачу цитохрому c чи іншому акцептору. NAD(P)H-залежні редуктази, зокрема NQO1, можуть брати участь у відповідній клітині; конкретний фермент слід перевіряти за тканиною, інгібіторами й генетичними дослідами. показує можливий шлях, але не доводить прямого контакту MB⁺ із NDUFV1 у всіх мітохондріях і не встановлює універсальний 0,8–1,5 мкМ. потребує ферментного маршруту або підтвердженої хімічної кінетики: потенціали самі не визначають швидкості в матриксі.
Якщо LMB справді відновлює цитохром c після Q-пулу, електрони обходять частину I→Q→III. Проте «повністю шунтує I та III» — надто сильне твердження: отримання електронів від FMN передбачає участь принаймні частини I, а звичайний потік через III у тій самій клітині не зобов’язаний припинятися. Потрібні доступна окиснена форма цитохрому c на належному боці мембрани та збережений IV. Цитохром c передає один електрон; один двоелектронний оборот MB/LMB міг би відновити дві молекули. Доказ маршруту потребує профілю інгібіторів, балансу кисню й ATP, а не лише поліпшення флуоресцентного показника.
У IV цитохром c передає електрон на CuA, далі гем a і центр гем a₃–CuB, де кисень відновлюється до води. Навіть якщо альтернативний шлях підтримує цю ділянку, обхід помп I і III зменшує число градієнтоутворювальних протонів на пару електронів. Збереження дихання при ротеноні не дорівнює відновленню нормального виходу ATP. OCR методом Seahorse відображає споживання кисню, але потребує поділу на ATP-спряжене дихання, протонний витік, немітохондріальне споживання O₂ та пряме окиснення барвника киснем. «10–100 нМ завжди підвищують OCR», «ATP становить 1,0–1,5 на пару» та «ΔΨm стабільний при −130…−150 мВ», без моделі й калібрування, не є клінічними характеристиками.
У дослідах із ротеноном альтернативний акцептор може скоротити перебування редокс-центрів у відновленому стані й утворення супероксиду. Проте АФК виникають і при прямому потоці з блокадою I, і при зворотному перенесенні з відновленого Q-пулу за високого потенціалу; локалізація та швидкість залежать від субстратів і кисню. LMB може знов окиснюватися киснем і сам брати участь у прооксидантному циклі. Зниження маркерів АФК у певній культурі не дає універсальних «70–90%» для всіх тканин чи повної профілактики реперфузійного ушкодження.
Кардіоліпін допомагає організувати комплекси й кристи; пошкоджений, може взаємодіяти з цитохромом c та його пероксидазною активністю. Суперкомплекси I–III–IV — один рівень організації, але обов’язкове «тунелювання» кожного електрона залишається контекстним. Зниження пероксидного ушкодження після MB може опосередковано зберігати мембрану; пряме утримання Met80–гемового зв’язку, повна блокада пероксидази й збереження респірасоми певного складу потребують окремих вимірювань. Таке ж обмеження стосується mPTP: кальцій, окисний стрес і потенціал впливають на відкриття, але молекулярна організація обговорюється. «Пору неодмінно утворює димер c-кільця ATP-синтази і вона закрита при певному ΔΨm» — не універсальний встановлений поріг. Зв’язок MB з NCLX-залежним кліренсом Ca²⁺ залишається гіпотезою, доки незалежно не виміряні потоки кальцію та ATP.
Редокс-гормезис передбачає, що слабкий зворотний стрес запускає адаптацію, а велике навантаження порушує електронний баланс. Таку поведінку спостерігали в клітинних і тваринних дослідах, зокрема школи Гонсалеса-Ліми. «Закон Арндта–Шульца» описує можливу криву певної моделі, а не фармакологічний закон із єдиною шкалою мг/кг. Концентрація біля ферменту після перорального введення не виводиться з культуральної: важливі сіль, відновлення в крові, розподіл, експозиція та виведення.
За низької експериментальної експозиції повторне відновлення MB⁺ і окиснення LMB може змінювати NAD⁺/NADH, доступність електронів IV і клітинні сигнали. Зростання активності цитохром-c-оксидази в корі або гіпокампі може означати зміну кількості ферменту, субстратів чи клітинного складу; для біогенезу потрібні незалежні показники маси органел, мтДНК, складання комплексів і дихальної функції. NAD⁺/SIRT1→деацетилювання PGC-1α→NRF1/NRF2→TFAM — правдоподібна гіпотеза. Зміна NAD⁺/NADH сама не доводить увесь причинний каскад і нові кристи завдяки барвнику. «20 000 електронів на добу» та приріст активності 30–40%, без методики, не стають властивостями препарату.
За більшої експозиції змінюються конкурентні швидкості відновлення, віддачі електронів акцепторам і реакції з киснем. Автоокиснення спрощено записують як , але проміжний радикал потребує аналізу конкретної системи; послідовні стрілки не доводять універсальної клітинної стехіометрії. Можливі витрата NADPH, зниження регенерації GSH глутатіонредуктазою, пероксидне ушкодження ліпідів і порушення спряження. В інших умовах окисний барвник збільшує метгемоглобін — парадоксально для препарату проти нього. Ефекти залежать від тканини, дози й часу; «понад 5–10 мкМ» і «понад 5–10 мг/кг» не є загальною межею безпеки. Протипоказання та взаємодії не компенсує нібито горметична доза.
Тау (MAPT) зв’язується з аксональними мікротрубочками й організує їхню динаміку; при тауопатіях змінюються фосфорилювання, локалізація, конформація та агрегація. Важливі PHF6* () і PHF6 () у мікротрубочкозв’язувальному домені, контекст повторів R2/R3, ізоформа та структура філамента. Гіперфосфорилювання GSK‑3β, CDK5 чи MARK може зменшувати зв’язування, але «фосфорилювання → токсичний олігомер → парний спіральний філамент» не є єдиним обов’язковим шляхом. Розчинні агрегати, клубки й втрата функції відповідають на різні питання.
Група Вішика показала, що фенотіазинові барвники заважають складанню тау та впливають на виділені філаменти. Редокс-хімія тіолів Cys291 і Cys322 — можливий механізм у конкретній білковій конструкції та середовищі. Вона не дозволяє зображати єдиний міст Cys291–Cys322, який незмінно «екранує» обидва PHF-мотиви й знешкоджує кожен мономер: дисульфіди, міжмолекулярні зшивки й доступність цистеїнів залежать від ізоформи, концентрації та окиснення. Кріо-ЕМ показує складки зрілих філаментів, але не автоматично місце зв’язування барвника чи руйнування філаментів у живому нейроні. Активність in vitro не дорівнює ефекту в мозку пацієнта.
Гідрометилтіонін (LMTM, LMTX) — відновлена лікарська форма як біс(гідрометансульфонатна) сіль з іншою фармакокінетикою, ніж метилтіонінію хлорид. Зміна солі та окиснення не гарантує «безперешкодного» проходження гематоенцефалічного бар’єра чи стабільної лікувальної концентрації: експозицію треба вимірювати, ефективність — перевіряти за визначеними кінцевими точками. Фазу III розглянуто нижче; приваблива мішень не виправляє негативного первинного результату.
У культурах і тварин також досліджували агрегацію Aβ, збереженість PSD‑95/синаптофізину та кальцієві відповіді. Олігомери Aβ порушують передачу й NMDA-залежну регуляцію Ca²⁺, але пряме зв’язування MB із Phe19/Phe20, профілактика пор та повне збереження ATP й екзоцитозу потребують окремих структурних, клітинних і функціональних дослідів, а не одного підтвердженого ланцюга. Для пластичності потрібні ATP-залежні помпи та рецепторні комплекси, але фіксовані «80% всього ATP мозку» для Na⁺/K⁺-АТФази не описують усіх нейронів і режимів.
У моделях паркінсонізму ротенон і MPP⁺ ушкоджують I; дофамінергічні нейрони чорної субстанції додатково вразливі через розгалужені аксони й окисну хімію дофаміну. Збереження TH-позитивних клітин, дофаміну або моторного тесту означає експериментальний захист у конкретному протоколі. Це не підтверджує обов’язкової причинності прямого шунту I й не доводить уповільнення Паркінсона в людей. MPTP, ротенон та ідіопатична хвороба різняться часом і патогенезом.
Навчання й згасання умовного страху досліджують стан мереж після MB. LTP у колатералях Шаффера–CA1, фосфорилювання GluA1, AMPA/NMDA, CaMKII та ATP можуть узгоджено змінюватися, але поліпшення однієї поведінкової задачі не доводить весь маршрут. Тіоли NMDA чутливі до редокс-умов; прямий вплив перевіряють електрофізіологією й мутагенезом, але фіксовані Cys-пари й зменшення відкриття на 30–40% не переносяться на мозок пацієнта. AMPK–mTORC1–ULK1 і PINK1/Parkin-мітофагія описують контроль якості мітохондрій. Зростання LC3B‑II чи PINK1 без аналізу потоку аутофагії, лізосомного завершення й відновлення органел не доводить «очищення хондріому». Межі інтерпретації детальніше розглянуті у статті про ацетил-L-карнітин.
У невеликому рандомізованому подвійному сліпому дослідженні Rodriguez і колеги вивчали одну дозу в здорових добровольців за допомогою функціональної МРТ і задач уваги/пам’яті. Зміни BOLD у низці ділянок і повідомлена перевага відтворення інформації приблизно на 7% стосуються конкретних задач, часу та вибірки. BOLD — гемодинамічний корелят активності, а не прямий потік електронів IV або синтез ATP; судинний ефект MB ускладнює інтерпретацію. Навіть значуща різниця в тесті здорових людей не доводить сталого когнітивного поліпшення чи лікування деменції. Стійкість 48 годин та «прискорення метаболізму» потребують аналізу: перфузія і BOLD не є прямими метаболічними вимірюваннями.
Велике випробування LMTM при легкій і помірній хворобі Альцгеймера включало сотні учасників і визначені когнітивні та функціональні точки. У загальній рандомізованій популяції первинні точки не показали очікуваної переваги високих доз над низькою контрольною. Подальший аналіз учасників без іншої терапії породив гіпотезу монотерапії, але змінює групи після рандомізації й уразливий до змішування причин. Він не доводить, що інгібітори холінестерази «нівелювали» ефект чи LMTM гальмує атрофію кори. Фаза II, LUCIDITY і NfL потребують окремої оцінки дизайну, опублікованих точок і множинних порівнянь. Без цього «80% уповільнення» та стабілізація MCI не доведені.
При післякардіохірургічній вазоплегії й критичних станах MB застосовували як ад’ювант проти NO–розчинна гуанілатциклаза–цГМФ-вазодилатації. Запальна індукція iNOS збільшує NO, який зв’язує гем sGC у гладкому м’язі й підвищує цГМФ; PKG змінює баланс кальцію та скоротливого апарату до розслаблення. MB впливає на sGC, NOS та інші редокс-процеси. Підвищення тиску або зменшення вазопресорів — гемодинамічна точка, не доказ меншої смертності чи універсального протоколу сепсису. Числа болюсу, інфузії, SVRI та MAP не є загальною рекомендацією без популяції, порівняння, протоколу й взаємодій.
При ішемічному інсульті та ЧМТ моделі tMCAO і контрольованого коркового удару оцінюють ушкодження, поведінку, запалення й проникність бар’єра. Час щодо оклюзії/реперфузії, тяжкість і метод вимірювання інфаркту суттєво змінюють результат. Менший осередок у гризуна не означає «50–65% ефективності» в людини. Мікроглія має багато перехідних станів, тому «M1 вимкнено» погано описує фізіологію.
Після введення MB⁺ перебуває в динамічній рівновазі з LMB, зв’язується з кров’ю й розподіляється між водною та мембранною фазами. Відновлення змінюється в еритроцитах, ендотелії, печінці й інших тканинах; вимірювання лише синього катіона плазми може не відображати сумарної експозиції. Проникнення до ЦНС показано експериментально й фармакокінетично, але відношення мозок/плазма залежить від виду, пробопідготовки, часу та спільного визначення MB, LMB і метаболітів. Табличні , обов’язкові OCT1/OCT2 і універсальне накопичення в людському мозку у 10–20 разів не встановлені для кожного режиму. Біодоступність і об’єм розподілу теж не переносяться між формами й шляхами без протоколу.
Відновлення катіона можуть підтримувати NAD(P)H-оксидоредуктази. NQO1 використовує двоелектронні реакції для хінонових та інших субстратів; участь саме в MB-циклі потребує підтвердження в тканині. CYB5R3 важлива для фізіологічного NADH-залежного відновлення метгемоглобіну через b₅, але не обов’язково головний редуктор введеного MB у кожній клітині. Тіоредоксинредуктаза також взаємодіє з редокс-субстратами; внесок залежить від активності, NADPH і конкурентів. мкМ чи «75–85% пулу завжди LMB» без визначеного тесту й аналітики не є загальними константами.
Послідовне N-деметилювання утворює азури та тіонін. Azure B — триметильований, Azure A — диметильований, Azure C — монометильований; барвники й лейкоформи відрізняються спектрами та фармакологією. MB→Azure B→Azure A/C→тіонін — карта можливих перетворень, не доказ обов’язкового порядку кожної молекули чи вичерпної участі лише CYP1A2 і CYP2D6. Частка метаболіту залежить від часу й методу, тому «Azure B = 15–20% циркулюючої дози» потребує первинного аналізу. Кон’югація та ниркове виведення також потребують розрізняти вільний барвник, відновлені форми й аналітичні метаболіти.
Виведення може забарвити сечу синьо-зелено; LMB окиснюється на повітрі. Колір не показує частки дози в мозку й не є кількісним показником прихильності, ефективності чи безпеки. Узагальнені 5–6,5 години, «70–80% нирками за добу» й 18–24 години в ЦНС можуть стосуватися різних аналітичних точок; без форми, шляху та методу не становлять єдиної моделі.
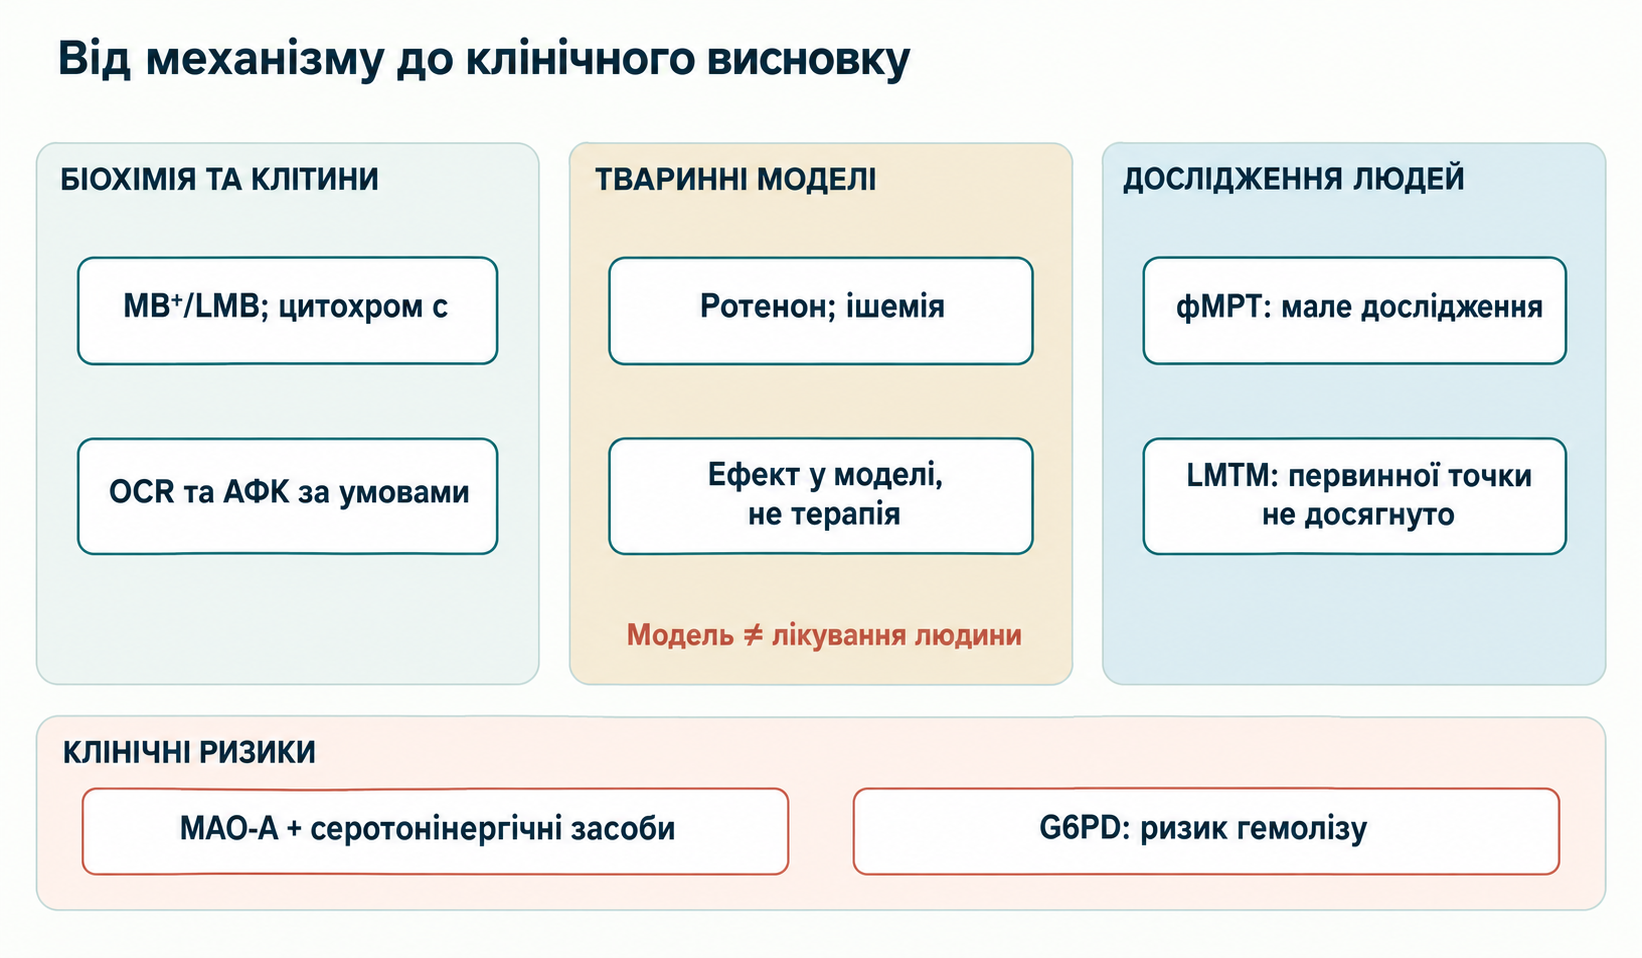
Інгібування моноаміноксидази А — окрема дія, для безпеки клінічно важливіша за гіпотетичну «мітохондріальну оптимізацію». MAO‑A розщеплює серотонін та інші моноаміни; її інгібування разом із препаратами, що підсилюють серотонінергічну передачу, створює ризик токсичності. Описано тяжкі випадки із СІЗЗС, ІЗЗСН та іншими засобами. Клонус, гіперрефлексія, збудження, гіпертермія й вегетативна нестабільність потребують невідкладної оцінки, але тяжкість і час різні; «завжди 2–6 годин і понад 40 °C» було б хибним. й селективність MAO‑A/MAO‑B із одного in vitro досліду не є універсальними без умов. Інтервали відміни залежать від препарату, метаболітів, терміновості й чинної інструкції; самовільна відміна або заміна лікування заради MB неприпустима.
Дефіцит G6PD обмежує NADPH в еритроцитах без мітохондрій, залежних від пентозофосфатного шляху. За браку NADPH важко відновити барвник і глутатіон; лікування може не спрацювати, а окиснення посилити гемоліз. Ушкодження гемоглобіну, тільця Гайнца, анемія й гемоглобінурія можливі, але генотип, залишкова активність, причина метгемоглобінемії та супутня хвороба визначають ризик. Інструкція, анамнез і лабораторія стосуються медичного рішення, а не універсального онлайн-переліку. Генотипні відсотки й вимога тесту завжди не замінюють протоколу та терміновості допомоги.
Лікарський препарат і лабораторний барвник різняться контролем ідентичності, вмісту, домішок, мікробіологічної чистоти й маркування. Технічний чи акваріумний барвник не можна використовувати як ліки. Відсотки речовини та межі Pb/As/Cd/Hg/Zn різні в монографіях і не описують усі технічні зразки. Специфікація залежить від юрисдикції, форми й видання фармакопеї; без документа числа дають хибну гарантію. Важливіші зареєстрована форма та її інструкція.
Вагітність і неонатальний період потребують окремої оцінки користі й ризику: для внутрішньоамніотичного введення описані тяжкі ускладнення, зокрема атрезія кишківника, але цей шлях не дорівнює кожній системній експозиції. Старі категорії «X/D» не є точним сучасним універсальним позначенням. При загрозі життю вирішує профільна команда за чинною інструкцією. Забарвлення рідин і шкіри, оптичні вимірювання та перешкоди пульсоксиметрії також важливі для моніторингу.
Щоденні 0,5–2 мг/кг, тижнева титрація, обов’язковий сніданок із жирами й цикли «5 днів / 2 дні» не підтверджені наведеними випробуваннями для когнітивного поліпшення чи профілактики нейродегенерації. Лікування метгемоглобінемії й експериментальні схеми вазоплегії не стають амбулаторною інструкцією здоровій людині. Навіть мала доза залишає взаємодії, дефіцит G6PD і питання форми. Оцінка ШКФ, АЛТ/АСТ, крові й вагітності може бути доречною, але eGFR >60 мл/хв/1,73 м² не є універсальним дозволом застосовувати.
«Синергетичні стеки» Q10, ацетил-L-карнітину, PQQ, попередників NAD⁺ і фотобіомодуляції не випробувані як одна комбінація для цих наслідків. Убіхінон у Q-пулі переносить електрони від кількох дегідрогеназ до III, а не «підтримує лише II». Ацетил-L-карнітин пов’язаний з ацетильними групами, тоді як довголанцюгові ацильні групи транспортує CPT1–CACT–CPT2; різницю пояснено у статті про карнітиновий шатл і CPT1. Збіг поглинання з червоним світлом не доводить ефективного транскраніального збудження потрібної концентрації в нейронах чи подвоєння ATP. Поєднання потребує врахування проникнення, дозиметрії, фотохімії кисню та контрольованих клінічних наслідків.
Порівнювати агенти можна за дослідженим етапом, а не недоведеним «рейтингом оптимізаторів»:
| Втручання або молекула | Досліджуваний етап | Чого механізм не доводить |
|---|---|---|
| Метиленовий синій | Зворотне редокс-перенесення в моделях; лікарські дії при метгемоглобінемії та NO–sGC | Повного безпечного шунту I і III або лікування деменції |
| Коензим Q10 | Ендогенний мембранний пул між дегідрогеназами та III | Відновлення будь-якої блокади I |
| Ідебенон | Синтетичний хінон із редуктазозалежною фармакологією | Тотожності убіхінону в кожній тканині |
| PQQ | Редокс- і сигнальні відповіді експериментальних моделей | Статусу встановленого вітаміну або клінічного стимулятора мітохондрій |
| Попередники NAD⁺ | Доступність нікотинамідних кофакторів | Автоматичної активації SIRT1/PGC‑1α чи заміни комплексу |
Метиленовий синій — цінний інструмент вивчення електронного транспорту, судинної регуляції й нейронної функції. Клінічне застосування має спиратися на показання, форму, індивідуальні протипоказання та випробування конкретного наслідку. Доклінічне перенесення пояснює раціональність дослідження, але не замінює ефективності при Альцгеймері, Паркінсоні, інсульті чи здоровому «біоенергетичному поліпшенні». Пріоритет — зіставити виміряну експозицію MB/LMB з реальним потоком, ATP-спряженим диханням, шкодою взаємодій і значущими наслідками визначених популяцій.
Це наративний огляд метиленового синього й мітохондріального редокс-обміну на основі 28 публікацій. У редакції від 4 жовтня 2026 року адресно звірені ключові роботи з перенесення електронів, MAO-A та клінічного випробування похідного при Альцгеймері. Вичерпний пошук, метааналіз і формальна оцінка ризику упереджень кожної роботи не проводилися; решта записів не звірені рядок за рядком із повними текстами.
Редокс-реакція, клітинний або тваринний ефект і клінічний наслідок розмежовані. Концентрація, форма й режим змінюють інтерпретацію; дані похідного не підміняють результату для будь-якої форми. Механістична гіпотеза не встановлює універсальної ефективності чи безпеки, а вторинні та первинні точки оцінюються окремо.
У дослідах він забезпечував альтернативне перенесення при їх інгібуванні. Повного прямого шунту зі збереженням нормального ATP у людини не встановлено.
Ні. Велике випробування не досягло первинних точок у загальній популяції; вторинний аналіз монотерапії не замінює підтверджувального випробування.
MB інгібує MAO-A, а багато антидепресантів посилюють серотонінергічну передачу; разом вони можуть спричинити тяжку токсичність.
Еритроцитам потрібна G6PD для NADPH. При дефіциті препарат може не відновити метгемоглобін і сприяти гемолізу.
Ні. Барвник не контролюється як ліки, а універсального амбулаторного протоколу поліпшення мітохондрій ці дані не доводять.