
Метилен көгі: редокс циклі, тыныс алу тізбегі және клиникалық қорытындылардың шегі
MB⁺/LMB механизмі, баламалы электрон тасымалы, тынысты өлшеу шектері; тау, жады, вазоплегияның клиникалық және клиникаға дейінгі деректері, MAO-A, G6PD және фармакокинетика.
Метилен көгі — бірнеше бөлек механизмі бар дәрілік бояғыш; оларды бір «митохондриялық хаттамаға» біріктіруге болмайды. Эритроцитте тотықсызданған түрі метгемоглобинді гемоглобинге айналдыруға қатысады; жасушалық және жануарлық модельдерде баламалы электрон тасымалы мен тыныс алу өзгерістері байқалған; тамыр қабырғасында NO–sGC–цГМФ сигналын тежеуі мүмкін. Деменция сынақтары мен шағын нейробейнелеу зерттеулері оқшауланған митохондрия тәжірибелерінен басқа сұрақтарға жауап береді. Доза, енгізу жолы, тотығу-тотықсыздану күйі және дәрілік өзара әсерлер қай механизмнің іске асатынын анықтайды.
Тарих: бояғыштан дәріге дейін
Генрих Каро XIX ғасырдың соңында метилтиониний хлоридін өндірістік фенотиазин бояғышы ретінде синтездеді. Пауль Эрлих тірі құрылымдарды бояу қабілетін пайдаланды; Пауль Гуттманмен безгекке жүргізген тәжірибелері алғашқы синтетикалық химиотерапияның тарихи мысалы болды. Бірақ паразитті немесе нейронды таңдап бояу ауру тінге қателеспей бағытталуды дәлелдемейді: жиналу таралуға, мембраналарға, редокс ортаға және әсер ету уақытына тәуелді. «Сиқырлы оқ» ұғымы фармакология тарихында маңызды, алайда безгек не нейродегенерацияға қарсы қазіргі клиникалық тиімділікті дәлелдемейді.
Жүре пайда болған метгемоглобинемияны белгіленген көрсетілімдер бойынша дәрілік метилен көгімен емдеу — бөлек клиникалық бағыт. Метгемоглобинде Fe³⁺ болады және ол Fe²⁺ бар қызметтік гемоглобин сияқты оттегін тасымалдамайды. Тотықсызданған лейкометилен көгі (LMB) метгемоглобинге электрон беріп, қайта тотыға алады. Эритроциттегі физиологиялық жол негізінен NADH пен цитохром-b₅-редуктаза CYB5R3-ті қолданады; енгізілген метилен көгін тотықсыздандыру үшін NADPH-тәуелді жол маңызды. Осы айырма G6PD тапшылығы мен NADPH қолжетімділігінің жауапқа неліктен шешуші екенін түсіндіреді. Әр науқаста оксигенация «бірнеше секундта» бірден қалпына келмейді: әсер мен бақылау ауырлыққа, себепке және қатарлас гипоксияға байланысты.
Операциядан кейінгі вазоплегия мен шоктағы қолдану бөлек зерттеледі. Еритін гуанилатциклаза тежелуі және NO-тәуелді вазодилатацияның өзгеруі тамыр тонусын арттырудың ықтимал механизмі; iNOS рөлі мен соңғы әсер қабыну және гемодинамикаға тәуелді. Бір көрсетілім үшін дәрінің болуы вазоплегия не сепсистегі барлық тәжірибелік қолдануды стандартты емге айналдырмайды. Нейрон өсінділері мен жануар тәжірибелері де Альцгеймер немесе Паркинсон емін белгілемейді.
Молекула және MB⁺/LMB редокс жұбы
Метилтиониний хлориді — фенотиазин қаңқасы мен екі диметиламин тобы бар катион тұзы. Сусыз тұздың формуласы , молярлық массасы шамамен ; гидратта қосымша су бар, сондықтан зат үлесі мен нақты дәрілік түр массасын ажырату қажет. Қабысқан π-жүйе көрінетін жұтылуды және тотыққан түрдің көк түсін түсіндіреді. Жұтылу максимумы мен димерлену еріткіш, pH, иондық күш, концентрация және оптикалық әдіске тәуелді. 664 және 605 нм нақты жағдайларды сипаттай алады, бірақ «10 мкМ-ден жоғары міндетті түрде димер» және «наномолярлық барлық молекула тек мономер» әмбебап қасиеттер емес.
Екі электрондық ауысу түрінде көрсетіледі. MB⁺ — боялған катион, LMB — тотықсызданған лейко түр; кері реакция жасушада тасымалдағышты тотыққан күйге қайтарады. Формалдық заряд, протондану және мембрана/су арасында таралу реагент қолжетімділігіне әсер етеді. Түс айырмасы талдауға пайдалы, бірақ түстің өзгеруі ғана митохондриялық кешендегі электрон ағынын өлшемейді. 110–115° тұрақты диэдрлік бұрыш, екі әмбебап және барлық биологиялық тосқауылдан LMB-ның үнемі тез өтуі нақты ортада өлшеуді талап етеді.
Анықтамалық жағдайда жұп үшін pH 7-де шамамен деп беріледі. Бұл кез келген жасуша потенциалы емес: нақты мән MB⁺/LMB қатынасына, pH және байланысуға тәуелді; екі электрондық ауысуда ығысуды Нернст теңдеуі сипаттайды. NAD⁺/NADH, флавиндер, Fe–S орталықтары, убихинон мен цитохром c потенциалдары ақуыз ортасына тәуелді. Жеке Fe–S орталықтары мен мембрана қорлары бос ерітіндідей әрекет етпейді. Стандартты потенциалдардың оң айырмасы тасымалды термодинамикалық тұрғыдан мүмкін етеді, бірақ орталыққа қолжетімділік, лайық донор және алмасу жылдамдығы болмаса реакцияға «кепілдік» бермейді.
Екі электрондық қадамның стандартты энергиясы арқылы байланысады; , — Фарадей тұрақтысы. , және мәндері шартты NADH→MB→цитохром c тізбегіне теріс нәтиже береді. Бірақ қосынды берілген стандартты жұптардың энергетикасын білдіреді, өлшенген ATP шығымы не нейрондағы III кешенін толық айналып өтуді емес. Ағзада компонент белсенділігі мен протон градиенті өзгереді; бояғыш басқа ферменттермен тотықсызданып, оттегі сияқты басқа акцепторларға электрон бере алады. Сондықтан «жеңілмейтін электрон жұтқыш» бейнесі қайтымды циклді дұрыс сипаттамайды.
Баламалы электрон ағыны қайда мүмкін
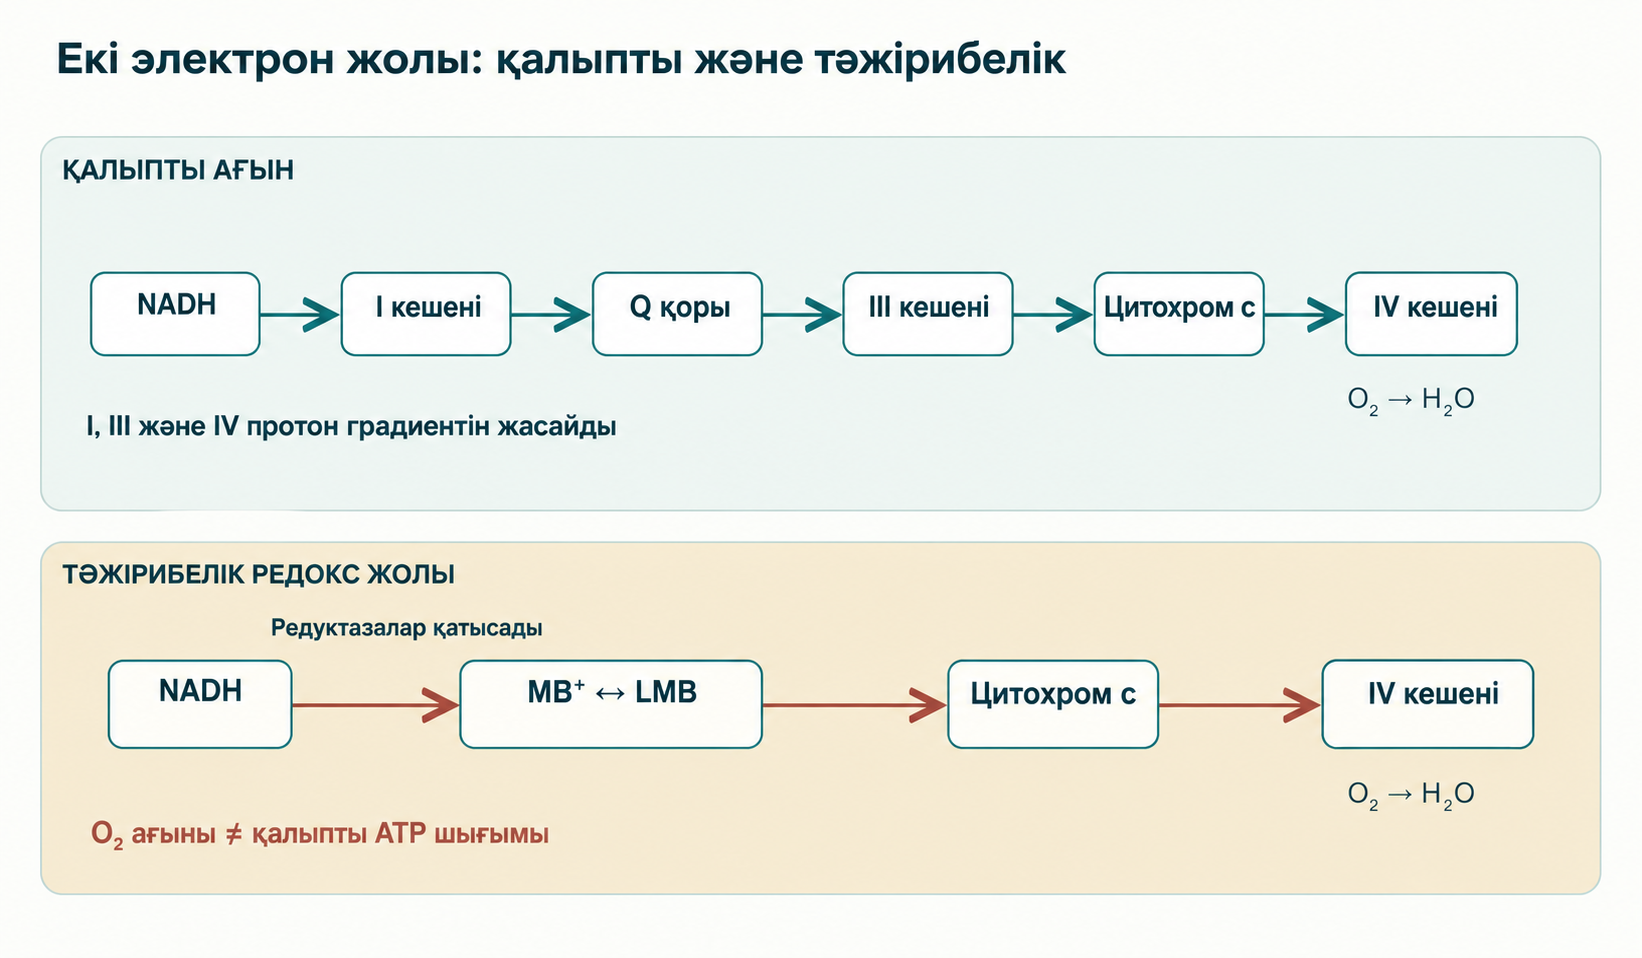
Митохондрияның ішкі мембранасы электрон тасымалын матрикстен протон шығарумен ұштастырады. I кешені NADH электрондарын флавинмононуклеотидке (FMN) қабылдап, Fe–S орталықтары арқылы убихинонға береді. Тотықсызданған убихинон III-ті қоректендіреді, ол жылжымалы цитохром c-ге береді; IV оттегін суға дейін тотықсыздандырады. I, III және IV протон қозғаушы күшке үлес қосады, ATP-синтаза оны ATP синтезіне қолданады. Толық ұштасқан тізбекте NADH электрон жұбына шамамен 4, 4 және 2 тасымалданған протон сәйкес келеді. Бұл идеалданған ағын моделі; нақты шығым ағып кетуге, фосфат пен аденин нуклеотидтерінің тасымалына, жасуша күйіне байланысты.
I-дің NDUFV1/FMN және Fe–S бар матрикстік тармағы убихинон байланысатын мембраналық аймақтан бөлінген; күрделі архитектура редокс реакциясын протон айдаумен байланыстырады. Ротенон Q орнын бөгейді, MPP⁺ уыттық модельдерде I-ді бұзады; ишемия мен реперфузияда сукцинат жиналуы, Q қорының тотықсыздануы және фермент конформациясы маңызды. Құрылымдар бірнеше Fe–S орталығын көрсетеді, бірақ саны мен реттілігі аталған түр мен құрылымға ғана қатысты; барлық нұсқаға бекітуге болмайды. «I блокадасы» потенциалдың бірден нөл болуын білдірмейді: басқа субстраттар, II, ATP гидролизі және мембрана күйі жауапты өзгертеді.
Wen және әріптестері бояғышты баламалы тасымалдағыш ретінде тәжірибелік жүйелерде зерттеді. Сызба MB⁺-ты I-дің матрикс жағына жақын донорлар не басқа флавопротеиндер тотықсыздандырып, кейін цитохром c немесе өзге акцепторға беруін болжайды. NAD(P)H-тәуелді редуктазалар, соның ішінде NQO1, лайық жасушада циклге қатыса алады; нақты ферментті тін, тежегіштер және генетикалық тәжірибелермен анықтау қажет. ықтимал жолды көрсетеді, бірақ барлық митохондрияда MB⁺–NDUFV1 тікелей жанасуын не әмбебап 0,8–1,5 мкМ-ді дәлелдемейді. ферменттік жолды немесе расталған химиялық кинетиканы талап етеді: потенциалды салыстыру матрикстегі жылдамдықты анықтамайды.
LMB Q қорынан кейін цитохром c-ні шынымен тотықсыздандырса, электрондар I→Q→III жолының бір бөлігін айналып өтеді. «I және III-ті толық шунттайды» деу тым күшті: FMN-нан электрон алу I-дің кемінде бөлігінің қатысуын талап етеді, ал III арқылы қалыпты ағын тоқтамауы мүмкін. Цитохром c-нің тотыққан түрі ішкі мембрананың дұрыс жағында қолжетімді болуы және IV қызметі сақталуы қажет. Цитохром c бір электрон береді; MB/LMB екі электрондық айналымы оның екі молекуласын тотықсыздандыра алады. Жасушада дәлелдеу үшін тежегіш профилі, оттегі мен ATP балансы керек, бір флуоресценттік көрсеткіштің жақсаруы жеткіліксіз.
IV-де электрон CuA-ға, кейін гем a мен гем a₃–CuB каталитикалық орталығына өтеді; онда оттегі суға айналады. Баламалы тасымал осы аймақты қолдаса да, I және III протон айдауын айналып өту электрон жұбына градиент жасайтын протон санын азайтады. Ротенон кезінде тыныстың сақталуы қалыпты ATP шығымының қалпына келуіне тең емес. Seahorse OCR оттегі тұтынуын көрсетеді, бірақ ATP-пен ұштасқан тынысты, протон ағып кетуін, митохондриядан тыс O₂ тұтынуын және бояғыштың оттегімен тікелей тотығуын бөлу керек. «10–100 нМ әрқашан OCR арттырады», «ATP жұпқа 1,0–1,5 болады», «ΔΨm −130…−150 мВ тұрақты» модель және калибрлеусіз клиникалық сипаттама емес.
Ротенон тәжірибесінде баламалы акцептор кейбір орталықтардың тотықсызданған күйде қалуын қысқартып, супероксидті азайтуы мүмкін. Бірақ оттегінің белсенді түрлері I бөгелген тура ағынмен де, жоғары потенциалда тотықсызданған Q қорынан кері тасымалмен де түзіледі; орны мен жылдамдығы субстрат және оттегіге тәуелді. LMB оттегімен қайта тотығып, кей жағдайда прооксидант циклге өзі қатысады. Бір өсіндіде маркерлердің азаюы барлық тінде «70–90%» әмбебап төмендеуді не реперфузиялық зақымның толық алдын алуды дәлелдемейді.
Кардиолипин тыныс кешендері мен кристаларды ұйымдастырады; зақымданғанда цитохром c-мен және оның пероксидаза белсенділігімен әрекеттеседі. I–III–IV суперкомплекстері — ұйымдасу деңгейі, бірақ әр электронның міндетті «туннельденуі» жағдайға тәуелді. MB модельде пероксидтік зақымды азайтса, мембрананы жанама сақтауы мүмкін; Met80–гем байланысын тікелей сақтау, пероксидазаны толық тежеу және белгілі құрамдағы респирасоманы сақтау бөлек өлшеулерді талап етеді. mPTP үшін де шек осындай: кальций, тотығу стрессі және потенциал ашылуға әсер етеді, нақты молекулалық құрамы талқылануда. «Пора міндетті түрде ATP-синтазаның c-сақина димерінен тұрып, белгілі ΔΨm-де жабылады» — әмбебап шек емес. MB мен NCLX-тәуелді Ca²⁺ шығарудың байланысы кальций және ATP ағындары тәуелсіз өлшенгенге дейін модельдік гипотеза.
Екі фазалы әсер: қисық неліктен дозаны белгілемейді
Редокс гормезисі әлсіз қайтымды стресс бейімделуді іске қосады, ал үлкен жүктеме электрон теңгерімін бұзады деп болжайды. Бұл метилен көгінің бірқатар жасушалық және жануарлық тәжірибелерінде, соның ішінде Гонсалес-Лима мектебінде байқалды. «Арндт–Шульц заңы» нақты модельдегі ықтимал қисықты сипаттайды, бірыңғай мг/кг шкаласы бар фармакологиялық заң емес. Ішкеннен кейін фермент жанындағы концентрация өсінді концентрациясынан тікелей есептелмейді: тұз, қандағы тотықсыздану, таралу, экспозиция және шығарылу әсер етеді.
Төмен тәжірибелік экспозицияда MB⁺ қайта тотықсыздануы мен LMB тотығуы NAD⁺/NADH, IV-ке электрон қолжетімділігі және сигналдарды өзгерте алады. Қыртыс не гиппокамптағы цитохром-c-оксидаза белсенділігі фермент саны, субстрат немесе тін құрамының өзгерісін білдіруі мүмкін; биогенез үшін органелла массасы, мтДНҚ, кешен құралуы және тыныс қызметі тәуелсіз өлшенуі керек. NAD⁺/SIRT1→PGC-1α деацетилденуі→NRF1/NRF2→TFAM — биологиялық негізді гипотеза. NAD⁺/NADH өзгеруі бүкіл себептік каскадты не бояғыштан жаңа криста түзілуін дәлелдемейді. «Күніне 20 000 электрон» және 30–40% белсенділік өсімі әдіссіз препарат қасиетіне айналмайды.
Үлкен экспозицияда тотықсыздану, физиологиялық акцепторларға беру және оттегімен реакцияның бәсекелі жылдамдықтары өзгереді. Автототығу деп ықшам көрсетіледі, бірақ аралық радикалдың түзілуі мен тағдыры нақты жүйеде талдануы керек; стрелкалар әмбебап жасушалық стехиометрия емес. NADPH жұмсалуы, глутатионредуктаза арқылы GSH қалпына келуінің төмендеуі, липидтердің пероксидтік зақымы және тыныстың ұштасуы бұзылуы ықтимал. Басқа жағдайда тотықтырғыш метгемоглобин үлесін арттыра алады — оны емдейтін дәрі үшін парадокс. Тін, доза және уақыт маңызды; «5–10 мкМ-ден жоғары» не «5–10 мг/кг-ден жоғары» жалпы қауіпсіздік шегін бермейді. Қарсы көрсетілімдер мен өзара әсерді «гормезистік» доза өтемейді.
Тау ақуызы, синапс және нейродегенерация
Тау (MAPT) аксон микротүтікшелерімен байланысып, динамикасына қатысады; тауопатияда фосфорлану, орналасу, конформация және агрегация бейімділігі өзгереді. Микротүтікшемен байланысатын домендегі PHF6* (), PHF6 (), R2/R3 қайталанымдары, изоформа және нақты филамент құрылымы маңызды. GSK‑3β, CDK5 не MARK гиперфосфорлауы байланысты азайтады, бірақ «фосфорлану → уытты олигомер → жұп спиральды филамент» жалғыз міндетті жол емес. Еритін агрегаттар, шумақтар және функция жоғалуы әртүрлі сұрақтарға жауап береді.
Вишик тобы фенотиазин бояғыштары тау жиналуын бұзып, бөлінген филаменттерге әсер ететінін көрсетті. Cys291 және Cys322 тиолдарының редокс химиясы нақты ақуыз конструкциясы мен ортадағы ықтимал механизм. Ол екі PHF мотивін үнемі «жабатын», барлық мономерді залалсыздандыратын жалғыз Cys291–Cys322 көпірін салуға негіз емес: дисульфид, молекулааралық тігіс және цистеин қолжетімділігі изоформа, концентрация және тотығуға тәуелді. Крио-ЭМ жетілген филамент бүктемесін көрсетеді, бірақ бояғыш байланысу орнын және тірі нейрондағы дайын филамент ыдырауын автоматты анықтамайды. In vitro белсенділік науқас миындағы әсерге тең емес.
Гидрометилтионин (LMTM, LMTX) — метилтиониний хлоридінен басқа фармакокинетика үшін жасалған бис(гидрометансульфонат) тұзы түріндегі тотықсызданған дәрілік форма. Тұз бен тотығу күйін өзгерту гематоэнцефалдық тосқауылдан «кедергісіз» өтуді не тұрақты емдік концентрацияны кепілдемейді: экспозиция өлшеніп, тиімділік алдын ала белгіленген нәтижелермен тексерілуі керек. III фаза төменде талданады; тартымды биохимиялық нысана теріс негізгі нәтижені түзетпейді.
Өсінді мен жануарларда Aβ агрегациясы, PSD‑95/синаптофизин сақталуы және кальций жүктемесі зерттелді. Aβ олигомерлері синапстық беруді және NMDA-тәуелді Ca²⁺ реттелуін бұзады, бірақ MB-ның Phe19/Phe20-мен тікелей байланысуы, пораның алдын алу және кейін ATP мен экзоцитозды толық сақтау бөлек құрылымдық, жасушалық және қызметтік тәжірибелерді қажет етеді; бір расталған тізбек емес. Пластикалық өзгеріске ATP-тәуелді ион сорғылары мен рецептор кешендері керек, бірақ Na⁺/K⁺-АТФазаға «ми ATP-сының 80%-ы» тұрақты үлесі барлық нейронды сипаттамайды.
Паркинсонизм модельдерінде ротенон және MPP⁺ I-ді зақымдайды; қара заттың дофаминдік нейрондары кең аксон тармақтары мен дофамин тотығуына байланысты осал. TH-оң жасушалар, дофамин мөлшері немесе қозғалыс тестінің сақталуы сол хаттамада тәжірибелік қорғанысты көрсетеді. Бұл әсер міндетті түрде I-дің тікелей шунтынан екенін растамайды, адамдарда Паркинсон баяулауын дәлелдемейді. MPTP, ротенон және идиопатиялық аурудың уақыты мен патогенезі әртүрлі.
Үйрену және шартты қорқынышты өшіру тәжірибелері MB-дан кейін нейрон желілерін зерттейді. Шаффер коллатералдары–CA1 LTP-сы, GluA1 фосфорлануы, AMPA/NMDA, CaMKII және ATP бірге өзгеруі мүмкін, бірақ бір мінез-құлық тапсырмасы толық молекулалық жолды дәлелдемейді. NMDA тиолдары редокс ортаға сезімтал; тікелей бояғыш әсерін электрофизиология және мутагенезбен зерттеуге болады, алайда нақты Cys жұптары мен ашылу ықтималдығының 30–40% азаюын пациент миына көшіруге болмайды. AMPK–mTORC1–ULK1 және PINK1/Parkin митофагиясы митохондрия сапасын бақылауды сипаттайды. LC3B‑II өсуі не PINK1 жиналуы аутофагия ағыны, лизосомалық аяқталу және органелла қалпына келуінсіз «хондриом тазаланғанын» дәлелдемейді. Түсіндіру шектері ацетил-L-карнитин туралы мақалада толығырақ берілген.
Адамдарда не зерттелді
Rodriguez және әріптестері шағын рандомизацияланған қос соқыр зерттеуде сау еріктілерге бір доза беріп, функционалдық МРТ және зейін/жады тапсырмаларын зерттеді. BOLD өзгерістері және еске түсірудің хабарланған шамамен 7% артықшылығы нақты тапсырма, уақыт пен іріктемеге қатысты. BOLD — нейрон белсенділігінің гемодинамикалық корреляты, IV электрон ағыны не ATP синтезінің тікелей өлшемі емес; MB тамырлық әсері энергетикалық түсіндіруді қиындатады. Сау адам тестіндегі статистикалық айырма тұрақты когнитивтік жақсару не деменция емін дәлелдемейді. 48 сағат тұрақтылық және «метаболизм үдеуі» әдістемені бөлек талдауды қажет етеді: перфузия мен BOLD метаболизмнің тікелей өлшемі емес.
Жеңіл және орташа Альцгеймердегі ірі LMTM сынағы жүздеген қатысушыда алдын ала белгіленген когнитивтік және қызметтік нәтижелерді бағалады. Жалпы рандомизацияланған популяцияда жоғары дозалар төмен бақылау дозасынан күтілген негізгі артықшылықты көрсетпеді. Басқа емсіз LMTM алғандарды кейін талдау монотерапия гипотезасын берді, бірақ топтарды рандомизациядан кейін өзгертіп, аралас себептерге осал. Бұдан холинэстераза тежегіштері шынайы әсерді «жойғанын» немесе LMTM қыртыс атрофиясын дәлелді баяулататынын айтуға болмайды. II фаза, LUCIDITY және NfL талдаулары дизайн, жарияланған нәтижелер және көптік салыстыруды бөлек бағалауды талап етеді. Онсыз «80% баяулау» не MCI тұрақтануы дәлелденбеген.
Кардиохирургиядан кейінгі вазоплегия және ауыр жағдайда MB NO–еритін гуанилатциклаза–цГМФ вазодилатациясына бағытталған қосымша ретінде қолданылды. Қабынулық iNOS индукциясы NO-ны көбейтеді; ол тегіс бұлшықет sGC гемімен байланысып цГМФ арттырады, PKG кальций мен жиырылуды босаңсуға бағыттайды. MB sGC, NOS және басқа редокс процестерге әсер етеді. Қысым өсуі не вазопрессордың азаюы — гемодинамикалық нәтиже, өлім-жітім төмендеуі не сепсистің әмбебап хаттамасы емес. Болюс, инфузия, SVRI өсімі, MAP нысаналары популяция, салыстыру, хаттама мен өзара әсерсіз жалпы ұсыныс емес.
Ишемиялық инсульт және бас-ми жарақатында tMCAO және бақыланатын қыртыстық соққы модельдері зақым, неврологиялық мінез-құлық, қабыну және тосқауыл өткізгіштігін бағалайды. Окклюзия/реперфузияға қатысты уақыт, ауырлық және инфаркт өлшеуі нәтижені өзгертеді. Кеміргіште ошақ азаюынан адамда «50–65% тиімділік» шықпайды. Микроглияның өтпелі күйлері көп, сондықтан «M1 өшірілді» физиологияны нашар сипаттайды.
Таралу, метаболизм және фармакокинетикалық жалпылаудың шегі
Енгізілгеннен кейін MB⁺ LMB-мен динамикалық тепе-теңдікте болып, қан компоненттерімен байланысады және су мен мембрана фазаларына таралады. Эритроцит, эндотелий, бауыр және басқа тіндердегі тотықсыздану әртүрлі; тек плазманың көк катионын өлшеу жалпы экспозицияны бермеуі мүмкін. ОЖЖ-ге ену тәжірибелік және фармакокинетикалық зерттеулерде көрсетілген, бірақ ми/плазма қатынасы түр, үлгі дайындау, уақыт және MB, LMB, метаболиттердің бірге өлшенуіне байланысты. Кестелік , міндетті OCT1/OCT2 және адам миындағы әмбебап 10–20 есе жиналуды әр режимге дәлелденген деуге болмайды. Абсолютті биожетімділік пен таралу көлемін де хаттамасыз түрлер мен енгізу жолдары арасында көшіруге болмайды.
NAD(P)H-тәуелді оксидоредуктазалар катионды тотықсыздандыра алады. NQO1 хинондық және басқа субстраттарға екі электрондық реакция қолданады; дәл MB цикліндегі қатысуы тінде расталуы керек. CYB5R3 b₅ арқылы физиологиялық NADH-тәуелді метгемоглобин жолына маңызды, бірақ барлық жасушада енгізілген MB-ның басты редукторы емес. Тиоредоксинредуктаза да редокс субстраттармен әрекеттеседі; үлесі белсенділік, NADPH және бәсекелес субстраттарға тәуелді. мкМ немесе «қордың 75–85%-ы үнемі LMB» нақты фермент тесті мен талдаусыз ағза тұрақтысы емес.
N-деметилдену азурлар мен тионин түзеді. Azure B — триметилденген, Azure A — диметилденген, Azure C — монометилденген; бояғыштар мен лейко түрлері спектр және фармакология бойынша айырмашылықты. MB→Azure B→Azure A/C→тионин ықтимал өзгерістер картасы, әр молекула барлық кезеңнен міндетті ретті өтуінің не CYP1A2 және CYP2D6 барлық фермент екенінің дәлелі емес. Метаболит үлесі уақыт пен әдіске тәуелді, сондықтан «Azure B = айналым дозасының 15–20%-ы» бастапқы талдауды қажет етеді. Конъюгация және бүйрек арқылы шығару бос бояғыш, тотықсызданған түр және талдаумен анықталған метаболитті ажыратуы тиіс.
Боялған заттар зәрді көк-жасыл етуі мүмкін; LMB ауада тотыға алады. Түс миға жеткен дозаны көрсетпейді, емді ұстану, тиімділік немесе қауіпсіздіктің сенімді сандық маркері емес. 5–6,5 сағат, «тәулікте бүйрекпен 70–80%» және ОЖЖ-де 18–24 сағат болуы әртүрлі талдамалық нәтижелерге қатысты болуы мүмкін; жол, түр, әдіссіз бір фармакокинетикалық модель болмайды.
Қауіпті өзара әсерлер және тәуекел топтары
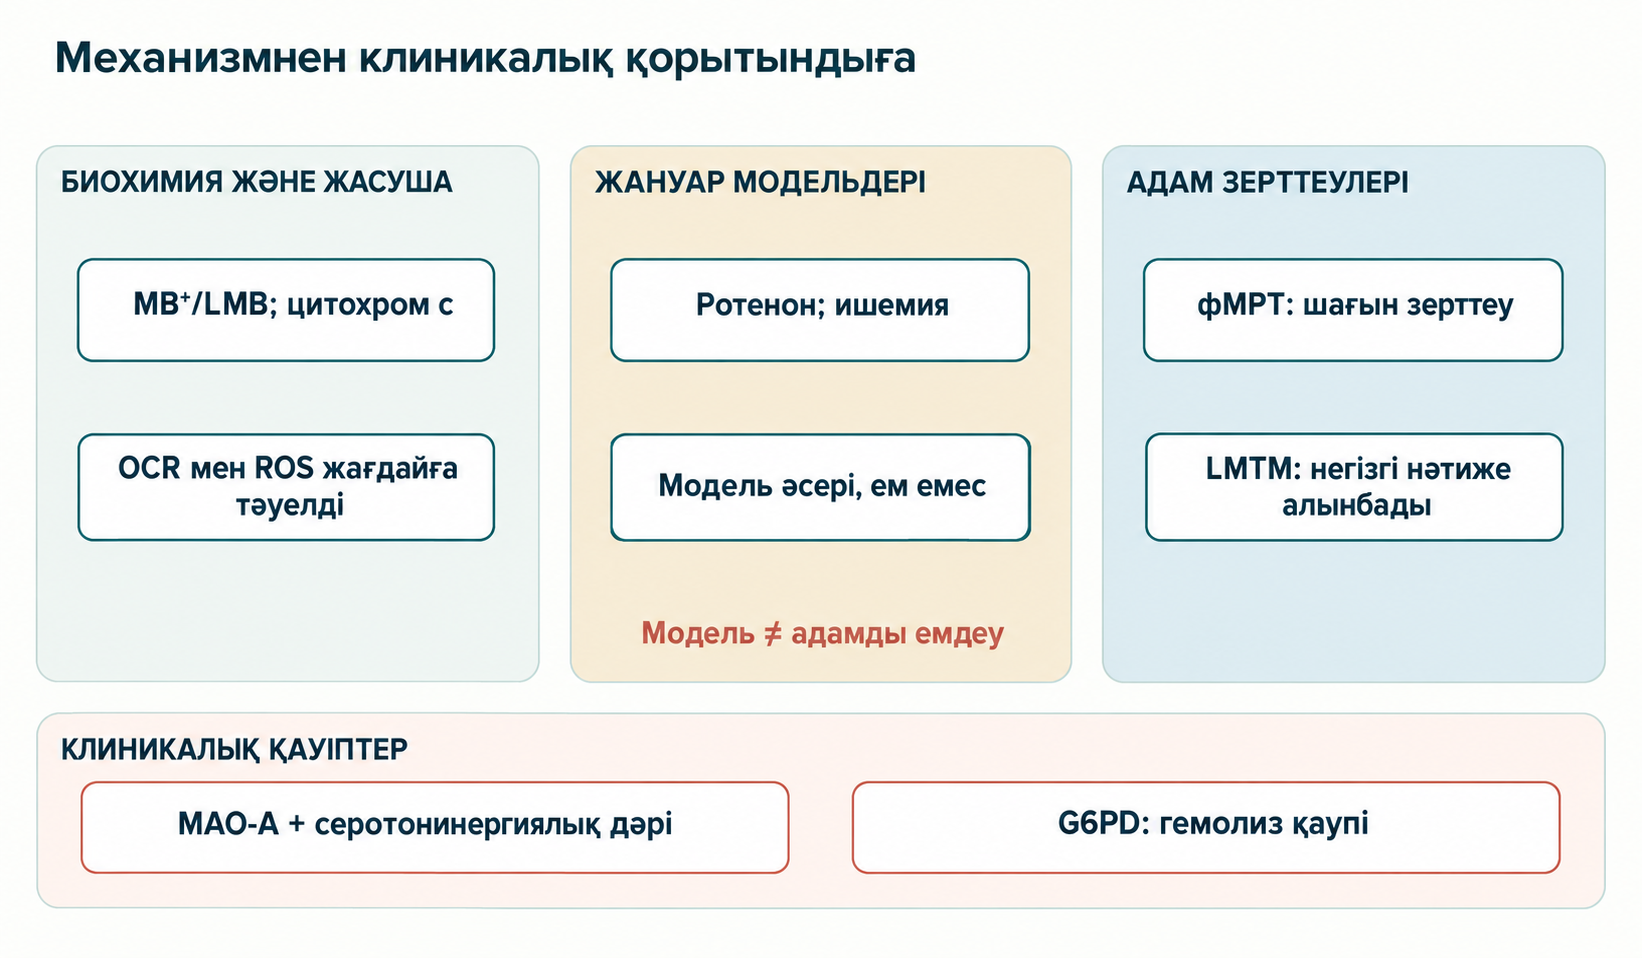
Моноаминоксидаза А тежелуі — MB-ның дербес әрекеті; қауіпсіздік үшін гипотезалық «митохондрияны оңтайландырудан» маңыздырақ. MAO‑A серотонин мен басқа моноаминдерді ыдыратады; оны тежеуді серотониндік беруді күшейтетін дәрілермен қосу уыттылық қаупін туғызады. SSRI, SNRI және басқа серотонинергиялық дәрілермен ауыр жағдайлар сипатталған. Клонус, гиперрефлексия, қозу, гипертермия және вегетативтік тұрақсыздық шұғыл бағалауды қажет етеді, бірақ ауырлық пен басталу уақыты өзгереді; «үнемі 2–6 сағатта, 40 °C-тан жоғары» қате. Бір in vitro тәжірибедегі мен MAO‑A/MAO‑B селективтілігі жағдай тексерілмей барлық түр мен пациент тұрақтысы бола алмайды. Антидепрессант тоқтату аралығы дәрі, белсенді метаболит, шұғылдық және қолданыстағы нұсқаулыққа тәуелді; MB үшін емді өздігінен тоқтату не ауыстыруға болмайды.
G6PD тапшылығы митохондриясыз, пентозофосфат жолына тәуелді эритроцитте NADPH түзілуін шектейді. NADPH аз болса бояғыш тотықсыздануы және глутатион қалпына келуі қиындайды; ем әсер етпеуі, тотығу гемолизді күшейтуі мүмкін. Гемоглобин зақымы, Гейнц денешігі, анемия, гемоглобинурия болуы мүмкін, бірақ генотип, қалдық белсенділік, метгемоглобинемия себебі және қатарлас ауру тәуекелді анықтайды. Дәрілік нұсқаулық, анамнез және зертхана — медициналық шешім, әмбебап онлайн тізім емес. Генотип пайыздары және кез келген жағдайда міндетті тест деген тұжырым хаттама мен шұғыл көмекті алмастырмайды.
Стандартталған дәрі мен зертханалық бояғыш сәйкестік, құрам, қоспа, микробиологиялық тазалық және таңбалау бақылауында ерекшеленеді. Техникалық не аквариум бояғышын дәрі ретінде қолдануға болмайды. Зат пайызы мен Pb/As/Cd/Hg/Zn шегі монографияға байланысты, барлық техникалық үлгіні сипаттамайды. Спецификация юрисдикция, форма және фармакопея басылымына тәуелді; құжатсыз сандар жалған сапа кепілдігін береді. Тіркелген форма мен нұсқаулықты анықтау маңыздырақ.
Жүктілік және неонаталдық кезең тәуекел мен пайданы бөлек бағалауды қажет етеді: амнион ішіне енгізуде ауыр ұрық асқынулары, ішек атрезиясы сипатталған, бірақ бұл жолды барлық жүйелік экспозициямен теңестіруге болмайды. Ескі «X/D» санаттары MB-ның дәл қазіргі әмбебап белгісі емес. Өмірге қауіп кезінде мамандар қолданыстағы нұсқаулықпен шешеді. Сұйықтық пен терінің боялуы, оптикалық өлшем және пульсоксиметр кедергісі де бақылауға маңызды.
Бұл деректер неліктен «митохондрия үшін» режим бермейді
Күніне 0,5–2 мг/кг, апталық титрлеу, міндетті майлы таңғы ас және «5 күн / 2 күн» циклі берілген клиникалық сынақтарда танымды жақсарту не нейродегенерацияны болдырмау үшін расталмаған. Метгемоглобинемия емі және вазоплегияның зерттеу режимі сау адамға амбулаториялық нұсқаулық болмайды. Аз дозада да өзара әсер, G6PD тапшылығы және дәрілік түр мәселесі қалады. eGFR, АЛТ/АСТ, қан мен жүктілікті бағалау нақты жағдайда орынды, бірақ eGFR >60 мл/мин/1,73 м² әмбебап рұқсат емес.
Q10, ацетил-L-карнитин, PQQ, NAD⁺ ізашарлары мен фотобиомодуляция «синергиялық стектері» осы нәтижелерге бір емдік комбинация ретінде сыналмаған. Убихинон ішкі мембрананың Q қорында бірнеше дегидрогеназадан III-ке электрон береді, «тек II-ні қолдамайды». Ацетил-L-карнитин ацетил топ алмасуына байланысты; ұзын ацил тасымалы CPT1–CACT–CPT2-ге тәуелді. Айырмасы карнитин шаттлы және CPT1 туралы мақалада түсіндірілген. Бояғыш жұтылуының қызыл жарықпен сәйкесуі транскраниалдық жарық нейрондағы керек концентрацияны тиімді қозғайтынын немесе ATP-ны екі еселейтінін дәлелдемейді. MB мен фотобиомодуляция үшін ену тереңдігі, дозиметрия, оттегі фотохимиясы және бақыланатын клиникалық нәтижелер қажет.
Заттарды дәлелсіз «оңтайландырғыш рейтингімен» емес, зерттелген қадам бойынша салыстыруға болады:
| Араласу немесе молекула | Зерттелген қадам | Механизмнен шықпайтын қорытынды |
|---|---|---|
| Метилен көгі | Модельдегі қайтымды редокс тасымал; метгемоглобинемия және NO–sGC дәрілік әсерлері | I және III-ті толық қауіпсіз шунттау не деменция емі |
| Коэнзим Q10 | Дегидрогеназалар мен III арасындағы эндогендік қор | Кез келген I блокадасын қалпына келтіру |
| Идебенон | Редуктазаға тәуелді синтетикалық хинон | Барлық тінде убихинонға теңдік |
| PQQ | Тәжірибелік редокс және сигнал жауаптары | Белгіленген дәрумен немесе клиникалық митохондрия стимуляторы мәртебесі |
| NAD⁺ ізашарлары | Никотинамид кофакторларының қолжетімділігі | Автоматты SIRT1/PGC‑1α белсенуі не кешенді алмастыру |
Метилен көгі электрон тасымалы, тамыр реттелуі және нейрон функциясы байланысын зерттеудің құнды құралы. Клиникалық қолдану көрсетілім, тіркелген форма, жеке қарсы көрсетілім және нақты нәтиже сынағына сүйенуі керек. Клиникаға дейінгі тасымал зерттеу қисынын түсіндіреді, бірақ Альцгеймер, Паркинсон, инсульт не сау «биоэнергетикалық жақсару» тиімділігін алмастырмайды. Алдағы басымдық — өлшенген MB/LMB тін экспозициясын нақты ағын, ATP-пен ұштасқан тыныс, өзара әсер зияны және белгілі популяциядағы маңызды нәтижемен салыстыру.
Шолу қалай дайындалды
Бұл 28 жарияланымға сүйенген метилен көгі және митохондриялық редокс алмасу туралы нарративтік шолу. 2026 жылғы 4 қазан редакциясында электрон тасымалы, MAO-A және Альцгеймердегі туындының клиникалық сынағы бойынша негізгі жұмыстар нысаналы салыстырылды. Толық іздеу, метаталдау және әр жұмыстың жүйелік ығысу қаупін формалдық бағалау жасалмады; басқа жазбалар толық мәтінмен жол-жол салыстырылмаған.
Редокс реакциясы, жасушалық не жануарлық әсер және клиникалық нәтиже ажыратылды. Концентрация, форма мен режим түсіндіруді өзгертеді; туынды деректері барлық форма нәтижесін алмастырмайды. Механизм гипотезасы әмбебап тиімділік пен қауіпсіздікті белгілемейді; қосымша және негізгі нәтижелер бөлек бағаланады.
Жиі қойылатын сұрақтар
Метилен көгі адамда I және III-ті айналып өте ме?
Тәжірибеде тежелген кешендер кезінде баламалы тасымалды қолдады. Адамда қалыпты ATP сақталатын толық тікелей шунт дәлелденбеген.
Альцгеймерді MB не LMTM-мен емдеу дәлелденген бе?
Жоқ. Ірі сынақ жалпы популяцияда негізгі нәтижелерге жетпеді; монотерапияның қосымша талдауы растаушы сынақты алмастырмайды.
Антидепрессантпен біріктіру неліктен қауіпті?
MB MAO-A-ны тежейді, көптеген антидепрессант серотониндік беруді күшейтеді; біріктіру ауыр уыттылық туғызуы мүмкін.
G6PD тапшылығы неліктен маңызды?
Эритроцит NADPH жасауға G6PD қажет. Тапшылықта дәрі метгемоглобинді қалпына келтірмей, гемолизге ықпал етуі мүмкін.
Зертханалық бояғыш не митохондриялық режим қолдануға бола ма?
Жоқ. Бояғыш дәрі ретінде бақыланбайды, ал бұл деректер митохондрияны жақсартатын әмбебап амбулаториялық режимді дәлелдемейді.
Дереккөздер
- Rodriguez P, Zhou W, Barrett DW, Altmeyer W, Gutierrez JE, Li J, Lancaster JL, Gonzalez-Lima F, Duong TQ. Multimodal Randomized Functional MR Imaging of the Effects of Methylene Blue in the Human Brain. Radiology. 2016 Nov;281(2):516-526. PMID: 27351678. DOI: 10.1148/radiol.2016152893.
- Atamna H, Nguyen A, Schultz C, Boyle K, Newberry J, Kato H, Ames BN. Methylene blue delays cellular senescence and enhances key mitochondrial biochemical pathways. FASEB J. 2008 Mar;22(3):703-12. PMID: 17928358. DOI: 10.1096/fj.07-9610com.
- Wen Y, Li W, Poteet EC, Xie L, Tan C, Yan LJ, Ju X, Liu R, Qian H, Marvin MA, Goldberg MS, She H, Mao Z, Simpkins JW, Yang SH. Alternative mitochondrial electron transfer as a novel strategy for neuroprotection. J Biol Chem. 2011 May 6;286(18):16504-15. PMID: 21454572. DOI: 10.1074/jbc.M110.208447.
- Gonzalez-Lima F, Auchter A. Protection against neurodegeneration with low-dose methylene blue and near-infrared light. Front Cell Neurosci. 2015 May 12;9:179. PMID: 26029050. DOI: 10.3389/fncel.2015.00179.
- Bruchey AK, Gonzalez-Lima F. Behavioral, physiological and biochemical hormetic responses to the autoxidizable dye methylene blue. Am J Pharmacol Toxicol. 2008;3(1):72-79. PMID: 20463863. DOI: 10.3844/ajptsp.2008.72.79.
- Rojas JC, Bruchey AK, Gonzalez-Lima F. Neurometabolic mechanisms for memory enhancement and neuroprotection of methylene blue. Prog Neurobiol. 2012 Jan;96(1):32-45. PMID: 22067440. DOI: 10.1016/j.pneurobio.2011.10.007.
- Ramsay RR, Dunford C, Gillman PK. Methylene blue and serotonin toxicity: inhibition of monoamine oxidase A (MAO A) confirms a theoretical prediction. Br J Pharmacol. 2007 Nov;152(6):946-51. PMID: 17721552. DOI: 10.1038/sj.bjp.0707430.
- Gillman PK. CNS toxicity involving methylene blue: the exemplar for understanding and predicting drug interactions that precipitate serotonin toxicity. J Psychopharmacol. 2011 Mar;25(3):429-36. PMID: 20142303. DOI: 10.1177/0269881109359098.
- Efficacy and safety of tau-aggregation inhibitor therapy in patients with mild or moderate Alzheimer's disease: a randomised, controlled, double-blind, parallel-arm, phase 3 trial. Lancet. 2016 Dec 10;388(10062):2873-2884. PMID: 27863809. DOI: 10.1016/S0140-6736(16)31275-2.
- Potential of Low Dose Leuco-Methylthioninium Bis(Hydromethanesulphonate) (LMTM) Monotherapy for Treatment of Mild Alzheimer's Disease: Cohort Analysis as First Step in Secondary Analysis of a Phase 3 Trial. J Alzheimers Dis. 2018;61(1):435-457. PMID: 29154277. DOI: 10.3233/JAD-170560.
- Wischik CM, Edwards PC, Lai RY, Roth M, Harrington CR. Selective inhibition of Alzheimer disease-like tau aggregation by phenothiazines. Proc Natl Acad Sci U S A. 1996 Oct 1;93(20):11213-8. PMID: 8855335. DOI: 10.1073/pnas.93.20.11213.
- Cellular Models of Aggregation, Efficacy of Leuco-Methylthioninium Salts, and Structure-Activity Relationships of Phenothiazine Inhibitors of Tau Aggregation. J Med Chem. 2015;58(24):9512-9524. PMID: 26555108. DOI: 10.1021/acs.jmedchem.5b01198.
- Peter C, Hongwan D, Kupfer A, Lauterburg BH. Pharmacokinetics and organ distribution of intravenous and oral methylene blue. Eur J Clin Pharmacol. 2000 Jun;56(3):247-50. PMID: 10952484. DOI: 10.1007/s002280000124.
- Kwok ES, Howes D. Use of methylene blue in sepsis: a systematic review. J Intensive Care Med. 2006 Nov-Dec;21(6):359-63. PMID: 17095500. DOI: 10.1177/0885066606290671.
- Hosseinian L, Weiner M, Levin MA, Fischer GW. Methylene Blue: Magic Bullet for Vasoplegia? Anesth Analg. 2016 Jan;122(1):194-201. PMID: 26678471. DOI: 10.1213/ANE.0000000000001045.
- Bradberry SM. Occupational methaemoglobinaemia. Mechanisms of production, features, diagnosis and management including methylene blue therapy. Toxicol Rev. 2003;22(1):13-27. PMID: 14579842. DOI: 10.2165/00139709-200322010-00003.
- Beutler E. Glucose-6-phosphate dehydrogenase deficiency. N Engl J Med. 1991 Jan 17;324(3):169-74. PMID: 1984188. DOI: 10.1056/NEJM199101173240306.
- Tucker D, Lu Y, Zhang Q. From Mitochondrial Function to Neuroprotection-an Emerging Role for Methylene Blue. Mol Neurobiol. 2018 Jun;55(6):5137-5153. PMID: 28840449. DOI: 10.1007/s12035-017-0712-2.
- Poteet EC, Winters A, Yan LJ, Shufelt K, Green KN, Simpkins JW, Wen Y, Yang SH. Neuroprotective actions of methylene blue and its derivatives. PLoS One. 2012;7(10):e48279. PMID: 23118969. DOI: 10.1371/journal.pone.0048279.
- Methylene blue restores cytochrome oxidase activity and prevents neurodegeneration and memory impairment in rats treated with the respiratory chain inhibitor rotenone. J Neurochem. 2008 Nov;107(3):691-700. PMID: 18761715. DOI: 10.1111/j.1471-4159.2008.05626.x.
- Riha PD, Bruchey AK, Echevarria DJ, Gonzalez-Lima F. Memory facilitation by methylene blue: dose-dependent effect on behavior and brain oxygen consumption. Eur J Pharmacol. 2005 Mar 7;511(2-3):151-8. PMID: 15792783. DOI: 10.1016/j.ejphar.2005.01.044.
- Wrubel KM, Riha PD, Maldonado MA, Hernandez D, Gonzalez-Lima F. The brain metabolic enhancer methylene blue improves learning and memory in prefrontal cortex-related tasks. Neurobiol Learn Mem. 2007 Apr;87(4):504-17. PMID: 17317228. DOI: 10.1016/j.nlm.2006.11.005.
- Mayer B, Brunner F, Schmidt K. Inhibition of soluble guanylyl cyclase by methylene blue. Biochem Pharmacol. 1993 Feb 24;45(2):367-74. PMID: 7679583. DOI: 10.1016/0006-2952(93)90124-t.
- Baddeley TC, McCaffrey J, Storey JM, Cheung JK, Melis V, et al. Complex Disposition of Methylthioninium Redox Forms Determines Efficacy in Tau Aggregation Prevention. J Pharmacol Exp Ther. 2015;352(1):110-118. PMID: 25332454. DOI: 10.1124/jpet.114.217737.
- Schirmer RH, Coulibaly B, Stich A, Scheiwein M, Merkle H, et al. Methylene blue as an antimalarial agent. Redox Rep. 2003;8(5):272-275. PMID: 14962363. DOI: 10.1179/135100003225002899.
- Wright RO, Lewander WJ, Woolf AD. Methemoglobinemia: etiology, pharmacology, and clinical management. Ann Emerg Med. 1999 Nov;34(5):646-56. PMID: 10533013. DOI: 10.1016/s0196-0644(99)70167-8.
- Shen Q, Du F, Huang S, Rodriguez P, Watts LT, Duong TQ. Neuroprotective efficacy of methylene blue in ischemic stroke: an MRI study. PLoS One. 2013 Nov 20;8(11):e80649. PMID: 24278278. DOI: 10.1371/journal.pone.0080649.
- Watts LT, Long JA, Manga H, Huang S, Shen Q, Duong TQ. Methylene blue decreases infarct volume and improves sensorimotor function in a rat model of ischemic stroke. Mol Neurobiol. 2014 Jun;49(3):1447-57. PMID: 24385258. DOI: 10.1007/s12035-013-8622-2.