Azul de metileno y mitocondrias: mecanismos y límites clínicos — NutriFit
Azul de metileno: ciclo redox, cadena respiratoria y límites de las conclusiones clínicas
Mecanismo MB⁺/LMB, transferencia alternativa y límites de medir respiración; estudios de tau, memoria y vasoplejía separados de la evidencia preclínica, con MAO-A, G6PD y farmacocinética.
El azul de metileno es un colorante medicinal con varios mecanismos distintos que no pueden reunirse en un único «protocolo mitocondrial». En los eritrocitos, la forma reducida participa en la conversión de metahemoglobina en hemoglobina; en modelos celulares y animales se han observado transferencia alternativa de electrones y cambios respiratorios; en la pared vascular puede suprimir la señal NO–sGC–GMPc. Los ensayos en demencia y los pequeños estudios de neuroimagen responden a preguntas diferentes de los experimentos con mitocondrias aisladas. La dosis, la vía de administración, el estado de oxidación y las interacciones farmacológicas determinan qué mecanismo puede manifestarse.
Historia: del colorante al medicamento
Heinrich Caro sintetizó el cloruro de metiltioninio a finales del siglo XIX como colorante industrial de fenotiazina. Paul Ehrlich aprovechó su capacidad de teñir estructuras vivas, y los experimentos sobre malaria con Paul Guttmann constituyeron un ejemplo histórico de quimioterapia sintética temprana. Sin embargo, la tinción selectiva de un parásito o una neurona no demuestra un tropismo infalible por el tejido enfermo: la acumulación depende de distribución, membranas, entorno redox y tiempo de exposición. La «bala mágica» es importante para la historia farmacológica, pero no demuestra eficacia clínica actual contra la malaria o la neurodegeneración.
El tratamiento de la metahemoglobinemia adquirida con una preparación medicinal de azul de metileno según indicaciones establecidas ocupa un lugar clínico propio. La metahemoglobina contiene Fe³⁺ y no transporta oxígeno como la hemoglobina funcional con Fe²⁺. El colorante reducido, leucoazul de metileno (LMB), puede donar electrones a la metahemoglobina y volver al estado oxidado. La vía fisiológica eritrocitaria de reducción utiliza principalmente NADH y citocromo-b₅-reductasa CYB5R3, mientras que para reducir el azul de metileno administrado resulta importante una vía dependiente de NADPH. Esta diferencia explica por qué la deficiencia de G6PD y la disponibilidad de NADPH son críticas para la respuesta. La reacción no restaura instantáneamente la oxigenación «en segundos» en todos los pacientes; efecto y vigilancia dependen de gravedad, causa e hipoxia concomitante.
El uso médico en vasoplejía posoperatoria y shock se investiga por separado. La inhibición de guanilato ciclasa soluble y la modificación de vasodilatación dependiente de NO ofrecen un mecanismo posible de aumento del tono vascular; el papel de iNOS y el efecto final dependen de inflamación y hemodinámica. La disponibilidad de un medicamento para una indicación no convierte cada aplicación experimental en vasoplejía o sepsis en tratamiento estándar. Asimismo, los experimentos en cultivos neuronales y animales no establecen terapias para Alzheimer o Parkinson.
La molécula y el par redox MB⁺/LMB
El cloruro de metiltioninio es una sal catiónica con esqueleto de fenotiazina y dos grupos dimetilamino. La sal anhidra tiene fórmula C16H18ClN3S y masa molar aproximada de 319,85g/mol; el hidrato contiene agua adicional, por lo que deben distinguirse contenido de sustancia y masa de la formulación concreta. El sistema π conjugado explica la absorción visible y el color azul de la forma oxidada. El máximo de absorción y la dimerización dependen de disolvente, pH, fuerza iónica, concentración y método óptico. Los valores de 664 y 605 nm pueden describir condiciones concretas, pero «siempre dímeros estrictamente por encima de 10 μM» y «todas las moléculas nanomolares son exclusivamente monómeros» no son propiedades universales.
La transición de dos electrones puede representarse como MB++2e−+H+⇌LMB. MB⁺ es el catión coloreado y LMB la leucoforma reducida; la reacción inversa devuelve el transportador al estado oxidado en la célula. Carga formal, protonación y reparto entre membrana y agua afectan la disponibilidad de reactivos. El cambio de color es útil analíticamente, pero por sí solo no mide flujo electrónico por un complejo mitocondrial. Un ángulo diedro estrictamente fijo de 110–115°, dos valores universales de logP y difusión de LMB invariablemente rápida a través de cualquier barrera requieren mediciones en un entorno determinado.
En condiciones de referencia suele citarse un E∘′ del orden de +0,011V a pH 7. No es el potencial de cualquier célula: el potencial real depende de la relación MB⁺/LMB, pH y unión; la ecuación de Nernst describe su desplazamiento para una transición de dos electrones. Los potenciales de NAD⁺/NADH, flavinas, centros Fe–S, ubiquinona y citocromo c también dependen del entorno proteico. Los centros Fe–S individuales y los reservorios de membrana no se comportan como disoluciones libres. Una diferencia positiva entre potenciales estándar hace plausible termodinámicamente la transferencia, pero no «garantiza» una reacción sin acceso al centro, donante adecuado y velocidad de intercambio suficiente.
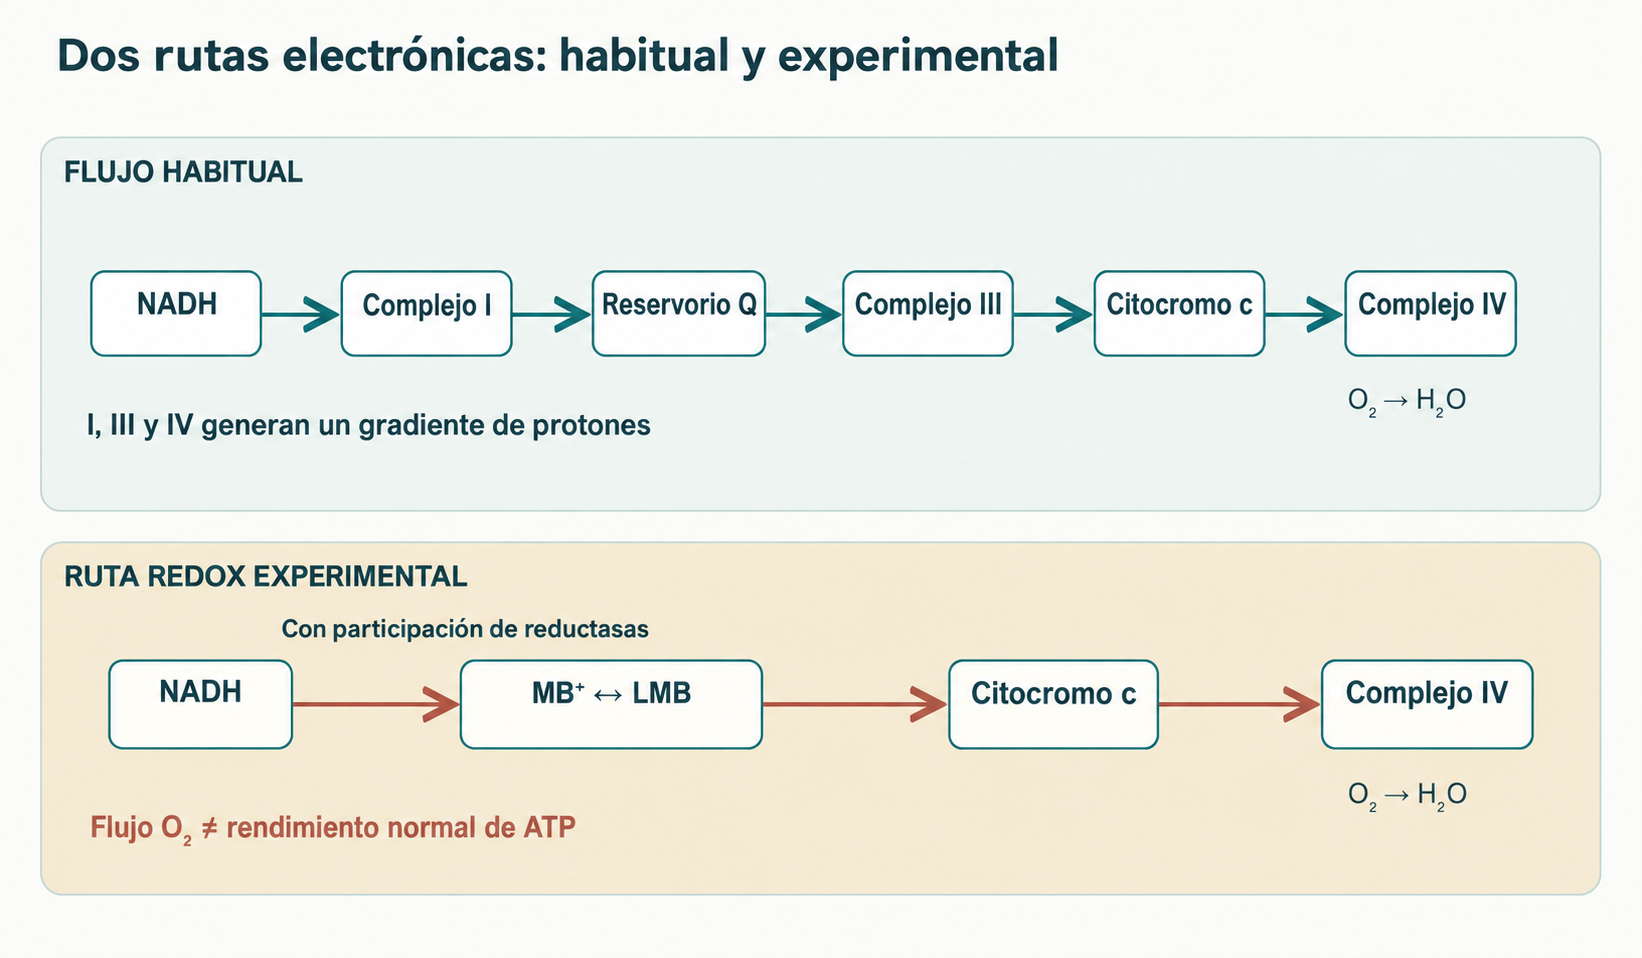
Para un paso de dos electrones, energía estándar y diferencia de potencial se relacionan mediante ΔG∘′=−nFΔE∘′, con n=2 y F la constante de Faraday. Sustituir −0,320, +0,011 y +0,254V produce valores negativos para una cadena hipotética NADH→MB→citocromo c. Pero su suma describe la energética de pares estándar definidos, no el rendimiento de ATP medido ni el desvío completo del complejo III en una neurona. En el organismo varían actividades de componentes y gradiente protónico, y otros enzimas pueden reducir el azul de metileno, que puede donar electrones a otros aceptores, incluido oxígeno. La imagen de un «sumidero electrónico irresistible» describe incorrectamente un ciclo redox reversible.
Dónde puede existir un flujo electrónico alternativo
La membrana mitocondrial interna acopla la transferencia electrónica con la salida de protones de la matriz. El complejo I recibe electrones de NADH en el mononucleótido de flavina (FMN) y los transmite por centros Fe–S a la ubiquinona. La ubiquinona reducida alimenta el complejo III, que los transmite al citocromo c móvil; el complejo IV reduce oxígeno a agua. I, III y IV contribuyen a la fuerza protón-motriz, utilizada por ATP sintasa para sintetizar ATP. Un balance sencillo por par de electrones de NADH en una cadena totalmente acoplada da aproximadamente 4, 4 y 2 protones translocados, respectivamente. Es un modelo idealizado; el rendimiento real depende de fugas, transporte de fosfato y nucleótidos de adenina y estado celular.
El brazo matricial del complejo I con NDUFV1/FMN y centros Fe–S está separado de la región membranosa de unión de ubiquinona; su arquitectura acopla reacción redox y bombeo protónico. La rotenona bloquea el sitio Q y MPP⁺ altera el complejo I en modelos tóxicos; en isquemia y reperfusión también importan acumulación de succinato, reducción del reservorio Q y conformación enzimática. Las estructuras muestran varios centros Fe–S, pero número y secuencia de transferencia solo tienen sentido para la especie y estructura indicadas; no pueden fijarse para todas las variantes. «Bloquear I» tampoco implica potencial de membrana inmediatamente nulo: otros sustratos, complejo II, hidrólisis de ATP y estado membranoso modifican la respuesta.
Wen y colaboradores estudiaron el azul de metileno como transportador alternativo en sistemas experimentales. La propuesta supone reducir MB⁺ con donantes disponibles cerca del lado matricial del complejo I u otras flavoproteínas, y donar después electrones a citocromo c u otro aceptor. Reductasas dependientes de NAD(P)H, incluida NQO1, pueden participar en células adecuadas; la identidad del enzima debe contrastarse por tejido, inhibidores y experimentos genéticos. FMNH2+MB+→FMN+LMB+H+ representa esquemáticamente una vía posible, pero no demuestra contacto directo MB⁺–NDUFV1 en toda mitocondria ni un Km universal de 0,8–1,5 μM. La reacción paralela NADH+MB+→NAD++LMB necesita una vía enzimática o cinética química confirmada: comparar potenciales no establece su velocidad matricial.
Si LMB reduce efectivamente citocromo c después del reservorio Q, los electrones evitan parte del recorrido I→Q→III. «Desvía completamente los complejos I y III» es excesivo: recibir electrones de FMN implica participación de al menos parte de I, mientras que el flujo habitual por III en la misma célula no tiene por qué cesar. La vía necesita citocromo c oxidado accesible en el lado adecuado de la membrana interna y actividad de IV conservada. El citocromo c transfiere un electrón; un ciclo de dos electrones MB/LMB podría reducir dos moléculas. Demostrarlo celularmente exige perfil de inhibidores y balances de oxígeno y ATP, no solo mejorar un indicador fluorescente.
En IV, el citocromo c transmite un electrón a CuA, luego al hemo a y al centro catalítico hemo a₃–CuB, donde el oxígeno se reduce a agua. Aunque la vía alternativa mantenga este tramo, evitar el bombeo de I y III deja menos protones generadores de gradiente por par electrónico. Mantener respiración con rotenona no equivale automáticamente a restaurar rendimiento normal de ATP. El OCR por Seahorse mide consumo de oxígeno, pero exige separar respiración ligada a ATP, fuga protónica, consumo no mitocondrial de O₂ y oxidación directa del colorante reducido por oxígeno. «10–100 nM siempre elevan OCR», «ATP alcanza 1,0–1,5 por par» y «ΔΨm permanece en −130…−150 mV», sin modelo y calibración, no son características clínicas de la molécula.
Con rotenona, un aceptor alternativo puede acortar el tiempo que ciertos centros permanecen reducidos y disminuir superóxido. Sin embargo, las especies reactivas de oxígeno (ERO) aparecen tanto en flujo directo con bloqueo de I como en transferencia inversa desde Q reducido con potencial elevado; localización y velocidad dependen de sustratos y oxígeno. LMB también puede reoxidarse con oxígeno y participar en un ciclo prooxidante. Una reducción de marcadores de ERO en un cultivo concreto no demuestra una «reducción del 70–90%» universal ni prevención completa de lesión por reperfusión.
La cardiolipina contribuye a organizar complejos respiratorios y crestas; dañada, puede interactuar con citocromo c y participar en su actividad peroxidasa. Los supercomplejos I–III–IV son un nivel organizativo, pero la obligatoriedad de «tunelización» de cada electrón sigue siendo contextual. Si MB disminuye daño peroxidativo en un modelo, puede preservar indirectamente la membrana; retener directamente el enlace Met80–hemo, bloquear toda actividad peroxidasa y mantener una respirasoma de composición concreta requieren mediciones estructurales y bioquímicas independientes. Lo mismo vale para mPTP: carga de calcio, estrés oxidativo y potencial afectan su apertura, pero se debate su organización molecular precisa. «El poro siempre es un dímero del anillo c de ATP sintasa y se cierra a un ΔΨm concreto» no es un umbral universal establecido. El vínculo MB–eliminación de Ca²⁺ dependiente de NCLX sigue siendo hipótesis de un modelo hasta medir por separado flujos de calcio y ATP.
Efectos bifásicos: por qué la curva no define una dosis
La hormesis redox propone que un estrés reversible leve activa respuestas adaptativas, mientras una carga mayor altera el equilibrio electrónico. Se ha observado este comportamiento en varios experimentos celulares y animales con azul de metileno, incluidos los de Gonzalez-Lima. Aquí la «ley de Arndt–Schulz» describe una posible curva en un modelo, no una ley farmacológica con escala única de miligramos por kilogramo. La concentración en un enzima tras administración oral no se deduce directamente de la del cultivo: influyen sal, reducción sanguínea, distribución, exposición y eliminación.
A baja exposición experimental, reducir repetidamente MB⁺ y oxidar LMB puede modificar NAD⁺/NADH, electrones disponibles para IV y señalización. Una mayor actividad citocromo-c-oxidasa en corteza o hipocampo puede reflejar cantidad enzimática, suministro de sustratos o composición celular del tejido; demostrar biogénesis exige indicadores independientes de masa de orgánulos, ADNmt, ensamblaje de complejos y función respiratoria. NAD⁺/SIRT1→desacetilación de PGC-1α→NRF1/NRF2→TFAM es una hipótesis biológicamente plausible. Cambiar NAD⁺/NADH no demuestra por sí solo toda la cascada ni nuevas crestas causadas por el colorante. «20 000 electrones diarios» y aumento de actividad del 30–40%, sin método definido, no se convierten en propiedades del medicamento.
Con mayor exposición cambian las velocidades competidoras de reducción, donación a aceptores fisiológicos y reacción con oxígeno. La autooxidación puede simplificarse como LMB+O2→MB∙+O2∙−+H+, pero formación y destino del radical intermedio necesitan análisis del sistema concreto; flechas sucesivas no demuestran estequiometría celular universal. Las consecuencias posibles incluyen consumo de equivalentes reductores NADPH, menor regeneración de GSH por glutatión reductasa, peroxidación lipídica y desacoplamiento. En otras condiciones el colorante oxidante puede elevar metahemoglobina, paradójicamente para un tratamiento contra ella. Dependen de tejido, dosis y tiempo; «más de 5–10 μM» y «más de 5–10 mg/kg» no forman una frontera general de seguridad. Una dosis supuestamente hormética no compensa contraindicaciones ni interacciones.
Proteína tau, sinapsis y neurodegeneración
Tau (MAPT) se une a los microtúbulos axonales y organiza su dinámica; las tauopatías alteran fosforilación, localización, conformación y tendencia agregativa. Importan PHF6* (275VQIINK280) y PHF6 (306VQIVYK311) en el dominio de unión a microtúbulos, contexto de repeticiones R2/R3, isoforma y estructura del filamento. La hiperfosforilación por GSK‑3β, CDK5 o MARK puede reducir la unión a microtúbulos, pero «fosforilación → oligómero tóxico → filamento helicoidal pareado» no es la única vía obligatoria. Agregados solubles, ovillos y pérdida funcional responden a preguntas distintas.
El grupo de Wischik mostró que los colorantes de fenotiazina pueden interferir con ensamblaje de tau y afectar filamentos aislados. La química redox de tioles Cys291 y Cys322 es un mecanismo posible en una construcción proteica y entorno concretos. No permite dibujar un único puente intramolecular Cys291–Cys322 que siempre «protege» ambos motivos PHF y neutraliza cualquier monómero: enlace disulfuro, entrecruzamiento intermolecular y accesibilidad de cisteínas dependen de isoforma, concentración y oxidación. Las estructuras por crio-EM muestran pliegues de filamentos maduros, pero no fijan automáticamente unión del colorante ni dinámica de destrucción de filamentos preexistentes en una neurona viva. Actividad in vitro no equivale a efecto cerebral en el paciente.
La hidrometiltionina (LMTM, LMTX) es una forma medicinal reducida como sal bis(hidrometanosulfonato), desarrollada con farmacocinética diferente del cloruro de metiltioninio. Cambiar sal y estado de oxidación no garantiza atravesar «sin obstáculos» la barrera hematoencefálica ni concentraciones terapéuticas estables: se debe medir exposición clínica y comprobar eficacia con criterios predefinidos. Los resultados de fase III se analizan abajo; una diana bioquímicamente atractiva no corrige un resultado clínico primario negativo.
En cultivos y animales también se estudiaron agregación de Aβ, conservación de PSD‑95/sinaptofisina y respuestas al calcio. Oligómeros Aβ pueden alterar transmisión y regulación de Ca²⁺ dependiente de NMDA, pero la unión directa MB–Phe19/Phe20, prevención de poros y posterior conservación total de ATP y exocitosis requieren experimentos estructurales, celulares y funcionales separados; no son una sola cadena causal confirmada. La plasticidad necesita bombas iónicas dependientes de ATP y receptores funcionales, pero «80% de todo ATP cerebral» como proporción fija de Na⁺/K⁺-ATPasa no describe toda neurona y actividad.
En modelos de parkinsonismo, rotenona y MPP⁺ dañan I; las neuronas dopaminérgicas de sustancia negra son además vulnerables por extensa arborización axonal y química oxidativa de dopamina. Conservar células TH positivas, dopamina o ejecución motora con el colorante indica protección experimental en ese protocolo. No confirma que el desvío directo de I sea necesariamente la causa ni demuestra ralentizar Parkinson en humanos. MPTP, rotenona y enfermedad idiopática difieren en tiempos y patogenia.
Los experimentos de aprendizaje y extinción del miedo estudian redes neuronales tras MB. LTP en colaterales de Schaffer–CA1, fosforilación de GluA1, señales AMPA/NMDA, CaMKII y ATP pueden cambiar conjuntamente, pero mejorar una tarea no demuestra toda la ruta. Los tioles de NMDA son sensibles al entorno redox; un efecto directo puede estudiarse por electrofisiología y mutagénesis, pero pares Cys fijos y reducción de apertura del 30–40% en sistemas concretos no se trasladan al cerebro del paciente. AMPK–mTORC1–ULK1 y mitofagia PINK1/Parkin describen control de calidad mitocondrial. Aumentar LC3B‑II o acumular PINK1 sin analizar flujo autofágico, finalización lisosomal y recuperación funcional no demuestra «limpiar la población mitocondrial». Los límites de interpretación de estos experimentos se desarrollan en el artículo sobre acetil-L-carnitina.
Qué se investigó en humanos
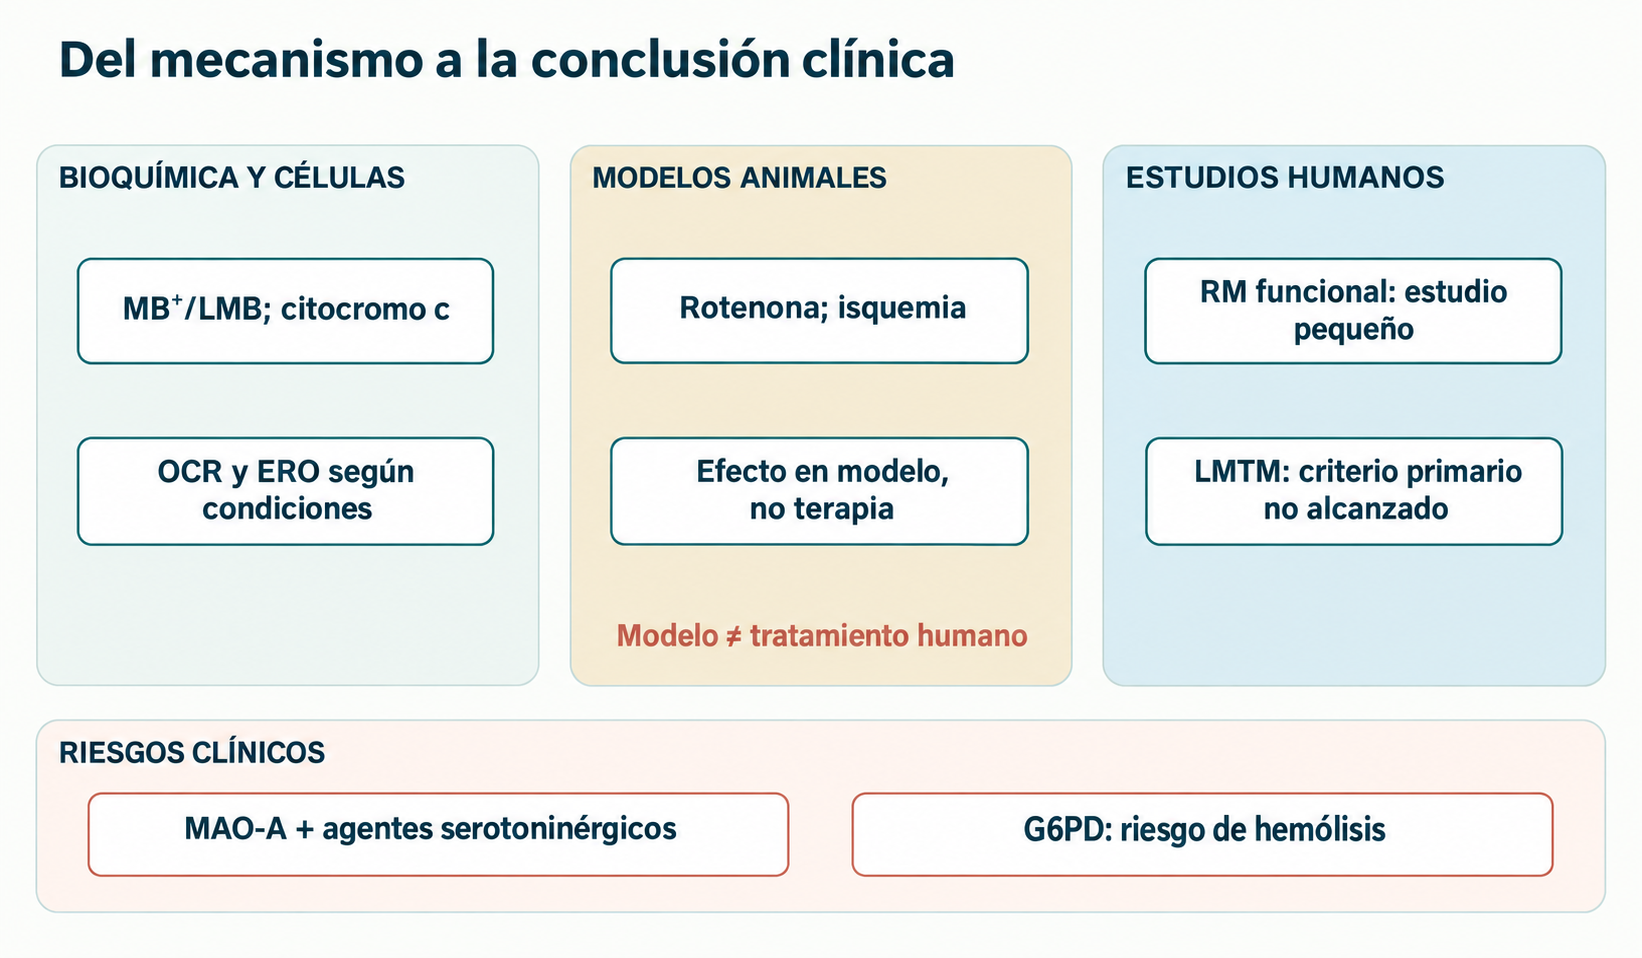
Rodriguez y colaboradores estudiaron una dosis única en voluntarios sanos mediante un pequeño ensayo aleatorizado doble ciego con resonancia funcional y tareas de atención/memoria. Cambios BOLD regionales y una ventaja comunicada de aproximadamente 7% en recuerdo corresponden a tareas, momento y muestra concretos. BOLD mide un correlato hemodinámico de actividad neuronal, no flujo directo por IV ni síntesis de ATP; los efectos vasculares de MB complican la interpretación energética. Incluso una diferencia estadísticamente significativa en personas sanas no establece mejoría cognitiva sostenida ni tratamiento de demencia. La persistencia 48 horas y «aceleración metabólica» requieren análisis metodológico propio: perfusión y BOLD no son mediciones directas de metabolismo.
Un gran ensayo de LMTM en Alzheimer leve a moderado incluyó cientos de participantes y evaluó cognición y función con criterios predefinidos. En la población aleatorizada total, los criterios primarios no mostraron la ventaja esperada de dosis altas respecto a la baja de control. Analizar después participantes con LMTM sin otra terapia generó una hipótesis sobre monoterapia, pero cambia grupos tras aleatorización y es susceptible a confusión. No permite afirmar que inhibidores de colinesterasa «anularon» el efecto real ni que LMTM frena demostrablemente atrofia cortical. Fase II, LUCIDITY y análisis de NfL requieren evaluación independiente de diseño, criterios publicados y comparaciones múltiples. Sin ella no están demostrados «80% de ralentización» ni estabilización de deterioro cognitivo leve.
En vasoplejía poscardiocirugía o enfermedad crítica, MB se usó como coadyuvante dirigido a vasodilatación NO–guanilato ciclasa soluble–GMPc. Inducir iNOS inflamatoriamente aumenta NO, que se une al hemo de sGC en músculo liso y eleva GMPc; PKG desplaza balance de calcio y aparato contráctil hacia relajación. MB puede afectar sGC y NOS, además de otras acciones redox. Aumentar presión o disminuir vasopresores en un estudio es un resultado hemodinámico, no prueba de menor mortalidad o protocolo universal de sepsis. Bolos, infusiones, incremento de SVRI y MAP objetivo no forman recomendaciones universales sin población, comparación, protocolo e interacciones.
En ictus isquémico y traumatismo craneoencefálico, tMCAO e impacto cortical controlado evalúan lesión, conducta neurológica, inflamación y permeabilidad de barrera. Tiempo respecto a oclusión/reperfusión, gravedad y medida de infarto cambian mucho el resultado. Reducir lesión en roedores no significa «50–65% de eficacia» humana. La microglía presenta muchos estados transitorios, por lo que «M1 apagado» describe mal su fisiología.
Distribución, metabolismo y límites de la generalización farmacocinética
Tras administración, MB⁺ está en equilibrio dinámico con LMB, se une a componentes sanguíneos y se reparte entre fases acuosa y membranosa. La reducción varía en eritrocitos, endotelio, hígado y otros tejidos; medir solo el catión azul plasmático puede no reflejar exposición total a sustancia y forma reducida. La penetración al sistema nervioso central se ha observado experimental y farmacocinéticamente, pero la relación cerebro/plasma depende de especie, preparación de muestras, tiempo y medida conjunta o separada de MB, LMB y metabolitos. Valores tabulados de logP, transporte obligatorio OCT1/OCT2 y acumulación universal 10–20 veces mayor en cerebro humano no deben considerarse establecidos para todos los regímenes. Biodisponibilidad absoluta y volumen de distribución tampoco se trasladan entre formulaciones y vías sin protocolo.
Oxidorreductasas dependientes de NAD(P)H pueden reducir el catión fenotiazínico celular. NQO1 realiza reacciones de dos electrones con diversos sustratos quinónicos y otros; su participación en el ciclo de MB necesita confirmación tisular. CYB5R3 es importante en la reducción fisiológica de metahemoglobina con NADH y citocromo b₅, pero no significa que siempre sea la reductasa principal de MB administrado en toda célula. La tiorredoxina reductasa también interacciona con sustratos redox; su contribución depende de actividad, NADPH y competidores. Un Km=1,2 μM o «75–85% del reservorio celular siempre es LMB», sin ensayo y analítica definidos, no son constantes generales del organismo.
La N-desmetilación sucesiva forma azures y tionina. Azure B está trimetilado, Azure A dimetilado y Azure C monometilado; colorantes y leucoformas difieren en espectros y farmacología. MB→Azure B→Azure A/C→tionina representa transformaciones posibles, pero no demuestra tránsito obligatorio de cada molécula por todas las etapas ni que CYP1A2 y CYP2D6 sean todos los enzimas. La proporción depende del muestreo y método, por lo que «Azure B = 15–20% de dosis circulante» requiere análisis primario. Conjugación y excreción renal también exigen distinguir colorante libre, formas reducidas y metabolitos identificados analíticamente.
La excreción puede teñir la orina azul verdosa; LMB puede oxidarse al aire. El color no indica la fracción que llegó al cerebro ni es marcador cuantitativo fiable de adherencia, eficacia o seguridad. T1/2 de 5–6,5 horas, «70–80% renal en un día» y permanencia 18–24 horas en SNC pueden corresponder a distintos resultados analíticos; sin vía, forma y método no deben formar un único modelo farmacocinético.
Interacciones peligrosas y grupos de riesgo
La inhibición de monoaminooxidasa A es una acción independiente de MB, mucho más importante clínicamente para la seguridad que una «optimización mitocondrial» hipotética. MAO‑A degrada serotonina y otras monoaminas; combinar su inhibición con fármacos que aumentan transmisión serotoninérgica crea riesgo de toxicidad. Se describen casos graves con ISRS, IRSN y otros serotoninérgicos. Clono, hiperreflexia, agitación, hipertermia e inestabilidad autonómica requieren evaluación urgente, pero gravedad e inicio varían; «siempre en 2–6 horas y por encima de 40 °C» sería falso. Ki y selectividad MAO‑A/MAO‑B de un experimento in vitro no son constantes universales de formulaciones y pacientes sin revisar condiciones. Los intervalos de retirada de antidepresivos dependen de fármaco, metabolitos activos, urgencia e información vigente; suspender o sustituir por cuenta propia el tratamiento para tomar MB es inadmisible.
La deficiencia de G6PD limita NADPH en eritrocitos, sin mitocondrias y dependientes de la vía de pentosas fosfato. Con NADPH insuficiente se dificultan reducción del colorante y regeneración de glutatión reducido; el tratamiento puede fallar y la oxidación agravar hemólisis. Daño de hemoglobina, cuerpos de Heinz, anemia y hemoglobinuria son una cadena posible, pero genotipo, actividad residual, causa de metahemoglobinemia y comorbilidades determinan riesgo. Cumplir información del medicamento y valorar antecedentes y laboratorio es una decisión médica, no una lista universal en línea. Porcentajes genotípicos o exigencia de prueba en toda circunstancia no sustituyen protocolo y urgencia asistencial.
Medicamento estandarizado y colorante de laboratorio difieren en controles de identidad, contenido, impurezas, calidad microbiológica y etiquetado. No se debe usar colorante técnico o de acuario como medicamento. Porcentajes exactos y límites Pb/As/Cd/Hg/Zn varían por monografía y no describen toda muestra técnica. La especificación depende de jurisdicción, forma y edición farmacopéica; sin documento correspondiente, las cifras ofrecen garantía falsa. Es más importante verificar la forma registrada y su información.
Embarazo y período neonatal requieren valorar por separado riesgo y beneficio: se han descrito complicaciones fetales graves, incluida atresia intestinal, con administración intraamniótica, pero no se puede equiparar esta vía a toda exposición sistémica. Las categorías históricas «X/D» no son designaciones modernas precisas y universales para MB. En situaciones vitales decide el equipo especializado según información vigente. Coloración de líquidos y piel, interferencias ópticas y posibles errores de pulsioximetría también importan para monitorización.
Por qué estos datos no definen un régimen «para las mitocondrias»
Un protocolo diario de 0,5–2 mg/kg, titulación semanal, desayuno obligatorio con grasas y ciclos «5 días / 2 días» no está respaldado por los ensayos presentados para mejorar cognición o prevenir neurodegeneración. Regímenes de metahemoglobinemia y esquemas experimentales de vasoplejía no pueden transformarse en instrucciones ambulatorias para personas sanas. Aun con poca dosis persisten interacciones, deficiencia de G6PD y problemas de formulación. Comparar filtrado glomerular, ALT/AST, hemograma y embarazo puede ser adecuado en una situación clínica, pero eGFR >60 mL/min/1,73 m² no es un permiso diagnóstico universal.
Las «combinaciones sinérgicas» de coenzima Q10, acetil-L-carnitina, PQQ, precursores de NAD⁺ y fotobiomodulación no se han ensayado como una combinación terapéutica para estos resultados. Ubiquinona ocupa el reservorio Q interno y transfiere electrones de varias deshidrogenasas a III; no «sostiene solo II». Acetil-L-carnitina participa en intercambio de grupos acetilo, mientras el transporte de acilos largos depende de CPT1–CACT–CPT2; se explica en el artículo sobre la lanzadera de carnitina y CPT1. Coincidir absorción del colorante y luz roja no demuestra excitación transcraneal eficaz de la concentración neuronal necesaria ni duplicación de ATP. Combinar MB y fotobiomodulación exige considerar penetración, dosimetría, fotoquímica del oxígeno y resultados clínicos controlados.
Los agentes se comparan por la etapa estudiada, no por una «clasificación de optimizadores» sin demostrar:
Intervención o molécula
Etapa investigada
Qué no demuestra el mecanismo
Azul de metileno
Transferencia redox reversible en modelos; acciones medicinales en metahemoglobinemia y NO–sGC
Desvío completo seguro de I y III o tratamiento de demencia
Coenzima Q10
Reservorio endógeno membranoso entre varias deshidrogenasas y III
Restaurar cualquier bloqueo de I
Idebenona
Quinona sintética con farmacología dependiente de reductasas
Equivalencia a ubiquinona en todo tejido
PQQ
Respuestas redox y de señalización experimentales
Estatus de vitamina establecida o estimulante mitocondrial clínico
Precursores de NAD⁺
Disponibilidad de cofactores de nicotinamida
Activación automática SIRT1/PGC‑1α o sustitución de un complejo respiratorio
MB sigue siendo una herramienta valiosa para estudiar transporte electrónico, regulación vascular y función neuronal. Su uso clínico debe basarse en indicación, forma registrada, contraindicaciones individuales y ensayos sobre resultados concretos. La transferencia preclínica explica la racionalidad de investigar, pero no sustituye eficacia en Alzheimer, Parkinson, ictus o «mejora bioenergética» saludable. La prioridad es relacionar exposición tisular medida MB/LMB con flujo real, respiración ligada a ATP, daño por interacciones y resultados clínicos relevantes en poblaciones definidas.
Cómo se preparó esta revisión
Esta revisión narrativa de azul de metileno y metabolismo redox mitocondrial parte de una selección de 28 publicaciones. En la edición del 4 de octubre de 2026 se contrastaron selectivamente trabajos clave sobre transferencia electrónica, inhibición de MAO-A y ensayo de un derivado en Alzheimer. No se realizó búsqueda exhaustiva, metaanálisis ni evaluación formal de sesgo de cada estudio; las demás entradas no se verificaron línea por línea contra textos completos.
Se distinguen reacción redox, efecto celular o animal y resultado clínico. Concentración, forma y régimen modifican la interpretación; datos de un derivado medicinal no sustituyen resultados para toda formulación de MB. Una hipótesis mecanística no establece eficacia ni seguridad universales; resultados secundarios y primarios se evalúan por separado.
Preguntas frecuentes
¿Desvía el azul de metileno los complejos I y III humanos?
En experimentos sostuvo transferencia alternativa durante su inhibición. No está demostrado el desvío directo completo con ATP normal en humanos.
¿Está demostrado tratar Alzheimer con azul de metileno o LMTM?
No. El gran ensayo no alcanzó criterios primarios en la población total; los análisis secundarios de monoterapia no sustituyen un ensayo confirmatorio.
¿Por qué es peligroso combinarlo con antidepresivos?
Inhibe MAO-A y muchos antidepresivos aumentan transmisión serotoninérgica; combinarlos puede causar toxicidad grave.
¿Por qué importa la deficiencia de G6PD?
Los eritrocitos necesitan G6PD para producir NADPH. Con deficiencia, el medicamento puede no reducir metahemoglobina y favorecer hemólisis.
¿Puede usarse colorante de laboratorio o un protocolo mitocondrial?
No. El colorante no se controla como medicamento y estos datos no demuestran un protocolo ambulatorio universal de mejora mitocondrial.