Жовчні кислоти, FXR і TGR5: вісь кишківник–печінка
Синтез і кон’югація жовчних кислот, BSH/bai, транспорт, FXR–FGF19 і TGR5. Ліпіди, GLP-1, термогенез, випробування MASH та межі доказів.
Синтез і кон’югація жовчних кислот, BSH/bai, транспорт, FXR–FGF19 і TGR5. Ліпіди, GLP-1, термогенез, випробування MASH та межі доказів.
Жовчні кислоти поєднують три різні функції: травлення харчових жирів, виведення холестерину та клітинну сигналізацію. У просвіті кишки вони входять до змішаних міцел; усередині клітини окремі сполуки активують ядерний рецептор FXR; на поверхні певних клітин діють через TGR5. Для кожної функції важливі інші хімічні форми, концентрації та місця дії. Тому твердження «більше жовчі — кращий метаболізм» не відповідає фізіології: нестача в просвіті погіршує всмоктування жирів, а надмірна дія гідрофобних кислот в іншому компартменті може ушкоджувати мембрани.
Мікробні перетворення, ілеальний транспорт і печінковий зворотний зв’язок змінюють склад пулу без єдиного гарантованого корисного результату. Посилення секреції GLP-1 у клітинному досліді або зменшення експресії ліпогенного гена саме собою не доводить лікування ожиріння чи метаболічно асоційованого стеатогепатиту, MASH.
Основні первинні кислоти людини — холева, CA, та хенодезоксихолева, CDCA. Класичний шлях починається в ендоплазматичному ретикулумі гепатоцита з CYP7A1, холестерин-7α-гідроксилази. Ця P450-монооксигеназа вводить один атом кисню в субстрат, а другий відновлює до води, отримуючи відновні еквіваленти через NADPH і P450-редуктазу.
HSD3B7 окиснює 3β-гідроксильну групу та переміщує подвійний зв’язок, утворюючи 7α-гідрокси-4-холестен-3-он, C4. Його концентрація у крові використовується в окремих дослідницьких і діагностичних завданнях як непрямий показник синтезу жовчних кислот. На результат впливають час забору, захворювання й метод; це не пряме вимірювання всього потоку.
CYP8B1 вводить 12α-гідроксил і спрямовує проміжні сполуки до CA. Без цього кроку переважає утворення CDCA. AKR1D1 відновлює подвійний зв’язок із формуванням 5β-конфігурації, а ферменти, зокрема AKR1C4, відновлюють 3-кетогрупу до 3α-гідроксилу. CYP27A1 окиснює бічний ланцюг; далі пероксисомні AMACR, ACOX2, HSD17B4 і SCPx беруть участь у перетворенні C27-попередників на C24-кислоти. ACOX2 не можна замінити ACOX1: їхня субстратна спеціалізація різна.
Альтернативний шлях починається з мітохондріального CYP27A1, після чого CYP7B1 у ретикулумі здійснює 7α-гідроксилювання оксистеролів. Історичне найменування «27-гідроксилаза» зберігається, хоча систематична номенклатура враховує стереохімію кінцевого 26-гідроксилювання. Шлях особливо пов’язаний із CDCA; його внесок залежить від віку, стану печінки та субстратів. Постійні частки «90% проти 10%» не характеризують усіх людей.
Зігнутий 5β-стероїдний скелет має гідрофільний бік із гідроксилами та більш гідрофобну протилежну поверхню. У CA є 3α, 7α і 12α-гідроксили, у CDCA — 3α і 7α. Мікробне видалення 7α-гідроксилу дає відповідно DCA і LCA. Менше гідроксилів часто означає більшу гідрофобність, але важлива їхня орієнтація: UDCA має 7β-групу і відрізняється від CDCA за однакового числа атомів кисню.
| Кислота | Основні гідроксили | Походження та важлива відмінність |
|---|---|---|
| CA | 3α, 7α, 12α | Первинна; попередник DCA |
| CDCA | 3α, 7α | Первинна; виражена активність FXR у низці тестів |
| DCA | 3α, 12α | Вторинна, після перетворення CA |
| LCA | 3α | Вторинна, після перетворення CDCA; захист потребує метаболізму й виведення |
| UDCA | 3α, 7β | Продукт епімеризації та лікарська речовина з власними показаннями; не еквівалент сильного агоніста FXR |
Індекс гідрофобності є результатом аналітичного порівняння за визначених умов, а не універсальною шкалою токсичності. У системі Heuman (1989) для тауринових кон’югатів tauro-CA відповідає 0, tauro-LCA — 1; tauro-UDCA має −0,47, tauro-CDCA +0,46 і tauro-DCA +0,59. Ці числа не можна переносити на вільні кислоти, довільний pH або силу рецепторної активації. Для суміші можливий зважений показник:
де (x_i) — молярні частки, виміряні за порівнянних умов. Він не замінює інформації про мономери, міцели та клітинну експозицію.
Печінковий SLC27A5, також BACS/FATP5, активує кислоту з утворенням CoA-тіоефіру. BAAT переносить ацильну групу на гліцин або таурин, створюючи амідний зв’язок:
— стероїдвмісний залишок, приєднаний до карбонілу; — для гліцину або для таурину. Формула показує зв’язки; протонування за біологічного pH розглядається окремо. ATP перетворюється тут на AMP, не лише ADP. Кон’югація знижує pKa: орієнтовно до 4 для гліцинових і приблизно 1–2 для тауринових форм проти близько 5 для багатьох вільних кислот; точні значення залежать від середовища.
Для монопротонної кислоти частку нейтральної HA описує рівняння Гендерсона–Гассельбаха:
При pH 7,4 і pKa 5 частка становить приблизно 0,4%, при pKa 4 — близько 0,04%. Це приклад рівноваги, а не точний прогноз ушкодження мембрани. Вільні кислоти крові не обов’язково переважно незаряджені; кон’югати також не «100% іонізовані» за будь-якого pH. Кисла мікрозона підвищує частку нейтральних гліцинових форм, що важливо для холангіоцитів.
Кон’югати сприяють розчиненню ліпідів і залишаються в просвіті до транспортного захоплення. Змішані міцели містять також фосфоліпіди, холестерин, моногліцериди й жирні кислоти. Критична концентрація міцелоутворення залежить від складу, солей і pH. Жовчні кислоти полегшують доступ до ліпідної межі та відведення продуктів травлення; панкреатична ліпаза і коліпаза залишаються окремою ферментною системою. Не можна звести травлення до рецептора, який безпосередньо «вмикає ліпазу».
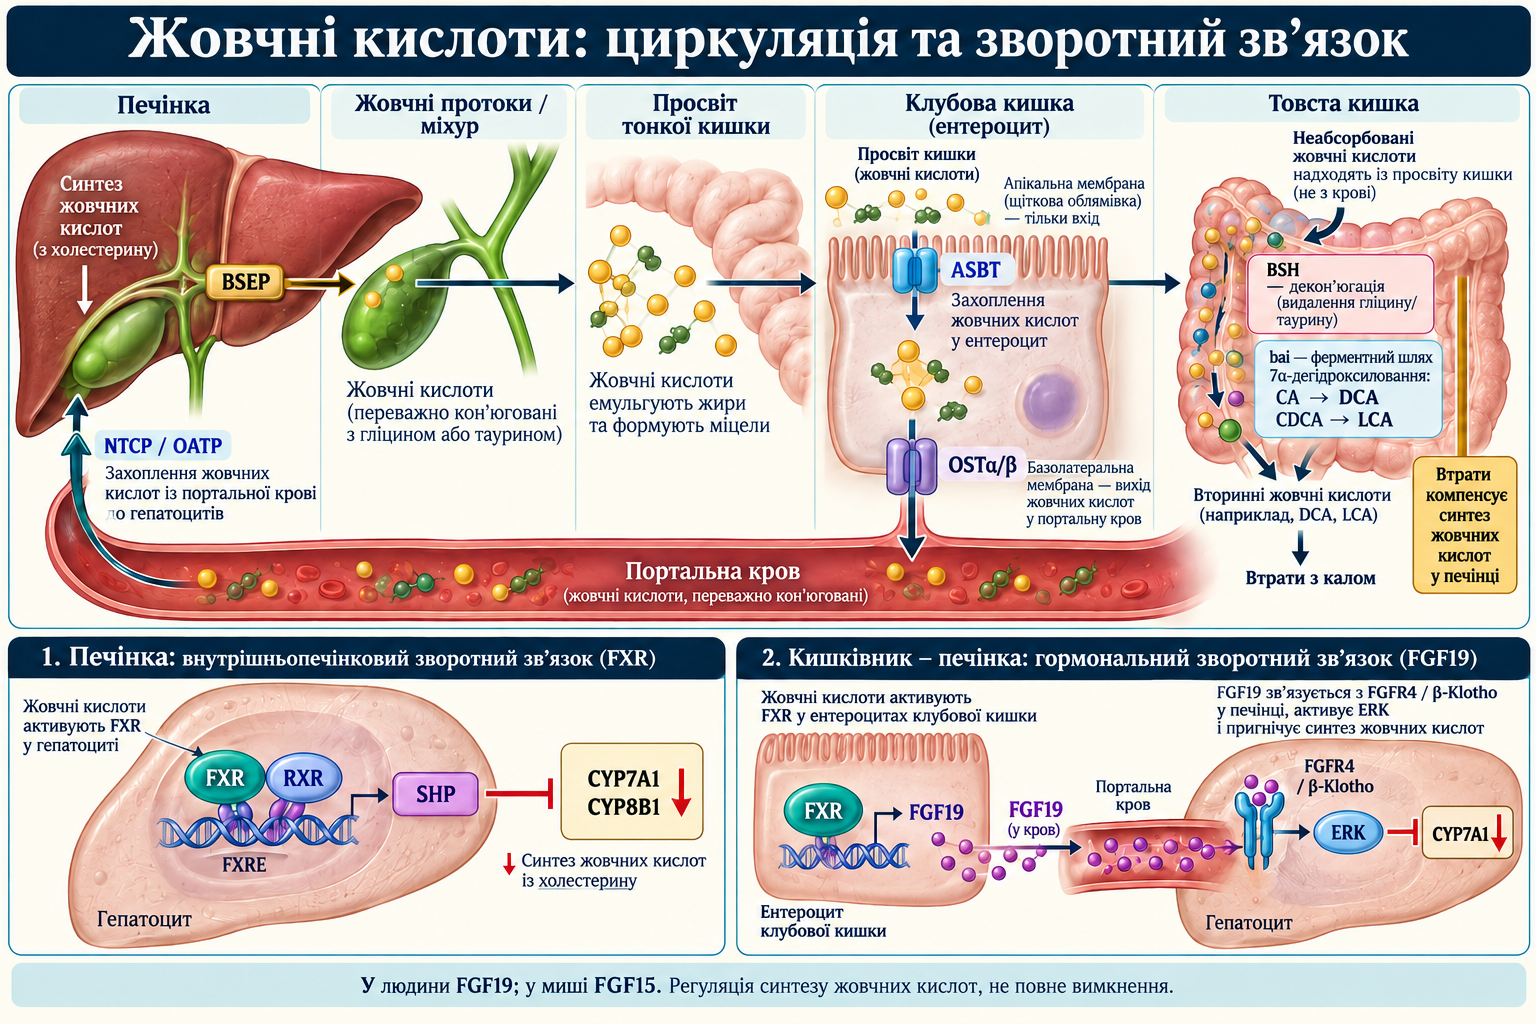
BSEP, кодований ABCB11, переносить жовчні солі з гепатоцита в канальцеву жовч. Він має дві трансмембранні половини і два нуклеотидзв’язувальні домени. ATP-залежні конформаційні переходи змінюють доступ до субстратної порожнини. Два місця зв’язування ATP не слід автоматично називати двома однаково активними каталізаторами: асиметричні ABC-транспортери можуть мати функціонально різні сайти.
MDR3/ABCB4 переносить фосфатидилхолін до зовнішнього шару канальцевої мембрани, звідки він потрапляє в жовч; це флопазна активність за напрямком. ABCG5/ABCG8 беруть участь в експорті стеролів. Фосфоліпіди обмежують дію вільних детергентних мономерів на епітелій. Обсяг потоку та його склад — різні характеристики.
Дефекти ABCB11 і ABCB4 пов’язані зі спадковим холестазом, зокрема PFIC2 і PFIC3. Пригнічення BSEP окремими ліками є можливим механізмом медикаментозного ушкодження печінки, але не пояснює всіх випадків і не завжди є простою конкуренцією. Накопичення кислот, адаптивний транспорт та імунні процеси взаємодіють.
PDB 3V8D містить CYP7A1 із 7-кетохолестерином, а не безпосереднє зображення реакції холестерину через Compound I. Гем і тіолатний ліганд підтримують загальну P450-хімію, проте відстань із іншим лігандом не є універсальною відстанню до реакційного атома.
TGR5 у структурі 7CFM зв’язаний із синтетичним P395; Yang et al. (2020) дослідили також INT-777. Це допомагає пояснити впізнавання лігандів і G-білковий комплекс, але не дозволяє приписати LCA всі ті самі контакти. PDB 5W21 — FGF23–FGFR1c–α-Klotho, не FGF19–FGFR4–β-Klotho. Підміна α- та β-Klotho змінює саму систему сигналізації. Тут не потрібні вигадані атомні відстані, константи чи число субодиниць.
Гідролази жовчних солей, BSH, розщеплюють амідний зв’язок, вивільняючи гліцин або таурин і вільну кислоту. Субстратами бувають первинні кон’югати та вже перетворені кон’юговані кислоти. Активність розподілена між бактеріальними групами й залежить від ферменту та субстрату. Більше BSH не означає автоматично здоровішу мікробіоту.
Декон’югація змінює розчинність, транспорт і доступність для наступних ферментів. Вона потрібна для канонічного 7α-дегідроксилювання, але не є обов’язковим першим кроком будь-якої мікробної модифікації. Передчасна декон’югація в тонкій кишці може порушувати міцели та всмоктування жирів. Це пов’язано з SIBO, моторикою та межами дихальних тестів, але один рівень DCA не доводить бактеріального надмірного росту.
Спеціалізовані анаероби, включно з Clostridium scindens, перетворюють CA на DCA та CDCA на LCA. Послідовність bai включає активацію, окиснення A-кільця, дегідратацію та відновлення. Важливі окиснення 3-гідроксилу й ненасичені проміжні продукти; BaiE забезпечує дегідратаційний етап, пов’язаний із втратою 7α-гідроксилу. Опис «спочатку 7α-OH стає 7-кето, потім просто видаляється цей кисень» для всього шляху неправильний.
Funabashi et al. (2020) відновили багатоступеневе перетворення шістьма ферментами in vitro та перенесли функції в експериментальну бактеріальну систему. Це доводить достатність ферментного набору, не ефективність лікувального пробіотика. Кількість бактерій, експресія, субстрати й транзит разом визначають потік; мала відносна чисельність не обов’язково означає малий метаболічний внесок.
Епімеризація 7-гідроксилу відбувається іншим шляхом — через 7-оксо-проміжний продукт за участю 7α- та 7β-гідроксистероїддегідрогеназ. Так CDCA може перетворюватися на UDCA, іноді через обмін метаболітами між видами. Саме тут доречний 7-оксо-етап. Напрям залежить від субстратів і редокс-умов.
Пул дорослої людини часто містить кілька грамів і проходить повторні цикли за добу. Ефективне повернення дозволяє багаторазове використання. «Повертається близько 95%» стосується проходу, а не фіксованої втрати 5% пулу за добу незалежно від числа циклів.
P — маса пулу, S — новий синтез, L — втрати; S і L можна виражати в г/добу. Для спрощених однакових циклів:
де N — добове число оборотів, r — частка повернення за оборот. P = 3 г, N = 4 і r = 0,95 дають приблизно 0,6 г/добу. Це навчальний приклад, не універсальна норма. Склад, їжа, транзит і всмоктування неоднорідні; діарея чи резекція клубової кишки змінюють втрати та зворотний зв’язок.
| Ділянка | Учасники | Напрям та енергія |
|---|---|---|
| Канальцева мембрана печінки | BSEP | Гепатоцит → жовч; ATP-залежний експорт |
| Апікальна мембрана ілеального ентероцита | ASBT/SLC10A2 | Просвіт → клітина; Na⁺-спряжене захоплення |
| Усередині ентероцита | FABP6/IBABP | Зв’язування і внутрішній розподіл |
| Базолатеральна мембрана ентероцита | OSTα/OSTβ | Клітина → портальна кров; полегшений транспорт |
| Синусоїдна мембрана гепатоцита | NTCP та OATP | Кров → печінка; різні механізми й перекривна специфічність |
OSTα/β не можна розташувати на апікальній щітковій облямівці разом з ASBT. NTCP особливо важливий для Na⁺-залежного захоплення кон’югованих солей; OATP мають перекривні субстрати. Поділ «лише кон’юговані проти лише вільних» надто жорсткий. LCA сульфатується, зокрема SULT2A1, та зазнає інших реакцій детоксикації. Це обмежує повернення, не роблячи всмоктування абсолютно нульовим.
FXR/NR1H4 — ядерний рецептор, фізіологічні ліганди якого встановили Makishima і Parks (1999). TGR5/GPBAR1 — мембранний G-білокспряжений рецептор, досліджений Maruyama (2002) і Kawamata (2003). Доступність ліганду та клітинні наслідки різняться.
CDCA є сильним ендогенним активатором FXR у багатьох функціональних тестах. Для TGR5 часто активніші LCA, DCA та їхні кон’югати; додавання tauro-LCA змінює порядок порівняно з таблицею вільних кислот. Гідрофобність не є єдиною шкалою для всіх рецепторів. LCA взаємодіє також із VDR і PXR, пов’язаними з метаболічним захистом.
EC50 — концентрація половинного максимального функціонального відгуку в конкретному тесті, Kd — рівноважна константа зв’язування. Вони не обов’язково однакові. Транспорт, рецепторний резерв та підсилення сигналу впливають на EC50:
Тут E₀ — вихідна відповідь, Emax — максимальний приріст понад неї, а EC₅₀ має ті самі одиниці концентрації, що й C.
де C — доступний ліганд, n — коефіцієнт Гілла. Крива не перетворює сумарну концентрацію плазмових кислот на активацію всіх рецепторів. Важливі альбумін, хімічні види, портальна чи периферична кров і час після їжі.
FXR має N-кінцеву ділянку активації, ДНК-зв’язувальний домен із цинковими пальцями, шарнір і лігандзв’язувальний домен з AF-2. Часто він утворює гетеродимер із RXR на елементах, зокрема IR-1. Ліганд змінює взаємодію з корепресорами та коактиваторами SRC, p300 і CBP, впливаючи на хроматин. Пряме зв’язування ДНК і непряма репресія — різні процеси.
У печінці FXR індукує SHP/NR0B2 — атиповий ядерний рецептор без власного ДНК-зв’язувального домену. Через LRH-1, HNF4α та регуляторні комплекси він зменшує CYP7A1 і CYP8B1. Це негативний зворотний зв’язок, не незворотне вимкнення синтезу. Хроматинні ферменти, зокрема G9a в окремих моделях, не працюють обов’язково однаково на всіх генах і в усіх тканинах (Goodwin et al., 2000).
FXR клубової кишки сприяє утворенню FGF19 у людини; у миші функціональний аналог — FGF15. Білок надходить у кров і діє на печінковий FGFR4 із корецептором β-Klotho. Це портальний кров’яний маршрут, не просвіт жовчної протоки. Кіназні каскади, включно з ERK, пригнічують CYP7A1 (Inagaki et al., 2005).
β-Klotho допомагає впізнавати ендокринні FGF і разом із відповідним FGFR забезпечує тканинну вибірковість. Домени KL1 і KL2 організують взаємодії; C-кінцеві частини FGF19/FGF21 відрізняються від FGF23 з α-Klotho. Менша спорідненість до гепарансульфату сприяє циркуляції, але це не просто «видалений гепариновий домен». Не можна призначати універсальну Kd або обов’язковий гексамер без даних відповідного комплексу.
FGF19 впливає також на вуглеводний і енергетичний обмін. Фармакологічна стимуляція FGFR4, тривалість впливу та безпека є окремими питаннями. Фізіологічний механізм не доводить безпечності необмеженого підсилення.
p300 і NAD⁺-залежна деацетилаза SIRT1 регулюють ацетилювання FXR. Kemper et al. (2009) дослідили передусім Lys217, з меншим внеском Lys157. Ацетилювання може стабілізувати білок і водночас погіршити зв’язування RXR та транскрипційну функцію. Більше рецептора не означає більше корисної активності.
Деацетилювання не є постійним перемикачем «максимальної активності». Важливі цикли станів, коактиватори, харчування та метаболічне середовище. Клітинні й мишачі досліди з ресвератролом не підтверджують клінічної нормалізації FXR добавками ресвератролу, NMN або NR у кожного пацієнта. NAD⁺ — компонент регуляції, а не доведений універсальний дефіцит при всіх стеатозах.
FXR/SHP можуть пригнічувати програми SREBP-1c і знижувати ACC, FASN та SCD1 у відповідних моделях. Інсулін, Akt/mTOR і субстрати залишаються регуляторами ліпогенезу. Без клінічного дослідження не можна обіцяти фіксоване «зниження на 60–80% у людини» або повну зупинку синтезу.
Pineda Torra et al. (2003) досліджували FXR–PPARα у людських клітинах і промоторних системах. PPARα регулює гени окиснення. CPT1A утворює ацилкарнітин, CACT переносить його крізь внутрішню мітохондріальну мембрану, CPT2 відновлює ацил-CoA. CPT1A є ацилтрансферазою, не самостійним каналом усієї мембрани. Малоніл-CoA обмежує вхід; його зниження не усуває всіх перешкод окисненню. Послідовність людського промотора PPARα, чутлива до FXR, не була збережена в мишачому промоторі: вид є частиною механістичного висновку.
CD36 посилює захоплення жирних кислот і може збільшувати їхній приплив у печінку, тому не є однозначним захисним маркером. ACOX1 працює в пероксисомному окисненні жирних кислот, ACOX2 також обробляє жовчні проміжні продукти. Експресія не вимірює енергетичний потік без додаткових даних (Watanabe et al., 2004).
APOC2 є кофактором ліпопротеїнліпази, APOC3 обмежує кліренс багатих тригліцеридами частинок кількома механізмами. Kast (2001) і Claudel (2003) показали транскрипційну регуляцію FXR. Вона пояснює можливі зміни тригліцеридів, не роблячи будь-яку жовчну кислоту ліпідознижувальним препаратом.
FXR може зменшувати PCSK9 у людських гепатоцитах. Проте невелике дослідження кінетики LDL (Ghosh Laskar et al., 2017) виявило зниження кліренсу LDL під дією CDCA попри меншу циркулювальну PCSK9. Це різниця між маркером і сумарним результатом. Випробування обетихолевої кислоти також виявляли підвищення LDL. Рецептори, склад частинок і синтез холестерину змінюються разом. ApoB та кількість атерогенних частинок пояснюють, чому клітинна схема не замінює оцінювання ліпопротеїнів та серцево-судинних наслідків.
У моделях FXR/SHP і FGF15/19 змінюють глюконеогенез, PEPCK і G6PC, утворення глікогену та чутливість до інсуліну. Результат залежить від харчового стану, тканини й втручання. Регуляція GSK3 потребує уточнення функціональної модифікації, а не твердження, що будь-яке фосфорилювання «активує глікоген».
Надлишковий діацилгліцерол печінки, DAG, може активувати PKCε і порушувати сигнал від інсулінового рецептора. Зменшення патологічного DAG може послаблювати цей процес. Неправильно називати це «зняттям блоку з PKCε»: саме її активація є частиною запропонованого порушення. Універсального відсотка зниження глюкози стимуляцією FXR тут не встановлено (Ma et al., 2006).
Кетогексокіназа спрямовує фруктозу шляхом, який оминає головний PFK-залежний контроль гліколізу. Це сприяє утворенню тріозних попередників, але субстрати, ATP, транспорт і подальші реакції продовжують обмежувати потік. ChREBP разом із MLX регулює вуглеводчутливі елементи та ліпогенні програми.
Caron et al. (2013) досліджували пригнічення ChREBP FXR у людських гепатоцитах із зміною взаємодій p300/CBP і SMRT. Це не універсальний ланцюг «SHP зв’язує MLX, SIRT1 завжди видаляє один ацетил, ліпогенез зникає». Дані підтримують взаємодію регуляторів, не захист від будь-якої кількості фруктози. Додатковий контекст дає матеріал про фруктозу, кетогексокіназу й ліпогенез.
TGR5 — семитрансмембранний GPCR. У багатьох досліджених клітинах він зв’язується з Gs, стимулює аденілатциклазу та підвищує cAMP, із подальшою участю PKA, Epac та інших ефекторів:
Відповідь залежить від розташування рецептора, G-білків, фосфодіестераз та доступу ліганду. «TGR5 завжди підвищує cAMP в усіх тканинах» — неправильне узагальнення. Війчасті й невійчасті холангіоцити є показовим винятком.
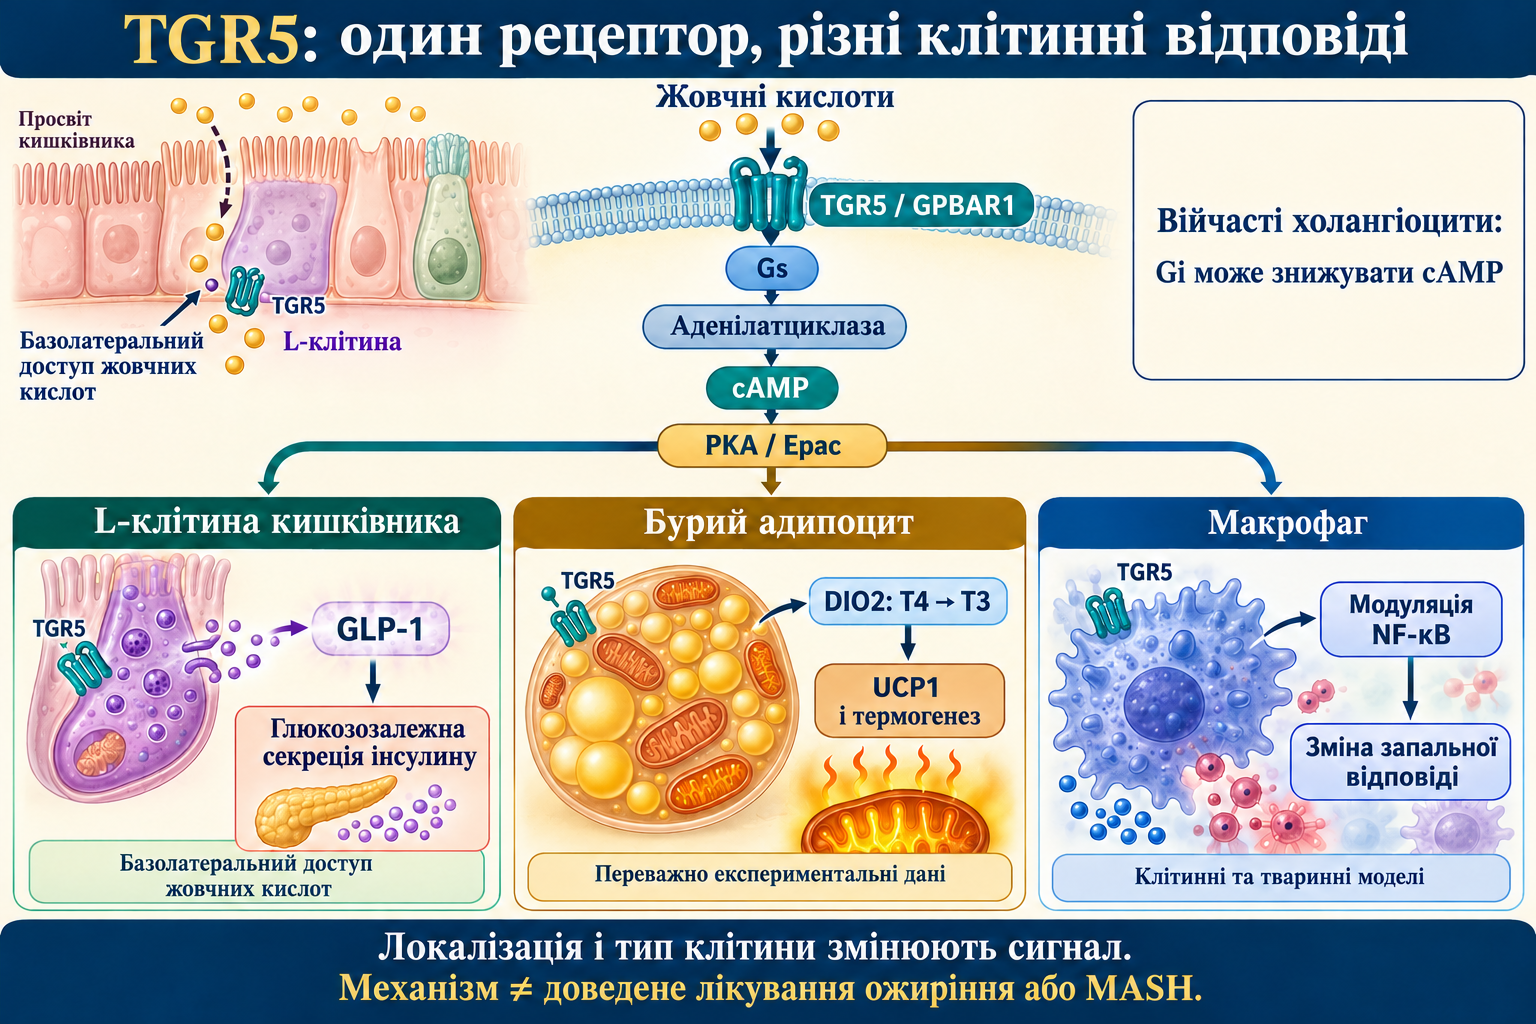
Мишачі та клітинні моделі пов’язують TGR5 із DIO2, дейодиназою типу 2, що перетворює T4 на T3. Локальний T3 діє через тиреоїдні рецептори і підтримує термогенез бурих або бежевих адипоцитів, зокрема UCP1. Цей білок розсіює протонний градієнт внутрішньої мітохондріальної мембрани як тепло, а не безпосередньо синтезує додатковий ATP (Watanabe et al., 2006).
Не можна автоматично приписувати UCP1 звичайному скелетному міоциту. Дані людських м’язових клітин і бурого жиру потребують різних пояснень. Broeders et al. (2015) дослідили 12 здорових жінок протягом двох днів із CDCA та виявили зміни активності бурого жиру й енерговитрат. Це не доводить тривалого схуднення, універсальних 15–20% додаткових витрат або гарантованої відсутності тиреоїдних та інших ризиків при довгому застосуванні.
TGR5 може посилювати GLP-1 через cAMP-залежні механізми й Ca²⁺. Brighton et al. (2015) показали важливість базолатерального доступу кислот у кишкових експериментальних системах. Концентрація в просвіті та експозиція рецептора не взаємозамінні.
GLP-1 підсилює глюкозозалежну секрецію інсуліну й бере участь у насиченні та спорожненні шлунка. PYY може виділятися з тих самих клітин, але це інший пептид, не другий інкретин із тотожною дією. KATP і конкретні Ca²⁺-канали залежать від моделі. Ендогенний GLP-1 швидко руйнується, а лікарські агоністи GLP-1R мають іншу фармакокінетику. Харчове стимулювання TGR5 не рівнозначне доведеній медикаментозній терапії.
TGR5 експресується в моноцитарно-макрофагальних системах. Pols et al. (2011) та інші клітинні й мишачі роботи пов’язали його стимуляцію із cAMP-залежною модуляцією NF-κB. Це не доводить повного усунення запалення у людей або обов’язкового переходу кожного макрофага з «M1» до «M2». Ці категорії спрощують більшу різноманітність станів.
Фосфорилювання одного залишку p65 не завжди блокує вхід до ядра: важливі сайт і комплекс. Клітини Купфера, кишкова імунна система та кров’яні моноцити перебувають у різних середовищах. Менша окрема цитокінова відповідь не замінює наслідків інфекції, фіброзу чи серцево-судинної хвороби.
Alemi et al. (2013) у мишачих моделях пов’язали TGR5 із 5-HT, CGRP та перистальтикою: оральне скорочення й каудальне розслаблення щодо стимулу сприяють просуванню. Це не встановлює дефіцит TGR5 головною причиною будь-якого людського закрепу. Надмірне надходження жовчних кислот у товсту кишку може посилювати секрецію та діарею.
У холангіоцитах CFTR-пов’язаний транспорт хлориду й обмінник AE2 беруть участь у секреції бікарбонату. Лужна апікальна мікрозона та глікокалікс зменшують протонування кислот і проникнення в клітину. Hohenester et al. (2012) підтримують концепцію «бікарбонатної парасольки» клітинними дослідами, не абсолютним захистом від усіх холестазів.
Masyuk et al. (2013) показали, що первинна війка змінює TGR5-сигнал: у війчастих холангіоцитах можливі Gi та зниження cAMP, без війки — Gs та підвищення cAMP. Потрібно називати тип клітини; загальна схема TGR5 → Gs не передбачає однакової відповіді всього жовчного дерева.
Метаболічно асоційована стеатотична хвороба печінки, MASLD, та MASH включають надлишок субстратів, інсулінорезистентність, ушкодження, імунні процеси й фіброгенез. Зміни жовчних кислот можуть бути учасниками та наслідками. Передбачувана нестача C. scindens або низький FXR не діагностують і не пояснюють усі випадки.
Активовані зірчасті клітини утворюють позаклітинний матрикс. Втручання в FXR показують антифібротичні ефекти у моделях, але пряма експресія й дія у людських зірчастих клітинах залежать від контексту. Паракринні ефекти через гепатоцити та імунні клітини не доводять однаково високого FXR у кожному типі клітин.
| Вузол | Підтриманий механізм | Що він не встановлює сам собою |
|---|---|---|
| FXR–SHP і FXR–FGF19 | Зворотний зв’язок синтезу | Повне вимкнення CYP7A1 або безпеку необмеженого підсилення |
| Ліпогенні регулятори | Транскрипційні зміни в моделях | Фіксований відсоток зменшення жиру в людини |
| TGR5–DIO2 | Локальну тиреоїдну та термогенну дію | Тривале схуднення без ризику |
| TGR5–L-клітина | Можливість секреції GLP-1 | Еквівалентність лікам GLP-1R |
| Мікробні BSH/bai | Зміну хімічного складу | Універсальний пробіотик чи діагноз дисбіозу |
| Гістологічна кінцева точка | Зміну біопсії у випробуванні | Доведене зниження смерті та декомпенсації |
Обетихолева кислота, OCA, є 6α-етильним похідним CDCA з вираженою експериментальною активністю FXR. Функціональна потужність не є однією точною Kd чи однаковим «стократним посиленням» у всіх тканинах. Клінічне використання визначають випробування та регуляторний статус.
| Випробування | Дизайн і результат | Основна межа |
|---|---|---|
| FLINT, Neuschwander-Tetri et al., 2015 | 283 рандомізовані; серед оцінених за головною біопсійною точкою NAS поліпшився без погіршення фіброзу у 50/110 проти 23/109 за 72 тижні | Сурогат, не 45% усіх рандомізованих і не доведене зменшення смертності |
| REGENERATE, Younossi et al., 2019 | Основний аналіз 931 учасника F2–F3; поліпшення фіброзу без погіршення NASH: 71/308 з OCA 25 мг проти 37/311 з плацебо за 18 місяців | Іншу головну точку — зникнення NASH без погіршення фіброзу — не досягнуто |
| FLIGHT-FXR, Sanyal et al., 2023 | Фаза 2 tropifexor: зміни ALT і жиру печінки, дозозалежний свербіж | Не встановлено клінічної користі чи універсальної схеми |
NAS підсумовує гістологічні ознаки активності. Набір REGENERATE для безпеки був більшим за головний F2–F3-аналіз; знаменники не можна змішувати. Доза в таблиці описує дослідження, не призначення. Свербіж та підвищення LDL з OCA не дозволяють оцінити весь баланс користі й ризику за однією біопсійною відповіддю.
На перевірку 8 жовтня 2026 року Ocaliva не слід подавати як чинно схвалений у США препарат для PBC: FDA відкликала відповідні дозволи з 24 листопада 2025 року. У ЄС дозвіл відкликано у 2024 році; тимчасове судове призупинення згодом скасовано. Це конкретні юрисдикції, не однаковий світовий статус. OCA також не є універсально схваленою терапією MASH.
Tropifexor і cilofexor — нестероїдні FXR-агоністи, INT-777 та INT-767 — експериментальні сполуки з іншими профілями. Вони не є взаємозамінними готовими ліками з єдиною схемою. Селективність FXR не усуває свербіж автоматично. Людські роботи з MRGPRX4, зокрема Yu et al. (2019), підтримують інший механізм жовчнокислотного відгуку. Мишачі дані TGR5 не доводять прямої його активації кожним FXR-агоністом у людини.
Гугулстерони взаємодіють із кількома рецепторами, не будучи виключно селективними корисними антагоністами FXR (Burris et al., 2005). Szapary et al. (2003) не підтвердили очікуваного зниження LDL у рандомізованому дослідженні екстракту гугулу. Рецепторна гіпотеза не скасовує людських результатів і небажаних реакцій.
Annaba et al. (2010) виявили зменшення ASBT-транспорту під дією EGCG у трансфікованих HEK293 та Caco-2, із залученням мембранних ліпідних рафтів. Це не валідована лікувальна доза зеленого чаю і не доказ лікування MASH. Напій, вільна концентрація, метаболізм та безпека концентрованого екстракту відрізняються від культури клітин.
В’язкі харчові волокна змінюють доступність речовин у просвіті та можуть збільшити жовчні втрати. Ellegård і Andersson (2007) дослідили вівсяні β-глюкани та виведення кислот у дев’яти людей з ілеостомою коротким перехресним дослідом. Модель пояснює механізм, не ефект для кожної людини з цілою кишкою. В’язкість, мікробна переробка та їжа діють разом; не вся клітковина прямо блокує ASBT.
Ковалентні інгібітори BSH Adhikari et al. (2020) — експериментальні хімічні інструменти, не tauro-β-muricholic acid, TβMCA. Остання важлива як кишковий антагоніст FXR у миші. Cyp2c70 створює відмінний мишачий пул із мурихолевими кислотами; його не можна автоматично переносити на людину.
GlyMCA — стійкий до BSH похідний для кишкової селективної модуляції FXR у мишачих метаболічних дослідах (Jiang et al., 2015). Кишкове пригнічення за певних умов відрізняється від печінкової стимуляції. Блокада BSH не завжди «підсилює корисний FXR»: напрям визначає збереження конкретних агоністів і антагоністів.
Інженерне перетворення bai дозволяє досліджувати причинність між ферментом та метаболітом. Воно не підтверджує клінічної безпеки підвищення DCA чи LCA. Концентрація, місце, епітеліальний захист і потенційне ушкодження залишаються важливими. Аналіз мікробіому або пулу кислот не задає універсального персонального протоколу для ожиріння, MASH, закрепу чи дисліпідемії.
Це тематичний науковий матеріал з адресною перевіркою первинних досліджень, структурних записів та актуальних регуляторних документів на 8 жовтня 2026 року. Для частини недоступних повних текстів використані доступні анотації та первинні індексовані записи. Це не систематичний огляд, не GRADE і не зовнішнє рецензування; механістична схема не є клінічно валідованим алгоритмом.
Варто послідовно уточнювати хімічну форму, компартмент, клітину та кінцеву точку. Кон’югація не означає вторинне походження; мікробне перетворення не гарантує користі; EC50 не є Kd; транскрипція не є потоком; біопсійна відповідь не доводить меншої смертності. Ці відмінності поєднують біохімію осі кишківник–печінка з чесним прочитанням людських даних.
Важливі форма та компартмент: міцели підтримують травлення, а надлишкова гідрофобна дія може ушкоджувати клітини.
Ні. Секреція, руйнування та лікарська фармакокінетика різні; клітинний дослід не доводить тотожної користі.
Ні. Мурихолеві кислоти й Cyp2c70 створюють інший пул; напрям FXR залежить від складу.
Ні. Менша PCSK9 не гарантує кращого кліренсу; людські CDCA та OCA потребують окремого оцінювання ліпідів.