Өт қышқылдары, FXR және TGR5: ішек–бауыр осі
Өт қышқылы синтезі мен конъюгациясы, BSH/bai, энтерогепатикалық тасымал, FXR–FGF19 және TGR5. Липид, GLP-1, термогенез, MASH сынағы мен дәлел шегі.
Өт қышқылы синтезі мен конъюгациясы, BSH/bai, энтерогепатикалық тасымал, FXR–FGF19 және TGR5. Липид, GLP-1, термогенез, MASH сынағы мен дәлел шегі.
Өт қышқылдары үш бөлек үдерісті байланыстырады: тағамдық майды қорыту, холестеринді шығару және жасушалық сигнал беру. Ішек қуысында олар аралас мицеллаларға қатысады; жасуша ішінде кейбір түрлері ядролық FXR рецепторын белсендіреді; белгілі жасушалардың бетінде TGR5 арқылы әсер етеді. Әр қызмет үшін химиялық түр, концентрация және орналасу орны бөлек маңызды. Сондықтан «өт көп болса, зат алмасу жақсы» деген тұжырым жеткіліксіз: ішек қуысындағы тапшылық май сіңуін нашарлатса, басқа бөлімдегі гидрофобты қышқылдардың артық әсері мембрананы зақымдауы мүмкін.
Микробтық өзгерістер, мықын ішектегі тасымал және бауырдың кері байланысы өт қышқылдарының қорын өзгертеді, бірақ бір ғана міндетті пайдалы нәтиже туғызбайды. Жасуша тәжірибесінде GLP-1 бөлінуінің артуы немесе липогендік геннің төмендеуі семіздікті не метаболизмдік дисфункциямен байланысты стеатогепатитті, MASH, емдеуді дәлелдемейді.
Адамның негізгі бастапқы өнімдері — хол қышқылы, CA, және хенодезоксихол қышқылы, CDCA. Классикалық жол гепатоциттің эндоплазмалық торындағы CYP7A1, холестерин-7α-гидроксилазадан басталады. Бұл P450 монооксигеназа оттегінің бір атомын субстратқа енгізіп, екіншісін суға айналдырады; тотықсыздандырғыш эквиваленттер NADPH пен P450 редуктазасы арқылы келеді.
HSD3B7 3β-гидроксилді тотықтырып, қос байланысты жылжытады да, 7α-гидрокси-4-холестен-3-он, C4, түзеді. Қандағы C4 белгілі зерттеу және диагностикалық жағдайларда өт қышқылы синтезінің жанама көрсеткіші ретінде қолданылады. Қан алу уақыты, ауру және өлшеу әдісі нәтижеге ықпал етеді; ол бүкіл ағынды тікелей өлшемейді.
CYP8B1 12α-гидроксилді енгізіп, аралық өнімдерді CA жағына бағыттайды. Бұл қадам болмаса, CDCA түзілуі басым болады. AKR1D1 қос байланысты тотықсыздандырып, 5β-конфигурация жасайды; AKR1C4 сияқты ферменттер 3-кетотоптан 3α-гидроксил түзеді. CYP27A1 бүйір тізбекті тотықтырады, кейін пероксисомаларда AMACR, ACOX2, HSD17B4 және SCPx C27 аралықтарын C24 қышқылдарына айналдыруға қатысады. ACOX2 орнына ACOX1 атауын қолдануға болмайды: олардың субстраттық мамандануы бөлек.
Баламалы жол митохондриялық CYP27A1-ден басталып, тордағы CYP7B1 оксистеролдарды 7α-гидроксилдейді. «27-гидроксилаза» тарихи атауы сақталғанымен, жүйелі номенклатура шеткі 26-гидроксилденудің стереохимиясын ескереді. Бұл жол CDCA түзілуімен ерекше байланысты; үлесі жасқа, бауыр күйіне және субстратқа тәуелді. «Дәл 90% және 10%» сияқты тұрақты үлестер барлық адамға сәйкес келмейді.
Иілген 5β-стероидты қаңқаның гидроксилдері бар гидрофильді беті және гидрофобты қарсы беті болады. CA құрамында 3α, 7α, 12α, ал CDCA құрамында 3α және 7α топтары бар. Микробтар 7α-гидроксилді алып тастағанда сәйкесінше DCA және LCA түзіледі. Гидроксил азайғанда гидрофобтық жиі артады, бірақ бағыты да маңызды: UDCA-ның 7β тобы CDCA-дан өзгеше қасиет береді, оттегі саны бірдей болса да.
| Қышқыл | Негізгі гидроксилдер | Шығу тегі мен айырмасы |
|---|---|---|
| CA | 3α, 7α, 12α | Бастапқы; DCA ізашары |
| CDCA | 3α, 7α | Бастапқы; бірнеше сынақта FXR-ды айқын белсендіреді |
| DCA | 3α, 12α | CA-дан түзілетін екінші реттік өнім |
| LCA | 3α | CDCA-дан түзілетін екінші реттік өнім; қауіпсіз әсерді метаболизм мен шығарылу шектейді |
| UDCA | 3α, 7β | Эпимерлену өнімі және өзіндік көрсетілімдері бар дәрі; күшті FXR агонисімен бірдей емес |
Гидрофобтық индекс — белгілі жағдайдағы аналитикалық салыстыру, әмбебап уыттылық шкаласы емес. Heuman (1989) таурин конъюгаттары үшін tauro-CA-ны 0, tauro-LCA-ны 1 деп алған; tauro-UDCA −0,47, tauro-CDCA +0,46 және tauro-DCA +0,59 болды. Бұл мәндерді бос қышқылдарға, кез келген pH-қа немесе рецептор белсенділігіне көшіруге болмайды. Қоспа үшін салмақталған индекс:
мұндағы (x_i) — салыстырмалы жағдайда өлшенген молярлық үлес. Индекс мономер мөлшерін, мицелла құрамын немесе жасушаның нақты экспозициясын алмастырмайды.
Бауырдағы SLC27A5, BACS/FATP5 деп те аталады, қышқылды CoA тиоэфиріне айналдырып белсендіреді. BAAT ацил тобын глицинге немесе тауринге өткізіп, амидтік байланыс жасайды:
— карбонилге жалғанған стероидты қалдық; — глицин үшін , таурин үшін . Жазба байланыстарды көрсетеді; биологиялық pH кезіндегі протондану бөлек қаралады. Мұнда ATP жай ADP емес, AMP-ке дейін ыдырайды. Конъюгация pKa-ны төмендетеді: глицин түрлері үшін шамамен 4, таурин түрлері үшін 1–2, көптеген бос қышқылдар үшін шамамен 5; нақты мән ортаға тәуелді.
Бір протонды қышқылдың бейтарап HA үлесін Гендерсон–Хассельбах қатынасы береді:
pH 7,4 және pKa 5 кезінде шамамен 0,4%, pKa 4 кезінде шамамен 0,04% HA болады. Бұл тепе-теңдік мысалы, мембрана зақымының дәл болжамы емес. Қандағы бос қышқылдар міндетті түрде көбіне зарядсыз болмайды; конъюгаттар да кез келген pH-та «100% иондалған» емес. Қышқыл микрорта глициндік бейтарап түрлерді арттырады, бұл холангиоцит үшін маңызды.
Конъюгаттар липидтерді ерітуге көмектесіп, тасымалдаушы сіңіргенше қуыста сақталады. Аралас мицеллаларға фосфолипид, холестерин, моноглицерид және май қышқылдары да кіреді. Мицелла түзілуінің критикалық концентрациясы құрамға, тұздарға және pH-қа тәуелді. Өт қышқылдары липидтік шекараға қолжетімділікті және қорыту өнімдерінің кетуін жеңілдетеді; ұйқыбез липазасы мен колипаза — бөлек ферменттік жүйе. Мұны бір рецептордың «липазаны қосуы» деп түсіндіру жеткіліксіз.
ABCB11 кодтайтын BSEP өт тұздарын гепатоциттен өтке шығарады. Оның екі трансмембраналық жартысы және екі нуклеотид байланыстыратын домені бар. ATP-ке тәуелді конформациялар субстрат қуысының қолжетімділігін өзгертеді. ATP байланыстыратын екі орын міндетті түрде бірдей екі каталитикалық орталық дегенді білдірмейді; асимметриялы ABC тасымалдаушыларының орындары функционалдық тұрғыдан ерекшеленуі мүмкін.
MDR3/ABCB4 фосфатидилхолинді каналикулярлық мембрананың сыртқы қабатына жеткізеді, одан ол өтке өтеді; бағыт бойынша бұл флоппазалық қызмет. ABCG5/ABCG8 стеролдарды шығаруға қатысады. Фосфолипидтер бос детергент мономерлерінің эпителийге әсерін шектейді. Ағын көлемі мен оның құрамы бір көрсеткіш емес.
ABCB11 және ABCB4 ақаулары тұқым қуалайтын холестазға, соның ішінде PFIC2 және PFIC3-ке байланысты. Кей дәрілердің BSEP-ті тежеуі бауырдың дәрілік зақымына қатысуы мүмкін, бірақ барлық жағдайды түсіндірмейді және үнемі жай бәсекелі тежелу болмайды. Қышқыл жиналуы, бейімделу тасымалы және иммундық үдерістер өзара әсерлеседі.
PDB 3V8D — CYP7A1 мен 7-кетохолестерин кешені, холестериннің Compound I арқылы реакциясын тікелей бейнелеу емес. Гем және тиолаттық лиганд жалпы P450 химиясын түсіндіреді, бірақ басқа лигандпен өлшенген қашықтықты әр каталитикалық күйдің реакциялық аралығы деп айтуға болмайды.
TGR5-тің 7CFM құрылымында синтетикалық P395 бар; Yang et al. (2020) INT-777-ні де зерттеген. Бұл лигандты тану мен G-ақуыз кешенін түсіндіреді, LCA үшін барлық байланыс бірдей дегенді білдірмейді. PDB 5W21 FGF23–FGFR1c–α-Klotho-ға тиесілі, FGF19–FGFR4–β-Klotho емес. α- мен β-Klotho-ны ауыстыру сигнал жүйесін өзгертеді. Ойдан атомдық қашықтық, диссоциация тұрақтысы немесе субъбірлік санын қосудың қажеті жоқ.
Өт тұздарының гидролазалары, BSH, амидтік байланысты үзіп, глицин не таурин мен бос қышқылды шығарады. Олар бастапқы және бұрын өзгерген конъюгаттарға да әсер етуі мүмкін. Белсенділік түрлі бактерияларда кездеседі, фермент пен субстратқа тәуелді. BSH көп болуы автоматты түрде пайдалы микробиота емес.
Деконъюгация ерігіштікті, тасымалды және кейінгі ферменттерге қолжетімділікті өзгертеді. Канондық 7α-дегидроксилдену жолына қажет, бірақ кез келген микробтық өзгерістің міндетті алғашқы қадамы емес. Аш ішекте тым ерте болса, мицелла мен май сіңуін бұзуы мүмкін. Мұның байланысы SIBO, моторика және тыныс сынақтарының шектеулері материалында түсіндіріледі; жалғыз DCA деңгейі бактериялық артық өсуді дәлелдемейді.
Clostridium scindens сияқты маманданған анаэробтар CA-ны DCA-ға, CDCA-ны LCA-ға айналдырады. bai реакциялары белсендіруді, A сақинасын тотықтыруды, сусыздануды және тотықсыздануды қамтиды. C3 гидроксилінің тотығуы мен қанықпаған аралықтар маңызды; BaiE 7α-гидроксил жоғалуымен байланысты сусыздану қадамын катализдейді. «Алдымен 7α-OH 7-кетоға айналып, оның оттегі алынады» деген сипаттама бүкіл жол үшін қате.
Funabashi et al. (2020) алты ферментпен көпсатылы өзгерісті in vitro қалпына келтіріп, қызметті тәжірибелік бактерияға енгізді. Бұл фермент жиынтығының жеткіліктілігін көрсетеді, емдік пробиотикті дәлелдемейді. Бактерия саны, ген экспрессиясы, субстрат және транзит бірге ағынды анықтайды; аз салыстырмалы мөлшер міндетті түрде аз метаболизмдік үлес емес.
7-гидроксил эпимерленуі басқа жолмен, 7-оксо аралығы және 7α/7β-гидроксистероид дегидрогеназалар арқылы жүреді. Ол CDCA-дан UDCA түзуі мүмкін, кейде аралықтар түрлер арасында беріледі. 7-оксо кезеңі дәл осы жерде орынды. Бағыт фермент атауынан ғана емес, субстрат пен редокс жағдайынан туындайды.
Ересек адамның қоры көбіне бірнеше грамм болып, тәулікте қайта айналады. Тиімді қайтарылу бір молекуланы көп рет пайдалануға мүмкіндік береді. «95% қайтады» бір өтуге қатысты; ол цикл санына қарамай тәулігіне қордың дәл 5%-ы жоғалады деген емес.
P — қор массасы, S — жаңа синтез, L — жоғалу; S және L, мысалы, г/тәулікпен беріледі. Бірдей қайталанатын циклдердің қарапайым моделі:
N — тәуліктік айналым саны, r — бір айналымда қайтатын үлес. P = 3 г, N = 4, r = 0,95 болса, шамамен 0,6 г/тәулік шығады. Бұл оқу есебі, әмбебап норма емес. Құрам, тамақ, транзит және сіңу біркелкі емес; диарея не мықын ішекті кесу жоғалу мен кері байланысты өзгертеді.
| Орны | Қатысушылар | Бағыт және энергия |
|---|---|---|
| Бауырдың каналикулярлық мембранасы | BSEP | Гепатоцит → өт; ATP-тәуелді шығару |
| Илеальді энтероциттің апикалдық мембранасы | ASBT/SLC10A2 | Қуыс → жасуша; Na⁺-пен бірге сіңіру |
| Энтероцит іші | FABP6/IBABP | Байланыстыру және ішкі таралу |
| Энтероциттің базолатералдық мембранасы | OSTα/OSTβ | Жасуша → қақпа венасының қаны; жеңілдетілген тасымал |
| Гепатоциттің синусоидтық мембранасы | NTCP және OATP | Қан → бауыр; механизм мен субстрат талғамы өзгеше |
OSTα/β-ны ASBT қасындағы апикалдық жиекке орналастыруға болмайды. NTCP конъюгаттарды Na⁺-тәуелді сіңіру үшін ерекше маңызды, OATP талғамы бір-бірімен қабысады. «Тек конъюгат, тек бос түр» бөлінісі тым қатаң. LCA SULT2A1 қатысуымен сульфаттанады және басқа қорғаныс реакцияларына түседі; қайтарылуы азаяды, бірақ сіңуі мүлде нөл болмайды.
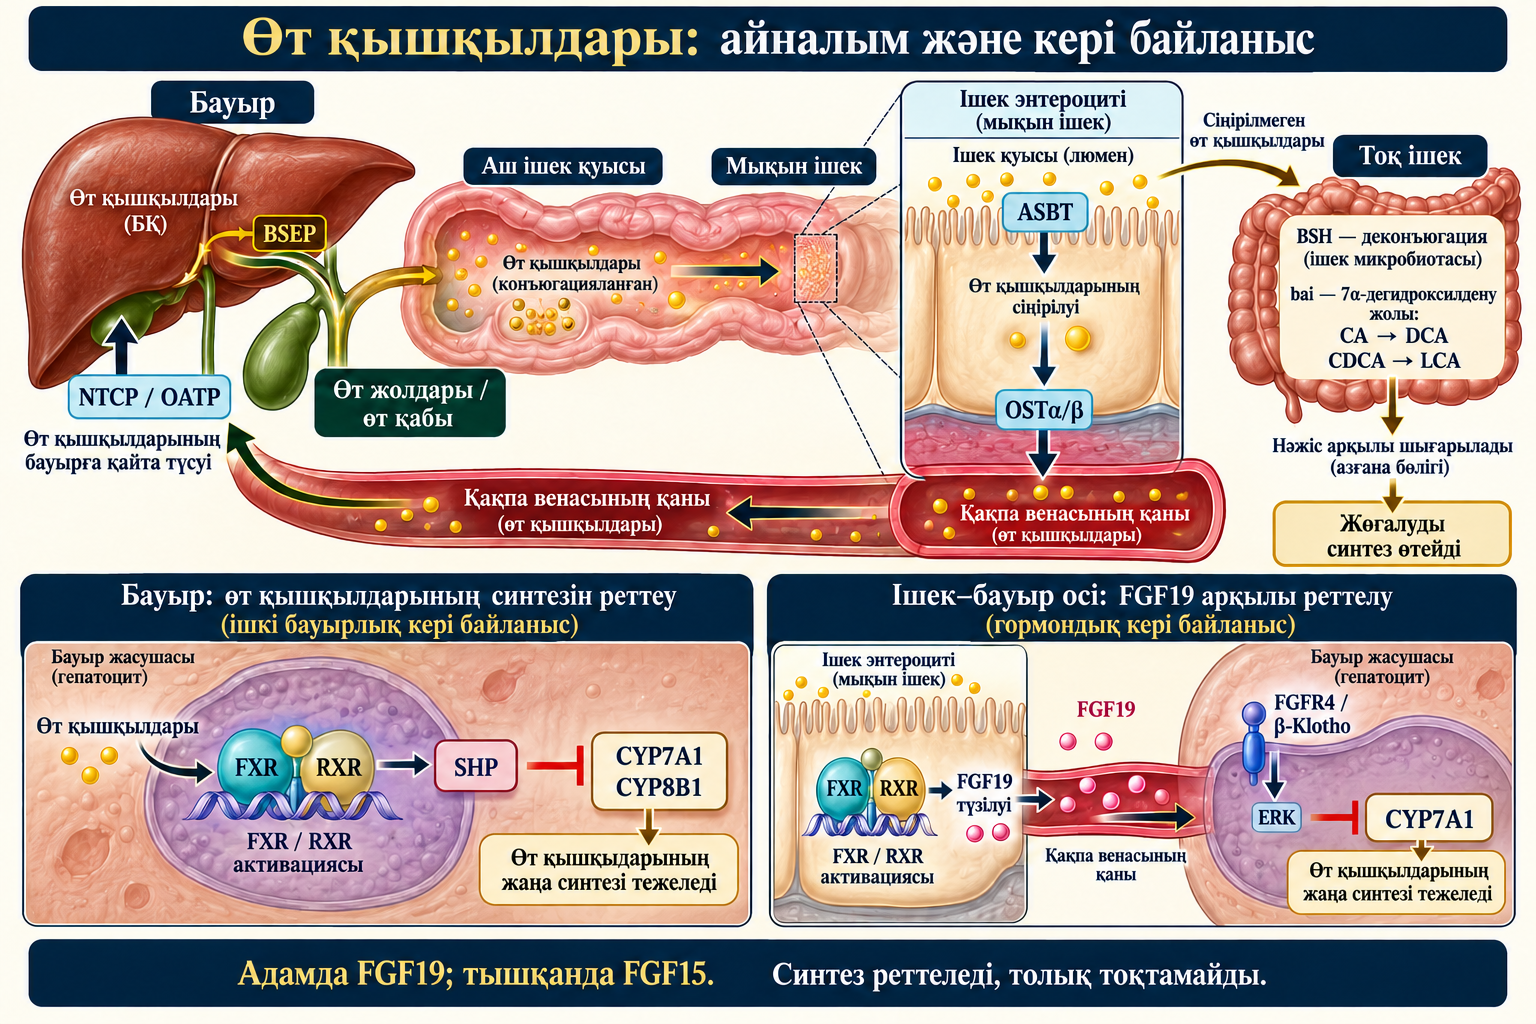
FXR/NR1H4 ядролық рецепторының физиологиялық лигандтарын Makishima және Parks (1999) анықтады. TGR5/GPBAR1 — Maruyama (2002) және Kawamata (2003) зерттеген мембраналық G-ақуызбен байланысқан рецептор. Лиганд қолжетімділігі мен жасушалық салдары ерекшеленеді.
CDCA көптеген сынақта FXR-дың күшті табиғи белсендіргіші. TGR5 үшін LCA, DCA және конъюгаттар жиі белсендірек; tauro-LCA қосылғанда бос түрлермен салыстырылған рет өзгереді. Гидрофобтық барлық рецептор үшін бірдей күш шкаласы емес. LCA метаболизмдік қорғауға байланысты VDR және PXR жүйелеріне де әсер етеді.
EC50 — белгілі сынақтағы максимал функционалдық жауаптың жартысын беретін концентрация, Kd — тепе-теңдіктегі байланысу тұрақтысы. Олар бірдей болуға міндетті емес. Рецептор қоры, тасымал және сигнал күшеюі EC50-ге әсер етеді:
Мұнда E₀ — бастапқы жауап, Emax — одан ең үлкен өсім; EC₅₀ мен C концентрациясының өлшем бірліктері бірдей.
C — қолжетімді лиганд концентрациясы, n — Хилл коэффициенті. Бұл қисық плазмадағы жалпы қышқыл деңгейін барлық рецептор белсенділігіне айналдырмайды. Альбумин, жеке түрлер, қақпалық не шеткері қан және тамақтан кейінгі уақыт маңызды.
FXR құрамында N-ұштық белсендіру бөлігі, мырыш саусақтары бар ДНҚ байланыстыратын домен, икемді бөлік және AF-2 бар лигандтық домен болады. Ол жиі RXR-мен гетеродимер құрып, IR-1 сияқты элементтерде жұмыс істейді. Лиганд SRC, p300, CBP коактиваторлары және корепрессорлармен байланысын өзгертіп, хроматинге ықпал етеді. ДНҚ-мен тікелей байланысу мен жанама басу — бөлек механизмдер.
Бауырда FXR өзінің ДНҚ домені жоқ ерекше ядролық SHP/NR0B2 рецепторын арттырады. LRH-1, HNF4α және кешендер арқылы CYP7A1 мен CYP8B1 азаяды. Бұл кері байланыс, синтездің қайтымсыз толық тоқтауы емес. G9a сияқты хроматин ферменттері кей модельдерде қатысады, бірақ барлық ген мен тінде бірдей деген сөз емес (Goodwin et al., 2000).
Мықын ішек FXR-ы адамда FGF19 түзілуін қолдайды; тышқандағы баламасы — FGF15. Ақуыз қанға өтіп, бауыр FGFR4 пен β-Klotho корецепторына әсер етеді. Ол өт түтігінің қуысымен емес, қақпа қанымен таралады. ERK сияқты киназалық каскадтар CYP7A1 транскрипциясын төмендетеді (Inagaki et al., 2005).
β-Klotho эндокриндік FGF-ті тануға және сәйкес FGFR-мен тіндік талғамға көмектеседі. KL1 және KL2 сыртқы домендері әрекеттесуді ұйымдастырады; FGF19/FGF21 C-ұштары FGF23–α-Klotho жүйесінен өзгеше. Гепарансульфатқа төменірек жақындық қанмен таралуға көмектеседі, бірақ «гепарин домені жойылған» деген қарапайым тұжырым емес. Сәйкес кешенді зерттемей әмбебап Kd немесе міндетті гексамер бекітуге болмайды.
FGF19 көмірсу мен энергия алмасуына да әсер етеді. FGFR4-ті дәрілік күшейту, ұзақ экспозиция және қауіпсіздік — бөлек сұрақтар. Қалыпты кері байланыс шексіз күшейтудің қауіпсіздігін дәлелдемейді.
p300 және NAD⁺-тәуелді SIRT1 деацетилазасы FXR ацетилденуін реттейді. Kemper et al. (2009) негізгі Lys217 және аз үлес қосатын Lys157 орындарын зерттеді. Ацетилдену ақуызды тұрақтандырып, қатарынан RXR байланысы мен транскрипциялық қызметін нашарлатуы мүмкін. Рецептор көп болуы пайдалы белсенділік көп деген емес.
Деацетилдену «ең жоғары белсенділік» күйіне мәңгі ауыстырмайды. Күйлер циклі, коактиватор, тамақ және метаболизмдік орта маңызды. Ресвератролмен жасуша және тышқан тәжірибелері ресвератрол, NMN немесе NR қоспалары әр науқаста FXR-ды клиникалық қалпына келтіреді дегенді дәлелдемейді. NAD⁺ — жүйе бөлігі, барлық стеатозда өлшенген ортақ тапшылық емес.
FXR/SHP тиісті модельдерде SREBP-1c бағдарламасын басып, ACC, FASN және SCD1 экспрессиясын азайта алады. Инсулин, Akt/mTOR және субстраттар липогенезді әрі қарай реттейді. Нақты клиникалық сынақсыз «адамда 60–80% төмендейді» не толық тоқтайды деп айтуға болмайды.
Pineda Torra et al. (2003) адам жасушалары мен промоторларында FXR–PPARα байланысын зерттеді. PPARα тотығу гендерін басқарады. CPT1A ацилкарнитин жасайды, CACT оны ішкі митохондриялық мембранадан өткізеді, CPT2 ацил-CoA-ны қалпына келтіреді. CPT1A — ацилтрансфераза, бүкіл мембрана арнасы емес. Малонил-CoA кірісті тежейді; оны азайту тотығудың барлық шегін жоймайды. Адам PPARα промоторының FXR-ге жауап беретін тізбегі тышқан промоторында сақталмаған: механистік қорытындыда түрді ескеру керек.
CD36 май қышқылын сіңіруді арттырып, бауырға жеткізілуін көбейтуі мүмкін; ол стеатоздан қорғайтын бірмәнді маркер емес. ACOX1 май қышқылының пероксисомалық тотығуына, ACOX2 өт аралықтарына да қатысады. Ген экспрессиясы қосымша дерексіз энергия ағынын өлшемейді (Watanabe et al., 2004).
APOC2 липопротеинлипаза кофакторы, APOC3 триглицеридке бай бөлшектер клиренсін бірнеше жолмен шектейді. Kast (2001) пен Claudel (2003) FXR транскрипциялық реттеуін көрсетті. Бұл триглицерид өзгерісін түсіндіреді, әр өт қышқылын липид төмендететін дәріге айналдырмайды.
FXR адам гепатоцитінде PCSK9-ды азайта алады. Бірақ Ghosh Laskar et al. (2017) шағын LDL кинетика зерттеуінде CDCA кезінде PCSK9 төмендегенімен LDL клиренсі азайды. Бір маркер мен жалпы нәтиже осылай ажырайды. Обетихол қышқылы сынақтарында LDL өсуі де байқалды. Рецептор, бөлшек құрамы және холестерин синтезі бірге өзгереді. ApoB және атерогендік бөлшектер саны жасушалық сызба нақты липопротеин мен жүрек-қантамыр нәтижесін алмастырмайтынын түсіндіреді.
Модельдерде FXR/SHP және FGF15/19 глюконеогенезді, PEPCK пен G6PC, гликоген түзілуін және инсулин сезімталдығын өзгертеді. Нәтиже тамақ күйіне, тінге және араласуға тәуелді. GSK3 реттелуінде функционалдық өзгерісті нақтылау керек; кез келген фосфорлану «гликогенді белсендіреді» емес.
Бауырдағы артық диацилглицерол, DAG, PKCε-ды белсендіріп, инсулин рецепторы сигналын бұзуы мүмкін. Патологиялық DAG азайса, осы механизм әлсіреуі ықтимал. Бұл «PKCε-дан блокты алу» емес: оның белсенуі ұсынылған бұзылыстың бөлігі. FXR күшейгенде глюкоза міндетті түрде белгілі пайызға азаятыны анықталмаған (Ma et al., 2006).
Кетогексокиназа фруктозаны гликолиздің негізгі PFK бақылауын айналып өтетін жолға бағыттайды. Триоза ізашарлары оңай түзіледі, бірақ субстрат, ATP, тасымал мен кейінгі реакциялар ағынды шектейді. ChREBP және MLX көмірсуға жауап беретін элементтер мен липогендік бағдарламаларды реттейді.
Caron et al. (2013) адам гепатоцитінде FXR арқылы ChREBP белсенділігінің басылуын, p300/CBP және SMRT байланыстарының өзгеруін зерттеді. Бұл «SHP MLX-пен байланысады, SIRT1 бір міндетті ацетилді алады, липогенез жоғалады» деген әмбебап тізбек емес. Өзара реттелу дәлелденеді, кез келген фруктозадан қорғану емес. Қосымша түсінік фруктоза, кетогексокиназа және липогенез материалында бар.
TGR5 — жеті трансмембраналық бөлігі бар GPCR. Көп зерттелген жасушада ол Gs-ке байланысып, аденилатциклазаны белсендіреді және cAMP-ті арттырады; кейін PKA, Epac және басқа әсер етушілер қатысады:
Жауап рецептор орнына, G-ақуызға, фосфодиэстеразаға және лиганд қолжетімділігіне тәуелді. «TGR5 барлық тінде cAMP-ті үнемі арттырады» деген қате. Кірпікшелі және кірпікшесіз холангиоциттер айырмасы бұған мысал.
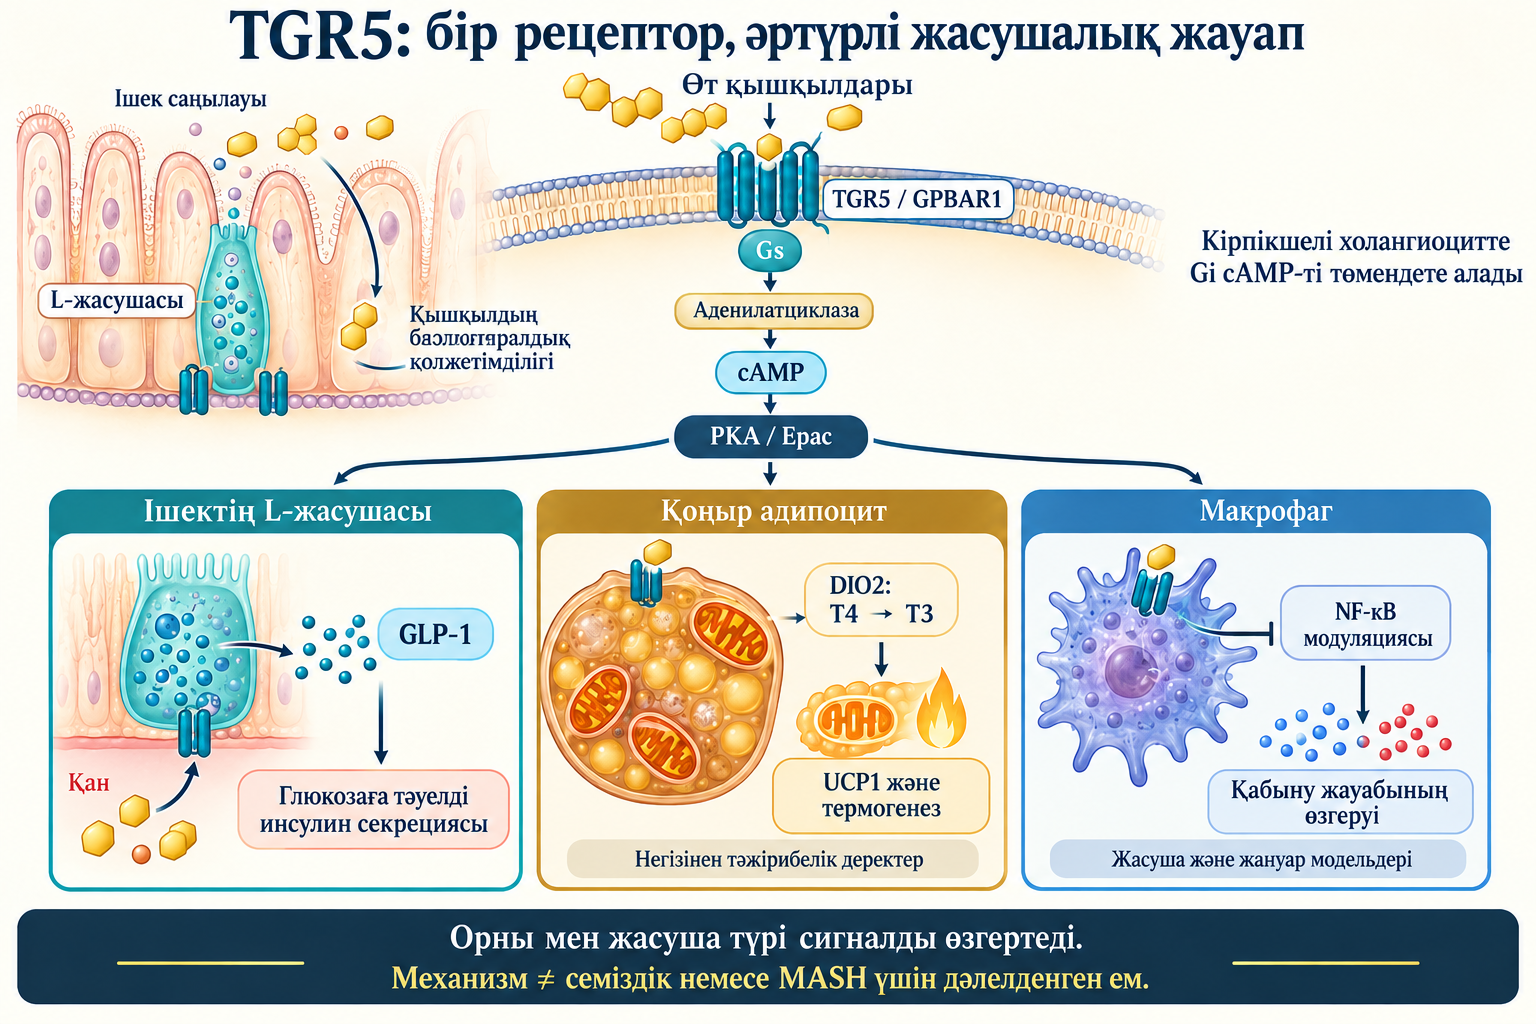
Тышқан және жасуша модельдері TGR5-ті T4-ті T3-ке айналдыратын 2-типті DIO2 дейодиназасымен байланыстырады. Жергілікті T3 тиреоид рецепторлары арқылы қоңыр не беж адипоциттердің термогендік бағдарламасын, соның ішінде UCP1-ді қолдайды. UCP1 ішкі митохондриялық мембрананың протон градиентін жылуға айналдырады, тікелей қосымша ATP өндірмейді (Watanabe et al., 2006).
UCP1-ді кәдімгі қаңқа бұлшықеті жасушасына автоматты телуге болмайды. Адам миоциті мен қоңыр май деректерін бөлек түсіндіру қажет. Broeders et al. (2015) 12 сау әйелді екі күн CDCA әсерінде зерттеп, қоңыр май белсенділігі мен энергия шығынындағы өзгерістерді байқады. Бұл ұзақ арықтауды, әмбебап 15–20% қосымша шығынды немесе ұзақ әсер кезіндегі тиреоидтық және өзге қауіптің болмауын дәлелдемейді.
TGR5 cAMP және Ca²⁺ өзгерістері арқылы GLP-1 бөлінуін күшейтуі мүмкін. Brighton et al. (2015) тәжірибелік ішек жүйелерінде қышқылдың базолатералдық қолжетімділігі маңызды екенін көрсетті. Қуыс концентрациясы рецептор экспозициясымен бірдей емес.
GLP-1 глюкозаға тәуелді инсулин бөлінуін күшейтіп, тойыну мен асқазан босауына қатысады. Сол жасушалар PYY бөле алады, бірақ ол бірдей екінші инкретин емес. KATP және жеке Ca²⁺ арналары модельге тәуелді. Табиғи GLP-1 тез ыдырайды, дәрілік GLP-1R агонистерінің фармакокинетикасы басқа. Тағаммен TGR5 белсендіру дәлелденген дәрілік емге тең емес.
TGR5 моноцит–макрофаг жүйелерінде болады. Pols et al. (2011) және басқа жасушалық/тышқан зерттеулері cAMP-тәуелді NF-κB модуляциясын көрсетті. Бұл адамдағы барлық қабынуды жоюды немесе әр макрофагтың «M1»-ден «M2»-ге міндетті ауысуын дәлелдемейді; екі санат күйлердің толық әртүрлілігін қамтымайды.
p65-тің бір орнын фосфорлау үнемі ядроға өтуді тоқтатпайды: орын мен кешен маңызды. Купфер жасушасы, ішектің иммундық жасушасы және қандағы моноциттің ортасы бөлек. Бір цитокиннің төмендеуі инфекция, фиброз не жүрек-қантамыр нәтижесін алмастырмайды.
Alemi et al. (2013) тышқан модельдерінде TGR5-ті 5-HT, CGRP және перистальтикамен байланыстырды: тітіркендіргіштің ауыз жағында жиырылу, кейінгі жағында босаңсу жылжуды қолдайды. Бұл адамның барлық іш қатуы TGR5 тапшылығынан деген емес. Тоқ ішекке артық қышқыл келуі секреция мен диареяны арттыра алады.
Холангиоцитте CFTR-мен байланысты хлор тасымалы және AE2 алмастырғышы бикарбонат бөлуге қатысады. Сілтілік апикалдық орта мен гликокаликс қышқыл протондануын және жасушаға кіруін азайтады. Hohenester et al. (2012) «бикарбонаттық қолшатырды» жасушада қолдады; ол барлық холестаздан абсолютті қорғаныс емес.
Masyuk et al. (2013) алғашқы кірпікшедегі TGR5 Gi арқылы cAMP-ті төмендете алатынын, кірпікшесіз жасушада Gs оны арттыратынын көрсетті. Жасуша түрін атау керек: жалпы TGR5 → Gs сызбасы бүкіл өт жүйесінің бірдей жауабын болжамайды.
Метаболизмдік дисфункциямен байланысты стеатоздық бауыр ауруы, MASLD, және MASH артық субстратты, инсулинге төзімділікті, зақымды, иммундық үдеріс пен фиброзды қамтиды. Өт қышқылы өзгерісі себепке қатысып та, салдар болып та көрінуі мүмкін. Болжамды C. scindens тапшылығы немесе төмен FXR барлық жағдайды түсіндірмейді және диагноз қоймайды.
Белсенген жұлдызша жасушалар жасушадан тыс матрикс түзеді. FXR араласуы модельдерде фиброзға қарсы әсер көрсетеді, бірақ адам жұлдызша жасушасындағы тікелей экспрессия мен қызмет контекстке тәуелді. Гепатоцит пен иммундық жасуша арқылы паракриндік әсер барлық жасушада жоғары FXR бар екенін дәлелдемейді.
| Түйін | Қолданатын механизм | Жалғыз өзі дәлелдемейтін нәтиже |
|---|---|---|
| FXR–SHP және FXR–FGF19 | Синтездің кері байланысы | CYP7A1 толық тоқтауы немесе шексіз күшейту қауіпсіздігі |
| Липогендік реттегіштер | Модельдегі транскрипциялық өзгеріс | Адам майының тұрақты пайызға азаюы |
| TGR5–DIO2 | Жергілікті тиреоидтық және термогендік байланыс | Қауіпсіз ұзақ арықтау |
| TGR5–L-жасуша | GLP-1 бөліну мүмкіндігі | GLP-1R дәрілеріне теңдік |
| Микробтық BSH/bai | Химиялық құрам өзгерісі | Әмбебап пайдалы пробиотик не дисбиоз диагнозы |
| Гистологиялық соңғы нүкте | Сынақтағы биопсия өзгерісі | Өлім мен декомпенсацияның дәлелденген азаюы |
Обетихол қышқылы, OCA, — тәжірибеде айқын FXR әсері бар CDCA-ның 6α-этил туындысы. Функционалдық күш бір нақты Kd немесе барлық тіндегі «жүз есе» өзгеріс емес. Клиникалық пайдалану сынақ пен реттеуші мәртебеге сүйенеді.
| Сынақ | Дизайн және нәтиже | Негізгі шек |
|---|---|---|
| FLINT, Neuschwander-Tetri et al., 2015 | 283 адам рандомизацияланды; негізгі биопсия нәтижесінде NAS жақсарып, фиброз нашарламағандар 72 аптада 50/110 және 23/109 | Суррогат; барлық рандомизацияланғанның 45%-ы немесе өлім азаюы емес |
| REGENERATE, Younossi et al., 2019 | Негізгі F2–F3 талдауында 931 адам; 18 айда NASH нашарламай фиброз жақсаруы OCA 25 мг-та 71/308, плацебода 37/311 | Екінші негізгі нүкте — фиброз нашарламай NASH жойылуы — орындалмады |
| FLIGHT-FXR, Sanyal et al., 2023 | Tropifexor 2-фаза: ALT, бауыр майы өзгерді; қышыну дозаға тәуелді | Клиникалық пайда не әмбебап ем тәртібі анықталмайды |
NAS гистологиялық белсенділік белгілерін қосады. REGENERATE қауіпсіздік тобы негізгі F2–F3 талдауынан үлкен, бөлімдерді араластыруға болмайды. Кестедегі доза — зерттеу сипаты, ем тағайындау емес. OCA-дағы қышыну мен LDL өсуі бір биопсиялық нәтижемен бүкіл пайда–қауіпті бағалауға жол бермейді.
2026 жылғы 8 қазандағы тексеріс бойынша Ocaliva-ны АҚШ-та PBC үшін әлі мақұлданған дәрі деп көрсетуге болмайды: FDA тиісті рұқсаттарды 2025 жылғы 24 қарашадан қайтарды. ЕО рұқсаты 2024 жылы жойылды; уақытша сот тоқтату шарасы кейін алынды. Бұл нақты юрисдикциялар, бүкіл әлем бірдей деген емес. OCA MASH-қа әмбебап мақұлданған ем де емес.
Tropifexor және cilofexor — стероид емес FXR агонистері; INT-777 және INT-767 — рецепторлық профилі бөлек тәжірибелік заттар. Олар бір ем сызбасы бар өзара ауыстырылатын дайын дәрілер емес. FXR селективтілігі қышынуды міндетті жоймайды. Yu et al. (2019) сияқты адамның MRGPRX4 зерттеуі басқа өт-қышқылдық жолды қолдайды. Тышқандағы TGR5 қышынуы әр FXR агонисі адамда TGR5-ті тікелей белсендіреді деген дәлел емес.
Гуггулстерондар бірнеше рецепторға әсер етеді, тек селективті пайдалы FXR антагонисі емес (Burris et al., 2005). Szapary et al. (2003) рандомизацияланған гуггул экстракты сынағында күтілген LDL төмендеуін растамады. Рецепторлық гипотеза адам нәтижесін және жағымсыз реакцияны жоққа шығармайды.
Annaba et al. (2010) EGCG-дің трансфекцияланған HEK293 және Caco-2 жасушаларында ASBT тасымалын азайтқанын, мембраналық липид рафттарын зерттеді. Бұл жасыл шайдың валидтелген емдік дозасы немесе MASH емі емес. Сусын, бос концентрация, метаболизм және концентрат қауіпсіздігі жасуша ыдысынан өзгеше.
Тұтқыр талшықтар қуыстағы зат қолжетімділігін өзгертіп, өт жоғалуын арттыра алады. Ellegård және Andersson (2007) тоғыз илеостомасы бар адамда сұлы β-глюканы мен қышқыл шығарылуын қысқа айқас сынақпен зерттеді. Модель механизмге пайдалы, тұтас ішегі бар әр адамға әсерді анықтамайды. Тұтқырлық, микробтық өңдеу және тағам бірге жұмыс істейді; кез келген талшық ASBT-ті тікелей тежемейді.
Adhikari et al. (2020) ковалентті BSH тежегіштері — тәжірибелік химиялық құралдар. Олар tauro-β-muricholic acid, TβMCA, емес. Соңғысы тышқанда ішектік FXR антагонисі ретінде маңызды. Cyp2c70 тышқанның мурихол қышқылдары бар ерекше қорын жасайды; оны адамға көшіруге болмайды.
GlyMCA — BSH-қа төзімді туынды, тышқан моделінде ішекке селективті FXR өзгерту үшін пайдаланылды (Jiang et al., 2015). Белгілі жағдайда ішектік тежеу бауырды белсендіруден өзгеше болады. BSH блокадасы «пайдалы FXR-ды үнемі арттырмайды»: сақталған агонист пен антагонист түрі бағытты анықтайды.
bai жолын инженерлік өзгерту фермент пен метаболит арасындағы себептілікті зерттейді. Ол DCA немесе LCA-ны әдейі арттырудың клиникалық қауіпсіздігін растамайды. Концентрация, орын, эпителий қорғанысы және зақым қаупі маңызды болып қалады. Микробиом не өт қорын өлшеу семіздікке, MASH-қа, іш қатуға немесе дислипидемияға әмбебап жеке протокол бермейді.
Бұл — 2026 жылғы 8 қазанда бастапқы зерттеулерді, құрылымдық жазбаларды және қазіргі реттеуші құжаттарды нысаналы тексерген тақырыптық ғылыми талдау. Кей толық мәтін қолжетімсіз болғанда ашық аннотациялар мен бастапқы индекстелген жазбалар пайдаланылды. Жүйелі шолу, GRADE не сыртқы рецензия емес; механизм клиникалық валидтелген алгоритм болмайды.
Химиялық түрді, дене бөлімін, жасушаны және соңғы нүктені ретімен анықтау пайдалы. Конъюгация екінші реттік шығу емес; микробтық өзгеріс пайда кепілі емес; EC50 Kd емес; транскрипция ағын емес; биопсия жауабы өлім азайғанын дәлелдемейді. Осы айырмалар ішек–бауыр биохимиясын адам деректерін адал бағалаумен байланыстырады.
Жоқ. Түрі мен орны маңызды: мицелла қорытуға көмектеседі, артық гидрофобты әсер жасушаны зақымдай алады.
Жоқ. Табиғи бөліну, ыдырау және дәрілік фармакокинетика бөлек; жасуша нәтижесі клиникалық теңдікті дәлелдемейді.
Жоқ. Мурихол қышқылдары мен Cyp2c70 қорды өзгертеді; FXR бағыты құрамға тәуелді.
Жоқ. PCSK9 төмендеуі жақсы клиренске кепіл емес; адам CDCA/OCA нәтижелерінде липидті бөлек бағалау қажет.