Таурин, митохондриальные тРНК и дыхательная цепь: механизм и границы клинических выводов
Синтез и транспорт таурина, модификации U34, MTO1/GTPBP3 и TRMU, кодонное считывание, комплекс I, MELAS и противоречащие данные о старении.
Таурин не входит в последовательность обычных белков, но его фрагмент ковалентно присоединяется к определённым митохондриальным тРНК. Поэтому связь между небольшим свободным метаболитом и дыхательной цепью проходит через качество трансляции: клетке недостаточно иметь мРНК и аминокислоты, если адаптор плохо распознаёт нужный кодон. Эта связь объясняет часть патогенеза MELAS и наследственных дефектов модифицирующих ферментов. Она не означает, что любая усталость, веганский рацион или старение обусловлены недостатком таурина в матриксе.
Ниже прослеживается путь от синтеза и транспорта таурина до модификации U34, сборки комплекса I и результатов у людей. Особое значение имеют различия между нехваткой субстрата, изменённой тРНК и неработающим ферментом: одинаковый внешний симптом не делает эти дефекты взаимозаменяемыми лечебными мишенями.
1. Свободный таурин: химия, синтез и компартменты
1.1. Почему аминокислота не становится остатком белка
Таурин — 2-аминоэтансульфоновая кислота. Вместо карбоксильной группы протеиногенных аминокислот он содержит сульфоновую; при физиологическом pH преобладает цвиттерион:
Для него нет обычной пары «кодон — аминоацил-тРНК», включающей молекулу в полипептид. Свободный таурин участвует в осморегуляции, конъюгации желчных кислот и регуляции клеточного окружения, а в РНК используется иным путём — как химический субстрат посттранскрипционной модификации. Обнаружение такого фрагмента не означает замены аминокислоты в белке или включения таурина в сахарофосфатный остов РНК.
Внутриклеточные пулы в сердце, мышцах, сетчатке и нервной ткани значительно превышают концентрацию в плазме. Однако конкретные значения зависят от вида, ткани, возраста и способа измерения. Высокое содержание в энергоёмком органе само по себе не доказывает, что определённая доля свободного таурина находится в матриксе или что повышение плазменного уровня восстановит этот компартмент.
1.2. Цистеинсульфинатный путь и межвидовые различия
Метионин может снабжать цистеиновый пул через транссульфурацию. Затем железосодержащая цистеиндиоксигеназа CDO окисляет цистеин, а PLP-зависимая цистеинсульфинатдекарбоксилаза CSAD образует гипотаурин. В обобщённой записи:
Последний этап нельзя уверенно приписывать единственной «гипотауриндегидрогеназе». Работа Veeravalli и соавторов 2020 года установила участие FMO1 в кислородировании гипотаурина; существуют также химические пути его окисления. PLP, железо, доступность предшественников и тканевая экспрессия ферментов влияют на поток, но эта схема не задаёт доз витаминов или минералов для усиления синтеза.
Активность пути существенно различается между видами. Обязательная потребность кошек в пищевом таурине и особенности грызунов не дают нормы потребности взрослого человека. У людей пища, эндогенный синтез и почечное сохранение совместно поддерживают пул. В растительных продуктах обычно мало таурина, но из этого не следует неизбежный дефект митохондриальной трансляции у каждого вегана или установленная необходимость профилактического курса всем людям определённого возраста.
1.3. TauT и ионные градиенты
Клеточное накопление поддерживает переносчик TauT, кодируемый SLC6A6. Для него обычно описывают сопряжение одной молекулы таурина с двумя ионами натрия и одним ионом хлора:
Энергия поступает от электрохимических градиентов, поддерживаемых Na⁺/K⁺-АТФазой, а не от прямого расщепления АТФ самим TauT. Перенос положительного заряда делает транспорт электрогенным. Осмотическая регуляция через NFAT5/TonEBP, фосфорилирование и изменение экспрессии могут менять захват, поэтому наличие переносчика не гарантирует одинакового насыщения всех тканей.
Модели Slc6a6-дефицита показывают важность сохранения тканевого таурина: страдают сердце, сетчатка и скелетные мышцы. Это модели тяжёлого нарушения транспорта, а не эквивалент обычного рациона с меньшим количеством морепродуктов. Повышение внеклеточного субстрата также не обязательно компенсирует отсутствующий или резко повреждённый переносчик.
1.4. Плазма, цитозоль и матрикс — разные измерения
Таурин должен быть доступен ферментам матрикса, чтобы стать частью тРНК. Наружная мембрана и избирательно проницаемая внутренняя мембрана создают разные транспортные задачи; плазмалеммальный SLC6A6 нельзя автоматически объявлять установленным переносчиком внутренней митохондриальной мембраны. Идентификация этого пути как конкретного SLC25 или «митохондриальной формы TauT» не подтверждена выбранной литературой и здесь не используется как факт.
Опыты с субклеточными фракциями и нарушением мембранного потенциала требуют учёта чистоты препарата, утечки метаболитов и косвенных эффектов разобщителей. Поэтому точный матриксный пул, его транспортная кинетика и фармакологическое повышение должны измеряться отдельно. Краткий пик в крови не служит показателем доставки в мозг, захвата органеллой или доли модифицированных тРНК.
2. Что именно модифицируется в РНК
2.1. Открытие ковалентного фрагмента
Suzuki и соавторы в 2002 году идентифицировали тауринсодержащие нуклеозиды митохондриальных тРНК с помощью масс-спектрометрии и меченого таурина. Ключевой вывод — свободный метаболит становится частью определённого модифицированного основания. Это гораздо конкретнее утверждения о неспецифическом «питании митохондрий» и не отменяет остальных физиологических функций таурина.
В антикодоне позиции 34–36 взаимодействуют с кодоном антипараллельно: основание 34 распознаёт третье основание кодона. Его называют wobble-позицией. Модификация меняет свойства декодирования этого участка, сохраняя саму идентичность тРНК и присоединённой аминокислоты.
2.2. Пять тРНК, две химические формы
Схема «только Leu и Trp, причём Trp тиолирована» ошибочна. Полный химический анализ человеческих митохондриальных тРНК 2020 года описывает следующую карту:
| Митохондриальная тРНК | Модификация U34 | Пурин-оканчивающиеся кодоны |
|---|---|---|
| Leu(UUR) | τm⁵U | UUA, UUG |
| Trp | τm⁵U | UGA, UGG |
| Lys | τm⁵s²U | AAA, AAG |
| Glu | τm⁵s²U | GAA, GAG |
| Gln | τm⁵s²U | CAA, CAG |
В митохондриальном коде млекопитающих UGA обозначает триптофан, тогда как в стандартном ядерном коде это стоп-кодон. Другой лейциновый адаптор, Leu(CUN), обслуживает отдельное семейство кодонов; его нельзя подменять Leu(UUR). Минимальный набор из 22 митохондриальных тРНК использует несколько стратегий распознавания, и отсутствие модификации U34 в других семействах не всегда патологично.
2.3. C5-заместитель и отдельное 2-тиолирование
В 5-тауринометилуридине к C5 урацила присоединён фрагмент:
Метиленовый мостик связывает основание с азотом таурина. В τm⁵s²U дополнительно кислород при C2 заменён серой. Это самостоятельная химическая операция, а не попадание сульфонатной серы таурина в C2. Различие важно для генетики: нарушение MTO1/GTPBP3 и нарушение TRMU затрагивают разные этапы, хотя оба способны нарушить дыхательную цепь.
3. Ферменты связывают метаболизм с модификацией
3.1. MTO1–GTPBP3: общий путь, но не абсолютная специфичность
MTO1 и GTPBP3 кодируются ядерным геномом, синтезируются вне митохондрий и направляются к аппарату модификации в матриксе. Их бактериальные гомологи MnmG/GidA и MnmE используют родственный механизм модификации U34. MTO1 — флавинсвязанный компонент, взаимодействующий с тРНК; GTPBP3 обеспечивает GTP-зависимую работу системы. Консервативные GTP-связывающие мотивы, участки Switch и координация Mg²⁺ связывают нуклеотидный цикл с изменениями конформации. Это обоснованная функциональная рамка, однако точную последовательность каждого движения человеческого комплекса нельзя считать полностью установленной по аналогии с бактериями.
Реконституция, генетическое выключение компонентов и изотопное прослеживание связывают биогенез τm⁵U с таурином и 5,10-метилентетрагидрофолатом. Схематическая реакция обозначает необходимые входы, а не полный сбалансированный каталитический цикл:
Утверждение о полном исключении глицина неверно: Asano и соавторы обнаружили cmnm⁵U в таурин-дефицитных клетках, где глицин занимает место тауринового фрагмента. Такая метаболическая пластичность не означает полноценного функционального замещения во всех условиях, но опровергает модель абсолютно изолированного каталитического кармана.
3.2. Одноуглеродный обмен: SHMT2 и доступность фолатов
SHMT2 переносит одноуглеродный фрагмент серина на тетрагидрофолат; её коферментом служит PLP. Реакция обратима:
Митохондриальные MTHFD2/MTHFD2L участвуют в превращениях одноуглеродных форм фолата и редокс-обмене. Из принадлежности к общей сети не следует, что MTHFD2L непосредственно «передаёт» мостик в активный центр MTO1. Для модификации важна доступность нужного производного фолата, а не только общий уровень фолиевой кислоты в крови.
Поэтому дефицит таурина, нарушение одноуглеродного потока и дефект тРНК могут сходиться на одном химическом выходе разными путями. Дополнительный метилфолат, B12 или бетаин не гарантирует исправления ни одного из них. Особенно нельзя переносить биохимическую потребность фермента в коферменте на доказанную эффективность нутрицевтического сочетания.
3.3. MTU1/TRMU и независимый источник серы
MTU1, кодируемая TRMU, катализирует 2-тиолирование U34 в тРНК Lys, Glu и Gln. В реакциях этого класса АТФ активирует участок для замещения кислорода серой; цистеин и митохондриальная цистеиндесульфураза NFS1 связаны с предоставлением серы. NFS1 участвует и в биогенезе железосерных кластеров, поэтому нарушения серного метаболизма могут иметь несколько последствий для органеллы.
Общность источников не делает ISCU обязательным прямым промежуточным переносчиком серы к TRMU в доказанной человеческой цепи. Точная последовательность передачи требует отдельного подтверждения. Кроме того, снижение тиолирования не тождественно потере C5-тауринометильного заместителя: их надо различать аналитически, а не объединять под названием «дефицит таурина».
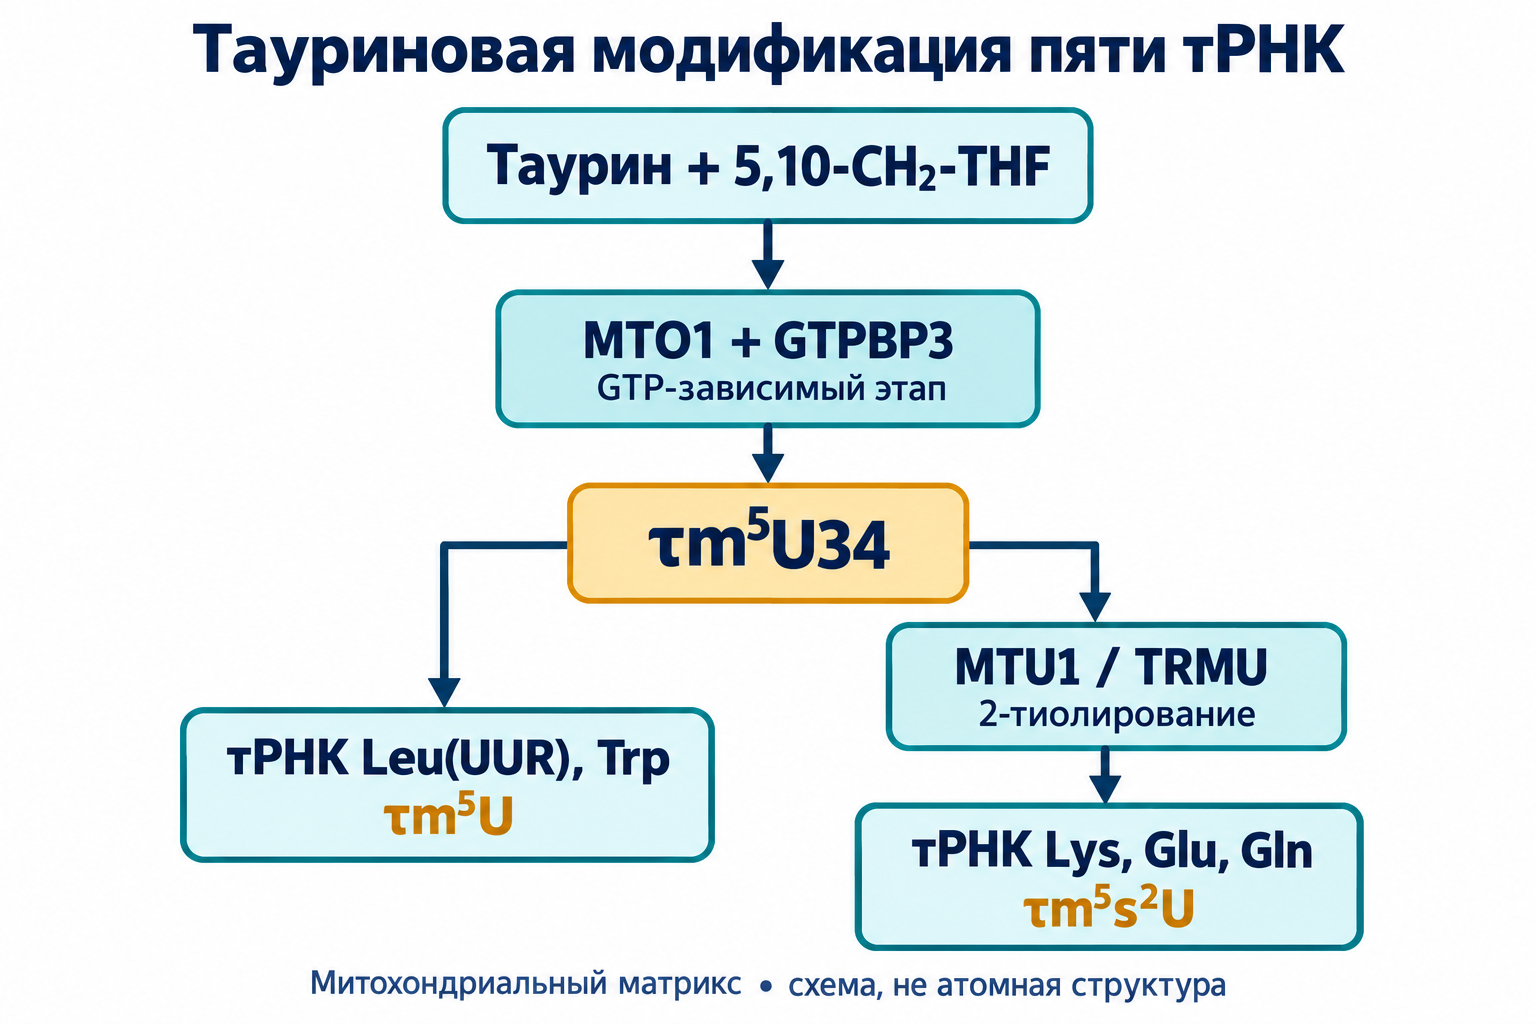
Схема двух этапов U34-модификации. Продукты и состав тРНК указаны для человека; это функциональная схема, а не атомная модель комплекса.
3.4. Наследственные дефекты и вариабельность фенотипа
| Ген | Основной затронутый этап | Описанные клинические проявления | Что нельзя автоматически заключить |
|---|---|---|---|
| MTO1 | C5-модификация U34 | Кардиомиопатия, лактатацидоз, неврологические и мышечные нарушения | Что добавление субстрата восстанавливает повреждённый фермент |
| GTPBP3 | GTP-зависимая модификация | Кардиомиопатия, энцефалопатия, лактатацидоз | Что заболевание совпадает с MELAS по механизму и ответу |
| TRMU | 2-тиолирование | В частности, острая печёночная недостаточность младенцев | Что любой случай обратим или лечится тем же режимом таурина |
Описания Ghezzi, Kopajtich и Zeharia связывают генетические варианты с нарушением митохондриальной трансляции. Выраженность и исход зависят от вариантов, остаточной активности, ткани и возраста. У части пациентов с TRMU-ассоциированной болезнью обсуждается поддержка цистеинового обмена в специализированном лечении, однако это не готовый домашний протокол и не универсальное объяснение наследственной тугоухости.
4. Декодирование: геометрия важнее лозунга «конформационный замок»
4.1. Антипараллельность и две лейциновые семьи
Для Leu(UUR) антикодон записывают 5′-UAA-3′, а распознаваемые кодоны — 5′-UUA-3′ и 5′-UUG-3′. Из-за антипараллельной ориентации U34 взаимодействует с конечным A или G кодона, а не с первым U. Это положение и есть место, где химическая модификация меняет эффективность узнавания.
Распознавание UUA и UUG не одинаково чувствительно к потере τm⁵U. Эксперименты Kirino и соавторов 2004 года с изменённой тРНК демонстрируют выраженный кодон-специфический дефект UUG. Это прямое наблюдение декодирования, более сильное, чем попытка вывести весь фенотип из общего размера или заряда заместителя.
4.2. Рибоза, стекинг и геометрия пары
Рибоза способна переходить между областями конформации C3′-endo и C2′-endo; первая характерна для A-подобной РНК. Химические заместители меняют конформационные предпочтения, гидратацию и стекинг, а 2-тиолирование дополнительно меняет свойства основания. Однако из наличия сульфоната нельзя вывести абсолютный запрет перехода в C2′-endo для любой тРНК.
Структурные данные поддерживают способность τm⁵U34–G3 образовывать геометрию, близкую к Уотсон–Криковской, и благоприятно укладываться рядом с соседними парами. Это точнее простого рисунка «обычная U:G-пара, жёстко запертая таурином». Декодирование зависит от всей антикодоновой петли и окружения; модификации соседних позиций также специфичны для конкретной тРНК. Поэтому нельзя универсально назначать всем таким петлям один и тот же модифицированный A37.
4.3. A-сайт, аминоацил-тРНК и контроль качества
Малая субъединица миторибосомы проверяет кодон-антикодоновое взаимодействие при поступлении аминоацил-тРНК. Митохондриальный EF-Tu и его GTP-цикл участвуют в доставке и отборе адаптора, после чего продуктивное размещение позволяет продолжить синтез полипептида. Модификация может влиять на эффективное узнавание, вероятность отбора и скорость продвижения, но не превращает реакцию в безошибочную.
Если подходящий адаптор используется плохо, возможны задержка элонгации, снижение выхода полноразмерного продукта и запуск контроля качества. Не все задержки заканчиваются коллизией или сдвигом рамки. Здесь не используются неподтверждённые миллисекундные скорости и универсальное падение Kd в 10–15 раз. mtRF1a — прежде всего фактор терминации; приписывать ему обязательный сброс цепи на любом немодифицированном UUG без прямого опыта неверно.
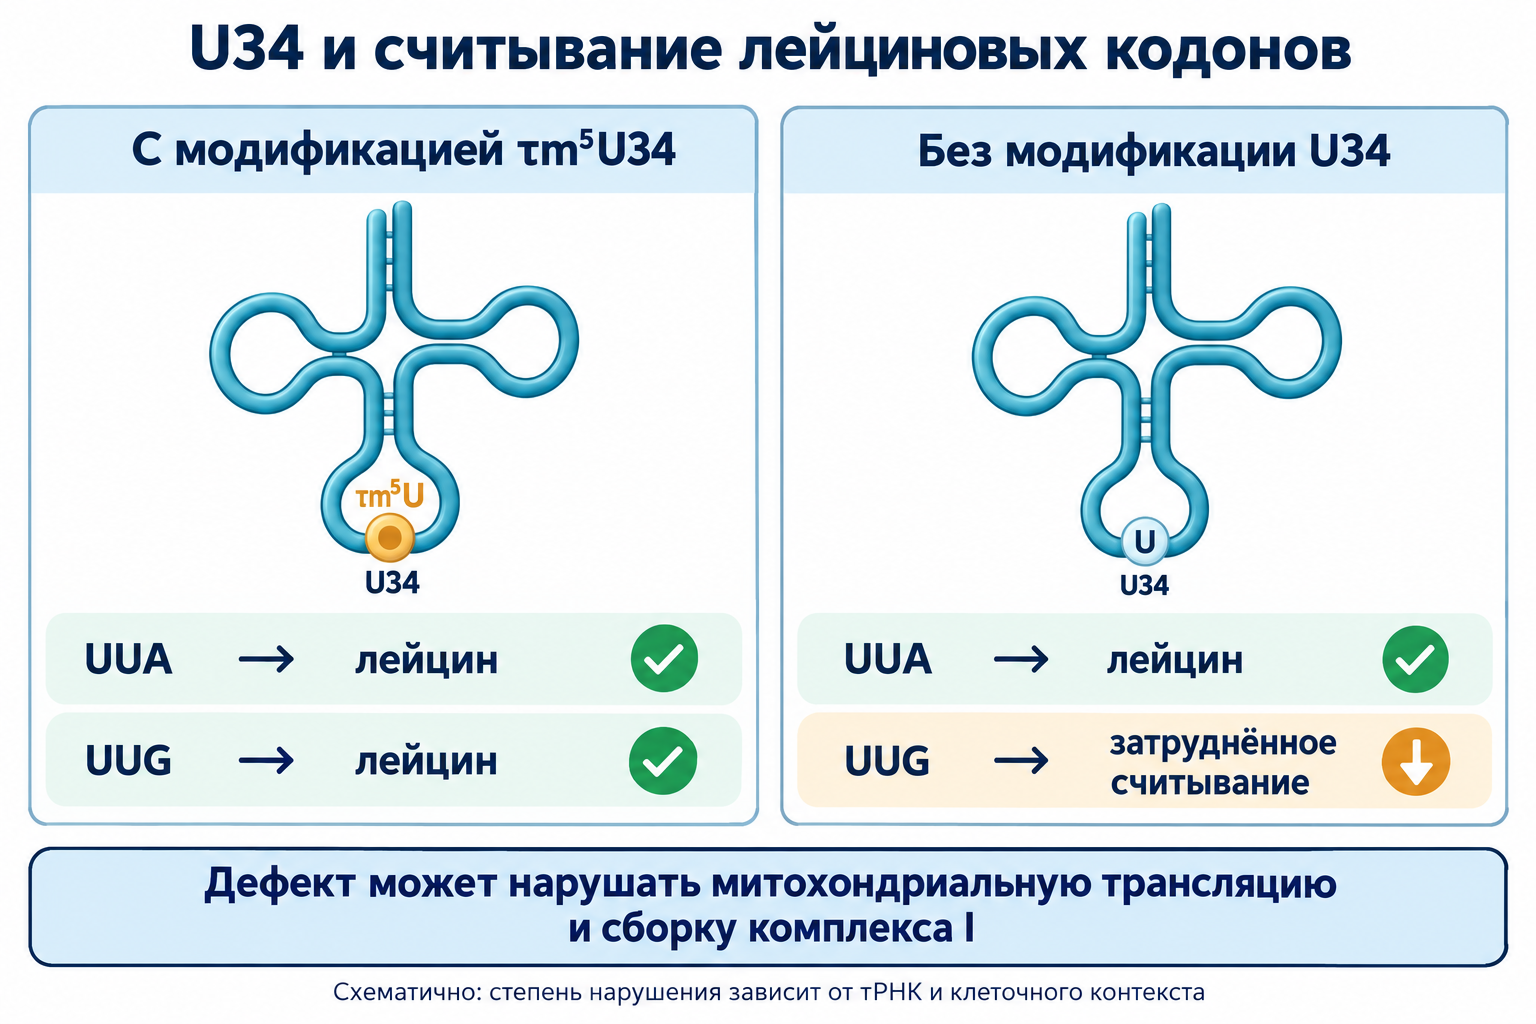
Сравнение относится к кодон-специфическому эффекту модификации Leu(UUR). Значки показывают качественное различие; они не задают скорость трансляции или величину клинического эффекта.
5. От кодонов к дыхательной цепи
5.1. Все 13 белков и различная уязвимость
Митохондриальная ДНК кодирует 13 субъединиц окислительного фосфорилирования; большинство остальных компонентов кодируются в ядре и импортируются. При дефекте модификации могут страдать разные продукты, поскольку MTO1/GTPBP3 обслуживают пять тРНК, а мутация MT-TL1 непосредственно затрагивает один адаптор. Уровень белка зависит также от распада, сборки и стабильности, поэтому иммуноблот не равен прямому измерению скорости трансляции.
| Комплекс | Субъединицы, кодируемые mtDNA | Связь с рассматриваемым дефектом |
|---|---|---|
| I | ND1, ND2, ND3, ND4, ND4L, ND5, ND6 | Нарушение синтеза или сборки может уменьшать количество функционального комплекса |
| III | CYTB | Входит в общую митохондриальную трансляцию; не гарантированно сохранён при всех дефектах |
| IV | COX1, COX2, COX3 | Возможен комбинированный дыхательный дефицит |
| V | ATP6, ATP8 | Синтез зависит от митохондриального аппарата, но профиль нарушения иной |
В работах о дефекте Leu(UUR) особенно обсуждается чувствительность ND6 к UUG-декодированию. ND5 также важна для комплекса I, но нельзя объявлять её одинаково первичной мишенью при любом дефиците таурина. Для сравнения абсолютных количеств UUG и процентов нужен воспроизводимый подсчёт по заданной референсной последовательности; без него точные значения не следует представлять как измеренные данные. Сам вопрос кодонного состава сохранён: число и расположение чувствительных кодонов могут влиять на выход белка, однако этого недостаточно для универсального ранжирования 13 продуктов.
5.2. ND5, ND6 и сборка мембранного плеча
Комплекс I связывает окисление NADH и восстановление убихинона с переносом протонов из матрикса в межмембранное пространство. Его периферическое плечо содержит флавин и железосерные центры; мембранное плечо включает mtDNA-кодируемые субъединицы. В обычной функциональной записи на пару электронов переносятся четыре протона, но общий механизм связывает несколько участков, а не один «насос ND6».
ND5 — дистальная антипортероподобная субъединица с протяжённым латеральным структурным элементом, контактирующим с мембранным плечом. ND6 находится ближе к проксимальному участку и участвует в конформационной организации комплекса. Сам участок восстановления Q образован несколькими субъединицами; нельзя описывать ND6 как единственное место переноса электронов на убихинон. Структурные работы Fiedorczuk, Zhu и Kampjut показывают сложное сопряжение редокс-реакции с протонными путями, а не окончательно доказанную механическую волну одного типа.
Сборка идёт модульно и требует согласования ядерных и митохондриальных продуктов. Выпадение одного ключевого компонента может дестабилизировать другие и привести к разрушению промежуточных сборок. Поэтому функциональный дефект может быть шире того первоначального кодонного сбоя, с которого начался процесс.
5.3. Что даёт модель вероятности и чего она не измеряет
В идеализированном примере независимых уязвимых участков вероятность завершения продукта записывают так:
Если все участки имеют одинаковую вероятность успешного прохождения, получается . Это иллюстрация накопления потерь, а не измеренная кинетика ND5. Реальные рибосомы способны повторно пробовать декодирование; задержка не всегда равна необратимому прекращению. Зависимость от соседних кодонов, количества тРНК и контроля качества также нарушает предположение о независимости. Поэтому произвольные p и N не используются для расчёта «процента обвала» дыхательной цепи пациента.
5.4. Дыхание, редокс-состояние и ROS
Снижение мощности комплекса I может ограничивать окисление NADH, менять отношение NADH/NAD⁺ и адаптацию углеродного обмена. Лактат отражает несколько процессов, включая регенерацию NAD⁺ и тканевую нагрузку; он не является специфическим индикатором U34-модификации. State 3 — экспериментальный режим ADP-стимулированного дыхания изолированных митохондрий, а не постоянное состояние клетки.
При определённых сочетаниях восстановленности центров, мембранного потенциала и субстратов возможна повышенная утечка электронов на кислород. Упрощённые реакции показывают направление химии:
Сама дисмутация не равна повреждению: важны удаление H₂O₂, доступное железо и локализация. Нарушение комплекса I не всегда увеличивает каждый показатель ROS; возможны разные субстратные режимы и компенсации. Таурин не следует представлять универсальным прямым поглотителем супероксида. Более обоснована контекстная связь сохранения трансляции и дыхания с уменьшением источника окислительной нагрузки. Повреждение кардиолипина и mtDNA возможно, но mPTP и проницаемость наружной мембраны при апоптозе — разные явления.
6. MELAS: молекулярная гипотеза и конкретный клинический результат
6.1. Мутация тРНК не исчерпывает весь патогенез
Частая причина MELAS — гетероплазмический вариант m.3243A>G в MT-TL1, кодирующем Leu(UUR). Он расположен вне антикодона, но способен менять структуру и обработку тРНК, её количество и модификацию. Распределение мутантной mtDNA между тканями и остаточная функция объясняют часть вариабельности фенотипа. Поэтому MELAS нельзя свести к единственной потере одного заместителя, а носительство m.3243A>G не тождественно одному клиническому сценарию.
Уменьшение τm⁵U в мутантной тРНК связывает генетический дефект с затруднённым UUG-декодированием. Насколько высокое поступление таурина способно увеличить модификацию, зависит от доступности субстрата и сохранности аппарата. Полная потеря фермента и сниженная модифицируемость тРНК — разные ограничения.
6.2. Инсультоподобный эпизод и сосудистая модель
Очаги при MELAS нередко не соответствуют бассейну крупной артерии. В патогенезе обсуждаются нейрональный энергетический дефицит, судорожная активность, микрососудистые изменения, дисрегуляция NO и отёк. Это не доказанная для каждого эпизода линейная цепь «ROS → спазм → отёк», и термин «инсультоподобный» не позволяет самостоятельно исключить обычный инсульт.
Остро возникшие неврологические симптомы требуют срочной клинической оценки. Данные о профилактике повторных эпизодов не означают, что таурин является средством немедленного купирования приступа, заменяет противосудорожную терапию или другие компоненты специализированной помощи.
6.3. Субстратный ответ: полезная кинетическая рамка
Зависимость скорости от концентрации одного субстрата иногда иллюстрируют насыщением:
Это модель Михаэлиса–Ментен при определённых условиях, а не «термодинамический закон», доказывающий лечебный эффект. Комплекс использует несколько компонентов, а повреждение тРНК может менять её узнавание, не только кажущийся Km для таурина. Увеличение [S] не поднимает скорость выше сохранённого Vmax и не создаёт отсутствующий фермент.
В исследованиях измеряли повышение модификации тРНК в периферических лейкоцитах. Оно поддерживает биологическую правдоподобность вмешательства, однако не равно доказанному восстановлению каждой тРНК в мозге, нормализации всех субъединиц комплекса I или устранению гетероплазмии.
6.4. Что показало исследование Ohsawa
Многоцентровое исследование фазы III включало 10 пациентов с повторными инсультоподобными эпизодами. Они получали 9 или 12 г таурина в сутки в течение 52 недель; дизайн был открытым, с сопоставлением с предшествующим периодом, без рандомизированной параллельной плацебо-группы. Начальные 8 недель не включались в период оценки основного результата.
| Показатель | Наблюдение в исследовании | Граница вывода |
|---|---|---|
| Полное предотвращение эпизодов в период оценки | 60%; 95% ДИ 26,2–87,8% | Это 6 из 10, а не 10 из 10 |
| Уменьшение частоты не менее чем наполовину | 80%; 95% ДИ 44,4–97,5% | Ответ неодинаков у пациентов |
| Средняя годовая частота эпизодов | 2,22 до лечения и 0,72 при лечении | Внутригрупповое сравнение подвержено смещениям |
| Модификация Leu(UUR) в лейкоцитах | Значимое увеличение у пяти пациентов | Периферическая механистическая конечная точка |
| Безопасность | Не отмечено тяжёлых нежелательных явлений, связанных с таурином | Малый размер не исключает редкие и длительные риски |
Это перспективный клинический сигнал для конкретного редкого заболевания; слово «фаза III» не превращает небольшой открытый опыт в крупное рандомизированное испытание. Ранее описанные два пациента с длительным наблюдением тоже не дают всеобщей гарантии. В Японии в 2019 году было одобрено расширение показания для лекарственного порошка таурина 98% к подавлению инсультоподобных эпизодов при MELAS. Это конкретное регуляторное решение, не всемирное одобрение любого БАДа для митохондриальной дисфункции, мутаций MTO1/GTPBP3 или профилактики старения.
7. Старение: результат у животных и спор о маркере
7.1. Что установили Singh и соавторы
Работа Science 2023 года сообщила о снижении циркулирующего таурина с возрастом в изученных популяциях и улучшении ряда возрастных показателей после добавления таурина животным. Мыши получали 1000 мг/кг массы в сутки начиная с 14 месяцев; медианная продолжительность жизни увеличилась примерно на 10–12%. В отдельных опытах оценивали кость, мышечную функцию, обмен глюкозы, поведение и иммунные показатели. У приматов изучали показатели здоровья, а не продление жизни до естественной смерти.
Межвидовое сопоставление возраста мыши с конкретным возрастом человека условно. Дозу в мг/кг нельзя непосредственно перенести на взрослого пациента, а изменение маркеров у макак не заменяет испытание клинических исходов у людей. Ассоциации с заболеваниями и рост таурина после нагрузки в человеческой части работы не доказывают, что добавка продлевает человеческую жизнь.
7.2. Данные 2025 года меняют интерпретацию
Fernandez и соавторы в Science 2025 года изучили продольные и поперечные данные людей из трёх географически разных когорт, а также приматов и мышей. Циркулирующий таурин оставался стабильным или увеличивался с возрастом; связи с двигательными и энергетическими показателями были вариабельны. Эти результаты не воспроизводят универсального возрастного истощения крови и противоречат использованию одного сывороточного значения как «тауриновых биологических часов».
Разногласие не отменяет химического участия таурина в тРНК или результата конкретного опыта с добавкой мышам. Оно разделяет две гипотезы: возможный эффект вмешательства и пригодность исходной концентрации как универсального маркера. Диета, почечный обмен, физическая активность, пол, тканевой захват и метод отбора образцов могут менять концентрацию. Ни возрастное падение CDO/CSAD у всех людей, ни необходимость курса после 45 лет из этих данных не следуют.
7.3. Сенесценция, SASP и митохондрии
В экспериментах обсуждались изменения маркеров сенесценции, воспаления, повреждения ДНК, протеостаза, аутофагии и митохондриальной функции. Эти системы взаимодействуют: меньшее повреждение не обязательно означает прямое удаление стареющих клеток, а изменение LC3 не само по себе доказывает усиленный завершённый поток митофагии. Конкретную цепь TFEB → PINK1/Parkin и полный перечень подавленных цитокинов нельзя объявлять универсальным механизмом для всех тканей.
Тауриновая модификация тРНК — один из правдоподобных связующих механизмов, однако единственная причина изменения продолжительности жизни не установлена. Полезно сопоставить это с сенесценцией и исследованием фисетина: уменьшение маркеров старения, изменение SASP и доказанное селективное уничтожение сенесцентных клеток требуют разных экспериментов. Таурин не становится клинически доказанным сенолитиком из-за снижения p16 или воспалительного показателя у животного.
8. Экспозиция, комбинации и безопасность
8.1. Фармакокинетика без подмены тканевого эффекта
В небольшом исследовании Ghandforoush-Sattari и соавторов восемь здоровых мужчин однократно получили 4 г таурина. Плазменный пик наблюдали примерно через 1,5 часа, а кажущийся плазменный период полувыведения составлял около часа. Это конкретное исследование разовой дозы, не доказательство универсальной абсолютной биодоступности 70–90%, тканевого периода полувыведения 7–14 суток или одинаковой кинетики у детей и пациентов с почечной недостаточностью.
Абсорбция и распределение включают насыщаемые транспортные процессы; в кишечнике обсуждаются TauT и протон-сопряжённый PAT1. Почки фильтруют таурин и адаптируют его реабсорбцию, поэтому экскреция меняется с поступлением и состоянием организма. Сохранение вещества почкой не даёт гарантии от накопления при любой дозе и нарушенной функции органа. Установленного единого плазменного «порога токсичности» из приведённых исследований нет.
Для исследования эффекта важны форма препарата, фактическая доза, время отбора крови и измеряемый компартмент. Плазма, тканевой свободный таурин и доля τm⁵U в РНК — разные конечные точки. Повторный приём может изменять экспозицию, однако её устойчивость и функциональный ответ надо измерять, а не выводить из краткого плазменного пика.
8.2. Три клинических вопроса вместо универсальной лестницы доз
| Контекст | Что можно обоснованно обсуждать | Что не установлено |
|---|---|---|
| Здоровый взрослый, питание, спорт, возраст | Рацион, конкретную цель, имеющиеся исследования и переносимость | Обязательный геропротективный режим по возрасту или типу диеты |
| Кардиометаболическое заболевание | Дополнительное вмешательство только в контексте диагноза и стандартного лечения | Единый лечебный протокол для сердечной недостаточности, диабета и стеатогепатита |
| MELAS | Специализированное использование лекарственного таурина в изученном/одобренном контексте | Перенос 9–12 г/сут на всякую усталость, лактатацидоз или любой генетический дефект |
Для сердечно-сосудистых и метаболических целей описаны исследования, но механистическая статья не заменяет раздельную оценку клинических исходов для каждого показания. Приведённая доза MELAS служит описанием исследования, а не самостоятельной рекомендацией. При дефекте фермента увеличение субстрата может иметь иной эффект, чем при остаточно модифицируемой мутантной тРНК; особенно недопустимо переносить взрослые дозы на детей без врачебного назначения.
8.3. Магний, Q10, карнитин и одноуглеродные доноры
Mg²⁺ необходим многим нуклеотид-зависимым реакциям, но биохимическая совместимость не доказывает преимущества таурата магния или восстановления кальциевого гомеостаза такой солью. Нужно различать количество элементного магния и тауринового компонента. Коррекция установленного дефицита и назначение комбинации человеку без дефицита — разные вопросы.
Убихинон принимает электроны в дыхательной цепи, в том числе от комплекса II. Однако добавленный убихинол не гарантирует обход любого дефекта комплекса I или достаточный синтез АТФ: доставка, окислительно-восстановительное состояние Q-пула и сохранность последующих комплексов ограничивают результат. Разбор убихинола и убихинона помогает отделить роль переносчика электронов от клинического эффекта формы добавки.
Карнитиновый путь включает CPT1, карнитин-ацилкарнитиновый переносчик и CPT2, обеспечивая перенос ацильных групп для окисления жирных кислот. Он не восстанавливает U34-модификацию автоматически. Метилфолат, B12, бетаин и цистеиновые предшественники относятся к разным метаболическим ветвям; наличие потенциального биохимического пересечения с таурином не доказывает синергии многокомпонентного продукта. Формулы «митохондриального коктейля» требуют собственных сравнительных данных.
8.4. Переносимость и границы наблюдения
Таурин во многих исследованиях переносился удовлетворительно, но «абсолютно безопасен пожизненно» — недопустимый вывод. Оценка EFSA 2009 года касалась экспозиции компонентов энергетических напитков и экспериментальных токсикологических данных, а не всеобщего клинического разрешения 3 г в сутки на всю жизнь. NOAEL для конкретного опыта нельзя превращать в универсальную человеческую дозу; документ о health claims также не является таким разрешением FDA.
Небольшое исследование MELAS не обнаружило тяжёлых связанных нежелательных явлений, однако его размер и длительность не исключают редкие риски. Желудочно-кишечные жалобы возможны; еда может менять переносимость, но не гарантирует исчезновения всех симптомов. При болезни почек, беременности, детском возрасте и сочетании с лекарствами применимость данных оценивают отдельно. Энергетический напиток с кофеином и другими компонентами не эквивалентен лекарственному таурину.
При специализированном лечении наблюдают клинические эпизоды, судорожный контроль и переносимость; по показаниям — функцию почек, печёночные показатели, электролиты и метаболические маркеры. Лактат, пируват и плазменный таурин интерпретируются с учётом отбора и заболевания. Нет универсального лабораторного набора, который подтверждает восстановление митохондриальных тРНК или делает любую высокую дозу безопасной.
9. Какие вопросы остаются открытыми
Связь «метаболит → модифицированное основание → декодирование → дыхательная цепь» установлена на нескольких независимых уровнях. Наиболее сильная клиническая история касается конкретного механизма MELAS и конкретного японского лекарственного показания. Доказательства человеческого продления жизни, всеобщей коррекции комплекса I добавкой или гарантированной синергии нескольких нутриентов значительно слабее этой молекулярной базы.
Исследовательские направления включают идентификацию и управление доставкой таурина в матрикс, измерение модификации в доступных и поражённых тканях, определение остаточной активности ферментов и различий между генотипами. Изменение MTO1/GTPBP3 или транспорта — экспериментальная мишень, а не готовое лечение. Для новых вмешательств нужны клинические исходы, контрольная группа и оценка безопасности; одного увеличения концентрации или красивой структурной модели недостаточно.
Методическая заметка
Это нарративный обзор литературной базы предоставленной статьи с адресной сверкой важных конфликтов 8 октября 2026 года. Проверены распределение модификаций между тРНК, источник C5-фрагмента и альтернативное использование глицина, FMO1, результаты и дизайн исследования MELAS, японское показание, фармакокинетические ограничения и противоречащие данные о возрастной динамике 2025 года. Полного систематического поиска, метаанализа, формальной GRADE-оценки или внешнего рецензирования не проводилось. Необоснованные точные транспортные, структурные и кодонные числа не представлены как установленные; оставшиеся механистические неопределённости обозначены в соответствующих разделах. Материал объясняет биологию и качество доказательств, но не создаёт персональный лечебный протокол.
Частые вопросы
Таурин входит в белки дыхательной цепи?
Он не является обычным остатком полипептида. Его фрагмент модифицирует основания некоторых тРНК, влияя на синтез митохондриальных белков.
Trp-тРНК содержит τm⁵s²U?
В человеческих митохондриях Trp содержит τm⁵U. 2-тиолированная форма τm⁵s²U характерна для Lys, Glu и Gln.
9–12 г в сутки подходят при любой митохондриальной проблеме?
Нет. Это дозы определённого исследования MELAS; они не являются универсальным режимом для усталости, старения или дефектов модифицирующих ферментов.
Таурин доказанно продлевает жизнь людей?
Нет. Результаты у мышей и показатели здоровья у приматов не заменяют испытание человеческих исходов; универсальная возрастная динамика крови также оспаривается.
Высокий таурин в плазме доказывает восстановление тРНК?
Нет. Нужно различать плазму, тканевой и матриксный пулы и долю модифицированных нуклеозидов; это разные измерения.
Источники
- Suzuki T, Suzuki T, Wada T, Saigo K, Watanabe K. Taurine as a constituent of mitochondrial tRNAs: new insights into the functions of taurine and human mitochondrial diseases. EMBO J. 2002;21(23):6581-6589.
- Singh P, Gollapalli K, Mangiola S, et al. Taurine deficiency as a driver of aging. Science. 2023;380(6649):eabn9257.
- Ohsawa Y, Hagiwara H, Nishimatsu SI, et al. Taurine supplementation for prevention of stroke-like episodes in MELAS: a multicentre, open-label, 52-week phase III trial. J Neurol Neurosurg Psychiatry. 2019;90(5):529-536.
- Rikimaru J, Ohsawa Y, Wolf AM, et al. Taurine ameliorates impaired mitochondrial function and prevents stroke-like episodes in patients with MELAS. Intern Med. 2012;51(24):3351-3357.
- Kirino Y, Yasukawa T, Ohta S, et al. Codon-specific translational defect caused by a wobble modification deficiency in mutant tRNA from a human mitochondrial disease. Proc Natl Acad Sci USA. 2004;101(42):15070-15075.
- Ghezzi D, Baruffini E, Haack TB, et al. Mutations of the mitochondrial-tRNA modifier MTO1 cause hypertrophic cardiomyopathy and lactic acidosis. Am J Hum Genet. 2012;90(6):1079-1087.
- Kopajtich R, Nicholls TJ, Rorbach J, et al. Mutations in GTPBP3 cause a mitochondrial translation defect associated with hypertrophic cardiomyopathy, lactic acidosis, and encephalopathy. Am J Hum Genet. 2014;95(6):708-720.
- Jong CJ, Azuma J, Schaffer SW. Mechanism underlying the antioxidant activity of taurine: prevention of mitochondrial oxidant production. Amino Acids. 2012;42(6):2223-2232.
- Schaffer SW, Jong CJ, Ramila KC, Azuma J. Physiological roles of taurine in heart and muscle. J Biomed Sci. 2010;17(Suppl 1):S2.
- Yasukawa T, Suzuki T, Ishii N, Ohta S, Watanabe K. Wobble modification defect in tRNA disturbs codon-anticodon interaction in a mitochondrial disease. EMBO J. 2001;20(17):4794-4802.
- Yasukawa T, Suzuki T, Ueda T, Ohta S, Watanabe K. Modification defect at anticodon wobble position of mitochondrial tRNAs((Leu)(UUR)) with pathological mutations of mitochondrial myopathy, encephalopathy, lactic acidosis, and stroke-like episodes (MELAS). J Biol Chem. 2000;275(6):4251-4257.
- Suzuki T, Yashiro Y, Kikuchi I, et al. Complete chemical structures of human mitochondrial tRNAs. Nat Commun. 2020;11(1):4269.
- Zeharia A, Shaag A, Pappo O, et al. Acute infantile liver failure due to mutations in the TRMU gene. Am J Hum Genet. 2009;85(3):401-407.
- Ito T, Yoshikawa N, Inui T, et al. Tissue depletion of taurine accelerates skeletal muscle senescence and leads to early death in mice. PLoS One. 2014;9(9):e107409.
- Han X, Chesney RW. Knockout mice reveal the physiological importance of taurine transporter (TauT). Adv Exp Med Biol. 2013;776:1-12.
- Chesney RW, Han X, Patters AB. Taurine and the renal system. J Biomed Sci. 2010;17(Suppl 1):S4.
- Stipanuk MH, Ueki I. Dealing with methionine/homocysteine sulfur: cysteine metabolism to taurine and inorganic sulfur. J Inherit Metab Dis. 2011;34(1):17-32.
- Suzuki T, Nagao A, Suzuki T. Human mitochondrial tRNAs: biogenesis, function, and disease. Annu Rev Genet. 2011;45:299-329.
- Goto Y, Nonaka I, Horai S. A mutation in the tRNA(Leu)(UUR) gene associated with the MELAS subgroup of mitochondrial encephalomyopathies. Nature. 1990;348(6302):651-653.
- Fiedorczuk K, Letts JA, Degliesposti G, Kaszuba K, Skehel M, Sazanov LA. Atomic structure of the entire mammalian mitochondrial complex I. Nature. 2016;538(7625):406-410.
- Zhu J, Vinothkumar KR, Hirst J. Structure of mammalian respiratory complex I. Nature. 2016;536(7616):354-358.
- Kampjut D, Sazanov LA. The coupling mechanism of mammalian respiratory complex I. Science. 2020;370(6516):eabc2983.
- Asano K et al. Metabolic and chemical regulation of tRNA modification associated with taurine deficiency and human disease. Nucleic Acids Res. 2018;46(4):1565-1583.
- Veeravalli S et al. Flavin-Containing Monooxygenase 1 Catalyzes the Production of Taurine from Hypotaurine. Drug Metab Dispos. 2020;48(5):378-385.
- Fernandez ME et al. Is taurine an aging biomarker? Science. 2025;388(6751):eadl2116.
- Ghandforoush-Sattari M et al. Pharmacokinetics of oral taurine in healthy volunteers. J Amino Acids. 2010:346237.
- EFSA. The use of taurine and D-glucurono-gamma-lactone as constituents of the so-called energy drinks. EFSA Journal. 2009;935:1-31.
- Japan clinical research registry jRCTs061180015. High-dose taurine in MELAS; record of the February 21, 2019 indication approval.