Taurina, ARNt mitocondriales y cadena respiratoria: mecanismos y límites clínicos
Síntesis y transporte de taurina, modificaciones U34, MTO1/GTPBP3 y TRMU, lectura de codones, complejo I, MELAS y datos contradictorios de envejecimiento.
La taurina no se incorpora a las secuencias de las proteínas habituales, pero un fragmento suyo se une covalentemente a determinados ARNt mitocondriales. Así, la conexión entre un pequeño metabolito libre y la cadena respiratoria pasa por la calidad de la traducción: disponer de ARNm y aminoácidos no basta si el adaptador reconoce mal el codón necesario. Esta relación explica parte de la patogenia de MELAS y de los defectos hereditarios de las enzimas modificadoras. No significa que cualquier fatiga, dieta vegana o envejecimiento se deba a una carencia de taurina en la matriz.
El texto sigue el recorrido desde la síntesis y el transporte hasta la modificación de U34, el ensamblaje del complejo I y los resultados en humanos. La escasez de sustrato, un ARNt alterado y una enzima defectuosa son problemas distintos: síntomas parecidos no los convierten en dianas terapéuticas intercambiables.
1. Taurina libre: química, síntesis y compartimentos
1.1. Por qué no se convierte en un residuo proteico
La taurina es ácido 2-aminoetanosulfónico. Presenta un grupo sulfónico en lugar del carboxilo de los aminoácidos proteinogénicos; a pH fisiológico predomina su forma zwitteriónica:
No existe el par habitual codón–aminoacil-ARNt que la inserte en un polipéptido. La taurina libre participa en la osmorregulación, la conjugación de ácidos biliares y la regulación del entorno celular. El ARN la utiliza por otra vía: como sustrato químico de una modificación postranscripcional. Detectar ese fragmento no implica sustituir un aminoácido proteico ni incorporar taurina al esqueleto de azúcar y fosfato del ARN.
Los depósitos intracelulares del corazón, músculo, retina y tejido nervioso superan considerablemente las concentraciones plasmáticas. Sin embargo, los valores dependen de especie, tejido, edad y método. Una abundancia elevada en un órgano de gran demanda energética no establece la fracción localizada en la matriz ni demuestra que elevar la taurina plasmática restaure ese compartimento.
1.2. Vía del sulfinato de cisteína y diferencias entre especies
La metionina puede abastecer el depósito de cisteína mediante transulfuración. La cisteína dioxigenasa CDO, que contiene hierro, oxida la cisteína; la descarboxilasa CSAD, dependiente de PLP, produce hipotaurina. De forma abreviada:
La última etapa no puede atribuirse con seguridad a una única «hipotaurina deshidrogenasa». Veeravalli y colaboradores establecieron en 2020 la participación de FMO1 en la oxigenación de la hipotaurina; también existen vías de oxidación química. PLP, hierro, precursores y expresión enzimática tisular influyen en el flujo, pero este esquema no prescribe dosis vitamínicas o minerales para aumentarlo.
La actividad varía mucho entre especies. La necesidad alimentaria obligatoria de los gatos y las particularidades de los roedores no establecen la necesidad de un adulto humano. En personas, alimentación, síntesis endógena y conservación renal mantienen conjuntamente el depósito. Los vegetales suelen aportar poca taurina, pero eso no demuestra un fallo inevitable de traducción mitocondrial en cada vegano ni la necesidad de un ciclo preventivo para todos a partir de determinada edad.
1.3. TauT y gradientes iónicos
La acumulación celular depende del transportador TauT, codificado por SLC6A6. Se describe habitualmente el acoplamiento de una molécula de taurina con dos iones sodio y uno cloruro:
La energía procede de los gradientes electroquímicos mantenidos por la Na⁺/K⁺-ATPasa, no de la hidrólisis directa de ATP por TauT. El desplazamiento de carga positiva hace electrogénico el transporte. La regulación osmótica por NFAT5/TonEBP, la fosforilación y los cambios de expresión pueden modificar la captación; tener transportador no garantiza una saturación equivalente en todos los tejidos.
Los modelos deficientes en Slc6a6 muestran la importancia de conservar la taurina tisular: se afectan corazón, retina y músculo esquelético. Representan una alteración grave del transporte, no una dieta ordinaria con menos marisco. Aumentar el sustrato extracelular tampoco necesariamente compensa un transportador ausente o muy dañado.
1.4. Plasma, citosol y matriz son mediciones distintas
La taurina debe alcanzar las enzimas de la matriz para formar parte del ARNt. La membrana externa y la interna, selectivamente permeable, plantean problemas de transporte diferentes. No se puede declarar automáticamente que el SLC6A6 plasmático sea el transportador establecido de la membrana mitocondrial interna. Identificar esta vía con un SLC25 concreto o una «forma mitocondrial de TauT» no está confirmado por la literatura seleccionada y no se presenta como hecho.
Los experimentos con fracciones subcelulares o alteración del potencial requieren considerar pureza, escape de metabolitos y efectos indirectos de los desacoplantes. El depósito matricial exacto, la cinética de transporte y su aumento farmacológico necesitan mediciones separadas. Un pico sanguíneo breve no indica entrega al cerebro, captación por la organela ni proporción de ARNt modificados.
2. Qué se modifica en el ARN
2.1. Descubrimiento del fragmento covalente
Suzuki y colaboradores identificaron en 2002 nucleósidos de ARNt mitocondriales que contienen taurina mediante espectrometría de masas y taurina marcada. La conclusión central es que un metabolito libre pasa a formar parte de una base modificada concreta. Es una explicación más precisa que «nutrir las mitocondrias» y no anula las demás funciones fisiológicas de la taurina.
Las posiciones 34–36 del anticodón interactúan de manera antiparalela con el codón: la base 34 reconoce la tercera base de este. Se denomina posición de balanceo o wobble. Su modificación cambia las propiedades de lectura sin alterar la identidad del ARNt ni del aminoácido unido.
2.2. Cinco ARNt y dos formas químicas
El esquema «solo Leu y Trp, con Trp tiolado» es incorrecto. El análisis químico completo de los ARNt mitocondriales humanos de 2020 describe este mapa:
| ARNt mitocondrial | Modificación de U34 | Codones terminados en purina |
|---|---|---|
| Leu(UUR) | τm⁵U | UUA, UUG |
| Trp | τm⁵U | UGA, UGG |
| Lys | τm⁵s²U | AAA, AAG |
| Glu | τm⁵s²U | GAA, GAG |
| Gln | τm⁵s²U | CAA, CAG |
En el código mitocondrial de mamíferos UGA especifica triptófano, mientras que en el código nuclear estándar es un codón de terminación. Otro adaptador de leucina, Leu(CUN), atiende una familia distinta y no sustituye a Leu(UUR). El conjunto mínimo de 22 ARNt utiliza varias estrategias de reconocimiento; la ausencia de modificación en U34 en otras familias no siempre es patológica.
2.3. Sustituyente C5 y 2-tiolación independiente
En la 5-taurinometiluridina se une a C5 del uracilo el fragmento:
El puente metileno conecta la base con el nitrógeno de la taurina. En τm⁵s²U, además, el oxígeno de C2 se sustituye por azufre. Es una operación independiente, no un traslado del azufre sulfonato de taurina a C2. Esta distinción importa en genética: los defectos MTO1/GTPBP3 y TRMU afectan etapas diferentes, aunque ambos pueden alterar la cadena respiratoria.
3. Las enzimas conectan metabolismo y modificación
3.1. MTO1–GTPBP3: vía compartida, sin especificidad absoluta
MTO1 y GTPBP3 están codificados en el núcleo, se sintetizan fuera de la mitocondria y se dirigen al aparato modificador de la matriz. Sus homólogos bacterianos MnmG/GidA y MnmE emplean un mecanismo relacionado de modificación de U34. MTO1 es un componente asociado a flavina que interactúa con el ARNt; GTPBP3 proporciona la actividad dependiente de GTP. Los motivos conservados de unión a GTP, las regiones Switch y la coordinación de Mg²⁺ enlazan el ciclo nucleotídico con cambios conformacionales. Es un marco funcional respaldado, pero la analogía bacteriana no establece cada movimiento del complejo humano.
La reconstitución, la inactivación genética y el trazado isotópico relacionan la formación de τm⁵U con taurina y 5,10-metilentetrahidrofolato. La reacción esquemática indica entradas necesarias, no un ciclo catalítico completamente balanceado:
La exclusión total de glicina es falsa: Asano y colaboradores detectaron cmnm⁵U en células privadas de taurina, donde la glicina sustituye al fragmento taurínico. Esta plasticidad metabólica no demuestra una sustitución funcional completa en todas las condiciones, pero contradice un bolsillo catalítico absolutamente aislado.
3.2. Metabolismo de un carbono: SHMT2 y folatos
SHMT2 transfiere una unidad de carbono de serina al tetrahidrofolato y utiliza PLP. La reacción es reversible:
MTHFD2/MTHFD2L mitocondriales participan en las conversiones de formas de folato y en el metabolismo redox. Pertenecer a la misma red no implica que MTHFD2L entregue directamente el puente al centro activo de MTO1. Importa la disponibilidad del derivado adecuado, no solo la concentración total de ácido fólico sanguíneo.
Una carencia de taurina, un flujo de un carbono alterado y un defecto de ARNt pueden converger por rutas diferentes. Añadir metilfolato, B12 o betaína no garantiza corregir ninguno. La necesidad bioquímica de un cofactor no puede convertirse en eficacia demostrada de una combinación nutracéutica.
3.3. MTU1/TRMU y una fuente de azufre independiente
MTU1, codificada por TRMU, cataliza la 2-tiolación de U34 en los ARNt Lys, Glu y Gln. En esta clase de reacciones ATP activa el sitio para sustituir oxígeno por azufre; cisteína y la desulfurasa mitocondrial NFS1 participan en su disponibilidad. NFS1 también interviene en la formación de centros hierro–azufre, por lo que una alteración del metabolismo del azufre puede tener varias consecuencias.
Compartir fuentes no hace de ISCU un transportador intermedio directo obligatorio hacia TRMU en una cadena humana demostrada. La secuencia exacta de transferencia requiere evidencia separada. Menor tiolación tampoco equivale a perder el sustituyente C5-taurinometilo: deben distinguirse analíticamente, no agruparse como «déficit de taurina».
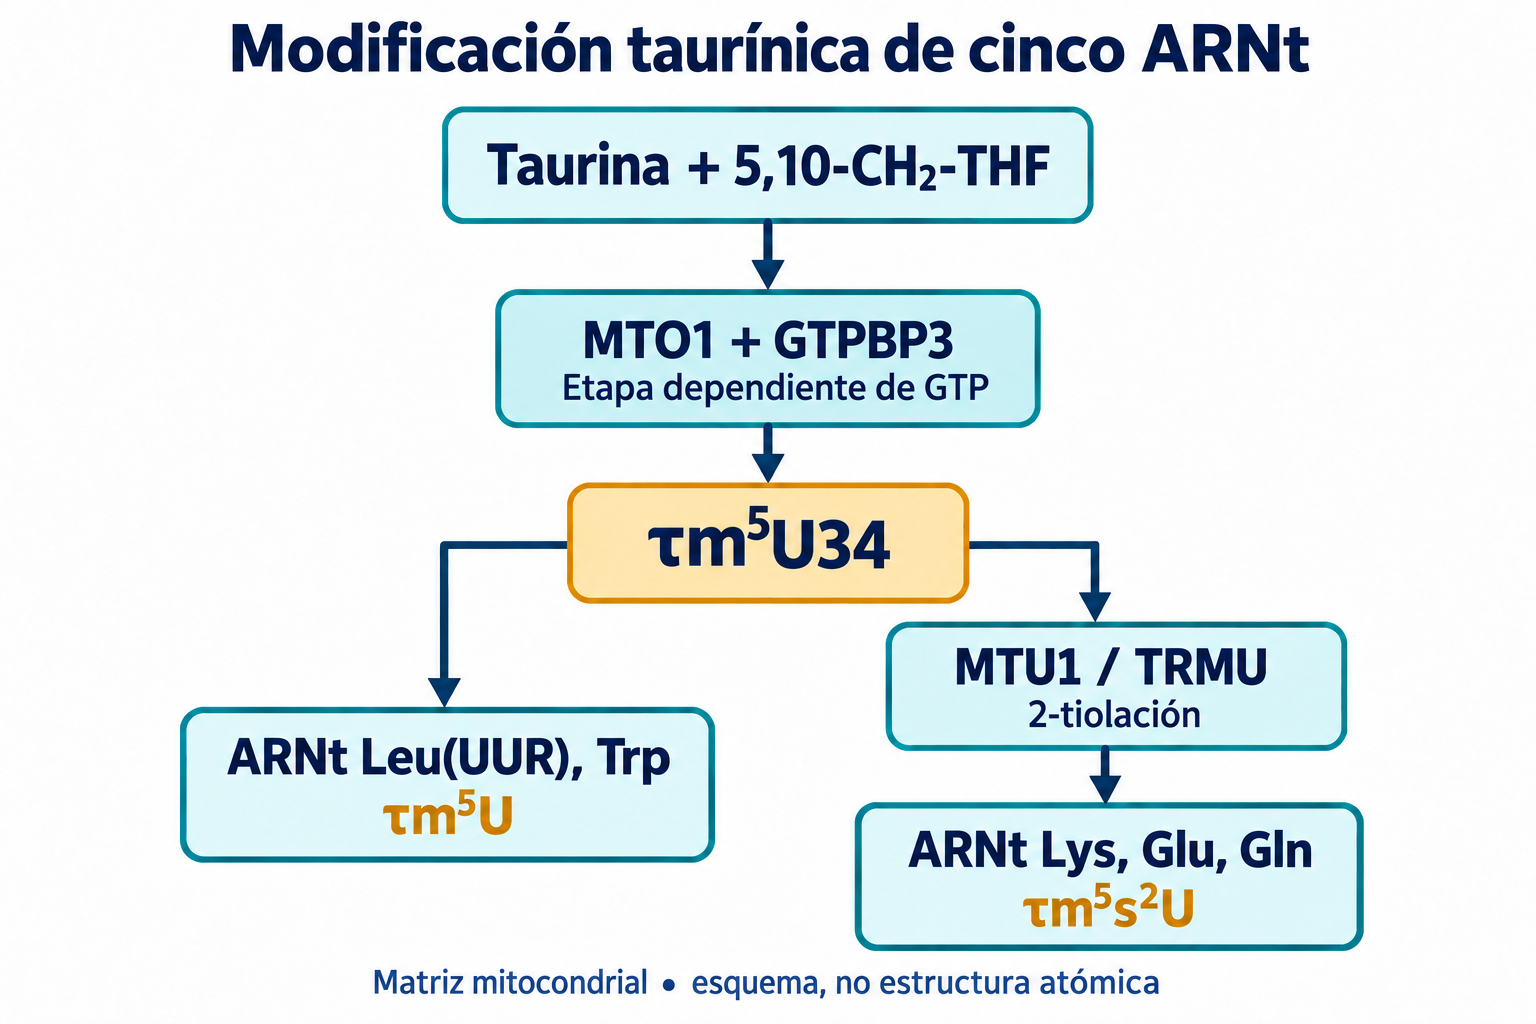
Dos etapas de la modificación de U34. Los productos y ARNt corresponden al ser humano; es un esquema funcional, no un modelo atómico del complejo.
3.4. Defectos hereditarios y variabilidad clínica
| Gen | Etapa principal afectada | Manifestaciones descritas | Conclusión no automática |
|---|---|---|---|
| MTO1 | Modificación C5 de U34 | Cardiomiopatía, acidosis láctica, alteraciones neurológicas y musculares | Que añadir sustrato repare la enzima defectuosa |
| GTPBP3 | Modificación dependiente de GTP | Cardiomiopatía, encefalopatía, acidosis láctica | Que mecanismo y respuesta sean idénticos a MELAS |
| TRMU | 2-tiolación | En particular, insuficiencia hepática infantil aguda | Que todo caso sea reversible o reciba el mismo régimen de taurina |
Ghezzi, Kopajtich y Zeharia relacionaron variantes genéticas con alteraciones de traducción mitocondrial. Gravedad y desenlace dependen de variantes, actividad residual, tejido y edad. En algunos pacientes con enfermedad asociada a TRMU se considera apoyar el metabolismo de cisteína dentro de atención especializada; no es un protocolo doméstico ni una explicación universal de sordera hereditaria.
4. Lectura: la geometría importa más que un «cerrojo conformacional»
4.1. Orientación antiparalela y familias de leucina
El anticodón de Leu(UUR) se escribe 5′-UAA-3′; reconoce los codones 5′-UUA-3′ y 5′-UUG-3′. Por la orientación antiparalela U34 interactúa con A o G finales, no con el primer U. En esa posición la modificación cambia la eficiencia del reconocimiento.
UUA y UUG no tienen igual sensibilidad a perder τm⁵U. Los experimentos de Kirino y colaboradores de 2004 con ARNt alterado demostraron un defecto marcado y específico para UUG. La observación directa es más sólida que deducir todo el fenotipo del tamaño o la carga del sustituyente.
4.2. Ribosa, apilamiento y geometría del par
La ribosa puede ocupar regiones C3′-endo y C2′-endo; la primera es típica del ARN de tipo A. Los sustituyentes químicos cambian preferencias conformacionales, hidratación y apilamiento; la 2-tiolación modifica además la base. Sin embargo, el sulfonato no demuestra una prohibición absoluta de C2′-endo en cualquier ARNt.
Los datos estructurales respaldan una geometría similar a Watson–Crick del par τm⁵U34–G3 y un apilamiento favorable con los pares vecinos. Es más preciso que imaginar un par U:G ordinario «bloqueado rígidamente» por taurina. La lectura depende de todo el bucle del anticodón y de su entorno; las modificaciones vecinas también son específicas. No se puede atribuir universalmente el mismo A37 modificado a todos esos bucles.
4.3. Sitio A, aminoacil-ARNt y control de calidad
La subunidad pequeña del mitorribosoma examina la interacción codón–anticodón al llegar el aminoacil-ARNt. EF-Tu mitocondrial y su ciclo GTP participan en entrega y selección; la acomodación productiva permite continuar la síntesis. La modificación puede influir en reconocimiento, selección y velocidad sin convertir la reacción en infalible.
Un adaptador mal utilizado puede retrasar la elongación, reducir el producto completo y activar control de calidad. No toda demora termina en colisión o cambio de marco. Aquí no se usan velocidades milisegundo no confirmadas ni una caída universal de Kd de 10–15 veces. mtRF1a es principalmente un factor de terminación; atribuirle liberación obligatoria de la cadena en cualquier UUG no modificado sin un experimento directo es incorrecto.
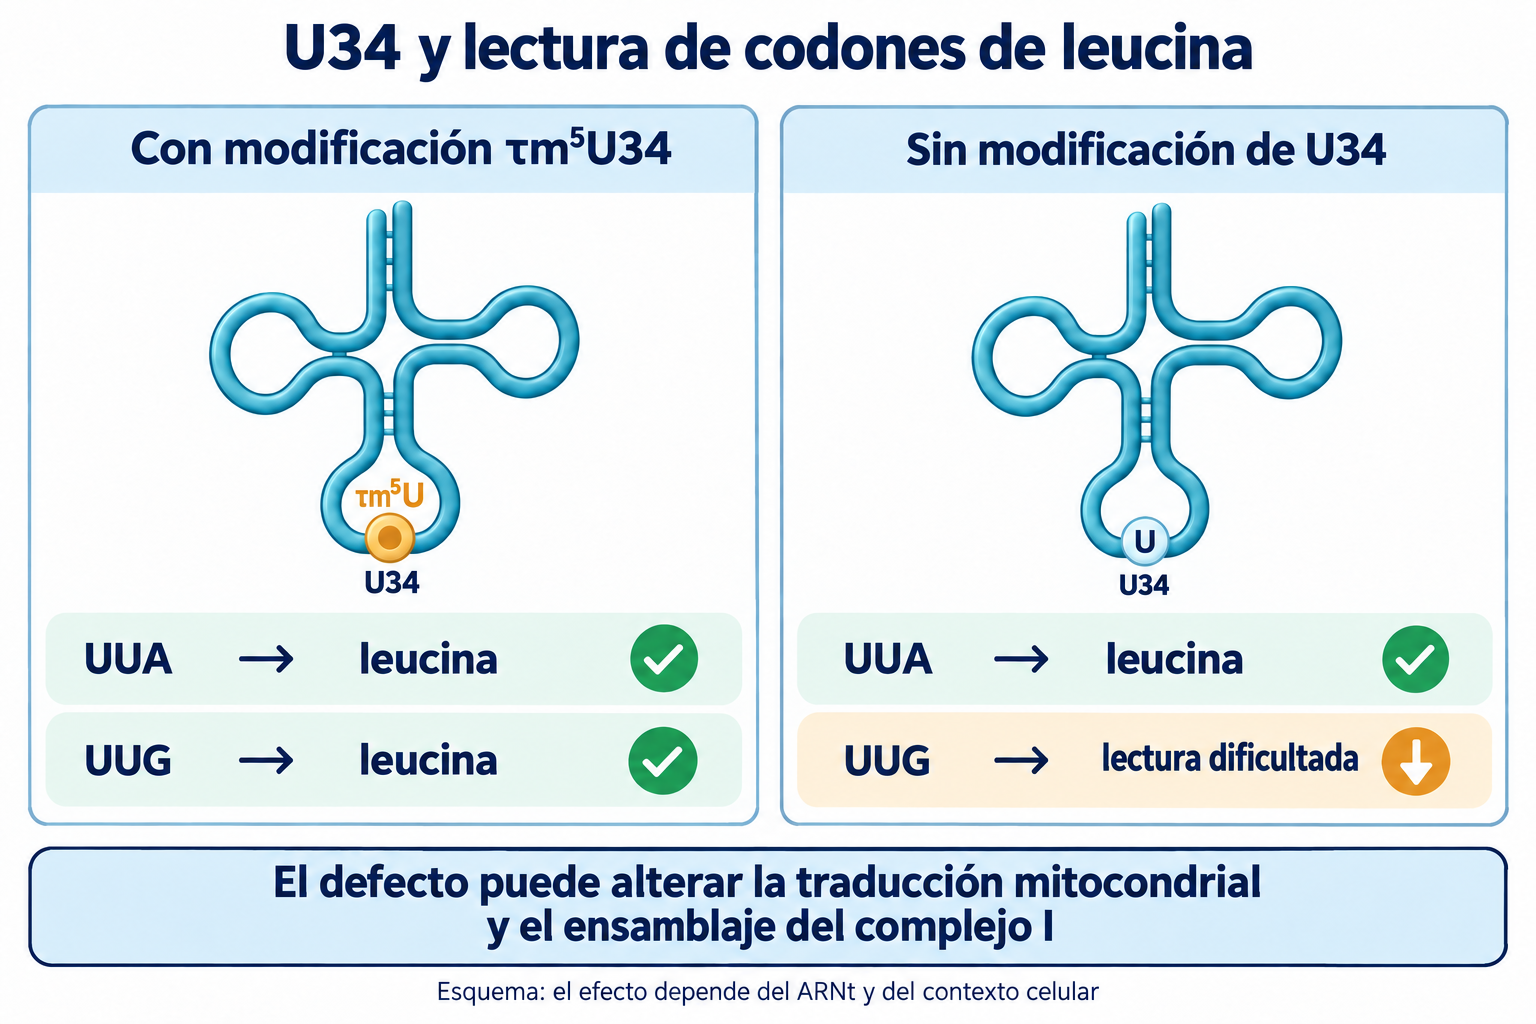
La comparación representa el efecto específico por codón de la modificación de Leu(UUR). Los iconos muestran una diferencia cualitativa, no la velocidad de traducción ni la magnitud del efecto clínico.
5. De los codones a la cadena respiratoria
5.1. Los 13 productos y su vulnerabilidad diferencial
El ADN mitocondrial codifica 13 subunidades de fosforilación oxidativa; la mayoría de los demás componentes son nucleares e importados. Un defecto de modificación puede afectar productos distintos porque MTO1/GTPBP3 atienden cinco ARNt, mientras una mutación MT-TL1 afecta directamente a un adaptador. La abundancia proteica depende también de degradación, ensamblaje y estabilidad: un inmunoblot no mide directamente la velocidad de traducción.
| Complejo | Subunidades codificadas por ADNmt | Relación con el defecto |
|---|---|---|
| I | ND1, ND2, ND3, ND4, ND4L, ND5, ND6 | Alterar síntesis o ensamblaje puede reducir el complejo funcional |
| III | CYTB | Participa en la traducción mitocondrial; no queda necesariamente preservado en todos los defectos |
| IV | COX1, COX2, COX3 | Es posible una deficiencia respiratoria combinada |
| V | ATP6, ATP8 | Depende del aparato mitocondrial, con otro perfil de alteración |
Los estudios de Leu(UUR) defectuoso destacan la sensibilidad de ND6 al descifrado de UUG. ND5 también es importante, pero no puede considerarse una diana igualmente primaria en todo déficit de taurina. Comparar números absolutos y porcentajes de UUG exige un recuento reproducible frente a una secuencia de referencia definida; sin él no deben presentarse cifras exactas como mediciones. La composición de codones sigue siendo relevante: cantidad y posición de codones sensibles pueden modificar el rendimiento, pero no bastan para ordenar universalmente los 13 productos.
5.2. ND5, ND6 y ensamblaje del brazo de membrana
El complejo I acopla oxidación de NADH y reducción de ubiquinona al paso de protones desde la matriz al espacio intermembrana. El brazo periférico contiene flavina y centros hierro–azufre; el brazo de membrana incluye subunidades codificadas por ADNmt. La descripción funcional habitual transfiere cuatro protones por par de electrones, pero el mecanismo conecta varios sitios, no una única «bomba ND6».
ND5 es una subunidad distal similar a un antiportador, con un elemento lateral largo que contacta el brazo membranoso. ND6 se sitúa más cerca de la región proximal y participa en la organización conformacional. El sitio de reducción de Q incluye varias subunidades; ND6 no es el único punto de transferencia de electrones a ubiquinona. Las estructuras de Fiedorczuk, Zhu y Kampjut muestran un acoplamiento complejo entre reacción redox y vías protónicas, no una única onda mecánica definitivamente demostrada.
El ensamblaje es modular y coordina productos nucleares y mitocondriales. Perder un componente esencial puede desestabilizar otros y destruir ensamblajes intermedios. El defecto funcional puede, por tanto, superar la alteración inicial de lectura de codones.
5.3. Qué explica y qué no mide un modelo probabilístico
En un ejemplo ideal de sitios vulnerables independientes, la probabilidad de completar un producto se representa como:
Si cada sitio comparte la misma probabilidad de paso exitoso, . Ilustra pérdidas acumuladas, no una cinética medida de ND5. Los ribosomas pueden intentar de nuevo la lectura; una demora no siempre es terminación irreversible. Codones vecinos, abundancia de ARNt y control de calidad también rompen la independencia. Valores arbitrarios de p y N no calculan el «porcentaje de colapso» respiratorio de un paciente.
5.4. Respiración, estado redox y ROS
Menor capacidad del complejo I puede limitar oxidación de NADH, cambiar NADH/NAD⁺ y modificar la adaptación del metabolismo del carbono. El lactato refleja varios procesos, incluida regeneración de NAD⁺ y demanda tisular; no indica específicamente la modificación de U34. State 3 es una condición experimental de respiración estimulada por ADP en mitocondrias aisladas, no el estado permanente de la célula.
Ciertas combinaciones de reducción de centros, potencial y sustratos pueden aumentar la fuga electrónica al oxígeno. Estas reacciones simplificadas muestran la dirección química:
La dismutación no equivale al daño: importan eliminación de H₂O₂, hierro disponible y localización. Un defecto del complejo I no aumenta siempre todos los indicadores ROS; varían sustratos y compensaciones. La taurina no debe presentarse como captador directo universal del superóxido. Tiene más fundamento una relación contextual entre conservar traducción y respiración y reducir una fuente de carga oxidativa. Puede dañarse cardiolipina o ADNmt, pero mPTP y permeabilización apoptótica de la membrana externa son fenómenos diferentes.
6. MELAS: hipótesis molecular y resultado clínico concreto
6.1. Una mutación de ARNt no explica toda la patogenia
Una causa frecuente de MELAS es la variante heteroplásmica m.3243A>G en MT-TL1, que codifica Leu(UUR). Se sitúa fuera del anticodón, pero puede alterar estructura, procesamiento, abundancia y modificación del ARNt. La distribución del ADNmt mutante y la función residual explican parte de la variabilidad. MELAS no se reduce a perder un sustituyente, ni portar m.3243A>G determina un único curso clínico.
Menor τm⁵U en el ARNt mutante conecta la genética con lectura dificultada de UUG. La posibilidad de aumentar la modificación con más taurina depende de disponibilidad de sustrato y aparato conservado. Perder totalmente una enzima y reducir la capacidad de modificar un ARNt son restricciones distintas.
6.2. Episodios similares al ictus y modelo vascular
Las lesiones MELAS a menudo no respetan el territorio de una arteria principal. Se consideran déficit energético neuronal, actividad convulsiva, cambios microvasculares, desregulación de NO y edema. No es una secuencia lineal «ROS → espasmo → edema» demostrada en cada episodio; el término «similar al ictus» tampoco permite descartar por cuenta propia un ictus ordinario.
Los síntomas neurológicos agudos requieren evaluación urgente. Prevenir recurrencias no equivale a que la taurina aborte inmediatamente un episodio ni sustituya anticonvulsivantes u otros componentes de atención especializada.
6.3. Respuesta al sustrato: marco cinético útil
La dependencia de velocidad respecto a un sustrato se ilustra a veces con saturación:
Es el modelo Michaelis–Menten bajo condiciones definidas, no una «ley termodinámica» que demuestre beneficio terapéutico. El complejo usa varios componentes, y dañar el ARNt puede alterar reconocimiento, no solo el Km aparente para taurina. Aumentar [S] no supera el Vmax residual ni crea una enzima ausente.
Los estudios midieron mayor modificación del ARNt en leucocitos periféricos. Apoya plausibilidad biológica, pero no demuestra restauración de todos los ARNt cerebrales, normalización de todas las subunidades del complejo I ni eliminación de heteroplasmia.
6.4. Qué mostró Ohsawa
El ensayo multicéntrico de fase III incluyó 10 pacientes con episodios recurrentes. Recibieron 9 o 12 g diarios durante 52 semanas. Fue abierto y comparó con el periodo previo, sin grupo paralelo aleatorizado con placebo. Las primeras ocho semanas quedaron fuera del periodo de evaluación principal.
| Indicador | Observación | Límite interpretativo |
|---|---|---|
| Prevención completa durante evaluación | 60%; IC95% 26,2–87,8% | Seis de diez, no diez de diez |
| Reducción de frecuencia de al menos la mitad | 80%; IC95% 44,4–97,5% | La respuesta difiere entre pacientes |
| Frecuencia anual media | 2,22 antes y 0,72 durante tratamiento | La comparación intragrupo admite sesgos |
| Modificación Leu(UUR) en leucocitos | Aumento significativo en cinco pacientes | Variable mecanística periférica |
| Seguridad | Sin eventos graves relacionados con taurina | El tamaño pequeño no excluye riesgos raros o prolongados |
Es una señal prometedora para una enfermedad rara concreta. «Fase III» no convierte una experiencia abierta pequeña en un gran ensayo aleatorizado. Los dos pacientes descritos previamente con seguimiento prolongado tampoco dan una garantía general. Japón aprobó en 2019 ampliar la indicación del polvo medicinal de taurina al 98% para suprimir episodios similares al ictus en MELAS. Es una decisión específica, no aprobación mundial de cualquier suplemento para disfunción mitocondrial, mutaciones MTO1/GTPBP3 o prevención del envejecimiento.
7. Envejecimiento: resultados animales y un biomarcador discutido
7.1. Hallazgos de Singh y colaboradores
El trabajo de Science de 2023 informó una disminución de taurina circulante con la edad en las poblaciones estudiadas y mejoras de varios indicadores al suplementar animales. Los ratones recibieron 1000 mg/kg diarios desde los 14 meses; la mediana de supervivencia aumentó aproximadamente 10–12%. Experimentos separados examinaron hueso, función muscular, metabolismo de glucosa, conducta y parámetros inmunitarios. En primates se estudiaron indicadores de salud, no prolongación de la vida hasta muerte natural.
Equiparar la edad de un ratón con una edad humana concreta es aproximado. Una dosis en mg/kg no se traslada directamente a un paciente adulto, y modificar marcadores de macacos no reemplaza un ensayo de resultados clínicos humanos. Las asociaciones con enfermedades y el aumento tras ejercicio en la parte humana no prueban que suplementar prolongue la vida humana.
7.2. Los datos de 2025 cambian la interpretación
Fernandez y colaboradores analizaron en Science de 2025 datos longitudinales y transversales de tres cohortes humanas geográficamente distintas, además de primates y ratones. La taurina circulante se mantuvo estable o aumentó con la edad; las relaciones con medidas motoras y energéticas variaron. No reproducen una depleción sanguínea universal y contradicen usar un valor sérico como «reloj biológico de taurina».
La discrepancia no invalida la química de taurina en ARNt ni un experimento específico de suplementación en ratones. Separa el posible efecto de una intervención de la validez de la concentración inicial como marcador universal. Dieta, metabolismo renal, actividad física, sexo, captación tisular y muestreo pueden alterar la concentración. Los datos no implican una caída de CDO/CSAD en todas las personas ni un ciclo obligatorio después de los 45 años.
7.3. Senescencia, SASP y mitocondrias
Se estudiaron cambios en marcadores de senescencia, inflamación, daño del ADN, proteostasis, autofagia y función mitocondrial. Estas redes interactúan: menos daño no necesariamente implica eliminar directamente células senescentes, y cambiar LC3 no demuestra por sí solo mayor flujo mitofágico completado. No puede universalizarse una secuencia TFEB → PINK1/Parkin ni una lista entera de citocinas suprimidas para todos los tejidos.
La modificación taurínica del ARNt es un mecanismo de conexión plausible, pero no se ha establecido una única causa de cambio de longevidad. Comparar con senescencia e investigación de fisetina ayuda: reducir marcadores de envejecimiento, cambiar SASP y demostrar eliminación selectiva de células senescentes requieren experimentos distintos. Una caída de p16 o de un marcador inflamatorio animal no convierte la taurina en senolítico clínicamente probado.
8. Exposición, combinaciones y seguridad
8.1. La farmacocinética no sustituye al efecto tisular
En el pequeño estudio de Ghandforoush-Sattari, ocho hombres sanos recibieron una dosis única de 4 g. El pico plasmático ocurrió aproximadamente a las 1,5 horas y la semivida aparente plasmática fue cercana a una hora. Es un estudio específico de una dosis, no demostración de biodisponibilidad absoluta universal de 70–90%, semivida tisular de 7–14 días o cinética idéntica en niños y personas con insuficiencia renal.
Absorción y distribución incluyen transportes saturables; se consideran TauT y PAT1 intestinal, acoplado a protones. Los riñones filtran taurina y adaptan la reabsorción, por lo que la excreción varía según ingesta y estado fisiológico. La conservación renal no protege necesariamente frente a acumulación con cualquier dosis y función renal alterada. Los estudios citados no establecen un «umbral de toxicidad» plasmático universal.
Para estudiar efectos importan formulación, dosis real, momento de extracción y compartimento. Plasma, taurina libre tisular y proporción de τm⁵U en ARN son variables diferentes. La ingesta repetida puede alterar exposición, pero persistencia y respuesta funcional deben medirse, no deducirse de un pico breve.
8.2. Tres preguntas clínicas en lugar de una escala universal de dosis
| Contexto | Discusión fundamentada | Lo no establecido |
|---|---|---|
| Adulto sano, nutrición, deporte, edad | Dieta, objetivo definido, estudios disponibles y tolerancia | Un régimen geroprotector obligatorio según edad o dieta |
| Enfermedad cardiometabólica | Intervención complementaria según diagnóstico y tratamiento habitual | Un protocolo único para insuficiencia cardiaca, diabetes y esteatohepatitis |
| MELAS | Uso especializado de taurina medicinal en el contexto estudiado/aprobado | Aplicar 9–12 g/día a toda fatiga, acidosis láctica o defecto genético |
Existen estudios cardiovasculares y metabólicos, pero un artículo mecanístico no sustituye la evaluación separada de resultados para cada indicación. La dosis MELAS describe un estudio, no una recomendación independiente. Añadir sustrato puede actuar distinto ante un defecto enzimático y ante un ARNt mutante parcialmente modificable. No es apropiado trasladar dosis adultas a niños sin prescripción.
8.3. Magnesio, Q10, carnitina y donantes de un carbono
Mg²⁺ es necesario para numerosas reacciones dependientes de nucleótidos, pero compatibilidad bioquímica no demuestra superioridad del taurato de magnesio ni restauración de homeostasis cálcica mediante esa sal. Deben distinguirse magnesio elemental y componente taurínico. Corregir una carencia demostrada difiere de prescribir combinaciones sin carencia.
La ubiquinona recibe electrones, incluidos los del complejo II. El ubiquinol añadido no garantiza evitar cualquier defecto del complejo I ni mantener ATP suficiente: entrega, estado redox del depósito Q e integridad de complejos posteriores limitan el resultado. El análisis de ubiquinol y ubiquinona distingue el papel del transportador de electrones del efecto clínico de una formulación.
La vía de carnitina incluye CPT1, la translocasa carnitina–acilcarnitina y CPT2 para transportar grupos acilo destinados a oxidación. No restaura automáticamente la modificación de U34. Metilfolato, B12, betaína y precursores de cisteína pertenecen a ramas distintas; un cruce bioquímico posible no prueba sinergia de un producto multicomponente. Las fórmulas de «cóctel mitocondrial» necesitan sus propios datos comparativos.
8.4. Tolerabilidad y límites de observación
La taurina se toleró razonablemente en muchos estudios, pero «absolutamente segura de por vida» no es una conclusión válida. EFSA evaluó en 2009 exposición a ingredientes de bebidas energéticas y toxicología experimental, no autorización clínica universal de 3 g diarios vitalicios. Un NOAEL experimental específico no se convierte en dosis humana universal; un documento sobre declaraciones saludables tampoco constituye ese permiso de FDA.
El pequeño ensayo MELAS no detectó eventos graves relacionados, pero tamaño y duración no excluyen riesgos raros. Puede haber molestias gastrointestinales; comer modifica tolerabilidad sin garantizar que desaparezcan todos los síntomas. Enfermedad renal, embarazo, infancia y medicación concomitante requieren evaluación específica. Una bebida con cafeína y otros componentes no equivale a taurina medicinal.
En tratamiento especializado se siguen episodios clínicos, control de convulsiones y tolerancia; según indicación se evalúan función renal, pruebas hepáticas, electrolitos y marcadores metabólicos. Lactato, piruvato y taurina plasmática se interpretan según extracción y enfermedad. No existe un panel universal que confirme restauración de ARNt mitocondriales o vuelva segura cualquier dosis alta.
9. Preguntas abiertas
La conexión metabolito → base modificada → lectura → cadena respiratoria cuenta con apoyo en varios niveles independientes. La evidencia clínica más sólida se refiere a un mecanismo MELAS concreto y una indicación medicinal japonesa específica. La prolongación de vida humana, la corrección universal del complejo I mediante suplementos y la sinergia nutricional garantizada tienen un respaldo mucho menor que esta base molecular.
La investigación incluye identificar y controlar entrega a matriz, medir modificaciones en tejidos accesibles y afectados, determinar actividad enzimática residual y diferencias genotípicas. Manipular MTO1/GTPBP3 o transporte es una diana experimental, no un tratamiento disponible. Nuevas intervenciones necesitan desenlaces clínicos, grupo control y evaluación de seguridad; mayor concentración o un modelo estructural atractivo no bastan.
Nota metodológica
Es una revisión narrativa de la literatura del artículo proporcionado, con verificación dirigida de conflictos relevantes el 8 de octubre de 2026. Se comprobaron asignación de modificaciones a ARNt, fuente del fragmento C5 y uso alternativo de glicina, FMO1, resultados y diseño MELAS, indicación japonesa, límites farmacocinéticos y datos contradictorios de envejecimiento de 2025. No se realizó búsqueda sistemática completa, metaanálisis, evaluación GRADE formal ni revisión externa. No se presentan cifras precisas no fundamentadas de transporte, estructura y codones como hechos establecidos; las incertidumbres restantes se señalan en sus secciones. El material explica biología y calidad de evidencia sin crear un protocolo individual.
Preguntas frecuentes
¿La taurina entra en las proteínas respiratorias?
No es un residuo polipeptídico habitual. Su fragmento modifica bases de ciertos ARNt e influye en síntesis proteica mitocondrial.
¿El ARNt Trp contiene τm⁵s²U?
En mitocondrias humanas Trp contiene τm⁵U. La forma 2-tiolada τm⁵s²U corresponde a Lys, Glu y Gln.
¿9–12 g diarios sirven para cualquier problema mitocondrial?
No. Son dosis de un estudio específico de MELAS, no un régimen universal para fatiga, envejecimiento o defectos enzimáticos.
¿Está probado que la taurina prolongue la vida humana?
No. Resultados en ratones y marcadores de primates no sustituyen ensayos humanos; también se discute el patrón sanguíneo universal de envejecimiento.
¿Taurina plasmática alta prueba restauración del ARNt?
No. Plasma, depósitos tisulares y matriciales y proporción de nucleósidos modificados son mediciones distintas.
Fuentes
- Suzuki T, Suzuki T, Wada T, Saigo K, Watanabe K. Taurine as a constituent of mitochondrial tRNAs: new insights into the functions of taurine and human mitochondrial diseases. EMBO J. 2002;21(23):6581-6589.
- Singh P, Gollapalli K, Mangiola S, et al. Taurine deficiency as a driver of aging. Science. 2023;380(6649):eabn9257.
- Ohsawa Y, Hagiwara H, Nishimatsu SI, et al. Taurine supplementation for prevention of stroke-like episodes in MELAS: a multicentre, open-label, 52-week phase III trial. J Neurol Neurosurg Psychiatry. 2019;90(5):529-536.
- Rikimaru J, Ohsawa Y, Wolf AM, et al. Taurine ameliorates impaired mitochondrial function and prevents stroke-like episodes in patients with MELAS. Intern Med. 2012;51(24):3351-3357.
- Kirino Y, Yasukawa T, Ohta S, et al. Codon-specific translational defect caused by a wobble modification deficiency in mutant tRNA from a human mitochondrial disease. Proc Natl Acad Sci USA. 2004;101(42):15070-15075.
- Ghezzi D, Baruffini E, Haack TB, et al. Mutations of the mitochondrial-tRNA modifier MTO1 cause hypertrophic cardiomyopathy and lactic acidosis. Am J Hum Genet. 2012;90(6):1079-1087.
- Kopajtich R, Nicholls TJ, Rorbach J, et al. Mutations in GTPBP3 cause a mitochondrial translation defect associated with hypertrophic cardiomyopathy, lactic acidosis, and encephalopathy. Am J Hum Genet. 2014;95(6):708-720.
- Jong CJ, Azuma J, Schaffer SW. Mechanism underlying the antioxidant activity of taurine: prevention of mitochondrial oxidant production. Amino Acids. 2012;42(6):2223-2232.
- Schaffer SW, Jong CJ, Ramila KC, Azuma J. Physiological roles of taurine in heart and muscle. J Biomed Sci. 2010;17(Suppl 1):S2.
- Yasukawa T, Suzuki T, Ishii N, Ohta S, Watanabe K. Wobble modification defect in tRNA disturbs codon-anticodon interaction in a mitochondrial disease. EMBO J. 2001;20(17):4794-4802.
- Yasukawa T, Suzuki T, Ueda T, Ohta S, Watanabe K. Modification defect at anticodon wobble position of mitochondrial tRNAs((Leu)(UUR)) with pathological mutations of mitochondrial myopathy, encephalopathy, lactic acidosis, and stroke-like episodes (MELAS). J Biol Chem. 2000;275(6):4251-4257.
- Suzuki T, Yashiro Y, Kikuchi I, et al. Complete chemical structures of human mitochondrial tRNAs. Nat Commun. 2020;11(1):4269.
- Zeharia A, Shaag A, Pappo O, et al. Acute infantile liver failure due to mutations in the TRMU gene. Am J Hum Genet. 2009;85(3):401-407.
- Ito T, Yoshikawa N, Inui T, et al. Tissue depletion of taurine accelerates skeletal muscle senescence and leads to early death in mice. PLoS One. 2014;9(9):e107409.
- Han X, Chesney RW. Knockout mice reveal the physiological importance of taurine transporter (TauT). Adv Exp Med Biol. 2013;776:1-12.
- Chesney RW, Han X, Patters AB. Taurine and the renal system. J Biomed Sci. 2010;17(Suppl 1):S4.
- Stipanuk MH, Ueki I. Dealing with methionine/homocysteine sulfur: cysteine metabolism to taurine and inorganic sulfur. J Inherit Metab Dis. 2011;34(1):17-32.
- Suzuki T, Nagao A, Suzuki T. Human mitochondrial tRNAs: biogenesis, function, and disease. Annu Rev Genet. 2011;45:299-329.
- Goto Y, Nonaka I, Horai S. A mutation in the tRNA(Leu)(UUR) gene associated with the MELAS subgroup of mitochondrial encephalomyopathies. Nature. 1990;348(6302):651-653.
- Fiedorczuk K, Letts JA, Degliesposti G, Kaszuba K, Skehel M, Sazanov LA. Atomic structure of the entire mammalian mitochondrial complex I. Nature. 2016;538(7625):406-410.
- Zhu J, Vinothkumar KR, Hirst J. Structure of mammalian respiratory complex I. Nature. 2016;536(7616):354-358.
- Kampjut D, Sazanov LA. The coupling mechanism of mammalian respiratory complex I. Science. 2020;370(6516):eabc2983.
- Asano K et al. Metabolic and chemical regulation of tRNA modification associated with taurine deficiency and human disease. Nucleic Acids Res. 2018;46(4):1565-1583.
- Veeravalli S et al. Flavin-Containing Monooxygenase 1 Catalyzes the Production of Taurine from Hypotaurine. Drug Metab Dispos. 2020;48(5):378-385.
- Fernandez ME et al. Is taurine an aging biomarker? Science. 2025;388(6751):eadl2116.
- Ghandforoush-Sattari M et al. Pharmacokinetics of oral taurine in healthy volunteers. J Amino Acids. 2010:346237.
- EFSA. The use of taurine and D-glucurono-gamma-lactone as constituents of the so-called energy drinks. EFSA Journal. 2009;935:1-31.
- Japan clinical research registry jRCTs061180015. High-dose taurine in MELAS; record of the February 21, 2019 indication approval.