Taurin, mitoxondrial tRNK va nafas zanjiri: mexanizm hamda klinik chegaralar
Taurin sintezi va transporti, U34 modifikatsiyalari, MTO1/GTPBP3 va TRMU, kodon dekodlash, I kompleks, MELAS hamda qarish haqidagi ziddiyatli dalillar.
Taurin sintezi va transporti, U34 modifikatsiyalari, MTO1/GTPBP3 va TRMU, kodon dekodlash, I kompleks, MELAS hamda qarish haqidagi ziddiyatli dalillar.
Taurin odatiy oqsillar ketma-ketligiga kirmaydi, ammo uning fragmenti muayyan mitoxondrial tRNKlarga kovalent ulanadi. Shu sabab kichik erkin metabolit bilan nafas zanjiri o‘rtasidagi aloqa translyatsiya sifati orqali yuzaga keladi: adapter kerakli kodonni yomon tanisa, hujayrada mRNK va aminokislotalar borligi yetmaydi. Bu aloqa MELAS patogenezi va modifikatsiyalovchi fermentlarning irsiy nuqsonlarining bir qismini tushuntiradi. U har qanday charchoq, vegan ovqatlanish yoki qarish matriksdagi taurin yetishmovchiligidan kelib chiqishini anglatmaydi.
Quyida taurin sintezi va tashilishidan U34 modifikatsiyasi, I kompleks yig‘ilishi hamda odamlardagi natijalargacha bo‘lgan yo‘l ko‘rib chiqiladi. Substrat yetishmasligi, o‘zgargan tRNK va ishlamaydigan fermentni farqlash muhim: bir xil tashqi belgi bu nuqsonlarni o‘zaro almashinadigan davolash nishoniga aylantirmaydi.
Taurin — 2-aminoetansulfon kislota. Oqsil hosil qiluvchi aminokislotalarning karboksil guruhi o‘rniga sulfon guruhiga ega; fiziologik pH da svitterion ustun:
Uni polipeptidga kiritadigan odatiy «kodon — aminoatsil-tRNK» jufti yo‘q. Erkin taurin osmoregulyatsiya, o‘t kislotalari kon’yugatsiyasi va hujayra muhitini boshqarishda qatnashadi. RNKda esa boshqa yo‘l bilan — transkripsiyadan keyingi modifikatsiyaning kimyoviy substrati sifatida ishlatiladi. Bunday fragment aniqlanishi oqsildagi aminokislota almashganini yoki taurin RNKning shakar-fosfat skeletiga kirganini bildirmaydi.
Yurak, mushak, to‘r parda va asab to‘qimasidagi hujayra ichki zaxiralari plazma konsentratsiyasidan ancha yuqori. Lekin aniq miqdor tur, to‘qima, yosh va o‘lchash usuliga bog‘liq. Energiya talabchan a’zoda ko‘p bo‘lishi erkin taurinning muayyan ulushi matriksda joylashganini yoki plazma darajasi oshishi shu kompartmentni tiklashini isbotlamaydi.
Metionin transsulfuratsiya orqali sistein zaxirasini ta’minlashi mumkin. Keyin temirli sisteindioksigenaza CDO sisteinni oksidlaydi, PLPga bog‘liq sisteinsulfinatdekarboksilaza CSAD esa gipotaurin hosil qiladi. Umumlashtirilgan yozuv:
Oxirgi bosqichni yagona «gipotaurindegidrogenaza»ga ishonch bilan bog‘lab bo‘lmaydi. Veeravalli va hammualliflarning 2020 yilgi ishi gipotaurinning oksigenlanishida FMO1 qatnashishini aniqladi; uning kimyoviy oksidlanish yo‘llari ham mavjud. PLP, temir, prekursorlar mavjudligi va to‘qimadagi ferment ekspressiyasi oqimga ta’sir qiladi. Biroq bu sxema sintezni kuchaytirish uchun vitamin yoki mineral dozasini belgilamaydi.
Yo‘l faolligi turlar orasida sezilarli farq qiladi. Mushuklarning ovqatdagi tauringa majburiy ehtiyoji va kemiruvchilar xususiyatlari katta yoshli inson ehtiyoj normasini bermaydi. Odamda ovqat, endogen sintez va buyrakda saqlanish birgalikda zaxirani ushlab turadi. O‘simlik mahsulotlarida taurin odatda kam, ammo bundan har bir veganda mitoxondrial translyatsiya muqarrar buziladi yoki muayyan yoshdan keyin hammaga profilaktik kurs kerak degan xulosa chiqmaydi.
Hujayrada to‘planishni SLC6A6 kodlaydigan TauT tashuvchisi qo‘llab-quvvatlaydi. Odatda bitta taurin molekulasi ikkita natriy va bitta xlor ioni bilan birga tashilishi ta’riflanadi:
Energiya TauTning ATFni to‘g‘ridan-to‘g‘ri parchalashidan emas, Na⁺/K⁺-ATFaza saqlaydigan elektrokimyoviy gradientlardan keladi. Musbat zaryad tashilishi transportni elektrogen qiladi. NFAT5/TonEBP orqali osmotik boshqaruv, fosforlanish va ekspressiya o‘zgarishi qabul qilishni o‘zgartirishi mumkin; tashuvchi borligi barcha to‘qimalar bir xil to‘yinishini kafolatlamaydi.
Slc6a6 yetishmovchiligi modellari to‘qima taurinini saqlash muhimligini ko‘rsatadi: yurak, to‘r parda va skelet mushaklari zararlanadi. Bular transportning og‘ir nuqsoni modellari, dengiz mahsuloti kamroq odatiy ratsionning ekvivalenti emas. Hujayra tashqarisidagi substratni oshirish yo‘q yoki keskin buzilgan tashuvchini ham majburan qoplamaydi.
tRNK qismiga aylanishi uchun taurin matriks fermentlariga yetib borishi kerak. Tashqi membrana va tanlab o‘tkazadigan ichki membrana turli transport vazifalarini yaratadi. Plazmalemmadagi SLC6A6ni mitoxondriyaning ichki membranasida aniqlangan tashuvchi deb avtomatik atab bo‘lmaydi. Bu yo‘lni muayyan SLC25 yoki «mitoxondrial TauT shakli» deb belgilash tanlangan adabiyotda tasdiqlanmagan va bu yerda fakt sifatida ishlatilmaydi.
Subhujayraviy fraksiyalar hamda membrana potensialini buzish tajribalarida preparat tozaligi, metabolit chiqib ketishi va ajratuvchilarning bilvosita ta’siri hisobga olinishi kerak. Shu bois matriksdagi aniq zaxira, uning transport kinetikasi va farmakologik oshirilishi alohida o‘lchanadi. Qondagi qisqa cho‘qqi miyaga yetkazilish, organellaga kirish yoki modifikatsiyalangan tRNK ulushining ko‘rsatkichi emas.
Suzuki va hammualliflar 2002 yilda mass-spektrometriya va belgilangan taurin yordamida mitoxondrial tRNKlarning taurinli nukleozidlarini aniqlashdi. Asosiy xulosa: erkin metabolit muayyan modifikatsiyalangan asosning qismiga aylanadi. Bu nospetsifik «mitoxondriyalarni oziqlantirish» iborasidan ancha aniq va taurinning boshqa fiziologik vazifalarini bekor qilmaydi.
Antikodonning 34–36 pozitsiyalari kodon bilan antiparallel ta’sirlashadi: 34-asos kodonning uchinchi asosini taniydi. U wobble pozitsiyasi deb ataladi. Modifikatsiya shu qismning dekodlash xususiyatlarini o‘zgartiradi, tRNKning o‘ziga xosligi va unga birikkan aminokislota esa saqlanadi.
«Faqat Leu va Trp, Trp esa tiollangan» sxemasi xato. Inson mitoxondrial tRNKlarining 2020 yilgi to‘liq kimyoviy tahlili quyidagi xaritani beradi:
| Mitoxondrial tRNK | U34 modifikatsiyasi | Purin bilan tugaydigan kodonlar |
|---|---|---|
| Leu(UUR) | τm⁵U | UUA, UUG |
| Trp | τm⁵U | UGA, UGG |
| Lys | τm⁵s²U | AAA, AAG |
| Glu | τm⁵s²U | GAA, GAG |
| Gln | τm⁵s²U | CAA, CAG |
Sutemizuvchilarning mitoxondrial kodida UGA triptofanni, standart yadro kodida esa stop-kodonni bildiradi. Boshqa leysin adapteri Leu(CUN) alohida kodon oilasiga xizmat qiladi; uni Leu(UUR) bilan almashtirib bo‘lmaydi. 22 ta mitoxondrial tRNKdan iborat minimal to‘plam bir nechta tanish strategiyasini qo‘llaydi; boshqa oilalarda U34 modifikatsiyasi yo‘qligi doim patologiya emas.
5-taurinometiluridinda uratsilning C5 atomiga quyidagi fragment birikadi:
Metilen ko‘prigi asosni taurinning azoti bilan bog‘laydi. τm⁵s²Uda C2 dagi kislorod qo‘shimcha ravishda oltingugurt bilan almashtiriladi. Bu taurinning sulfonat oltingugurti C2 ga ko‘chishi emas, mustaqil kimyoviy operatsiya. Farq genetika uchun muhim: MTO1/GTPBP3 va TRMU nuqsonlari turli bosqichlarga ta’sir qiladi, garchi ikkalasi ham nafas zanjirini buzishi mumkin bo‘lsa ham.
MTO1 va GTPBP3 yadro genomida kodlanadi, mitoxondriyadan tashqarida sintezlanib, matriksdagi modifikatsiya apparatiga yo‘naltiriladi. Ularning bakterial gomologlari MnmG/GidA va MnmE U34ni modifikatsiyalashning qarindosh mexanizmini ishlatadi. MTO1 — tRNK bilan ta’sirlashuvchi flavin bilan bog‘langan komponent; GTPBP3 tizimning GTPga bog‘liq ishini ta’minlaydi. Konservativ GTP-bog‘lovchi motivlar, Switch qismlari va Mg²⁺ koordinatsiyasi nukleotid siklini konformatsion o‘zgarishlarga bog‘laydi. Bu asosli funksional model, lekin inson kompleksidagi har bir harakatning aniq ketma-ketligini bakteriyaga o‘xshashlik orqali to‘liq aniqlangan deb bo‘lmaydi.
Rekonstitutsiya, komponentlarni genetik o‘chirish va izotop kuzatuvi τm⁵U biogenezini taurin hamda 5,10-metilentetragidrofolat bilan bog‘laydi. Sxematik reaksiya to‘liq muvozanatlangan katalitik siklni emas, kerakli kirishlarni bildiradi:
Glitsin butunlay istisno qilinadi degan da’vo noto‘g‘ri: Asano va hammualliflar taurin yetishmaydigan hujayralarda taurin fragmenti o‘rnini glitsin egallaydigan cmnm⁵U topishdi. Bunday metabolik moslashuvchanlik barcha sharoitda to‘liq funksional almashtirishni anglatmaydi, ammo mutlaq ajratilgan katalitik cho‘ntak modelini rad etadi.
SHMT2 serinning bir uglerodli fragmentini tetragidrofolatga o‘tkazadi; kofermenti — PLP. Reaksiya qaytar:
Mitoxondrial MTHFD2/MTHFD2L folatning bir uglerodli shakllari almashinuvi va redoks jarayonlarida qatnashadi. Umumiy tarmoqqa tegishlilik MTHFD2L ko‘prikni MTO1 faol markaziga bevosita «uzatadi» degani emas. Modifikatsiya uchun qondagi umumiy foliy kislota emas, kerakli folat hosilasining mavjudligi muhim.
Shuning uchun taurin yetishmovchiligi, bir uglerodli oqim buzilishi va tRNK nuqsoni turli yo‘llar bilan bitta kimyoviy natijaga tutashishi mumkin. Qo‘shimcha metilfolat, B12 yoki betain ularning birortasini tuzatishga kafolat bermaydi. Fermentning kofermentga biokimyoviy ehtiyojini nutrisevtik kombinatsiyaning isbotlangan samaradorligiga ko‘chirish ayniqsa noto‘g‘ri.
TRMU kodlaydigan MTU1 Lys, Glu va Gln tRNKlaridagi U34ning 2-tiollanishini katalizlaydi. Shu sinf reaksiyalarida ATF kislorodni oltingugurt bilan almashtirish uchun joyni faollashtiradi; sistein va mitoxondrial sisteindesulfuraza NFS1 oltingugurt ta’minotiga bog‘liq. NFS1 temir-oltingugurt klasterlari biogenezida ham qatnashadi, shu sabab oltingugurt metabolizmi buzilishi organellada bir nechta oqibatga ega bo‘lishi mumkin.
Manbalar umumiyligi ISCUni insonda isbotlangan zanjirda TRMUga oltingugurtni bevosita uzatuvchi majburiy oraliq tashuvchi qilmaydi. Uzatishning aniq ketma-ketligi alohida tasdiq talab etadi. Tiollanish kamayishi C5-taurinometil o‘rinbosari yo‘qolishiga teng emas: ularni «taurin yetishmovchiligi» nomi ostida birlashtirmay, tahlilda ajratish kerak.
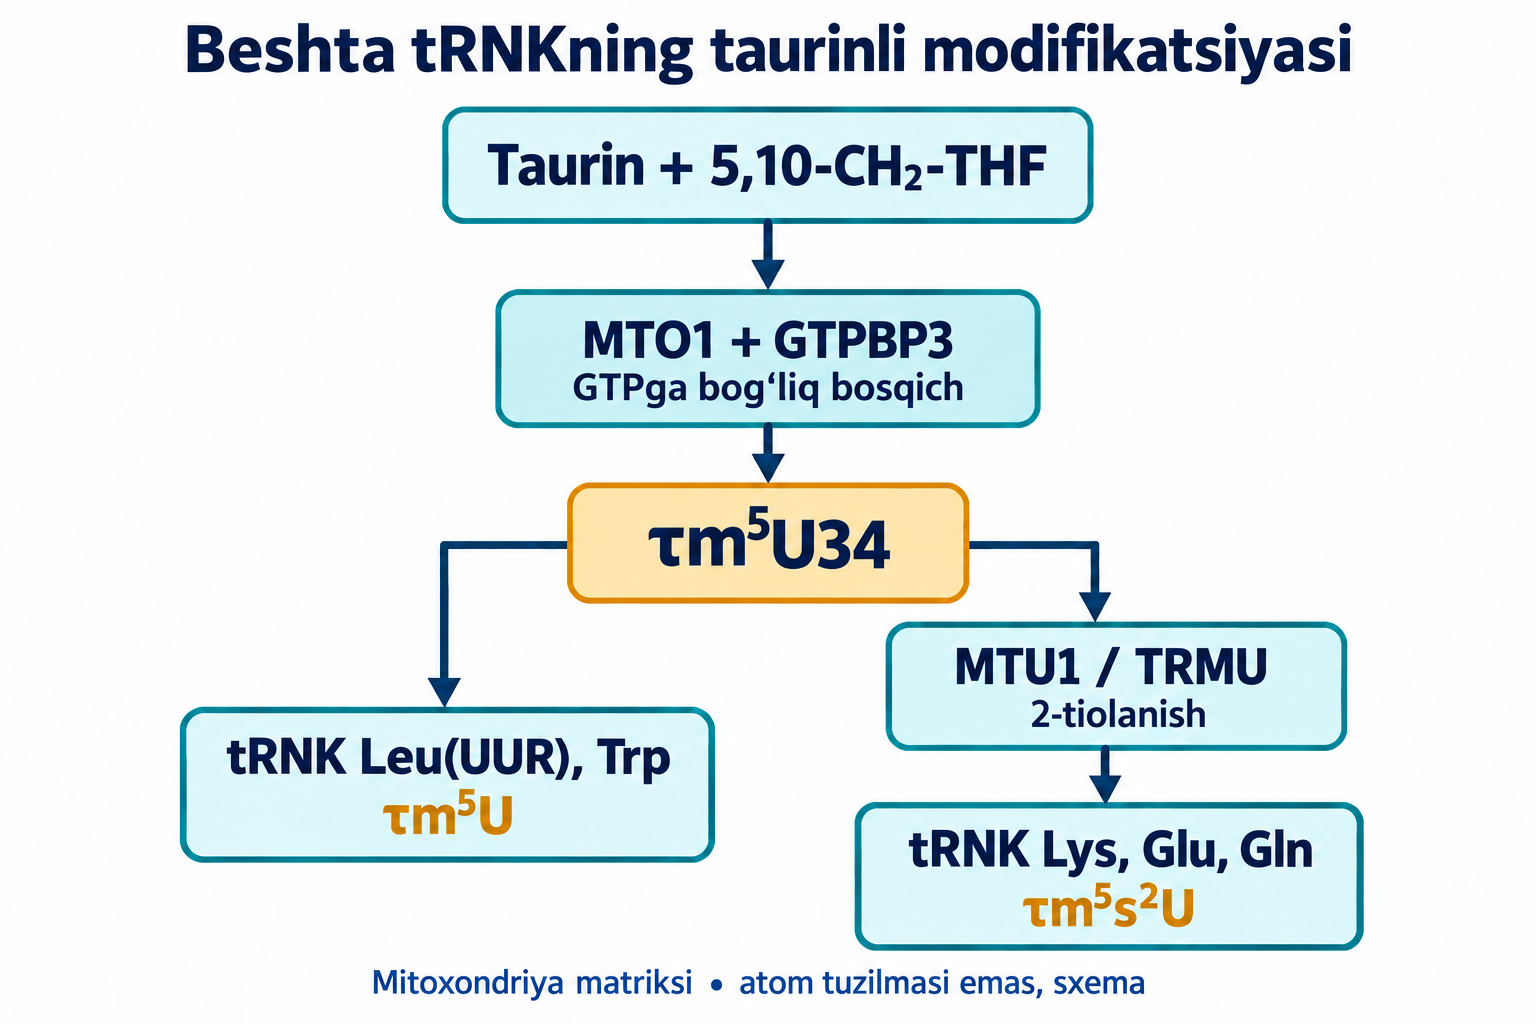
U34 modifikatsiyasining ikki bosqichi. Mahsulotlar va tRNK tarkibi inson uchun keltirilgan; bu kompleksning atom modeli emas, funksional sxema.
| Gen | Asosiy zararlangan bosqich | Ta’riflangan klinik belgilar | Avtomatik chiqarib bo‘lmaydigan xulosa |
|---|---|---|---|
| MTO1 | U34ning C5 modifikatsiyasi | Kardiomiopatiya, laktat atsidozi, nevrologik va mushak buzilishlari | Substrat qo‘shish zararlangan fermentni tiklaydi |
| GTPBP3 | GTPga bog‘liq modifikatsiya | Kardiomiopatiya, ensefalopatiya, laktat atsidozi | Kasallik mexanizm va javob jihatidan MELAS bilan bir xil |
| TRMU | 2-tiollanish | Jumladan chaqaloqlarda o‘tkir jigar yetishmovchiligi | Har bir holat qaytar yoki ayni taurin rejimi bilan davolanadi |
Ghezzi, Kopajtich va Zeharia ta’riflari genetik variantlarni mitoxondrial translyatsiya buzilishiga bog‘laydi. Og‘irlik va yakun variantlar, qoldiq faollik, to‘qima hamda yoshga bog‘liq. TRMU bilan bog‘liq kasalligi bor ayrim bemorlarda maxsus davolash doirasida sistein almashinuvini qo‘llash muhokama qilinadi. Ammo bu tayyor uy protokoli ham, irsiy eshitish pasayishining universal izohi ham emas.
Leu(UUR) antikodoni 5′-UAA-3′, taniladigan kodonlar esa 5′-UUA-3′ va 5′-UUG-3′ deb yoziladi. Antiparallel yo‘nalish tufayli U34 kodonning birinchi Usi bilan emas, oxirgi A yoki Gsi bilan ta’sirlashadi. Kimyoviy modifikatsiya tanish samaradorligini o‘zgartiradigan joy aynan shu.
UUA va UUG tanilishi τm⁵U yo‘qolishiga bir xil sezgir emas. Kirino va hammualliflarning 2004 yilgi o‘zgartirilgan tRNK tajribalari UUGga xos yaqqol dekodlash nuqsonini ko‘rsatadi. Bu dekodlashning bevosita kuzatuvi, butun fenotipni o‘rinbosarning umumiy hajmi yoki zaryadidan chiqarishdan kuchliroq.
Riboza C3′-endo va C2′-endo konformatsiya sohalari o‘rtasida o‘ta oladi; birinchisi A-simon RNKga xos. Kimyoviy o‘rinbosarlar konformatsion moyillik, gidratatsiya va stekingni o‘zgartiradi, 2-tiollanish esa asos xususiyatlarini qo‘shimcha o‘zgartiradi. Ammo sulfonat mavjudligidan har qanday tRNKda C2′-endoga o‘tish mutlaqo taqiqlangan degan xulosa chiqmaydi.
Strukturaviy ma’lumotlar τm⁵U34–G3ning Uotson–Krikka yaqin geometriya hosil qilib, qo‘shni juftlar yonida qulay joylashishini qo‘llaydi. Bu «taurin qattiq qulflagan odatiy U:G jufti» tasviridan aniqroq. Dekodlash butun antikodon halqasi va muhitga bog‘liq; qo‘shni pozitsiyalar modifikatsiyasi ham muayyan tRNKga xos. Shu bois bu halqalarning barchasiga bir xil modifikatsiyalangan A37ni universal belgilab bo‘lmaydi.
Mitoribosomaning kichik subbirligi aminoatsil-tRNK kelganda kodon-antikodon ta’sirlashuvini tekshiradi. Mitoxondrial EF-Tu va uning GTP sikli adapterni yetkazish va tanlashda qatnashadi; samarali joylashish polipeptid sintezini davom ettiradi. Modifikatsiya tanish samaradorligi, tanlanish ehtimoli va siljish tezligiga ta’sir qilishi mumkin, ammo reaksiyani xatosiz qilmaydi.
Mos adapter yomon ishlatilsa, elongatsiya kechikishi, to‘liq mahsulot chiqimi kamayishi va sifat nazorati ishga tushishi mumkin. Har bir kechikish kolliziya yoki o‘qish ramkasi siljishiga olib kelmaydi. Bu yerda tasdiqlanmagan millisekund tezliklar va Kdning universal 10–15 baravar pasayishi ishlatilmaydi. mtRF1a avvalo terminatsiya omili; bevosita tajribasiz unga har bir modifikatsiyalanmagan UUGda zanjirni majburiy tushirish vazifasini yuklash noto‘g‘ri.
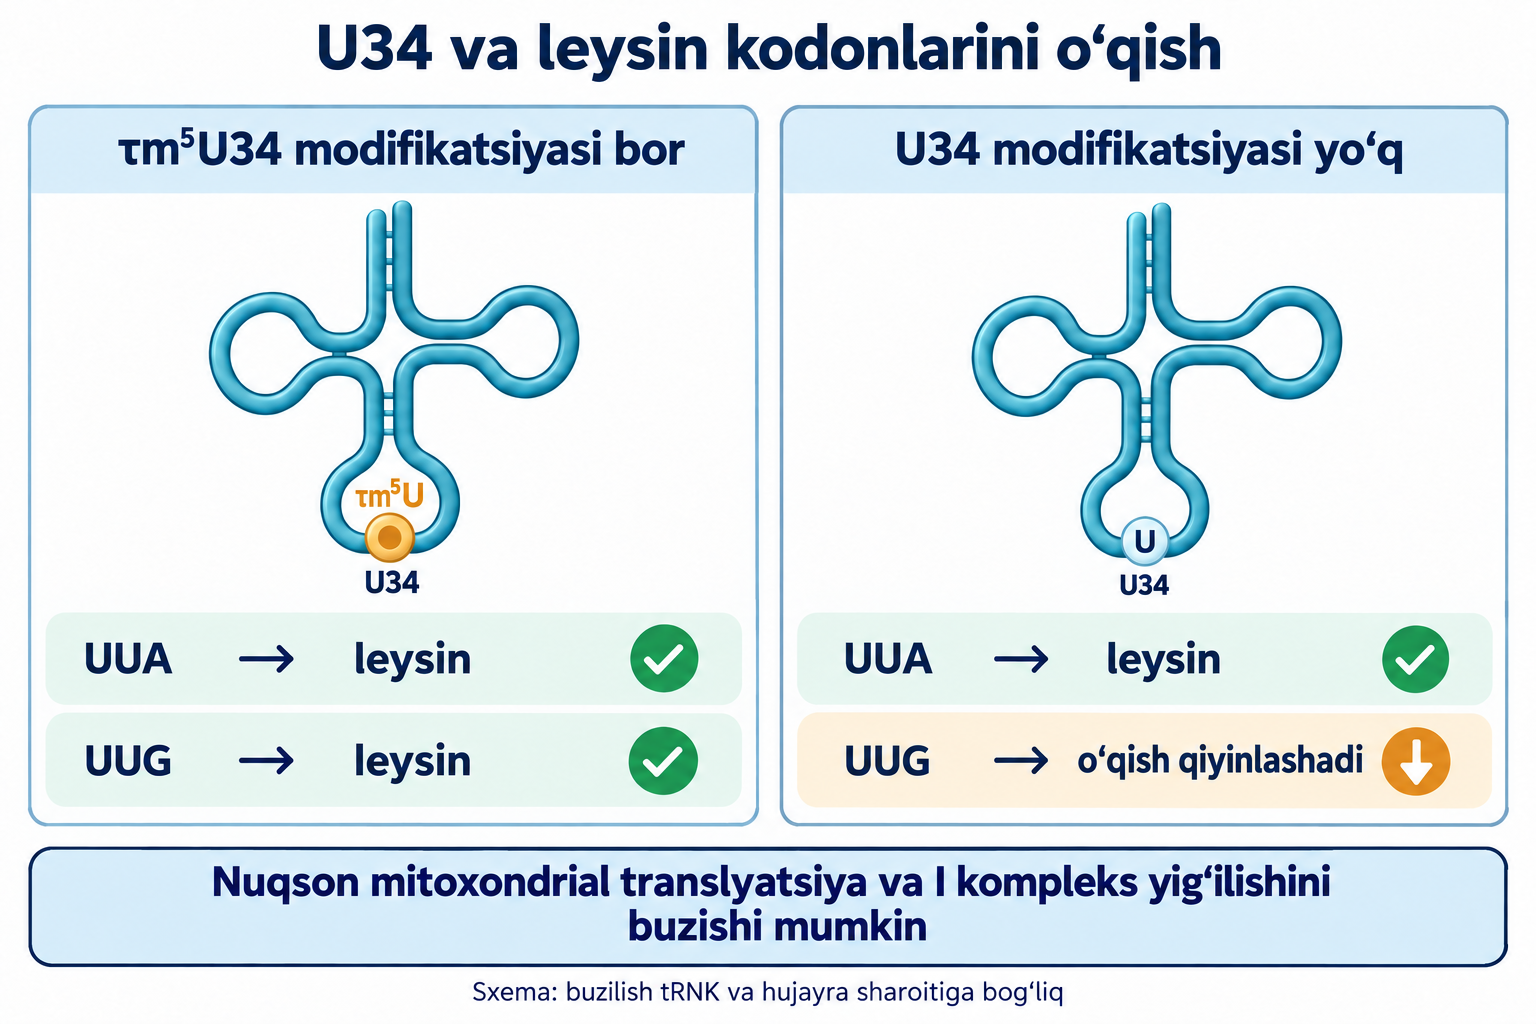
Taqqoslash Leu(UUR) modifikatsiyasining kodonga xos ta’siriga tegishli. Belgilar sifat farqini ko‘rsatadi; ular translyatsiya tezligi yoki klinik ta’sir kattaligini belgilamaydi.
Mitoxondrial DNK oksidlovchi fosforlanishning 13 subbirligini kodlaydi; boshqa komponentlarning aksariyati yadroda kodlanib, import qilinadi. Modifikatsiya nuqsonida turli mahsulotlar zararlanishi mumkin, chunki MTO1/GTPBP3 beshta tRNKga xizmat qiladi, MT-TL1 mutatsiyasi esa bitta adapterni bevosita o‘zgartiradi. Oqsil darajasi parchalanish, yig‘ilish va barqarorlikka ham bog‘liq, shu sabab immunoblot translyatsiya tezligining to‘g‘ridan-to‘g‘ri o‘lchovi emas.
| Kompleks | mtDNA kodlaydigan subbirliklar | Ko‘rilayotgan nuqson bilan aloqa |
|---|---|---|
| I | ND1, ND2, ND3, ND4, ND4L, ND5, ND6 | Sintez yoki yig‘ilish buzilishi funksional kompleks miqdorini kamaytirishi mumkin |
| III | CYTB | Umumiy mitoxondrial translyatsiyaga kiradi; barcha nuqsonda saqlanishi kafolatlanmagan |
| IV | COX1, COX2, COX3 | Qo‘shma nafas yetishmovchiligi bo‘lishi mumkin |
| V | ATP6, ATP8 | Sintez mitoxondrial apparatga bog‘liq, lekin buzilish profili boshqacha |
Leu(UUR) nuqsoni haqidagi ishlarda ND6ning UUG dekodlashga sezgirligi alohida muhokama qilinadi. ND5 ham I kompleks uchun muhim, ammo har qanday taurin yetishmovchiligida uni bir xil birlamchi nishon deb bo‘lmaydi. UUGning mutlaq miqdori va foizini taqqoslash uchun belgilangan referens ketma-ketlik bo‘yicha qayta bajariladigan sanash zarur; busiz aniq qiymatlar o‘lchangan ma’lumot sifatida berilmasligi kerak. Kodon tarkibi masalasi saqlanadi: sezgir kodonlar soni va joylashuvi oqsil chiqimiga ta’sir qilishi mumkin, lekin bu 13 mahsulotni universal tartiblash uchun yetmaydi.
I kompleks NADH oksidlanishi va ubixinon qaytarilishini protonlarning matriksdan membranalararo bo‘shliqqa o‘tishi bilan bog‘laydi. Periferik yelka flavin va temir-oltingugurt markazlarini, membrana yelkasi esa mtDNA kodlaydigan subbirliklarni tutadi. Odatiy funksional yozuvda bir elektron juftiga to‘rtta proton tashiladi, ammo umumiy mexanizm yagona «ND6 nasosi»ni emas, bir nechta joyni bog‘laydi.
ND5 — membrana yelkasi bilan tutashadigan uzun lateral strukturaviy elementi bor distal antiporterga o‘xshash subbirlik. ND6 proksimal joyga yaqinroq bo‘lib, kompleksning konformatsion tashkilida qatnashadi. Q qaytariladigan joyni bir nechta subbirlik hosil qiladi; ND6ni ubixinonga elektron uzatilishining yagona joyi deb ta’riflab bo‘lmaydi. Fiedorczuk, Zhu va Kampjut strukturaviy ishlari redoks reaksiyaning proton yo‘llari bilan murakkab bog‘lanishini ko‘rsatadi, bir turdagi mexanik to‘lqin esa yakuniy isbotlangan emas.
Yig‘ilish modullar bo‘yicha kechadi va yadro hamda mitoxondrial mahsulotlar moslashuvini talab qiladi. Bitta muhim komponent yo‘qolishi boshqalarni beqarorlashtirib, oraliq yig‘ilmalarni parchalashi mumkin. Shuning uchun funksional nuqson jarayonni boshlagan dastlabki kodon buzilishidan kengroq bo‘lishi mumkin.
Mustaqil zaif joylarning ideal misolida mahsulot tugallanish ehtimoli quyidagicha yoziladi:
Barcha joylardan muvaffaqiyatli o‘tish ehtimoli bir xil bo‘lsa, olinadi. Bu ND5ning o‘lchangan kinetikasi emas, yo‘qotishlar to‘planishini tasvirlaydi. Haqiqiy ribosomalar dekodlashni qayta urinishi mumkin; kechikish doim qaytmas to‘xtash emas. Qo‘shni kodonlar, tRNK miqdori va sifat nazorati ham mustaqillik taxminini buzadi. Shu sabab ixtiyoriy p va N bemor nafas zanjirining «qulash foizi»ni hisoblash uchun ishlatilmaydi.
I kompleks quvvati pasayishi NADH oksidlanishini cheklab, NADH/NAD⁺ nisbatini va uglerod almashinuvi moslashuvini o‘zgartirishi mumkin. Laktat NAD⁺ regeneratsiyasi va to‘qima yukini ham o‘z ichiga olgan bir nechta jarayonni aks ettiradi; u U34 modifikatsiyasining spetsifik indikatori emas. State 3 — ajratilgan mitoxondriyalarning ADP bilan rag‘batlantirilgan nafasining tajriba rejimi, hujayraning doimiy holati emas.
Markazlar qaytarilganligi, membrana potensiali va substratlar muayyan tarzda uyg‘unlashganda elektronlarning kislorodga sizishi oshishi mumkin. Soddalashtirilgan reaksiyalar kimyo yo‘nalishini ko‘rsatadi:
Dismutatsiyaning o‘zi zararlanishga teng emas: H₂O₂ chiqarilishi, mavjud temir va joylashuv muhim. I kompleks buzilishi har bir ROS ko‘rsatkichini doim oshirmaydi; substrat rejimlari va kompensatsiyalar turlicha bo‘lishi mumkin. Taurinni superoksidni bevosita yutuvchi universal modda sifatida ko‘rsatish kerak emas. Translyatsiya va nafas saqlanishi oksidlovchi yuk manbai kamayishi bilan sharoitga bog‘liq aloqada bo‘lishi asosliroq. Kardiolipin va mtDNA zararlanishi mumkin, ammo mPTP va apoptozdagi tashqi membrana o‘tkazuvchanligi alohida hodisalardir.
MELASning tez-tez uchraydigan sababi Leu(UUR)ni kodlaydigan MT-TL1dagi geteroplazmik m.3243A>G variantidir. U antikodondan tashqarida joylashgan, ammo tRNK tuzilishi va qayta ishlanishini, miqdori va modifikatsiyasini o‘zgartirishi mumkin. Mutant mtDNAning to‘qimalar orasida taqsimlanishi va qoldiq funksiya fenotip o‘zgaruvchanligining bir qismini tushuntiradi. Demak, MELASni yagona o‘rinbosar yo‘qolishiga qisqartirib bo‘lmaydi; m.3243A>G tashuvchilik bitta klinik ssenariyga teng emas.
Mutant tRNKda τm⁵U kamayishi genetik nuqsonni qiyinlashgan UUG dekodlash bilan bog‘laydi. Ko‘p taurin kiritish modifikatsiyani qanchalik oshira olishi substrat mavjudligi va apparat saqlanganligiga bog‘liq. Fermentning to‘liq yo‘qolishi va tRNK modifikatsiyalanish qobiliyatining pasayishi — turli cheklovlar.
MELAS o‘choqlari ko‘pincha yirik arteriya havzasiga mos kelmaydi. Patogenezda neyron energiya yetishmovchiligi, tutqanoq faolligi, mikrotomir o‘zgarishlari, NO boshqaruvi buzilishi va shish muhokama qilinadi. Bu har bir epizod uchun isbotlangan «ROS → spazm → shish» chiziqli zanjiri emas; «insultsimon» atamasi oddiy insultni mustaqil istisno qilishga ruxsat bermaydi.
To‘satdan paydo bo‘lgan nevrologik belgilar shoshilinch klinik baholashni talab qiladi. Takroriy epizodlar profilaktikasi haqidagi ma’lumot taurin xurujni darhol to‘xtatishini, tutqanoqqa qarshi davolashni yoki maxsus yordamning boshqa qismlarini almashtirishini anglatmaydi.
Tezlikning bitta substrat konsentratsiyasiga bog‘liqligi ba’zan to‘yinish bilan tasvirlanadi:
Bu muayyan sharoitdagi Mixaelis–Menten modeli, davolash ta’sirini isbotlaydigan «termodinamik qonun» emas. Kompleks bir nechta komponentdan foydalanadi, tRNK shikastlanishi esa faqat taurin uchun ko‘rinadigan Kmni emas, uning tanilishini o‘zgartirishi mumkin. [S] oshishi tezlikni saqlangan Vmaxdan yuqori ko‘tarmaydi va yo‘q fermentni yaratmaydi.
Tadqiqotlarda periferik leykotsitlardagi tRNK modifikatsiyasi oshishi o‘lchandi. Bu aralashuvning biologik asosini qo‘llaydi, lekin miyada har bir tRNK tiklanganiga, I kompleks barcha subbirliklari normallashganiga yoki geteroplazmiya yo‘qolganiga teng dalil emas.
Ko‘p markazli III faza tadqiqotiga takroriy insultsimon epizodlari bor 10 bemor kiritildi. Ular 52 hafta davomida kuniga 9 yoki 12 g taurin qabul qilishdi. Dizayn ochiq bo‘lib, oldingi davr bilan solishtirildi; randomizatsiyalangan parallel platsebo guruhi yo‘q edi. Dastlabki 8 hafta asosiy natijani baholash davriga kiritilmadi.
| Ko‘rsatkich | Tadqiqotdagi kuzatuv | Xulosa chegarasi |
|---|---|---|
| Baholash davrida epizodlarning to‘liq oldini olish | 60%; 95% IO 26,2–87,8% | 10 tadan 6, 10 tadan 10 emas |
| Chastotaning kamida yarmiga kamayishi | 80%; 95% IO 44,4–97,5% | Bemorlar javobi bir xil emas |
| Epizodlarning o‘rtacha yillik chastotasi | Davolashdan oldin 2,22, davolashda 0,72 | Guruh ichki solishtiruvi og‘ishlarga moyil |
| Leykotsitlarda Leu(UUR) modifikatsiyasi | Besh bemorda ahamiyatli oshish | Periferik mexanistik yakuniy nuqta |
| Xavfsizlik | Tauringa bog‘liq og‘ir noxush hodisa kuzatilmadi | Kichik hajm kamyob va uzoq muddatli xavfni istisno qilmaydi |
Bu muayyan kamyob kasallik uchun istiqbolli klinik signal; «III faza» nomi kichik ochiq tajribani katta randomizatsiyalangan sinovga aylantirmaydi. Avval uzoq kuzatilgan ikki bemor ham umumiy kafolat bermaydi. Yaponiyada 2019 yilda 98% taurin dori kukuni ko‘rsatmasi MELASdagi insultsimon epizodlarni bostirish uchun kengaytirildi. Bu aniq regulyator qaror, har qanday qo‘shimchaning mitoxondrial disfunksiya, MTO1/GTPBP3 mutatsiyalari yoki qarish profilaktikasi uchun butunjahon tasdig‘i emas.
Science jurnalidagi 2023 yilgi ish o‘rganilgan populyatsiyalarda qondagi taurin yosh bilan kamayganini va hayvonlarga taurin qo‘shilganda bir qator yoshga bog‘liq ko‘rsatkichlar yaxshilanganini xabar qildi. Sichqonlar 14 oylikdan kuniga 1000 mg/kg olgan; median umr davomiyligi taxminan 10–12% oshgan. Alohida tajribalarda suyak, mushak funksiyasi, glyukoza almashinuvi, xulq va immun ko‘rsatkichlar baholangan. Primatlarda tabiiy o‘limgacha umr uzayishi emas, sog‘liq ko‘rsatkichlari o‘rganilgan.
Sichqon yoshini insonning aniq yoshi bilan taqqoslash shartli. Mg/kg dozasini katta yoshli bemorga to‘g‘ridan-to‘g‘ri ko‘chirish mumkin emas; makakalardagi marker o‘zgarishi insondagi klinik yakunlar sinovini almashtirmaydi. Ishning inson qismida kasallik bilan assotsiatsiyalar va mashqdan keyingi taurin oshishi qo‘shimcha inson umrini uzaytirishini isbotlamaydi.
Fernandez va hammualliflar Science jurnalida 2025 yilda geografik jihatdan turli uch inson kohortasining bo‘ylama va kesim ma’lumotlarini, primatlar hamda sichqonlarni tekshirishdi. Qondagi taurin yosh bilan barqaror qoldi yoki oshdi; harakat va energiya ko‘rsatkichlari bilan aloqalar o‘zgaruvchan edi. Bu natijalar qondagi universal yoshga bog‘liq kamayishni takrorlamaydi va bitta zardob qiymatini «taurin biologik soati» sifatida qo‘llashga zid.
Kelishmovchilik taurinning tRNKdagi kimyoviy ishtirokini yoki sichqonga qo‘shimcha berilgan aniq tajriba natijasini bekor qilmaydi. U ikki gipotezani ajratadi: aralashuvning mumkin bo‘lgan ta’siri va boshlang‘ich konsentratsiyaning universal marker sifatidagi yaroqliligi. Ratsion, buyrak almashinuvi, jismoniy faollik, jins, to‘qima qabul qilishi va namuna olish usuli konsentratsiyani o‘zgartiradi. Bu ma’lumot barcha odamda CDO/CSAD yosh bilan pasayadi yoki 45 yoshdan keyin kurs zarur degan xulosani bermaydi.
Tajribalarda senessensiya, yallig‘lanish, DNK shikasti, proteostaz, autofagiya va mitoxondrial funksiya markerlari o‘zgarishi muhokama qilindi. Bu tizimlar o‘zaro ta’sirlashadi: kamroq shikastlanish qarigan hujayralarni bevosita yo‘qotish degani emas, LC3 o‘zgarishi esa yakunlangan mitofagiya oqimi kuchayganini o‘zi isbotlamaydi. Aniq TFEB → PINK1/Parkin zanjiri va bostirilgan sitokinlarning to‘liq ro‘yxatini barcha to‘qimalar uchun universal mexanizm deb bo‘lmaydi.
tRNKning taurinli modifikatsiyasi ehtimoliy bog‘lovchi mexanizmlardan biri, ammo umr o‘zgarishining yagona sababi aniqlanmagan. Buni senessensiya va fisetin tadqiqoti bilan solishtirish foydali: qarish markerlarining kamayishi, SASP o‘zgarishi va senessent hujayralarning isbotlangan tanlab yo‘q qilinishi turli tajribalar talab etadi. Hayvonda p16 yoki yallig‘lanish ko‘rsatkichi pasaygani taurinni klinik isbotlangan senolitikka aylantirmaydi.
Ghandforoush-Sattari va hammualliflarning kichik tadqiqotida sakkiz sog‘lom erkak bir marta 4 g taurin oldi. Plazma cho‘qqisi taxminan 1,5 soatda kuzatildi; ko‘rinadigan plazma yarim chiqarilish davri taxminan bir soat edi. Bu bir martalik doza tadqiqoti, universal 70–90% mutlaq biokiraolish, 7–14 kunlik to‘qima yarim davri yoki bolalar va buyrak yetishmovchiligi bor bemorlarda bir xil kinetika isboti emas.
So‘rilish va taqsimlanishga to‘yinadigan transport jarayonlari kiradi; ichakda TauT va proton bilan bog‘langan PAT1 muhokama qilinadi. Buyraklar taurinni filtrlaydi va qayta so‘rilishini moslashtiradi, shu bois chiqarilish kirim hamda organizm holatiga qarab o‘zgaradi. Moddaning buyrakda saqlanishi har qanday doza va a’zo funksiyasi buzilishida to‘planishdan kafolatli himoya bermaydi. Keltirilgan tadqiqotlardan bitta aniq plazma «toksiklik chegarasi» kelib chiqmaydi.
Ta’sirni o‘rganish uchun preparat shakli, haqiqiy doza, qon olish vaqti va o‘lchanadigan kompartment muhim. Plazma, erkin to‘qima taurini va RNKdagi τm⁵U ulushi alohida yakuniy nuqtalardir. Takroriy qabul ekspozitsiyani o‘zgartirishi mumkin, lekin uning barqarorligi va funksional javobi qisqa plazma cho‘qqisidan chiqarilmasdan o‘lchanishi kerak.
| Kontekst | Asosli muhokama qilish mumkin bo‘lgan masala | Aniqlanmagan narsa |
|---|---|---|
| Sog‘lom katta yoshli, ovqatlanish, sport, yosh | Ratsion, aniq maqsad, mavjud tadqiqot va ko‘tara olish | Yosh yoki ratsionga qarab majburiy geroprotektiv rejim |
| Kardiometabolik kasallik | Tashxis va standart davolash doirasida qo‘shimcha aralashuv | Yurak yetishmovchiligi, diabet va steatogepatit uchun yagona protokol |
| MELAS | O‘rganilgan/tasdiqlangan kontekstda dori taurinni maxsus qo‘llash | 9–12 g/kunni har qanday charchoq, laktat atsidozi yoki genetik nuqsonga ko‘chirish |
Yurak-qon tomir va metabolik maqsadlar bo‘yicha tadqiqotlar bor, biroq mexanistik maqola har bir ko‘rsatma bo‘yicha klinik natijalarni alohida baholash o‘rnini bosmaydi. MELAS dozasi tadqiqot tavsifi, mustaqil tavsiya emas. Ferment nuqsonida substratni oshirish qoldiq modifikatsiyalanish imkoniyati bor mutant tRNK holatidan boshqacha ta’sir qilishi mumkin. Ayniqsa shifokor buyurmasdan kattalar dozasini bolalarga ko‘chirish mumkin emas.
Mg²⁺ ko‘p nukleotidga bog‘liq reaksiyaga zarur, lekin biokimyoviy moslik magniy tauratining ustunligini yoki shu tuz kalsiy gomeostazini tiklashini isbotlamaydi. Elementar magniy miqdori bilan taurin komponentini farqlash kerak. Aniqlangan yetishmovchilikni tuzatish va yetishmovchiliksiz odamga kombinatsiya berish alohida savollardir.
Ubixinon nafas zanjirida, jumladan II kompleksdan elektron qabul qiladi. Ammo qo‘shimcha ubixinol I kompleksning har qanday nuqsonini chetlab o‘tish yoki yetarli ATF sintezini kafolatlamaydi: yetkazilish, Q zaxirasining redoks holati va keyingi komplekslar saqlanishi natijani cheklaydi. Ubixinol va ubixinon tahlili elektron tashuvchining rolini qo‘shimcha shaklining klinik ta’siridan ajratishga yordam beradi.
Karnitin yo‘li CPT1, karnitin-atsilkarnitin tashuvchisi va CPT2ni o‘z ichiga olib, yog‘ kislotalari oksidlanishi uchun atsil guruhlarni tashiydi. U U34 modifikatsiyasini avtomatik tiklamaydi. Metilfolat, B12, betain va sistein prekursorlari turli metabolik tarmoqlarga tegishli; taurin bilan ehtimoliy biokimyoviy kesishish ko‘p komponentli mahsulot sinergiyasini isbotlamaydi. «Mitoxondrial kokteyl» formulalari o‘z qiyosiy ma’lumotlarini talab qiladi.
Ko‘p tadqiqotlarda taurin qoniqarli ko‘tarilgan, lekin «umr bo‘yi mutlaqo xavfsiz» xulosasi mumkin emas. EFSAning 2009 yilgi bahosi energetik ichimlik komponentlari ekspozitsiyasi va eksperimental toksikologik ma’lumotlarga tegishli, hammaga umr bo‘yi kuniga 3 g klinik ruxsat emas. Muayyan tajriba NOAELini universal inson dozasiga aylantirib bo‘lmaydi; health claims hujjati ham FDAning shunday ruxsati emas.
Kichik MELAS tadqiqotida bog‘liq og‘ir noxush hodisalar aniqlanmadi, lekin hajm va muddat kamyob xavflarni istisno qilmaydi. Oshqozon-ichak shikoyatlari bo‘lishi mumkin; ovqat ko‘tara olishni o‘zgartiradi, ammo barcha alomat yo‘qolishini kafolatlamaydi. Buyrak kasalligi, homiladorlik, bolalik va dorilar bilan birga qo‘llashda ma’lumotning mosligi alohida baholanadi. Kofein va boshqa komponentli energetik ichimlik dori tauringa teng emas.
Maxsus davolashda klinik epizodlar, tutqanoq nazorati va ko‘tara olish kuzatiladi; ko‘rsatmaga qarab buyrak funksiyasi, jigar ko‘rsatkichlari, elektrolitlar va metabolik markerlar baholanadi. Laktat, piruvat va plazma taurini namuna olish sharoiti hamda kasallikni hisobga olib talqin qilinadi. Mitoxondrial tRNK tiklanishini tasdiqlaydigan yoki har qanday yuqori dozani xavfsiz qiladigan universal laborator to‘plam yo‘q.
«Metabolit → modifikatsiyalangan asos → dekodlash → nafas zanjiri» aloqasi bir nechta mustaqil darajada aniqlangan. Eng kuchli klinik tarix MELASning muayyan mexanizmi va Yaponiyadagi aniq dori ko‘rsatmasiga tegishli. Inson umrini uzaytirish, qo‘shimcha bilan I kompleksni hammada tuzatish yoki bir nechta nutriyentning kafolatli sinergiyasi dalillari bu molekulyar bazadan ancha zaif.
Tadqiqot yo‘nalishlari taurinni matriksga yetkazish yo‘lini aniqlash va boshqarish, mavjud hamda zararlangan to‘qimalarda modifikatsiyani o‘lchash, fermentlarning qoldiq faolligi va genotiplar farqini aniqlashni qamraydi. MTO1/GTPBP3 yoki transportni o‘zgartirish tayyor davolash emas, eksperimental nishondir. Yangi aralashuvlar uchun klinik natija, nazorat guruhi va xavfsizlik bahosi kerak; konsentratsiya oshishi yoki chiroyli strukturaviy modelning o‘zi yetmaydi.
Bu taqdim etilgan maqolaning adabiy bazasi asosidagi narrativ sharh bo‘lib, muhim ziddiyatlar 2026 yil 8 oktabrda maqsadli tekshirildi. tRNKlar orasida modifikatsiyalar taqsimoti, C5 fragmenti manbai va glitsinning muqobil ishlatilishi, FMO1, MELAS tadqiqoti natijalari va dizayni, Yaponiyadagi ko‘rsatma, farmakokinetik cheklovlar va yosh dinamikasiga zid 2025 yilgi ma’lumotlar tekshirildi. To‘liq tizimli qidiruv, meta-tahlil, formal GRADE baholashi yoki tashqi taqriz o‘tkazilmadi. Asossiz aniq transport, strukturaviy va kodon sonlari aniqlangan fakt sifatida berilmaydi; qolgan mexanistik noaniqliklar tegishli bo‘limlarda ko‘rsatilgan. Material biologiya va dalil sifatini tushuntiradi, ammo shaxsiy davolash protokolini yaratmaydi.
U polipeptidning odatiy qoldig‘i emas. Uning fragmenti muayyan tRNK asoslarini modifikatsiyalab, mitoxondrial oqsil sinteziga ta’sir qiladi.
Inson mitoxondrial Trp tRNKsida τm⁵U bor. 2-tiollangan τm⁵s²U shakli Lys, Glu va Glnga xos.
Yo‘q. Bu muayyan MELAS tadqiqoti dozalari, charchoq, qarish yoki modifikatsiya fermenti nuqsoni uchun universal rejim emas.
Yo‘q. Sichqon natijalari va primat sog‘liq ko‘rsatkichlari inson klinik yakunlari sinovini almashtirmaydi; qondagi universal yosh dinamikasi ham bahsli.
Yo‘q. Plazma, to‘qima va matriks zaxiralari hamda modifikatsiyalangan nukleozidlar ulushi alohida o‘lchovlardir.