Гликирование и гликоксидация — одно и то же?
Гликоксидация включает окислительные превращения, связанные с гликированием. Гликирование шире, а разные AGEs образуются разными путями.

Химия разных AGEs, митохондриальные мишени, модель ROS–PARP–GAPDH, глиоксалазный цикл и клинические ограничения вмешательств.
Митохондриальные белки постоянно сталкиваются с реакционноспособными продуктами обмена. Часть этих молекул образуется из сахаров, часть — при окислении липидов или распаде других субстратов. Если их образование превышает обезвреживание, химическая модификация белков может изменить дыхание, передачу сигналов и качество клеточного протеома. Но «гликирование», «гликоксидация», «дикарбонильный стресс» и «AGEs» обозначают разные, хотя и пересекающиеся процессы. Разграничение особенно важно, когда биохимическую модель пытаются превратить в клинический протокол. [1–4,11]
В воде глюкоза преимущественно находится в циклических формах. Это относится к сумме её аномеров, а не означает, что более 99% молекул составляют именно β-D-глюкопиранозу. У β-аномера крупные заместители пиранозного кольца занимают выгодные экваториальные положения. Вместе с тем мутаротация поддерживает небольшую долю открытой альдегидной формы, карбонильный углерод которой может реагировать с нуклеофильными группами белка.
Даже небольшая доля реакционноспособной формы становится значимой при длительной экспозиции: важны концентрация сахара, доступность аминогрупп, pH, время и обновление белка. Внутриклеточное гликирование не является автоматически «фатальным» процессом. Его последствия определяет баланс образования аддуктов, обезвреживания карбонилов, протеолиза, репарации и синтеза новых белков. Долгоживущие коллаген и кристаллины накапливают модификации иначе, чем быстро обновляющиеся ферменты. [3,4,12]
Гликозилирование — ферментативное присоединение углеводных групп. Оно необходимо для множества функций белков; кроме секреторного пути, существует регулируемая внутриклеточная O-GlcNAc-модификация. Гликирование — неферментативные реакции восстанавливающих сахаров или производных карбонилов с биомолекулами. Гликоксидация — та часть связанных с гликированием превращений, в которой участвует окисление. Поэтому не каждый AGE является продуктом исключительно гликоксидации и не каждой реакции образования AGE необходима одна и та же комбинация кислорода и переходных металлов. [1,2,11]
Гликирование может изменить заряд боковой цепи, структуру активного центра, взаимодействие белков или восприимчивость к протеолизу. Однако наличие аддукта само по себе не доказывает потерю функции: нужны сведения о его позиции, заполненности участка и функциональном эффекте. Сшивание двух цепей — отдельный результат определённых реакций, а не универсальное свойство всех AGEs.
Открытая альдегидная форма сахара взаимодействует с доступной первичной аминогруппой, например ε-аминогруппой лизина или N-концевой аминогруппой. Сначала возникает карбиноламин, затем обратимое основание Шиффа. Обобщённая схема показывает химическую логику, а не все состояния глюкозы в растворе:
Для альдоз последующая перегруппировка ведёт к продукту Амадори — кетоамину; для кетоз соответствующий путь называют перегруппировкой Хейнса. Скорость зависит от микросреды и доли непротонированных аминогрупп. Нельзя приписывать всем лизинам один сниженный pKa или всем белкам одну константу гликирования. Гуанидиновая группа аргинина особенно важна в реакциях с дикарбонилами, но её химия не сводится к этой схеме первичной аминогруппы. [3,11,12]
HbA1c — пример раннего продукта гликирования: модифицируется N-концевой валин β-цепи гемоглобина. HbA1c не является «конечным AGE». Его временной профиль связан с эритроцитарной популяцией; гликированные сывороточные белки отражают более короткую экспозицию. Различие ранних продуктов и AGEs необходимо и для лабораторной интерпретации, и для выбора химической мишени вмешательства.
Автоокисление сахара, традиционно обсуждаемое в связи с путём Вольффа, и окислительное разрушение ранних продуктов гликирования могут давать реакционноспособные карбонилы. Существуют также пути фрагментации ранних промежуточных соединений, обсуждаемые в химии Майяра как механизм Намики. Эти названия не позволяют считать каждую стадию одним и тем же окислительным расщеплением продукта Амадори. Общий результат — несколько конкурирующих путей, чья доля меняется с условиями. [3,11]
Редокс-активное железо может усиливать окислительную химию; один из её элементов — реакция Фентона:
Но CML образуется не только из глюкозы: глиоксаль и продукты липидного окисления тоже могут приводить к карбоксиметилированию лизина. Поэтому CML в ткани не является специфическим доказательством одного источника сахара или одной последовательности реакций.
| Соединение | Основная химическая особенность | Что важно для интерпретации |
|---|---|---|
| CML, Nε-карбоксиметиллизин | Лизиновый моноаддукт | Не является сшивкой; имеет несколько путей образования |
| CEL, Nε-карбоксиэтиллизин | Лизиновый аддукт, связанный с MGO | Не равен MG-H1 и не представляет все MGO-модификации |
| MG-H1 | Метилглиоксаль-производный гидроимидазолон аргинина | Меняет свойства гуанидиновой группы; положение аддукта определяет эффект |
| Пентозидин | Флуоресцентная сшивка лизина и аргинина | Флуоресценция не измеряет суммарное содержание всех AGEs |
| Глюкозепан | Нефлуоресцентная лизин-аргининовая сшивка | Важен для долгоживущего человеческого коллагена; не требует того же пути, что пентозидин |
| Пирралин | Лизиновый продукт, связанный с 3-дезоксиглюкозоном | Отдельный класс моноаддуктов |
| Аргпиримидин | Флуоресцентный продукт модификации аргинина MGO | Не взаимозаменяем с гидроимидазолонами |
| MOLD / MODIC | MGO-производные сшивки Lys–Lys / Lys–Arg | Следует отличать от глиоксаль-производных GOLD / GODIC |
Структура пентозидина и присутствие глюкозепана в человеческой дерме установлены химическими исследованиями; MGO-производные аддукты изучались также в хрусталике. Эти результаты показывают неоднородность класса, а не одинаковую токсичность каждого его представителя. Сшивки могут повышать жёсткость матрикса и затруднять обновление, но моноаддукт не следует описывать как универсальный «полимер», блокирующий все каналы и ферменты. [13–15]
Метилглиоксаль, MGO, имеет структуру , глиоксаль — . Вместе с 3-дезоксиглюкозоном они относятся к реакционноспособным дикарбонилам. В водной среде MGO существует также в гидратированных состояниях: изображение двух карбонилов не означает, что вся растворённая популяция постоянно имеет только эту форму. [3,4]
Важный источник MGO — побочное превращение глицеральдегид-3-фосфата и дигидроксиацетонфосфата. Эти триозофосфаты образуются после расщепления фруктозо-1,6-бисфосфата альдолазой и взаимопревращаются при участии триозофосфатизомеразы. Их химическое разложение и побочные реакции создают MGO; нет необходимости считать всю его продукцию обязательным выходом одного ферментативного промежуточного соединения. Повышение доступного пула триоз может увеличить нагрузку, но доля гликолитического потока, превращающаяся в MGO, зависит от клетки и условий.
Дикарбонильный стресс означает нарушение баланса образования и удаления дикарбонилов. Это не синоним гипергликемии: меняются также активность глиоксалаз, тиоловый пул, альтернативное восстановление и окисление карбонилов, почечное выведение продуктов и скорость белкового обновления. [3,4,32]
Аминоацетон может окисляться с образованием MGO, в том числе в реакциях семикарбазид-чувствительной аминоксидазы, известной как SSAO/VAP-1 и кодируемой AOC3. Обсуждается и путь от ацетона через ацетол с участием CYP2E1. Эти пути не делают любой кетоз равнозначным клинически значимому карбонильному повреждению: необходимы данные о потоке, концентрациях и тканевой экспозиции.
Путь через треониндегидрогеназу особенно требует осторожности при переносе результатов животных на человека: человеческий TDH является выраженным псевдогеном. Поэтому нельзя автоматически описывать треониндегидрогеназу как основной человеческий источник аминоацетона и MGO. [33]
MGO может модифицировать аргинин с образованием гидроимидазолонов, включая MG-H1; MG-H2 и MG-H3 — другие структурные продукты, а не просто три названия одной таутомерной формы. Образуются и другие аргининовые продукты, включая аргпиримидин. Реакции с лизином дают CEL и определённые сшивки; цистеин способен образовывать обратимые тиогемиацетали. Скорость, выход и устойчивость продуктов различаются. [3,4,15]
Для отдельной бимолекулярной реакции начальную скорость можно условно представить так:
Здесь означает доступную реагирующую группу, а относится к заданным условиям и конкретному продукту. Универсальное утверждение, что MGO всегда реагирует в десятки тысяч раз быстрее глюкозы, скрывает зависимость от нуклеофила, pH и методики. Аналогично свободный MGO в плазме, суммарный MGO в экстракте и локальная экспозиция матрикса — разные величины.
Модификация аргинина может нарушать солевой мост или связывание субстрата. Это объясняет потенциальную чувствительность активных центров, но не доказывает, что каждый обнаруженный MG-H1 расположен на каталитически необходимом аргинине.
Матрикс работающей митохондрии часто более щелочной, чем цитозоль, что влияет на протонирование нуклеофилов. Для простой аминогруппы приближение Хендерсона–Хассельбаха даёт долю непротонированной формы:
Однако локальный pKa белка, доступность участка и состояние органеллы меняются. Высокая плотность белков сама по себе не означает экспоненциального ускорения гликирования: молекулярная скученность может изменять и доступность, и диффузию. Импорт новых белков, протеазы, редокс-защита, динамика сети и митофагия противодействуют накоплению повреждений.
Опыты с изолированными почечными митохондриями показали чувствительность дыхания к добавленному MGO. В другой работе с диабетическими крысами MGO-модификации сопровождались снижением окислительного фосфорилирования, а содержание гидроимидазолонов коррелировало со снижением активности комплекса III. [16,17]
Это важные экспериментальные опоры, но они не устанавливают универсальную клиническую концентрацию повреждения. Протеомная идентификация белка, иммунореактивность аддукта и причинное доказательство изменения конкретного остатка — разные уровни данных. Указанная работа 2005 года не должна цитироваться как доказательство исключительно комплекса I или точного изменения редокс-потенциала его Fe–S-центров.
В комплексе I NADH передаёт восстановительные эквиваленты FMN в NADH-связывающем модуле, связанном с NDUFV1; далее участвуют железосерные центры и убихинон. NDUFS1 — важная часть гидрофильного модуля. Кластер N2 осуществляет одноэлектронный перенос; N1a не следует представлять обязательным звеном единственной линейной цепочки всех кластеров.
Карбонильная модификация может изменить связывание NADH, сборку, стабильность и взаимодействие субъединиц. Однако утверждение, что именно MG-H1 на NDUFV1/NDUFS1 всегда увеличивает в заданное число раз или сдвигает потенциал конкретного центра на фиксированное значение, требует отдельного картирования и функциональной проверки. Эти детали нельзя выводить из общего торможения NADH-зависимого дыхания. [16,17]
Одноэлектронное восстановление кислорода описывается уравнением:
Вероятность такой реакции зависит от состояния редокс-центров и условий; повреждённая митохондрия не обязательно увеличивает продукцию ROS при каждом сочетании субстратов.
Q-цикл комплекса III включает участки Qo и Qi, гемы bL/bH цитохрома b, железосерный белок Риске и цитохром c1. Core-белки UQCRC1 и UQCRC2 помогают поддерживать структуру комплекса. Изменение белковых интерфейсов может повлиять на перенос электрона и вероятность побочных реакций. Но сценарий, в котором AGE на Core1 обязательно «запирает» движение домена Риске на точно измеренную длительность, не установлен названными исследованиями. [17]
Цитохром c взаимодействует с партнёрами дыхательной цепи через поверхность, содержащую положительно заряженные остатки. Карбонильная модификация способна изменять эти контакты. Взаимодействие с кардиолипином и изменение координации гема могут также влиять на пероксидазную активность цитохрома c. Нельзя, однако, считать любой AGE достаточным условием разрыва связи Fe–Met80 и неизбежного запуска апоптоза. Окисление липидов и их восстановление рассмотрены отдельно в статье о GPX4 и липидных пероксидах.
Каталитическая головка F1 ATP-синтазы состоит из α- и β-субъединиц; вращение и связь с Fo обеспечивают сопряжение синтеза ATP с протонным градиентом. «Аргининовый палец» участвует в каталитической организации, а OSCP связывает элементы статора. Их функциональная важность делает нарушение интерфейсов правдоподобной мишенью повреждения, но не доказывает избирательного гликирования конкретного Arg373 или универсального падения активности на 70–80%.
MICOS, включая MIC60, и OPA1 помогают организовывать кристы; TOM/TIM-комплексы, включая TOM40 и TIM23, обеспечивают импорт многих ядерно-кодируемых белков. Повреждение этих систем могло бы нарушать протеостаз и архитектуру мембраны. Для утверждения, что в данной ткани именно MGO-модификация конкретного участка запускает эти изменения, необходимы прямые данные. Структурная роль белка и доказанная карбонильная мишень не являются одним и тем же. [3,4,16,17]
| Узел | Функциональная причина чувствительности | Какое доказательство нужно сверх общей дисфункции |
|---|---|---|
| Комплекс I | Связывание NADH, FMN/Fe–S-перенос, сборка | Картирование аддукта и проверка функции участка |
| Комплекс III | Q-цикл и межсубъединичные контакты | Отличить корреляцию модификации от механизма блокирования |
| Цитохром c | Электростатические интерфейсы и координация гема | Проверить связывание, перенос электрона и пероксидазную активность раздельно |
| ATP-синтаза / OSCP | Катализ, вращение и механическое сопряжение | Установить изменённый участок и его заполненность |
| MICOS / OPA1 / TOM–TIM | Кристы и импорт белков | Отделить прямое гликирование от вторичного ответа на стресс |
В модели гипергликемического повреждения избыток субстрата усиливает восстановление переносчиков и меняет митохондриальную энергетику. Высокий потенциал может затруднять дальнейший перенос электрона, но единого порога в милливольтах, после которого любая ткань начинает «катастрофически» образовывать ROS, нет. Кроме того, отрицательный знак нельзя путать с величиной поляризации. [1,2,8,24]
В эндотелиальной экспериментальной системе увеличение митохондриального супероксида связывалось с повреждением DNA, активацией PARP и подавлением GAPDH. Избыточная экспрессия MnSOD или UCP1 предотвращала ряд этих изменений; вмешательство в PARP проверялось отдельно. Это поддерживает причинную последовательность в изученной модели, не доказывая, что все осложнения диабета всегда начинаются одинаково. [7,8]
PARP1 использует NAD+ для ADP-рибозилирования. При выраженной активации меняются потребление NAD+, ответ на повреждение DNA и функции белков. В работе Du и коллег GAPDH подвергалась poly(ADP-ribosyl)ation; приписывать эту модификацию определённому каталитическому цистеину без картирования нельзя. Падение активности GAPDH повышает доступность вышележащих промежуточных соединений и способствует перераспределению потока. [7]
| Ветвь | Субстрат и механизм | Ограничение интерпретации |
|---|---|---|
| Полиоловый путь | Альдозоредуктаза использует NADPH для восстановления глюкозы до сорбитола; сорбитолдегидрогеназа использует NAD+ | NADPH расходуется непосредственно, GSH — через изменение редокс-баланса, а не как субстрат альдозоредуктазы |
| DAG–PKC | Метаболические изменения могут повышать образование DAG и активировать PKC | Изоформы и эффект зависят от ткани |
| Гексозаминовый путь | Фруктозо-6-фосфат способствует образованию UDP-GlcNAc и регулируемой O-GlcNAc-модификации | Это ферментативная модификация, а не AGE-реакция |
| Дикарбонильная нагрузка | Накопление триозофосфатов увеличивает возможность образования MGO | Важен одновременный ответ обезвреживающих систем |
У эндотелия, подоцитов, клеток сетчатки и нервной ткани различаются транспорт глюкозы и метаболические ограничения. Например, GLUT1 важен для гематоэнцефалического барьера, тогда как у нейронов существенен GLUT3. Формула «все инсулиннезависимые клетки используют один транспортер» стирает это различие.
Повреждение дыхания может затем усиливать метаболический и редокс-стресс, формируя обратную связь. «Метаболическая память» включает долгоживущие модификации матрикса, эпигенетические и воспалительные изменения. Она не означает, что улучшение контроля гликемии бесполезно или что осложнения после него неизбежны. [1,2,24]
RAGE, кодируемый AGER, относится к иммуноглобулиновому суперсемейству. Он содержит внеклеточные домены V, C1 и C2, один трансмембранный сегмент и короткий цитоплазматический хвост. Собственного каталитического киназного домена у него нет. Лигандное связывание зависит от поверхности доменов, заряда и организации рецептора. [9,10,25,31]
К лигандам относятся определённые AGE-модифицированные белки, HMGB1, представители семейства S100 и амилоидные структуры. Но любой свободный AGE-аддукт не становится автоматически равноценным агонистом. Важны структура и плотность модификации белка, агрегирование, условия опыта и контроль примесей. Поэтому измерение общего CML не описывает всю RAGE-сигнальную нагрузку.
Внутриклеточный хвост RAGE взаимодействует с сигнальными партнёрами. DIAPH1/mDia1 связан с передачей сигнала к малым GTPазам; в отдельной системе показано участие фосфорилированного RAGE, TIRAP и MyD88. [34,35]
Дальнейшие ветви включают Rac1, NADPH-оксидазы, MAPK и NF-κB, но не следует представлять их обязательной одинаковой цепью в любой клетке. У NOX2 сборка зависит от регуляторных субъединиц; NOX4 не работает как простой повтор той же схемы Rac1–p47phox. p38, ERK и JNK могут менять воспалительный и стрессовый ответ. Через IKK, изменение IκB и NF-κB регулируются цитокины и молекулы адгезии, включая IL-6, TNF, MCP-1, ICAM-1 и VCAM-1. [9,25,27,31]
Повышение AGER и воспалительных медиаторов может поддерживать обратную связь. Однако рецептор не лишён всякой регуляции, а его действие не ограничивается патологией. Перекрёстное влияние клеточных ROS, митохондриальной функции, кальция и воспаления зависит от ткани, экспозиции и лигандов.
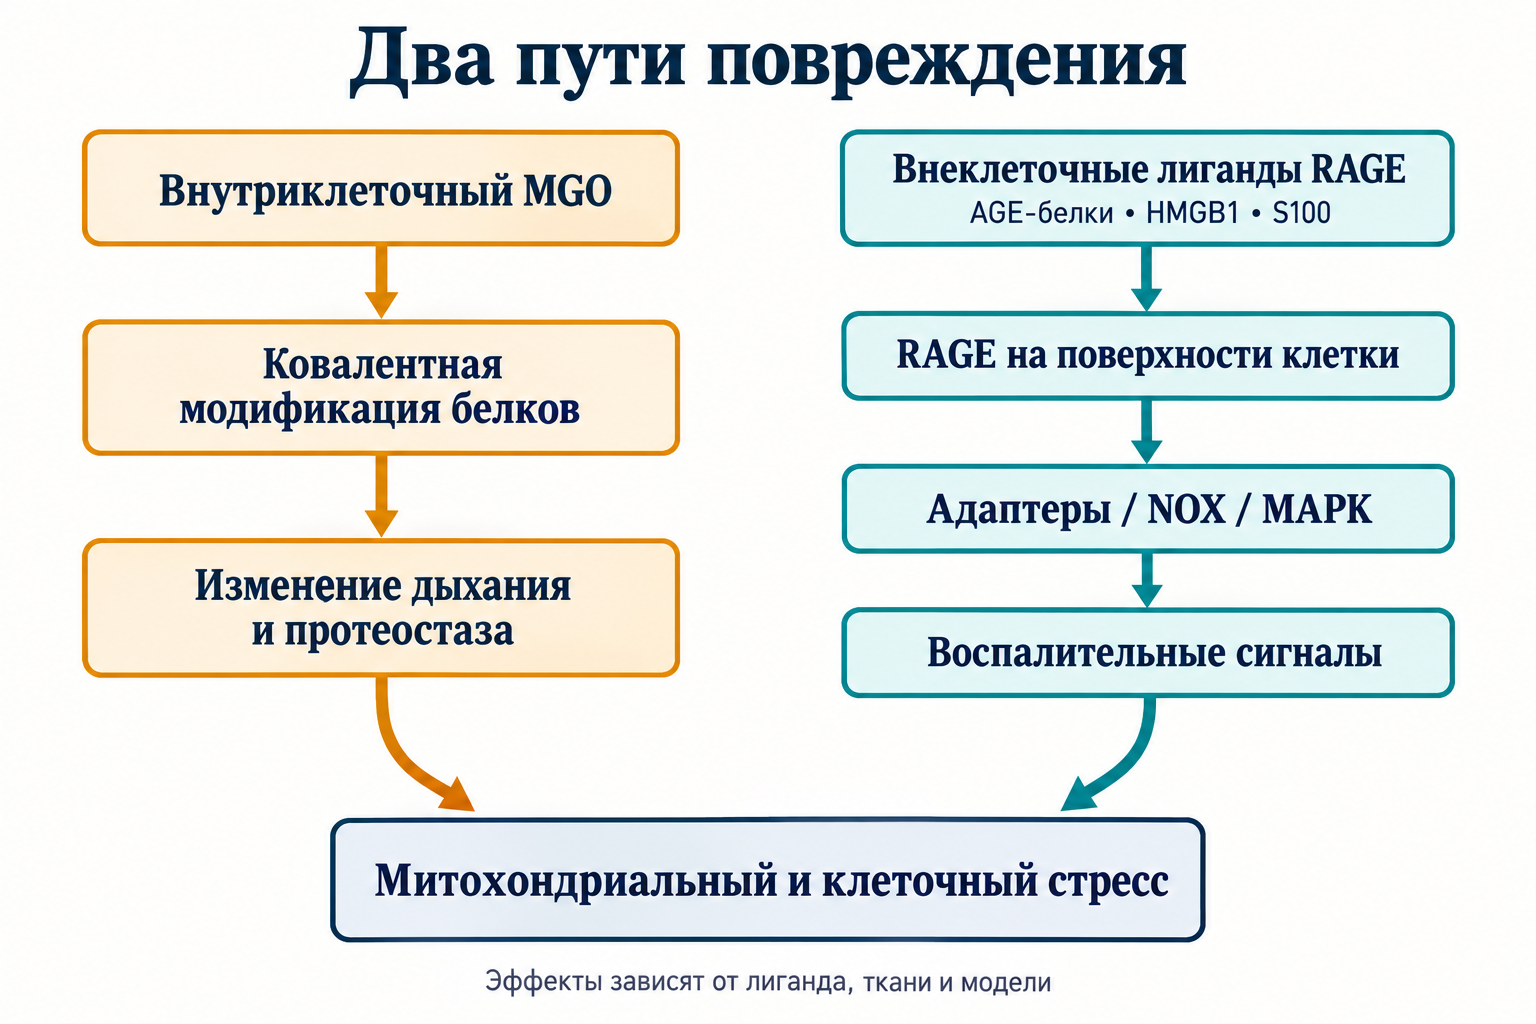
Прямая ковалентная модификация белка и RAGE-зависимая сигнализация — два взаимодействующих, но самостоятельных механизма. Стрелки обозначают возможную последовательность в изучаемых условиях, а не одинаковый исход у каждого человека.
Исследование Kang и коллег выявило митохондриальный RAGE в опухолевой модели и связало HMGB1/RAGE с усилением комплекса I и ATP. Оно не подтверждает универсального порообразующего комплекса RAGE–VDAC–ANT–CypD. [36]
Даже обнаружение рецептора в митохондриальной фракции не устанавливает его точную топологию во всех тканях. В той работе защита от протеазы отличала исследуемую популяцию от простого расположения на наружной мембране; это нельзя превращать в установленную схему импорта через TOM/TIM и интеграции сразу в обе мембраны. Контекст опухолевой биоэнергетики также не равен неизбежному запуску апоптоза или пироптоза при диабете.
RAGE-зависимое воспаление может влиять на митохондрии через сигнальные пути без необходимости постулировать такую универсальную локализацию. Стойкое повышение проницаемости внутренней мембраны рассматривается отдельно в статье о mPTP и циклофилине D; даже там молекулярная идентичность поры требует осторожного описания.
Глутатион вступает в обратимую неферментативную реакцию с MGO, образуя гемитиоацеталь. GLO1 превращает его в S-D-лактойлглутатион, а GLO2 гидролизует этот тиоэфир с образованием D-лактата и возвратом GSH. [3,32]
Суммарно MGO превращается в D-лактат с участием воды; GSH является возвращаемым участником цикла, а не расходуется стехиометрически в его завершённой последовательности. Это не означает, что в живой клетке весь тиоловый пул всегда полностью сохраняется: параллельно идут окисление, конъюгация, синтез и экспорт.
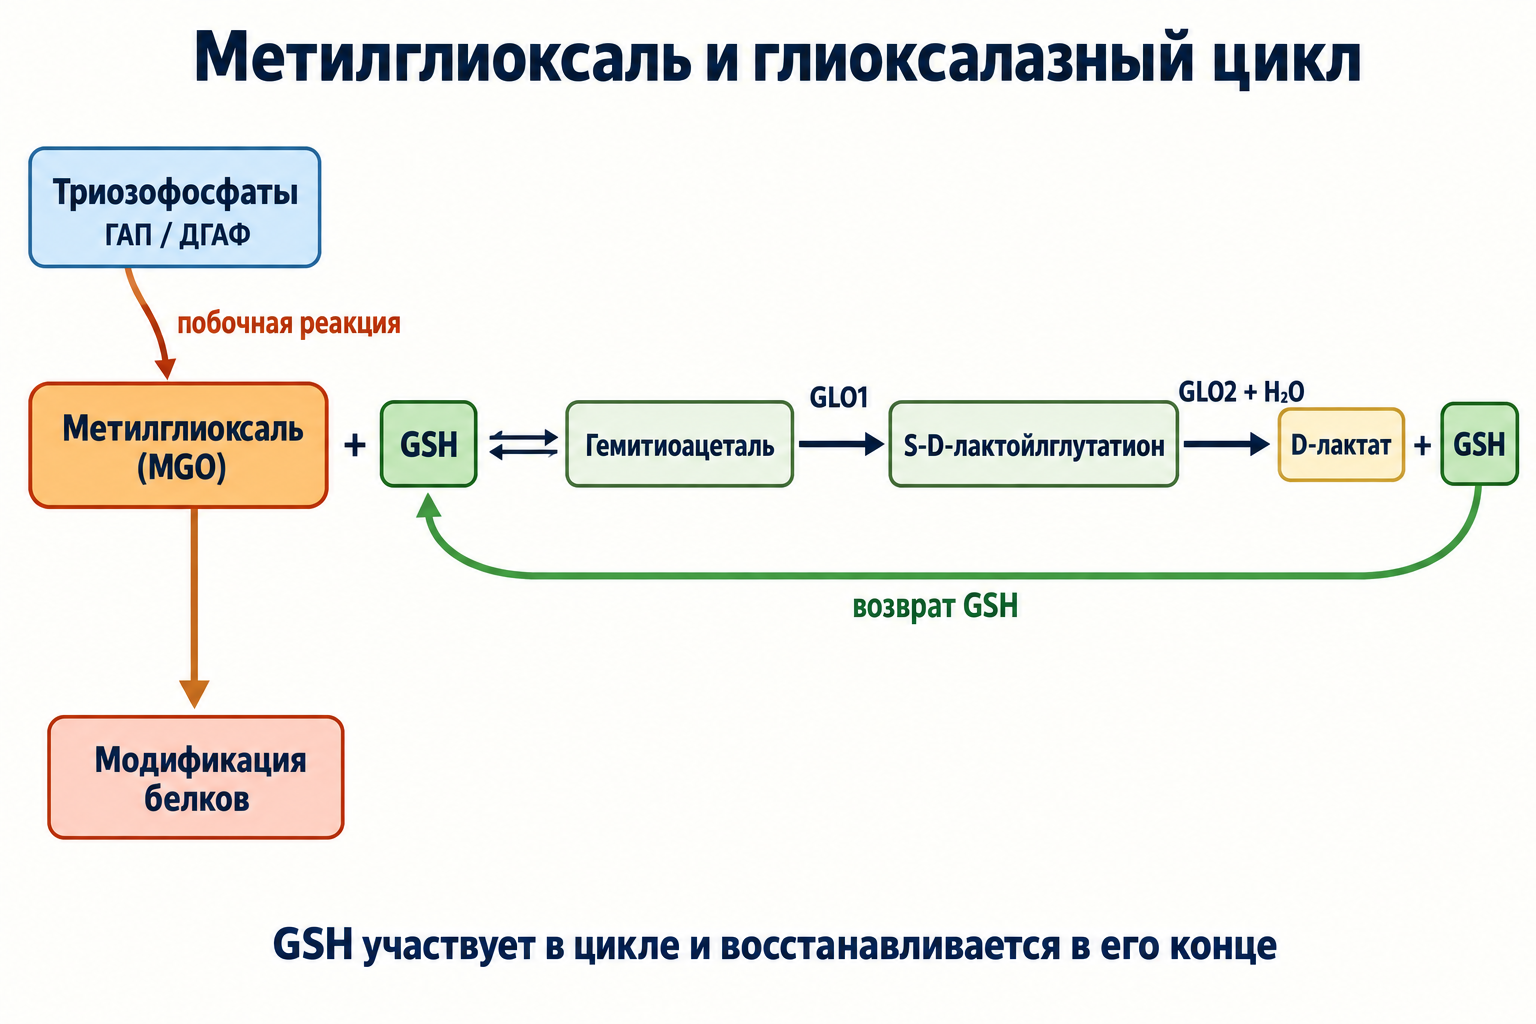
GLO1 действует на гемитиоацеталь, а GLO2 возвращает GSH. Путь образования MGO и путь его удаления показаны раздельно.
Человеческая GLO1 — металлозависимый фермент, обычно обсуждаемый как цинксодержащий димер; координация металла и кислотно-основный катализ обеспечивают перегруппировку субстрата. GLO2/HAGH относится к металлозависимым гидролазам. Нельзя назначать всем препаратам фермента один неизменный состав металлического центра или переносить константы, измеренные с гемитиоацеталем, непосредственно на свободный MGO. [3,32]
Для упрощённого равновесия образования гемитиоацеталя:
Такое описание требует явно определить измеряемые формы MGO и условия. Реальная скорость цикла зависит от доступного GSH, активности двух ферментов и других путей удаления. Значения и зависят от препарата и анализа; из одной пары чисел нельзя вывести универсальную «диффузионно ограниченную» защиту организма.
Падение GSH может уменьшить образование гемитиоацеталя и ухудшить редокс-защиту. Но фиксированная концентрация GSH, после которой все митохондрии испытывают катастрофу, не установлена. Глутатионредуктаза использует NADPH для восстановления GSSG; новый GSH синтезируется последовательным действием глутаматцистеинлигазы и глутатионсинтетазы. NAC может служить источником цистеина, а не прямым активатором последней стадии. D-лактат далее метаболизируется, в частности при участии LDHD, и не должен называться безусловно безвредным при любой концентрации. [3,32]
Nrf2 регулирует антиоксидантные и детоксицирующие программы. Работа Xue и коллег показала Nrf2-зависимый контроль GLO1 через соответствующий регуляторный элемент. [5]
KEAP1 участвует в контроле доступности Nrf2; электрофильные соединения могут менять этот ответ. Однако индукция одного гена не гарантирует одинаковую активность цикла во всех тканях. Возраст, воспаление, эпигенетические изменения и микроРНК могут влиять на экспрессию, но утверждение о едином снижении GLO1 на 40–60% у всех пожилых людей не имеет общего основания. Компенсаторные карбонилредуктазы и другие ферменты также важны для оценки последствий дефицита GLO1.
В диабетической почке рассматриваются повреждение подоцитов, эндотелия и канальцев, изменение матрикса и воспаление. Модификация коллагена IV и ламинина может менять свойства базальной мембраны; сигнальные изменения затрагивают актиновый аппарат и белки подоцита, включая синаптоподин. Но альбуминурию нельзя объяснять исключительно потерей отрицательного заряда или одной AGE-модификацией. Гемодинамика, фильтрационный барьер, мезангиальный ответ и фиброз взаимодействуют. [17,23,28]
Почечная недостаточность также меняет удаление продуктов гликирования. Поэтому повышение их концентрации может отражать одновременно образование и сниженный клиренс; поперечная ассоциация не устанавливает направление причинности. [26,28]
Перициты, эндотелий и нейрональные клетки сетчатки имеют разные функции и чувствительность. Гликирование матрикса и изменение интегринных контактов, воспаление, нарушение барьера и действие VEGF обсуждаются в механизмах ретинопатии. Потеря перицитов, отёк и неоваскуляризация не сводятся к одному событию MGO–RAGE. Экспериментальная профилактика ретинопатии в работе о бенфотиамине не равна доказанной профилактике всех микрососудистых осложнений у человека. [6,24,27]
Полиоловый поток, редокс-баланс, сосудистое питание и метаболизм аксонов могут совместно нарушать функцию нерва. Гликирование нейрофиламентов, тубулина и моторных интерфейсов рассматривается как возможный вклад в аксональный транспорт; функции кинезина, динеина и транспорта нейротрофических сигналов важны, но не каждое их нарушение доказано как прямое следствие картированного AGE-остатка. Утрата чувствительности и боль также имеют разные механизмы. [18,20,24,30]
Сшивки долгоживущего коллагена I/III способны влиять на механические свойства сосудистой стенки. Скорость пульсовой волны характеризует жёсткость, но не является специфическим измерением AGE-нагрузки. На пассивную жёсткость миокарда влияют матрикс, титин, его изоформы и фосфорилирование; нельзя считать любой случай диастолической дисфункции доказанным результатом гликирования титина. [1,12–14]
Модификация ApoB и других компонентов LDL может менять взаимодействия липопротеинов с рецепторами и макрофагами. Эти процессы пересекаются с окислением и воспалением; AGE-LDL не следует описывать как одну химически однородную частицу с одинаковым поведением во всех моделях. [2,25,27]
Карбонильный стресс может влиять на энергетический обмен нейронов; это проверялось в клеточных моделях MGO-экспозиции. Гликирование амилоидных и tau-связанных систем обсуждается вместе с агрегированием и воспалением. Но фиксированное ускорение агрегации Aβ в сто раз или одинаковое блокирование всех механизмов дефосфорилирования tau нельзя переносить на любую ткань. RAGE-зависимый ответ микроглии не доказывает, что AGEs являются единственной причиной болезни Альцгеймера. [25,30,31]
Аминогуанидин, или пимагедин, способен реагировать с дикарбонилами. Однако он имеет и другие химические и фармакологические действия. В ACTION I первичная почечная конечная точка не получила статистически значимого подтверждения пользы. [23]
Это не та же ситуация, что простое утверждение «все исследования были досрочно остановлены». Работа ACTION II в исходной библиографии описывает дизайн и исходные характеристики; она не заменяет публикацию результатов. Возможные побочные действия, иммунологические реакции и взаимодействие с другими путями ограничивают перенос лабораторной эффективности аминогуанидина в практику. [22,23]
Пиридоксамин — одна из форм витамина B6, изучавшаяся как ингибитор карбонильных и окислительных превращений. Последующее рандомизированное исследование Pyridorin не подтвердило улучшения первичной конечной точки во всей исследуемой популяции. [37]
Это принципиально отличается от объяснения отсутствия применения только «регуляторными препятствиями». Благоприятный результат подгруппы или ранней фазы нуждается в независимом подтверждении.
Карнозин, β-аланил-L-гистидин, способен участвовать в реакциях с карбонилами. Но при пероральном применении важны всасывание, тканевая экспозиция и гидролиз сывороточной карнозиназой CNDP1. Ассоциации вариантов CNDP1 с риском осложнений не доказывают, что приём определённого количества карнозина насыщает фермент и предотвращает нефропатию. Химическое улавливание в пробирке не устанавливает дозу эффективной конкуренции с белковыми нуклеофилами в ткани. [19]
Бенфотиамин — предшественник тиамина. После метаболических превращений может повышаться доступность тиаминдифосфата, кофактора транскетолазы. Это кофакторный механизм, а не прямое универсальное аллостерическое «открытие шунта». В неокислительной части пентозофосфатного пути транскетолаза действует вместе с другими ферментами, включая трансальдолазу. Для суммарного перераспределения углерода корректна схема:
В обе стороны сохраняются 15 атомов углерода; прямую реакцию «F6P + GAP → рибозо-5-фосфат + седогептулозо-7-фосфат» нельзя использовать как сбалансированную двухсубстратную схему. Направление потока определяется клеточным состоянием, а не самим наличием добавки.
Hammes и коллеги показали защиту в экспериментальной ретинопатии. Человеческие исследования BEDIP и BENDIP изучали главным образом краткосрочные нейропатические показатели и требуют различать анализы и конечные точки. BEDIP был трёхнедельным пилотным исследованием, а не 12-недельным исследованием 130 участников. [6,18,38]
Более длительный BOND не подтвердил преимущества бенфотиамина по первичной оценке длины нервных волокон роговицы. [39]
Таким образом, клеточный эффект на транскетолазу и краткий симптоматический сигнал нельзя считать доказательством восстановления нервов или профилактики нефропатии и ретинопатии в любой популяции.
Сульфорафан и другие электрофильные соединения могут влиять на KEAP1–Nrf2 и детоксицирующую программу. Это объясняет исследовательский интерес, но не задаёт одинаковый процент индукции GLO1 при любой форме препарата или дозе. [5]
В перекрёстном исследовании tRES–HESP 29 участников завершили наблюдение; изучались 90 мг транс-ресвератрола и 120 мг гесперетина ежедневно в течение восьми недель. В post hoc группе с BMI >27,5 кг/м² сообщалось об увеличении GLO1 на 27% и снижении MGO на 37%, с улучшением индекса OGIS и сосудистых показателей. Это результаты конкретной группы и конечных точек, а не универсальные эффекты дозы. [21]
Это исследование не доказывает предотвращения сосудистых осложнений. Комбинация с птеростильбеном является другой комбинацией: её нельзя подставлять вместо гесперетина, сохраняя ссылку на tRES–HESP. Обсуждение SIRT1, Nrf2, биодоступности и эффекта полифенолов должно учитывать конкретное соединение, экспозицию и модель, а не превращать их в гарантированную общую нейропротекцию.
α-Липоевая кислота и её восстановленная форма участвуют в редокс-химии; липоильные группы в ферментных комплексах имеют отдельную кофакторную роль. В SYDNEY 2 изучалось кратковременное влияние пероральной α-липоевой кислоты на симптомы диабетической полинейропатии. [20]
Симптоматическая конечная точка не является доказательством уменьшения всех AGEs или регенерации аксонов. Исследование нельзя автоматически переименовывать в исследование только R-энантиомера или конкретной соли. Возможность поддержать GSH зависит от синтеза, наличия цистеина и NADPH-зависимого восстановления; нельзя описывать липоевую кислоту как гарантированную замену глутатионредуктазе.
NAC относится к подходам увеличения доступности цистеина. Это биохимически правдоподобный путь поддержки синтеза GSH, но эффективность сочетания NAC, карнозина, бенфотиамина, полифенолов и липоевой кислоты именно против AGE-осложнений должна быть показана в исследовании комбинации. Сумма отдельных механизмов не устанавливает клиническую синергию, режим времени приёма или оптимальную дозу.
Растворимый RAGE включает продукты отделения внеклеточного домена, в том числе с участием протеаз, и секреторные варианты альтернативного сплайсинга. esRAGE является частью этого разнообразия, а не синонимом любого измеряемого sRAGE. Возможность связывания лигандов привлекает интерес как «ловушка», но концентрация в крови зависит также от образования, воспаления и клиренса. [25,31]
Азелирагон/TTP488 исследовался как антагонист RAGE. В STEADFAST части A и B не достигли сопервичных конечных точек. Это не обосновывает применение для защиты митохондрий. [40]
Подход к разрушению уже существующих сшивок изучался, в частности, в работе Vasan и коллег. Эти химические результаты не доказывают, что любой предполагаемый «AGE-breaker», включая исторически обсуждавшийся алаге́бриум, разрывает все основные сшивки человеческого коллагена. Особенно важно отличать экспериментальные модельные сшивки от глюкозепана в долгоживущей ткани. [14,29]
| Уровень вмешательства | Примеры | Что действительно нужно подтвердить |
|---|---|---|
| Уменьшение нагрузки субстратов | Контроль метаболического состояния, исследование транскетолазного потока | Изменение осложнений, а не только лабораторного потока |
| Улавливание карбонилов | Аминогуанидин, пиридоксамин, карнозин | Достижимая тканевая экспозиция, избирательность и клиническая польза |
| Усиление удаления MGO | GLO1-индукция, достаточность тиолового цикла | Согласованная работа GLO1/GLO2, изменение нагрузки и исходов |
| Поддержка редокс-баланса | Подходы к синтезу и восстановлению GSH | Функциональный эффект в нужной ткани |
| RAGE-сигнализация | Растворимые формы, экспериментальные антагонисты | Лигандная специфичность, польза и нежелательные эффекты |
| Существующие сшивки | Экспериментальные разрушители AGE-сшивок | Реакция с релевантной человеческой сшивкой и изменение функции ткани |
Эта матрица описывает исследовательские уровни. Она не устанавливает многоуровневый лечебный «стек» или обязательные интервалы до еды. Подбор лекарств и оценка взаимодействий при диабете относятся к конкретной клинической ситуации; исследовательские механизмы не заменяют доказанного лечения осложнений.
| Показатель | Основной смысл | Ограничения |
|---|---|---|
| HbA1c | Гликирование гемоглобина и интегрированная гликемическая экспозиция | Зависит от эритроцитарного оборота, гемоглобинопатий и аналитической системы |
| Фруктозамин / гликированный альбумин | Более короткая экспозиция сывороточных белков | Зависит от синтеза, потери и обновления этих белков |
| MGO | Дикарбонильная нагрузка при определённом способе подготовки образца | Возможны образование после взятия, гидратация и влияние дериватизации |
| CML / CEL / MG-H1 | Конкретные классы аддуктов | Свободные и белково-связанные формы имеют разный смысл; клиренс важен |
| Пентозидин | Один флуоресцентный продукт | Не измеряет нефлуоресцентный глюкозепан и весь класс AGEs |
| sRAGE / esRAGE | Растворимые рецепторные популяции | Почечная функция и воспаление затрудняют простую трактовку как «резерва защиты» |
| GSH / GSSG | Тиоловый и редокс-контекст исследуемого материала | Чувствителен к окислению при обработке; кровь не равна матриксу |
Для химически определённых аддуктов применяют LC–MS/MS, а для отдельных флуоресцентных соединений — подходящие хроматографические методы. Иммунные методы требуют знать специфичность антител и способ выражения результата. Для MGO важны скорость стабилизации образца, условия дериватизации, внутренние стандарты и контроль искусственного образования аналита. [3,4,15,26,32]
Нельзя объединять результаты разных методов в один универсальный порог «дикарбонильного кризиса». Значение MGO, граница sRAGE или отношение GSH/GSSG без указания материала и методики не позволяют автоматически назначить сочетание добавок. HbA1c имеет устоявшееся клиническое применение, тогда как многие AGE-панели остаются исследовательскими; диагноз и интерпретация HbA1c требуют клинического контекста, особенно при изменённом обороте эритроцитов.
Гликоксидация соединяет углеводную и окислительную химию, но не охватывает все AGEs. Метилглиоксаль связывает побочные реакции обмена с модификацией аргинина и других групп; глиоксалазный цикл ограничивает эту нагрузку. В митохондрии могут измениться белковые интерфейсы, дыхание и протеостаз, а поверхностный RAGE добавляет отдельную сигнальную ветвь воспаления. Установление молекулярной структуры аддукта, доказательство функции конкретного участка и улучшение клинического исхода остаются разными задачами.
Именно это разделение позволяет обсуждать защиту митохондрий содержательно: сохранять проверяемые химические реакции и результаты моделей, но не обещать одинаковый исход для разных AGEs, тканей и комбинаций препаратов.
Это повествовательный научный обзор, подготовленный 8 октября 2026 года. Полностью прочитан исходный материал и сохранена его библиография. Адресно проверены первичные работы при конкретных противоречиях: митохондриальные исследования Rosca, адаптеры и митохондриальная локализация RAGE, человеческий TDH и атрибуция клинических исследований. Химические реакции, наблюдения в моделях и клинические конечные точки разграничены; неподтверждённые универсальные пороги, точные эффекты отдельных остатков и лечебная синергия не представлены как установленные. Это не систематический обзор и не результат независимого рецензирования; доступность полных текстов отдельных работ была ограничена.
Гликоксидация включает окислительные превращения, связанные с гликированием. Гликирование шире, а разные AGEs образуются разными путями.
Нет. CML, CEL и MG-H1 — примеры моноаддуктов. Пентозидин и глюкозепан относятся к сшивкам и отличаются друг от друга.
Он образуется, в частности, из триозофосфатов и способен модифицировать белковые группы. Нагрузка зависит от образования, активности обезвреживания и обновления белков.
Он участвует в образовании гемитиоацеталя и возвращается при действии GLO2. Параллельные клеточные реакции всё же могут менять суммарный пул GSH.
Нет. В первичной опухолевой модели mitRAGE связывали с усилением комплекса I и ATP. Это не доказательство универсального комплекса, открывающего mPTP.
Сочетание правдоподобных механизмов не доказывает клиническую синергию. Для комбинации необходимы исследования тканевой экспозиции, конечных точек и нежелательных эффектов.