
Митохондриялық динамика: DRP1, MFN2, OPA1 және митофагия
Қосылу мен бөліну механохимиясы, ЭПТ түйісуі, DRP1 және PINK1–Parkin реттелуі; тұқым қуалайтын аурулар және доклиникалық шектер.
Қосылу мен бөліну механохимиясы, ЭПТ түйісуі, DRP1 және PINK1–Parkin реттелуі; тұқым қуалайтын аурулар және доклиникалық шектер.
Митохондрия энергияны тыныс алу тізбегінің құрамы арқылы ғана емес, қос мембрананың, кристалардың, геномның және көрші органеллалармен байланыстардың ұйымдасуы арқылы да сақтайды. MFN1/MFN2 сыртқы мембраналардың қосылуына, OPA1 ішкі мембрана мен кристаларға қатысады; DRP1 адаптерлермен және цитоскелетпен бірге бөлінуді қамтамасыз етеді. Бұл үдерістер тасымалмен және зақымды жоюмен үйлеседі. Дегенмен ұзын митохондрия міндетті түрде сау, ал қысқасы міндетті түрде жойылуға тиіс емес. Мұнда механохимия, реттелу, тұқым қуалайтын аурулар және араласулардың дәлел шектері қарастырылады.
Трансмиссиялық электрондық микроскопия қос мембрана мен кристалардың алғашқы егжей-тегжейлі бейнелерін берді. Жұқа кесінді үшөлшемді нысанның бір бөлігін ғана көрсетеді; бекіту, сусыздандыру және гомогендеу пішінді өзгертіп, байланыстарды үзуі мүмкін. Бірақ жеке митохондрияның әр бейнесі артефакт емес: шын мәнінде оқшау органеллалар, әсіресе нейрон өсінділерінде, кездеседі. Бұлшықеттегі тығыз орналасу өсірілген жасушаның еркін түтікшелі желісінен өзгеше. Тарихи әдістер динамиканы қалпына келтіруді шектеді, бірақ жасушаны түгелдей қате сипаттаған жоқ.
Тірі жасушаның mito-GFP/mito-DsRed конфокалдық микроскопиясы қозғалысты, түйісуді, құрам алмасуды және ажырауды уақыт бойынша бақылайды. STED, PALM/STORM және SIM кеңістіктік ажыратуды жақсартады; криоэлектрондық томография витрификацияланған материалдың мембраналық құрылымын көрсетеді. Әр әдісте фотоуыттылық, таңба ерекшелігі, кадр жиілігі және тірі үдеріс пен құрылымдық суреттің айырмасы қалады. Сыртқы контур тұтастығы, матрикстік таңба алмасуы және электрлік байланыс — бірін-бірі алмастырмайтын белгілер.
Митохондриялар тармақталған желілер, созылған бөліктер және бөлек қозғалатын бірліктер түзеді. Ұйымдасу жасуша түріне, қоректенуге, жүктемеге, жасушалық циклге және зақымға тәуелді. «Ретикулярлық синцитий» кейбір құрылымдарға сай, бірақ барлық тінде бір үздіксіз ішкі мембрана бар дегенді білдірмейді және желінің функционалдық шекараларын жоймайды. Қосылудың пайдасы немесе бөлінудің зияны тек соңғы ұзындықпен емес, оқиға мен қызметті бақылау арқылы анықталады.
Glancy және әріптестері бұлшықеттегі митохондриялық ретикулумның жасуша ішінде энергия таратуымен байланысын сипаттады. Протон қозғаушы күш электрлік және химиялық құрамдарды біріктіреді:
R — газ тұрақтысы, T — абсолют температура, F — Фарадей тұрақтысы. ΔΨₘ = Ψматрикс − Ψмембранааралық кеңістік, ΔpH = pHматрикс − pHмембранааралық кеңістік деп алсақ, теріс электрлік құрам мен сілтілірек матрикс осы бағытта теріс Δp береді. Айырманың анықтамасын тексермей таңбаны мақалалар арасында көшіруге болмайды. Потенциал мен pH тыныс күйіне, субстратқа, тінге және әдіске тәуелді; әмбебап диагностикалық аралық емес.
Электрлік байланыс желі бөліктерін біріктіріп, энергиямен қамтудың кеңістіктік таралуын өзгерте алады. Бұл кез келген миоциттің барлық митохондриясына потенциал лезде және шығынсыз тарайды немесе алыстағы бөлік міндетті түрде гипоксияда дегенді дәлелдемейді. Мембрана тұтастығын, жергілікті тұтынуды, уақыттық ажыратуды және электрлік жауапты тексеру қажет. «Энергия желісі» метаболит диффузиясын толықтырады, ATP мен фосфокреатин жеткізудің барлық жолын алмастырмайды.
Қосылу матрикс ақуыздары мен метаболиттерінің бір бөлігін араластырып, функционалдық комплементацияға көмектеседі. Митохондриялық ДНҚ TFAM қатысатын нуклеоидтарда жинақталған; кәдімгі ядролық гистонның болмауы қорғаныс жоқ деген сөз емес. Нуклеоидтар әр қосылудан кейін біркелкі араласпайды, ал ақуыз тасымалы мутацияны түзетпейді. Гетероплазмия фенотипі нұсқаға, таралуға, тінге және энергия сұранысына тәуелді: кез келген ақауды қосылу жасыратын 60–80% әмбебап шек жоқ. Репликация, транскрипция және көшірмелердің сұрыпталуы бөлек талданады.
SOD2, GPX1, PRDX3/PRDX5 және глутатион жүйелері жергілікті редокс-жауапты тотықсыздандырғыш эквиваленттер алмасуымен байланыстырады. Матрикстегі Ca²⁺ таралуы бір әсерді бәсеңдетіп, басқасын таратуы мүмкін; желі кальцийдің шамадан тыс жиналуынан немесе mPTP ашылуынан толық қорғамайды. ROS сигналының төмендеуін тыныспен, потенциалмен және тіршілікке қабілетті органелла санымен салыстыру керек. Қор, компартмент және қызмет айырмасы NAD⁺ туралы мақалада да түсіндіріледі: жалпы концентрация әр жергілікті реакцияны сипаттамайды.
Қосылу құрам алмасу мен бейімделуді қолдайды; бөліну қозғалысқа, митоздық таратуға және бөлікті оқшаулауға жарамды бірліктер түзеді. Зақымдалған аймақ кейде потенциалы төмен ұрпақ бөлік беріп, ол қайта қосылуға сирек қатысып, митофагиямен жойылуы мүмкін. Бұл функционалдық байланыс, әр бөліну ауру органелла тудырады деген ереже емес. Оқиғаның орнын және екі ұрпақтың күйін өлшеу қажет.
Бөлінуді ұзақ тежеу тасымал мен жаңаруды қиындатады, бірақ қысқа стресс кезіндегі ұзару бейімделу болуы мүмкін. Фрагментация митозда, қорек өзгергенде, кальций әсерінде және жасуша өлімінде кездеседі: бір пішіннің себептері әртүрлі. Сапаны бақылауға протеазалар, шаперондар, геном репликациясы, митохондриялық везикулалар, биогенез және лизосомалар кіреді. Оның тиімділігі тек қосылу/бөліну қатынасымен анықталмайды.
Екі митохондрия қосылғанда сыртқы және ішкі мембраналар бірігіп, сулы компартменттер сақталуы керек. Липид беттерінің жақындауы, судың ығысуы, аралық күй және саңылаудың ашылуы ақуыздардың үйлескен жұмысын қажет етеді. Оқиға ықтималдығы тек арақашықтықпен анықталмайды: липид құрамы, қисықтық, керілу және катализ маңызды.
MFN1 мен MFN2 — әртүрлі ядролық гендердің туыстас өнімдері, бірақ барлық міндетте бірін-бірі алмастырмайды. N-соңындағы G-домен гуанин нуклеотидін байланыстырады; спираль бөліктер мен мембраналық бекіткіш конформацияны мембранаға жеткізеді. Тарихи схема G-домен, HR1, трансмембраналық бөлік және HR2 деп бөледі; қысқартылған құрылымдар HB1/HB2 шоқтарын да қолданады. Бұлар дербес машина бөлшектері емес, сипаттаудың әр деңгейі. Топологияны, ұштардың қолжетімділігін және cis/trans әрекеттерді нақты конструкцияда тексереді.
Митофузиндер гомотиптік және гетеротиптік кешендер түзеді. Жалпы мөлшер қосылу ағынына кепіл болмайды: орналасу, нуклеотид циклі және серіктестер қажет. Тазартылған ГТФаза белсенділігі аксон, бауыр немесе бұлшықеттегі функция рейтингін анықтамайды. Толық қосылуды матрикстік таңба алмасуымен және мембраналардың бөлек көрсеткіштерімен бағалайды; контурлардың жақындығы жеткіліксіз.
| Сипат | MFN1 | MFN2 |
|---|---|---|
| Ядролық ген | MFN1, 3-хромосома | MFN2, 1-хромосома |
| Адамның канондық тізбегі | 741 қалдық; масса әдіске тәуелді | 757 қалдық; изоформа мен модификация маңызды |
| GTP бойынша Km | Конструкция мен талдау жағдайына тән | 500 мкМ бір мәні барлық жүйені сипаттамайды |
| GTP гидролизі | Олигомерлену мен тәжірибеге тәуелді | Міндетті сегіз еселік айырма салыстырмалы тәжірибе қажет етеді |
| Сыртқы қосылу | Аппараттың маңызды бөлігі | Серіктес пен нұсқаға байланысты қатысады |
| Қосымша орналасу | Негізгі рөл сыртқы мембранада | ЭПТ мен түйісулер бөлек зерттеледі |
| Аксондық тасымал | Пішін қозғалысқа әсер етуі мүмкін | Miro/TRAK және жергілікті таралу нейропатия моделіне маңызды |
| Клиникалық генетика | Эмбриондық нокаут адам синдромын анықтамайды | Патогендік MFN2 нұсқалары CMT2A себебі болады |
Koshiba жеке спираль бөлікті зерттеді: PDB 1T3J coiled-coil әрекеттесу моделін қолдайды. HR2 кристалы толық MFN1/MFN2 мембраналық циклін көрсетпейді. Кешен ұзындығы міндетті бастапқы қашықтықты, ал бір конструкциядағы антипараллель оралу жалғыз in vivo жолды анықтамайды.
Cao мен Yan қысқартылған MFN1-де нуклеотидке тәуелді G-домен димерленуін және спираль қайта құрылуын анықтады. Нысаналы тексеруде PDB 5GOM өтпеліге ұқсас күй деп белгіленген, жай ашық, белсенбеген GDP пішіні емес. PDB 5YEW конструкция, нуклеотид және бастапқы жарияланыммен бірге қаралады. Кристал ықтимал интерфейсті көрсетеді, бірақ тірі мембранадағы бұрышты, күшті немесе уақытты өзі өлшемейді.
Химиялық негіз — GTP + H₂O → GDP + Pᵢ. Энергия реагент белсенділігіне, Mg²⁺, pH және температураға тәуелді; стандартты ΔG°′ әр спираль қозғалысының энергиясына түзетусіз тең емес. Байланысу, димерлену, гидролиз және өнімнің шығуы бөлек сатыларды басқарады. 60°-тан үлкен тұрақты бұрылыс, 9-дан 1,5 нм-ге қысқару және міндетті саңылау нақты оқиғамен дәлелденуі тиіс. Сыртқы липид қабаттарының жартылай қосылуы толық бірігуден өзгеше; түйісу аяқталған қосылу емес.
De Brito мен Scorrano MFN2-ні ЭПТ–митохондрия байланысын ұстайтын қатысушы деп сипаттады. Өлшеу геометрия мен жақындық шартына сезімтал: Filadi MFN2 жойылғанда байланыс артқанын, ал Naon кейін бекітуші рөлін қолдады. Бұдан «MFN2 азайса, ЭПТ әрдайым алыстайды» деген ереже шықпайды. Қашықтық анықтамасы, бетке нормалау, жедел/созылмалы әсер және функционалдық тасымал қажет.
IP3R босатқан Ca²⁺ сыртқы мембрана және ішкі MCU кешені арқылы қабылданатын микродомендер түзеді. MCU реттегіштері мен геометрия маңызды; бір Kd барлық жағдайды сипаттамайды. Кальций PDP арқылы пируватдегидрогеназаға, сондай-ақ IDH3 пен α-кетоглутаратдегидрогеназаға әсер етеді; артық жүктеме энергияны бұзады. Жақын түйісу міндетті түрде пайдалы емес, матрикстік Ca²⁺ артуы ATP-ны әрдайым өсірмейді.
ЭПТ фосфатидилсерин түзеді; оның жеткізілуі мен митохондриялық PISD декарбоксилдеуі фосфатидилэтаноламинге қатысады. Түйісулер алмасуды жеңілдетеді, бірақ MFN2 жалғыз PS тасымалдаушысы немесе екі мембранадан тікелей өткізеді дегенді дәлелдемейді. PERK–eIF2α–CHOP түйісу ортасын ЭПТ стрессімен байланыстырады; MFN2 жоғалуының салдары тікелей де, екіншілік те болуы мүмкін. Қосылу мен түйісу қызметін ажыратып, кальций, липид және тәуелсіз стресс жауабын бақылау керек.
OPA1 — ядролық кодталған динамин тобының ГТФазасы, ішкі мембрана мен мембранааралық бетте орналасады. N-соңындағы сигнал прекурсорды TOM/TIM арқылы бағыттайды; өңдеу ұзын және қысқа пішіндер түзеді. Баламалы сплайсинг кесілетін орындарды өзгертеді, таралу тін мен күйге тәуелді. Бір тізбектің массасы, қалдық саны және изоформалары барлық OPA1 молекуласын сипаттамайды.
G-домен, спираль элементтері, мембраналық аймақтар және олигомер интерфейстері циклді липид қабатымен байланыстырады. Faelber 2019 құрылымы туыстас Mgm1-ге қатысты, бастапқы қолжазбадағыдан басқа библиографиялық жазбасы бар. Ол OPA1 болжамдарын қолдайды, бірақ барлық адам пішіндерінің тікелей құрылымы емес. Кардиолипин, керілу, потенциал және серіктес механизмді көшіру шартын анықтайды.
YME1L — ATP-тәуелді i-AAA протеаза, каталитикалық бөлігі мембранааралық кеңістікте; сәйкес OPA1 нұсқаларын өңдейді. OMA1 — стресс кесуінде маңызды мембраналық металлопротеаза. S1/S2 өңдеу орындары, әмбебап жылдамдық емес. Потенциал, ATP және протеостаз L-/S-OPA1 теңгерімін өзгертеді, бірақ барлық тінге немесе қайта құрастырылған мембранаға 1:1 қатынасын міндеттемейді.
Ұзын пішін мембранамен байланысын сақтайды; қысқалары жүйеге байланысты олигомерлену мен қосылуға әсер етеді. Ұзындардың толық жойылуы шектеулі реттеуші өңдеуден бөлек. OMA1 үшін әмбебап ΔΨₘ шегі жоқ; стресс барлық L-OPA1-ді лезде әрі қайтымсыз жоймайды. Қайта синтез, импорт және қалпына келу теңгерімді өзгертеді.
OPA1 криста түйіндерінің архитектурасына, тыныс кешендеріне және цитохром c таралуына қатысады. Өлшем мен криста ішіндегі үлес әдіс пен күйге тәуелді: 12–20 нм, «85%-дан көбі қамалған» әмбебап норма емес. Қайта құрылу босатуды жеңілдетеді, бірақ цитозолға шығу сыртқы мембрананы, мысалы BAX/BAK өткізгіштігін қажет етеді. OPA1 өңделуі басталған апоптозға тең емес.
Кардиолипин мен қисықтық I + III₂ + IV тәрізді суперкешендерді тұрақтандырумен байланысты. Суперкешен барлық электрон диффузиясыз өтеді дегенді білдірмейді; сигнал өзгеруі ROS тежелуінің себебін дәлелдемейді. Қосылу, криста және энергетика үшін морфология, құрам алмасу, оттегі тұтыну, потенциал және ATP синтезі бөлек өлшенеді.
DNM1L кодтайтын DRP1 динаминдер тобына жатады. Көп бөлігі цитозолда; бөліну сыртқы мембранаға тартылуды, олигомер жиналуын және нуклеотид циклін деформациямен байланыстыруды қажет етеді. DRP1 тежелгендегі ұзару бөліну үлесін көрсетеді, бірақ әр белсену патологиялық емес: жасуша бөлінгенде органелла таратуға, бейімделуге және сапаны бақылауға қатысады.
Құрылымда GTP байланыстырып гидролиздейтін G-домен, топсалы BSE — bundle signalling element — және молекулааралық байланыс түзетін сабақ бар. Тарихи «орта домен» мен GED кеңістіктегі бөліктерге сәйкес, дербес мотор емес. Ауыспалы B-домен реттегіш аймақтары изоформалар арасында өзгереді. Әдеттегі PH-доменнің болмауы липидпен әрекет жоқ деген сөз емес: қышқыл фосфолипидтер, оның ішінде модельдік кардиолипин, байланысу мен жиналуды өзгерте алады.
Fröhlich және Kalia олигомер интерфейстері мен адаптер байланыстарын көрсетті. PDB 3W6P — GDP·AlF₄-пен адам DLP1/DRP1 кешені, өтпелі күй моделі; жұмыс істейтін тұтас органелла емес. Криоэлектрондық спиральдар мен MiD49 кешендері кристаллографияны толықтырады, бірақ диаметр, субъбірлік және орам орны липидке, нуклеотидке, адаптерге және конструкцияға тәуелді.
GTP G-домен контактілерін қолдайды; гидролиз және кейінгі қайта құрылу геометрияны өзгертеді. Энергияны иілу мен тарылуға айналдыру кооперативті жиналуды қажет етеді, бір молекула қайшыдай кеспейді. Еріген DRP1 базалық белсенділігі жасушалық бөліну жиілігін анықтамайды. Мембраналық тартылу, өнімді кешен, тарылу динамикасы және аяқталған ажырау бөлек бағаланады.
Сыртқы мембрана DRP1 үшін платформалар береді. MFF, MiD49, MiD51 бірін-бірі толық алмастырмайды. Экспрессия, олигомерлену, салыстырмалы мөлшер және контекст маңызды; артық адаптер кейде өнімсіз конфигурацияны ұстайды. Мембранадағы ақуыздың көбеюі аяқталған бөлінуді міндетті өсірмейді.
| Ақуыз | Мембраналық ұйымдасу | Негізгі қызмет | Түсіндіру шегі |
|---|---|---|---|
| MFF | C-соңындағы бекіткіш; цитозолдық DRP1 аймағы | Көп жасушада өнімді тартылу мен бөліну платформасы | Тәуелділік жүйеге сай; пероксисомаға да қатысады |
| MiD49 / MIEF2 | N-соңындағы бекіткіш; үлкен цитозолдық домен | DRP1 байланыстыру және жиналу | MiD51 нуклеотид қасиеттері автоматты көшірілмейді |
| MiD51 / MIEF1 | N-бекіткіш; нуклеотид байланыстыратын домен | Тартылу мен конфигурацияны реттеу | ADP байланысы әмбебап ATP/ADP өлшеуішін жасамайды |
| Fis1 | C-бекіткіш; цитозолдық TPR қайталанулары | Динамика, түйісу және стресс қызметтері | Сүтқоректінің барлық бөлінуінде жалғыз міндетті рецептор емес |
Otera мен Losón адаптерлерді жасушада, Richter MiD49/51 құрылымы мен қызметін зерттеді. Масса және PDB нөмірі изоформа мен фрагментке тән; конструкциясыз функцияны анықтамайды. MiD51 ұқсастығы болжам жасауға көмектеседі, бірақ «ATP төмендесе, бөліну қосылады» деген автоматты заң емес.
Митохондрия түтікшесі кейбір DRP1 спиральдарының қуысынан кең. ЭПТ түйісуі мен жергілікті цитоскелет тарылуды дайындайды. Бірнеше қатысушы үйлеседі, бірақ әр жасушада тұрақты диаметрлі міндетті бес саты жүрмейді.
Зерттелген жүйелерде ЭПТ түтікшелері органелланы кесіп өтеді немесе қоршайды. ЭПТ-байланысты INF2 формині актин түзеді; митохондриялық Spire1C жергілікті ұйымдасуға көмектеседі. Бұлшықеттік емес миозин II, оның ішінде IIB, механикалық жұмысқа қатысады. Актин кальций тасымалымен және ішкі мембранамен де байланысты; сыртқы тарылу DRP1-ге дейінгі жалғыз оқиға емес.
Адаптерлер DRP1 шоғырландырады, сабақ контактілері олигомер түзеді, GTP циклі геометрияны өзгертеді. Әр DRP1 дағы ажырауға әкелмейді: кешен тарайды, тарылу қайтуы мүмкін. Бекітілген сурет өнімді бөлінуді уақытша тартылудан ажыратпайды.
Соңғы ажыраудағы динамин-2, DNM2 рөлі талқыланады. Кей модельде қатысады, бірақ Kamerkar DNM2 жоқта бөлінуді және DRP1-дің қайта құрастырылған мембрананы тарылтып ажыратуын көрсетті. DNM2 әмбебап соңғы кескіш емес. Липид, архитектура және қосымша факторлар талаптарды өзгертеді; екі жасушалық мембрананы ажырату бір жасанды липид түтігін кесуден күрделірек.
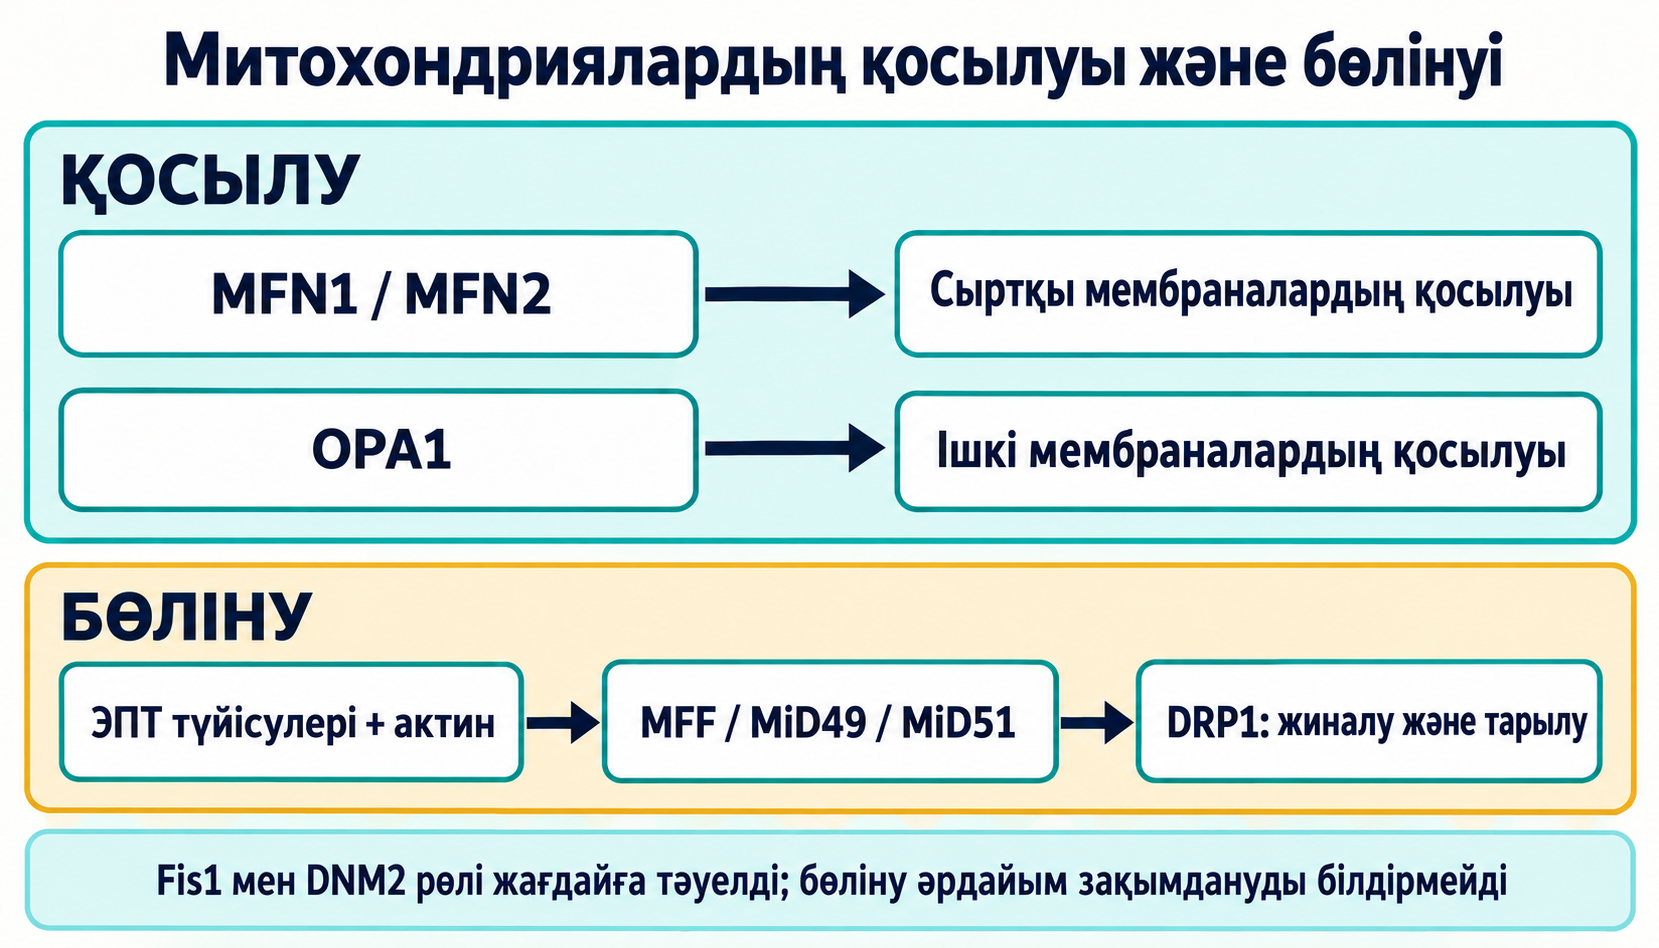
Схема негізгі аппараттарды салыстырады. Жебелер функционалдық ретті көрсетеді, тұрақты уақыт немесе жеке ақуыздың жеткіліктілігін емес.
Жиі өлшенетін екі орын адам тізбегінде Ser616 және Ser637 деп аталады. Нөмір изоформа мен түр арасында өзгереді, сондықтан қолданылған ақуызды тексереді. Модификациялар нақты жүйеде жиналу мен орналасуды реттейді; екі антидене сигналының қатынасы митохондрия саулығының әмбебап көрсеткіші емес.
Митозға кіргенде CDK1–циклин B DRP1 фосфорлап, желінің қайта құрылуына көмектеседі. Бұл физиологиялық жауап. ERK1/2, PKCδ және CaMKII кей стресс моделінде бөліну сигналымен байланысты, бірақ Ser616 фосфаты бір нақты киназаны көрсетпейді. Белсенділік, субстратқа жету және басқа қатысушыларға әсер жасушаға тәуелді.
цАМФ–PKA үшін Ser637 фосфорлануымен тартылудың немесе белсенділіктің азаюы сипатталған. Митохондриялық AKAP сияқты бекіткіш ақуыздар PKA-ны кеңістікте ұйымдастырады. Бұл барлық DRP1 цитозолда мәңгі ұсталады немесе қосылу міндетті артады деген емес: MFN/OPA1, липид, энергетика және басқа модификациялар қажет. Кей модель басқа нәтиже береді; тек фосфорлану емес, нақты бөліну өлшенеді.
Кальций импульстері метаболизмді, ЭПТ түйісулерін және динамиканы байланыстырады. Ca²⁺–кальмодулин кальциневринді белсендіреді; Cereghetti тәжірибесінде DRP1 дефосфорлануы мен митохондрияға ауысуына көмектесті. Бұл стресс кезіндегі бөліну ықтималдығын өзгертетін жол, әр кальций өсуі қайтымсыз фрагментацияны туғызады деген дәлел емес.
Ұзақтық, амплитуда, матрикске жүктеме, кальций шығару және бастапқы резерв маңызды. Артық жүктеме mPTP, тыныс бұзылысы және өліммен қатар жүруі мүмкін, бірақ Ser637 фосфатын алып тастаудың автоматты салдары емес. Цитохром c шығуы сыртқы өткізгіштікті де қажет етеді. Кальциневрин–DRP1, mPTP және BAX/BAK өзара байланысқан, бірақ бөлек механизмдер.
Азот оксиді тиолдарды реттеуге және нитрозативтік зақымға қатысады; әсері концентрация, орын және редокс-ортаға тәуелді. Cho Cys644 S-нитрозилденуі β-амилоид жағдайында DRP1, бөліну және нейрон зақымын белсендіреді деп ұсынды. Бұл тексерілетін болжам, барлық нейродегенерацияның әмбебап механизмі емес.
Bossy S-нитрозилденген DRP1 тапқанымен, фермент белсенділігінің өсуі мен Альцгеймерге ерекшелігін растаған жоқ. Ақуыз препараты, реакция, SNO анықтау және жасуша моделі салыстырылуы керек. Үш еседен артық белсенділікті, C644A трансгендік жануардың жалпы қорғанысын немесе адамдағы тікелей себепті тиісті дерексіз көшіруге болмайды.
Айырма ғылыми мағынаны сақтайды: модификация анықталуы мүмкін, қызметі жағдайға тәуелді, клиникалық ерекшелік — басқа сұрақ. Плазмалық нитротирозин нейрон DRP1-інің нақты қалдық нитрозилденуін өлшемейді.
Убиквитин белгілері сыртқы ақуыздардың қолжетімділігін және сапа сигналдарын өзгертеді. PINK1–Parkin белсенгенде митофузиндер субстрат болады; протеасомалық жою зақым аймағының қайта қосылуын шектеуі мүмкін. Gegg PINK1/Parkin-тәуелді MFN1/2 убиквитинденуін көрсетті. Parkin тізбектері тек Lys48 емес, сигнал қабатын түзу протеасомалық ыдыраудан бөлек.
Мембраналық RING-лигаза MARCH5, MARCHF5/MITOL деп те аталады, кешендердің құрамы мен сапасын реттейді. Өзгеруі MFN, адаптер және стресс жауабына әсер етеді. «MARCH5 көп — DRP1 аз — желі жақсы» тұрақты бағыты жоқ: субстрат, тізбек түрі, деградация және күй маңызды.
HECT-лигаза HUWE1, Mule/ARF-BP1, кей геноуытты модельде MFN2 убиквитинденуімен байланысты. Бұл динамика мен апоптозды зерттеуге мүмкіндік береді, бірақ MFN2 бұзылуы BAK белсенуінің жалғыз шарты емес. Стресстен кейін синтез және желі қалпына келуі мүмкін; қайтымсыздық жойылған молекулаға қатысты, бүкіл органеллаға не жасушаға міндетті емес.
DRP1 SUMOлануы қосымша реттелуді береді. MUL1/MAPL және SENP протеазалары, SENP5 қоса, SUMO қосылуы мен кешен қасиетін өзгертеді. SUMO1 мен SUMO2/3 әсері бірдей емес; мембранада қалу, стресс түйісуі және бөліну жүйеге тәуелді. Әр SUMO белгісі белсендіреді, алып тастау әрдайым тежейді деген ереже жоқ.
Ацетилдену мен сиртуиндік деацетилдену метаболизмді желімен байланыстырады. Ядро-цитозолдық SIRT1 PGC-1α мен биогенезге, матрикстік SIRT3 қолжетімді субстраттарға әсер етеді. Компартменттері бөлек. Samant жүрек стрессінің жасушалық және биохимиялық тәжірибесінде SIRT3-тәуелді OPA1 деацетилденуі мен белсенуін хабарлады. Қолжетімділік пен модель бөлек бағаланады; тек матрикстік орыннан қорытынды шықпайды. Жалпы NAD⁺/NADH әр сиртуин қасындағы бос NAD⁺ мөлшерін анықтамайды.
Ақуыз фосфорлануы, SUMOлануы және ацетилденуі посттрансляциялық реттелуге жатады. Тұрақты хроматин немесе экспрессия байланысынсыз оларды автоматты эпигенетикалық деуге болмайды. Компартмент логикасы CD38, PARP1 және SARM1 арқылы NAD⁺ жұмсалуын талдауда берілген; жалпы қор өсуі қосылу аппараты қалпына келді деген емес.
Бөлінген бөліктер потенциал, ақуыз құрамы және кейінгі тағдыры бойынша өзгеше болуы мүмкін. Twig бөліну, таңдамалы қайта қосылу және аутофагиялық жою байланысын бақылаған. Потенциалы төмен ұрпақ желіге сирек оралып, жиірек ыдырауы мүмкін. Бұл зақымды оқшаулаудың маңызды моделі, бірақ барлық бөлінудің басым бөлігі міндетті түрде сау және ақаулы органелла береді деген емес.
Бөліну көбею мен таратуға да қажет; уақытша деполяризация қайтымсыз зақым емес. Асимметрия үшін оқиғаға дейін және кейін бақылау, потенциалға сезімтал бояғыш және өлшем, жүктелу, фотоуыттылық бақылауы қажет. Бір флуоресценттік сурет мтДНҚ мутацияларының жиналуын көрсетпейді, тұрақты потенциал шегі әмбебап іріктеу өлшемі емес.
Қосылу комплементация береді, бірақ тотыққан ақуызды химиялық жоймайды немесе мутант геномды автоматты түзетпейді. Зақымды жою протеолиз, құрам жаңарту немесе аяқталған аутофагиялық ағынды қажет етеді. Қосылуды тым тежеу де зиян: алмасу мен қалған қордың жұмысы сақталуы тиіс.
Энергия сақталғанда PINK1 TOM/TIM-пен әрекеттеседі, PARL қоса митохондриялық протеазалар арқылы өңделіп, тез жойылады. Бұл бүкіл ақуыз матрикске үнемі кіріп, сол жерде жай кесіледі деген модель емес. Импорт, трансмембраналық орын, протеолиз және өнімнің шығуы сау органелладағы қысқа өмірін анықтайды.
Потенциалға тәуелді импорт елеулі бұзылғанда толық PINK1 сыртқы мембрана қасындағы кешенде тұрақтанады; каталитикалық бөлігі цитозолдық субстраттарға жетеді. Narendra зақым органелладағы таңдамалы тұрақтануды және Parkin белсенуін көрсетті. Деполяризация уақыты мен агент маңызды: жасушалық ажыратқыш адам стрессінің барлық себебін қайталамайды.
PINK1 убиквитин Ser65 пен Parkin UBL-доменінің сәйкес серинін фосфорлайды. Бұлар бөлек субстраттар. Kondapalli 2012 Parkin фосфорлануын зерттеді; Koyano 2014 убиквитиннің фосфорлануы мен Parkin белсенуін дәлелдеді. Атауларды шатастыру бөлек сатыларды қате дереккөзге біріктіреді.
Фосфоубиквитин байланысы мен фосфорлану RBR E3-лигаза Parkin аутоингибициясын босатуға көмектеседі. Ол сыртқы ақуыздарға убиквитин береді; жаңа субстраттар PINK1 арқылы қайта фосфорланып, жергілікті сигналды күшейтеді. Бұл бір митофузин белгісі емес, оң кері байланыс.
MFN1/2, тасымал компоненттері және басқа ақуыздар субстрат болады. Убиквитиндену қосылуды, қозғалысты және рецептор тануын өзгертеді. Сыртқы ақуызды протеасомамен жою органелланы лизосомамен жоюдан бөлек. MFN деградациясы мен тасымалдың азаюы оқшаулауға көмектесуі мүмкін, бірақ митохондрия толық жойылды деген емес.
Убиквитин қабаты органелланы таңдамалы аутофагия рецепторларымен байланыстырады. Зерттелген PINK1/Parkin жүйесінде OPTN мен NDP52 маңызды; TBK1 әрекеттесу мен күшеюді реттейді. Рецепторлар фагофор аппараты мен LC3/GABARAP-ты тартады. Оқшаулаушы мембрана жүкті қоршап өседі, аутофагосомаға жабылып, лизосомалық компартментпен әрекеттеседі.
p62/SQSTM1 убиквитинденген материалды топтастыруға және кей жауапқа қатысады, бірақ барлық органелланы LC3-ке жеткізетін жалғыз міндетті көпір емес. Lazarou рецепторлардың бөлек қызметтерін көрсетті; бір «p62–LC3» жебесі жеткіліксіз.
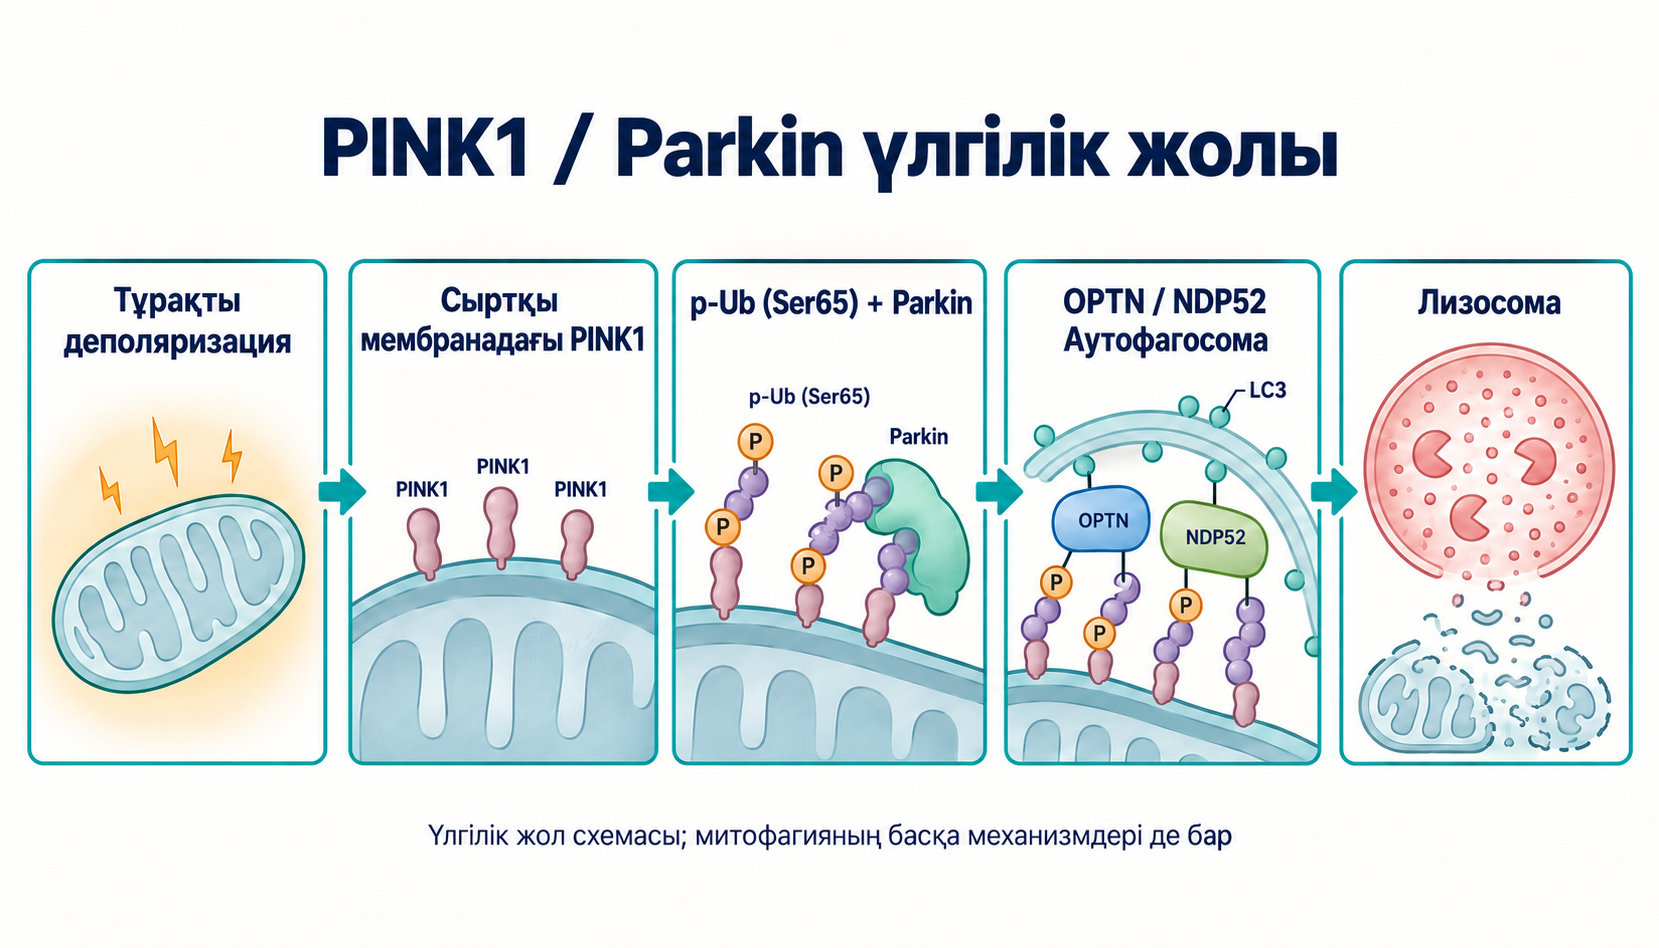
Схема тұрақты деполяризациядан лизосомалық ыдырауға дейінгі үлгілік жолды көрсетеді. Parkin міндетті емес рецепторлық жолдар және басқа механизмдер тін мен жағдайға сай жұмыс істейді. Parkin жоқ болса, барлық жаңару тоқтамайды.
Митофагияны растау үшін ағын өлшенеді: материалдың қышқыл компартментке жеткізілуі мен уақыт бойынша ыдырауы, лизосома қызметін бақылаумен бірге. LC3 дақтары, мембраналық Parkin немесе масса азаюы жеке алғанда бірмәнді емес. Лизосоманы бөгеу таңбаланған органелланы көбейтіп, аяқталған жоюды азайтады; масса жоғалуы зақым, жасуша өлімі немесе аз биогенез болуы мүмкін.
MFN2 патогендік нұсқалары Шарко–Мари–Тут 2A аксондық ауруының бір бөлігінің дәлелденген себебі. Züchner динамика ақуызын тұқым қуалайтын нейропатиямен байланыстырды. Көбіне аутосомды-доминантты, бірақ басқа генетикалық жағдайлар бар; ауырлық, басталу және қосымша белгілер нұсқа мен отбасына тәуелді.
Ұзын аксон митохондрияны жоғары сұраныс орнына жеткізіп, кері тасымалдауға немесе жергілікті жаңартуға тәуелді. Miro, TRAK, кинезин және динеин микротүтікше қозғалысын ұйымдастырады; MFN2 қосылу мен ЭПТ-дан бөлек осы жүйемен байланысты. Қозғалыс, таралу және құрам алмасу бұзылысы дисталдық резерв пен кальций буферін азайтуы мүмкін.
Нұсқалардың қызметтік фенотипі әртүрлі. Әрқайсысы KIF5 байланысын түгел үзеді, барлық дисталдық аксонды органелласыз қалдырады немесе ГТФазаны бірдей тежейді деуге болмайды. Генетика, жасуша моделі, уақыттық тасымал, қосылу және энергетика салыстырылады. Пациент жасушасындағы бір көрсеткіш жақсаруы адам жүйкесін қалпына келтіруге тең емес.
OPA1 патогендік нұсқалары доминантты көру атрофиясын туғызады; бастапқы байланысты Alexander көрсетті. Торқабық ганглиоздық жасушалары мен аксондары энергетика, криста, мтДНҚ сақтау және тасымалға сезімтал. Мұнда адам генетикасы ақуыздың себептік рөлін жүре пайда болған аурудағы бір пішіннен күштірек дәлелдейді.
Көп нұсқа функционалдық OPA1 азайтады, басқасы қасиетін өзгертеді; ауырлық пен жас өзгеше. DOA-plus есту, қозғалыс, бұлшықет және басқа жүйелік не неврологиялық белгілерді қамтуы мүмкін. Олар барлық тасымалдаушыда бірдей емес.
Ішкі қосылу мен криста бұзылысы тынысты төмендетіп, өлімге осалдықты арттыруы мүмкін. Бірақ барлық пациентте «криста ашылады — цитохром c лезде шығады — апоптоз» міндетті тізбегі жоқ. Клиникалық бағалау, нақты нұсқа және көру дисфункциясының басқа себептері қажет.
Нейрондар мен Альцгеймер модельдерінде динамика, тасымал және энергетика өзгерген. Manczak β-амилоид–DRP1 әрекетін зерттеді; tau мен сигнал киназалары толықтырады. Қысқару синапстық энергия және кальций бұзылысымен қатар жүруі мүмкін.
Өлімнен кейінгі тін, өсірілген жасуша және амилоид экспрессиясы бөлек сұрақтарға жауап береді. Корреляция гипербөліну ең алғашқы және жеткілікті оқиға екенін дәлелдемейді. Себеп пен реттілік араласу, уақыттық бақылау және функцияны қажет етеді. SNO-DRP1 дауы да бір редокс-механизмді пациенттің түпкі түсіндірмесі етуге жол бермейді.
PINK1 және PRKN патогендік нұсқалары тұқым қуалайтын паркинсонизммен байланысты, сапаны зерттеуге күшті негіз береді. PINK1–Parkin бұзылысы белгілі зақымға жауапты өзгертеді, бірақ барлық митофагияны өшірмейді. Базалық жаңару мен рецепторлық жауап сақталуы мүмкін; компенсация тінге және жағдайға тәуелді.
Кей α-синуклеин пішіндері TOM20 импорт рецепторымен әрекеттесіп, тасымалды бұзады. Di Maio биохимия мен жасуша тәжірибесін адам тінімен байланыстырды. Әр мономер TOM20-ны бірдей бөгейді немесе бұл барлық ауруды түсіндіреді деген емес.
Зақым мтДНҚ шығуы, cGAS–STING не NLRP3 арқылы қабынуға ықпал етуі мүмкін. Әр жолға жеке белсену шарты мен тікелей өлшеу қажет. Кез келген Parkin ақауынан тұрақты қабыну мен дофамин нейроны өліміне міндетті сызық жасауға болмайды.
Метаболизм модельдерінде фрагментация липид артықтығымен, тыныспен және инсулин жауабымен қатар кездеседі. Пішін рецептор–IRS–PI3K–AKT сигналын, глюкоза тасымалын немесе тін сезімталдығын алмастырмайды. IRS1 бір серинін, соның ішінде кеміргіш Ser307-ні өлшеу түр мен жағдайға тәуелді, әмбебап тежеу дәлелі емес.
β-жасушада метаболизм глюкозаны ATP/ADP, KATP жабылуы, плазмалық деполяризация, кальций және инсулин секрециясымен байланыстырады. Динамика әсер етуі мүмкін, бірақ ұзындық секрецияны өзі анықтамайды. Энергетика, кальций және бөлінген инсулин өлшенеді.
Ишемия–реперфузияда энергия сарқылуы, кальций артықтығы, редокс-күй, оттегі оралғандағы ROS және өткізгіштік маңызды. DRP1 кей модельде қатысады, бірақ инфаркт көлемін жалғыз анықтамайды. mdivi-1 қорғанысын абайлап түсіндіреді: кешен I ROS-ты DRP1-ден тәуелсіз өзгерте алады.
mdivi-1 — Cassidy-Stone бөліну аппаратын зерттегенде анықтаған хиназолинон туындысы. Оны тәжірибелік тежегіш ретінде қолданған, бірақ Bordt кешен I-ге қайтымды әсерін көрсетті. ROS азаюы немесе жасуша қорғанысы адам DRP1-ін тікелей таңдамалы тежегенді дәлелдемейді. Электрон тасымалын тежеу жұмсақ ажыратуға тең емес: тыныс, потенциал және протон өткізгіштігі ажыратады.
Себепті тексеру үшін тәуелсіз DRP1 генетикалық әсері, тыныс бақылауы және ақуыз функциясын қалпына келтіру пайдалы. Мішенесіз сақталған әсер басқа механизмді қажет етеді. Жануардағы жақсы пішін немесе аз зақым адам емдеу тәртібін анықтамайды.
P110 — Qi зерттеген, стресс кезінде DRP1–Fis1 әрекетін шектеуге арналған тәжірибелік пептид. DLLPRGT тізбегін қамтиды; кейде жасушаға өткізетін TAT-пен қолданылады. Нақты модельде патологиялық фрагментация мен зақым азайған. Таңдамалылық әдіс, концентрация және уақыт бойынша тексеріледі; барлық тіндегі физиологиялық бөліну мен митофагия түгел сақталады деген кепіл жоқ. Бұл клиникалық P110 тағайындау хаттамасы емес.
M1 фенотиптік жасуша скринингінде қосылу промоторы ретінде зерттелді. Wang желіні химиялық өзгертуге болатынын көрсетті. Гидразон туындысының сипаттамасы реагентті анықтайды, бірақ жалғыз тікелей ақуыз мішенесін дәлелдемейді. Ішінара ақауда түтікшелі пішіннің оралуы кез келген MFN1/MFN2/OPA1 ақауын түзету емес.
Franco конформациялық әрекеттерді өзгертіп митофузин белсендіруді ұсынды; Rocha CMT2A доклиникалық моделінде MFN2 агонистерін зерттеді. B-S8 немесе 8015 топтары нақты құрылым мен тәжірибе бойынша ажыратылады, бір дәріге біріктірілмейді. Ашық конформация, trans әрекеті, тасымал және қосылу байланысты, бірақ бөлек тексеріледі.
Органелла қозғалысы мен жануар мінезінің жақсаруы трансляциялық қызығушылық тудырады. Клиника үшін жүйкедегі экспозиция, уақыт, уыттылық, нұсқа және тұрақты функционалдық нәтиже керек. Таңдалған тышқан моделі адамдағы салдануды қайтару немесе барлық нұсқаның бірдей жауабын дәлелдемейді. Үнемі қосылуды күшейту де пайдалы емес: жойылуы керек бөліктерді оқшаулауға кедергі келтіруі мүмкін.
Қозғалыс энергия сұранысы мен жаңаруды өзгертеді. AMPK, p38 MAPK және PGC-1α бейімделуге қатысады, бірақ жедел жауап апталық жаттығудан бөлек. Тәжірибеде жүктеме бөліну мен митофагияны белсендіріп, кейінгі функция жақсаруымен үйлесуі мүмкін. Жаттығудан кейін DRP1 өсуі автоматты зақым емес, ал ұзару пайдалы жаттығуды өзі дәлелдемейді.
Көбіне «2-аймақ» деп аталатын орташа аэробтық жұмыс физиологиялық мәнге ие, бірақ әр аймақ жүйесі бір лактат шегіне дәл келмейді. Оны әр адамның MFN2/OPA1 қалпына келтіруінің жалғыз дәлелденген қарқыны етуге негіз жоқ. Жалпы көлем, төзімділік, дайындық және өлшенген аэробтық нәтиже маңызды; бір ген экспрессиясы оларды алмастырмайды.
Ұйқы, тамақ және қозғалыстың тәуліктік тәртібі метаболизмге әсер етеді. Бірақ жалпы циркадтық байланыс DRP1 белсенуінің сағаттық кестесін немесе адамдағы міндетті гиперқосылуды дәлелдемейді. Тиісті тін мен уақытта өлшеу қажет.
Gomes қорек тапшылығында цАМФ–PKA және DRP1 арқылы ұзаруды модельде көрсетті. Бұдан 14–16 сағат паузадан кейін адам желісі міндетті қорғалады деген шек шықпайды. Орта құрамы, тін, ұзақтық және лизосомалық қабілет жауапты өзгертеді. Калория шектеу, 16/8 және OMAD әртүрлі; механизм жеке пайда мен төзімділікті анықтамайды.
Зат редокс-күй, аутофагия маркері немесе транскрипцияны өзгертіп, MFN2-ні тікелей белсендірмеуі не DRP1-ді тежемеуі мүмкін. Кесте бастапқы топтарды сақтайды, бірақ ұсынылған дозалар «клиникалық емдік аралық» емес: динамика ауруын емдеу үшін ондай аралық бекітілмеген.
| Зат | Зерттелген байланыс | Механизм дәлелдемейтін нәтиже |
|---|---|---|
| Уролитин A | Эллагитаннин метаболиті; модельдік митофагия және адам биомаркерлері | Әр адамда PINK1/Parkin, қосылу немесе күш міндетті қалпына келмейді |
| Спермидин | Полиамин; аутофагия және ацетилдену модельдері | Модель кардиоқорғанысы мен ұзақ өмір клиникалық OPA1 қалпына келуін дәлелдемейді |
| Ресвератрол / птеростильбен | Редокс-сигнал; кей модельде SIRT1–PGC-1α | Тікелей белсену мен DRP1 орны жүйеге тәуелді; бір заттың әсері екіншісіне көшірілмейді |
| Коэнзим Q10 / убихинол | I/II мен III арасында электрон тасымалы; мембраналық редокс | Әмбебап OMA1/YME1L бөгеуі немесе кез келген тапшылықта динамика қалпына келуі дәлелденбеген |
| Астаксантин | Липидпен әрекет және антиоксиданттық модельдер | Қабаттағы орналасу барлық криста, OPA1 кешені немесе адам mPTP жабылуын дәлелдемейді |
Andreux адамда уролитин A мен митохондриялық әсерге сай молекулалық өзгерістерді зерттеді. Бұл барлық тінде аяқталған митофагияны көру немесе нейропатия мен жасқа байланысты әлсіздікті емдеу емес. Нәтиже популяция, мерзім және соңғы нүктеге тәуелді; маркер өсуі күш өсуіне тең емес.
Eisenberg спермидиннің модельдік аутофагиясы мен жүрек қорғанысына қызығушылықты қолдайды. EP300 арқылы тікелей OPA1 деацетилденуіне қысқарту артық тұжырым: мішене, ағын және криста бөлек өлшенеді. Ресвератрол SIRT1 әсері субстрат пен талдауға тәуелді; PGC-1α/ERK клиникалық динамикаға автоматты көшірілмейді.
Q10 тыныс тізбегіне қатысады, бірақ OMA1/YME1L-дегі «мырыш иондарын тотығудан ыдыраудан қорғау» химиялық қате. Астаксантиннің мембраналық моделін, функциясын және клиникалық нәтижесін астаксантин, липид қабаты және асқын тотығу мақаласы ажыратады. Осы механизмдер қосылуды қалпына келтіретін біріктірілген хаттаманы дәлелдемейді.
Тұқым қуалайтын бұзылыс клиникалық фенотип, отбасы анамнезі және генетикамен бағаланады. Панель немесе кең секвенирлеу міндетке сай MFN2, OPA1, DNM1L, MFF, PINK1, PRKN қамтуы мүмкін. Нұсқа жіктеліп, фенотиппен және қажет болса сегрегациямен салыстырылады; мағынасы белгісіз нұсқа ауруды өзі растамайды.
Зерттеуде тірі қосылу/бөліну бейнесі, L-/S-OPA1, потенциал бояғышы және оттегі тұтыну қолданылады. OCR берілген жағдайда тынысты, ECAR тек гликолиз емес сыртқы қышқылдануды көрсетеді. Бұлар механизм үшін пайдалы, бірақ қан мононуклеарының бір сынамасынан әмбебап клиникалық панель жасамайды. Қолжетімді жасуша нейронды, торқабықты немесе бұлшықетті міндетті сипаттамайды.
3-Нитротирозин, малон диальдегиді және айналымдағы бос мтДНҚ арнайы емес. Материал көзі, өңдеу, қабыну және зақым әсер етеді. Олар «митофагиялық күйреуді» немесе нақты DRP1 қалдығын, OMA1 не митофузин ақауын анықтамайды.
Араласу күтілетін әсерін атауы керек: аяқталған бөліну, матрикс алмасуы, тасымал, ағын, тыныс резерві немесе тін функциясы. Үйлескен әдістер мен тәуелсіз мішене өзгерісі бір ұзын суреттен күштірек. Клиникалық зерттеуде пациент үшін маңызды нәтиже мен қауіпсіздік қажет.
MFN2, OPA1 және DRP1 пішінді энергия, тасымал және жаңарумен байланыстырады. Мақсат максимал қосылу немесе тұрақты бөліну тежеуі емес. P110, агонистер мен метаболизм араласулары бөлек тексеріледі; доклиникалық механизмдерді біріктіру дәлелденген ем жасамайды. Жұмыс істейтін жасуша тін сұранысына сай желіні өзгертіп, зақымды жою қабілетін сақтайды.
Бұл берілген қолжазба мен бастапқы әдебиетке негізделген сыни нарративтік шолу. 2026 жылғы 8 қазандағы жергілікті редакциялық дайындықта даулы механизмдер мен қате библиографиялық байланыстардың бастапқы жазбалары нысаналы тексерілді: MFN2–ЭПТ, DNM2 қажеттілігі, SNO-DRP1, mdivi-1 және кешен I, Mgm1/OPA1, PINK1 субстраттары, аутофагия рецепторлары, OPA1 ацетилденуі және кей қорек/жүктеме модельдері. Барлық бастапқы сілтемені жаңадан толық тексердік деп мәлімделмейді.
Құрылымдық конструкция, жасуша мен жануар, адам генетикасы және биомаркер сынақтары ажыратылды. Әмбебап шектер, расталмаған емдік доза және нақты клиникалық уәде схемадан қорытындыға көшірілмеді. Бұл жүйелі іздеу, GRADE немесе сыртқы рецензия емес. Схемалар модельді түсіндіреді, ағын немесе тін қызметін өлшеуді алмастырмайды.
Жоқ. Бөліну митоз, тасымал және бейімделуге қатысады; қызмет пен кейінгі тағдыр бағаланады, тек пішін емес.
Жоқ. Кешен I әсері көрсетілген; қорғаныстың механизмі тәуелсіз тексерілуі тиіс.
Жоқ. Басқа рецепторлық және тіндік жолдар бар; Parkin тартылуы да аяқталған лизосомалық жоюды дәлелдемейді.
Тәжірибелік механизмдерді біріктіру клиникалық тиімділікті растамайды. Нәтиже мен қауіпсіздік тиісті зерттеуде бағаланады.