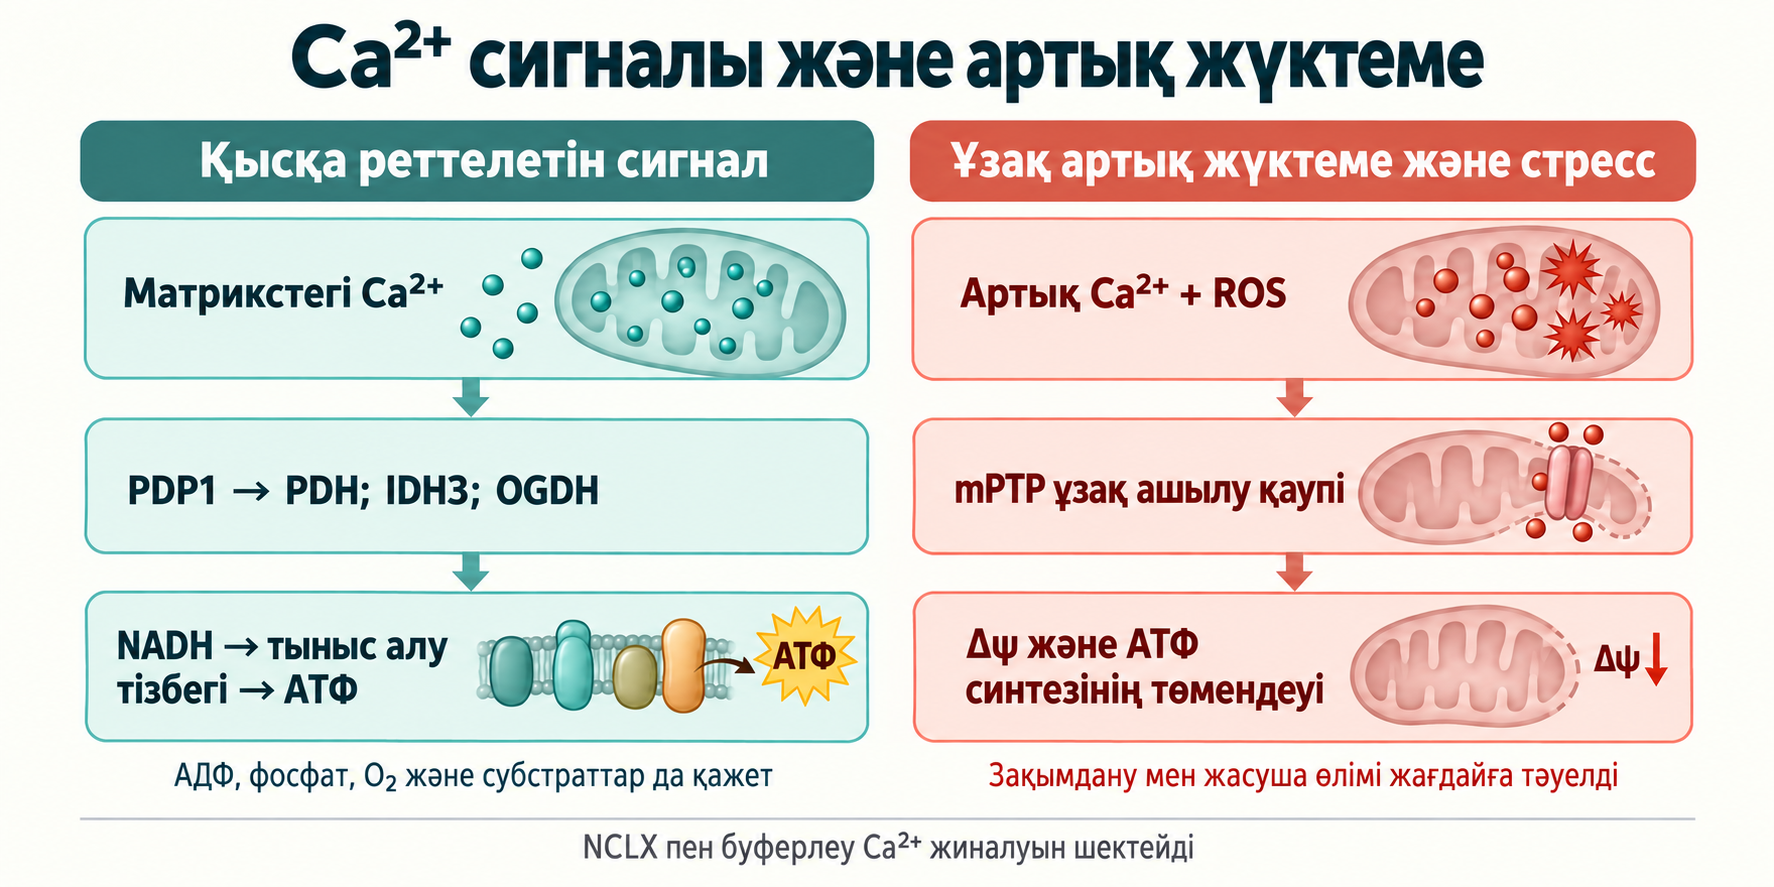
Кальций жасушаның жұмысын митохондриялардың энергетикалық жауабымен байланыстырады. Бұлшықет жиырылғанда, нейрон сигнал бергенде немесе секреция кезінде Ca²⁺ мөлшерінің қысқа өсуі матрикстегі тотықсыздандырғыш эквиваленттердің түзілуін жылдамдата алады. Кальций екі мембранадан өтіп, оның енуі шығарылумен, буферлеумен және АТФ сұранысымен үйлесуі керек.
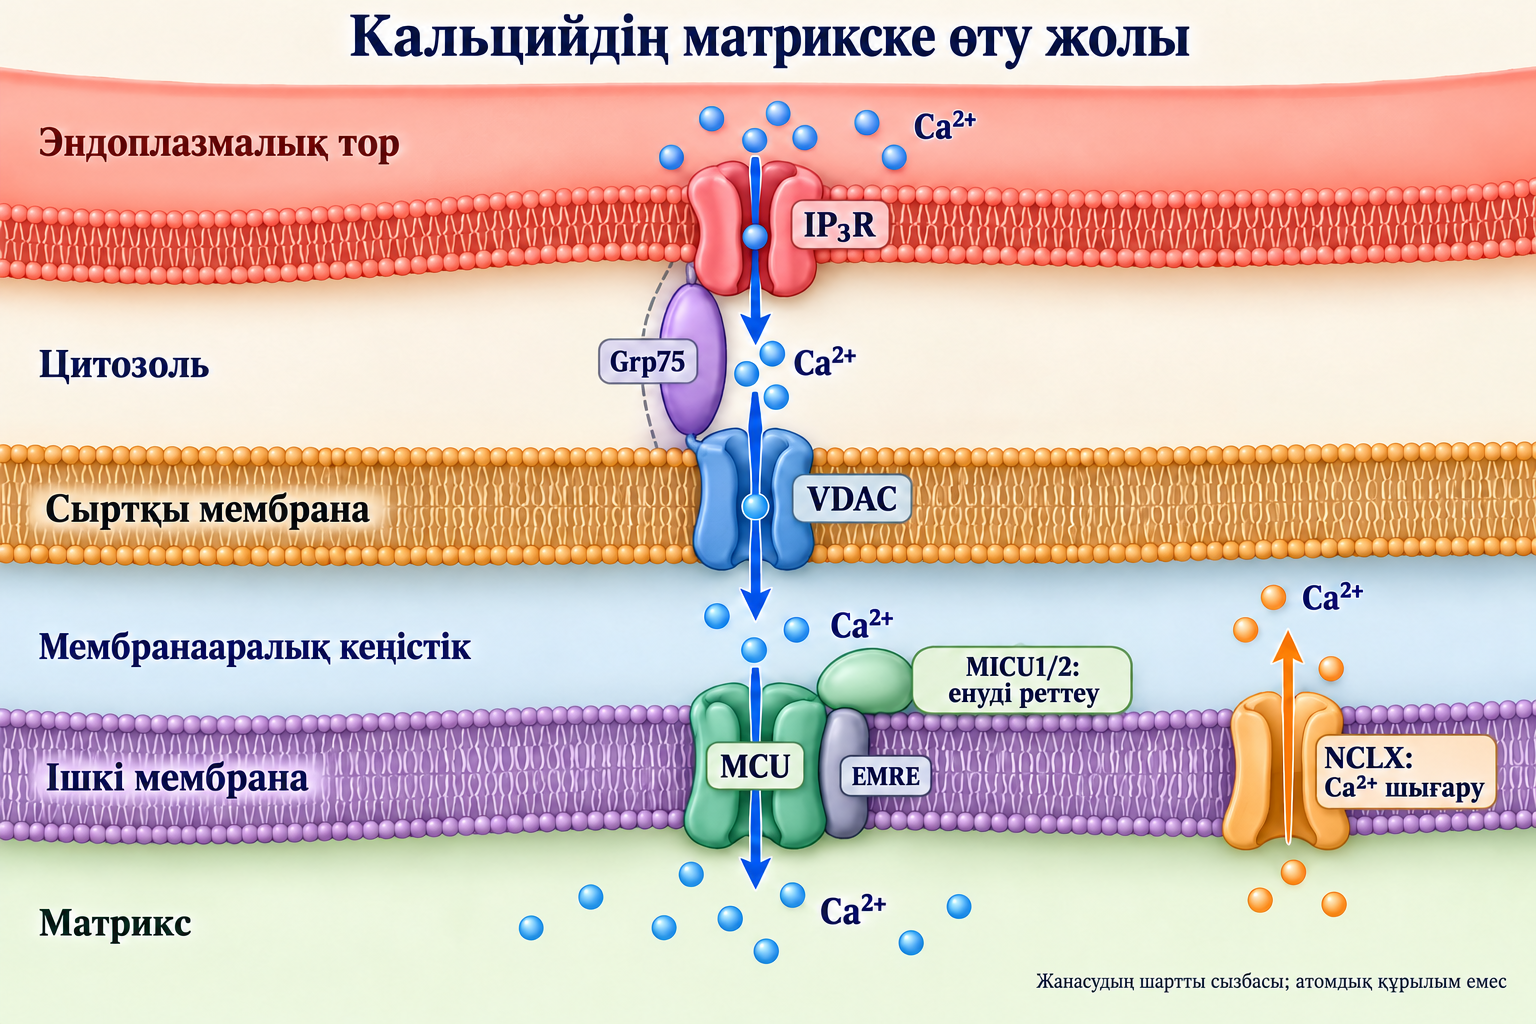
MCU ішкі мембранада арна түзеді. MICU ақуыздары, EMRE, эндоплазмалық тормен жанасулар, NCLX және тыныс алу тізбегі нәтижені бірге анықтайды. Қолайсыз жағдайда ұзақ артық жүктеме зақым қаупін арттырады; пайдалы сигналды тек кальций мөлшерімен немесе MCU экспрессиясымен сипаттау жеткіліксіз.
Тасымалдың электрохимиялық негізі
Сигнал және жүктеме
Тыныштықтағы цитозольдің бос Ca²⁺ концентрациясы жиі 50–100 нМ шамасында, ал жасушадан тыс иондалған кальций миллимолярлық ауқымда болады. Бұл бағдарлар жасуша мен өлшеуге тәуелді. Арналар, сорғылар және буферлер импульстерді қалыптастырады, сондықтан орташа концентрация митохондрияға жергілікті әсерді көрсетпейді.
Матрикстегі бос және жалпы кальцийді ажырату қажет. Ақуыздармен, метаболиттермен және фосфатпен байланысу бос фракцияны дәл сондай дәрежеде өсірмей жинақталуға мүмкіндік береді. Субмикромолярлық деңгейден кез келген асу бірден қайтымсыз тұз тұнбасын немесе жасуша өлімін туғызбайды.
Ішкі мембрана потенциалы
Тыныс алу тізбегі протондардың электрохимиялық градиентін түзеді. Матрикс мембранааралық кеңістікке қатысты әдетте теріс; Δψ үшін −160…−180 мВ жиі келтіріледі, бірақ ұлпаға, жүктемеге және әдіске тәуелді. MCU оң зарядты Ca²⁺ енуіне электрлік құрамдасты қолданады және өзі АТФ гидролиздемейді.
Δψ = ψматрикс − ψмембранааралық кеңістік, ΔpH = pHматрикс − pHмембранааралық кеңістік деп анықталса, протонның енуіне арналған өзгеріс:
ΔμH+=FΔψ−2.303RTΔpH.
F — Фарадей тұрақтысы, R — газ тұрақтысы, T — абсолют температура. Шартты 5 нм қалыңдықта 0,18 В айырмасы шамамен 3,6 × 10⁷ В/м немесе 360 кВ/см өріске сәйкес келеді. Бұл нанометрлік аралықтағы бағалау, бүкіл ағзаның кернеуі де, тасымал жылдамдығын өлшеу де емес.
Нернст есебінің шегі
Екі валентті катион үшін идеал тепе-теңдікте:
Δψ=2FRTlnainaout,aoutain=exp(−RT2FΔψ).
37 °C-та бір валентті ионның ондық түріндегі бөлім шамамен 61,5 мВ. Ca²⁺ үшін −180 мВ жағдайында белсенділіктер қатынасы 7 × 10⁵ маңында болады. Сыртқы бос концентрация 100 нМ болса, ішкі гипотетикалық мән шамамен 70 мМ шығар еді.
Бұл қозғаушы күшті көрсетеді, бірақ қалыпты бос матрикстік кальцийді болжамайды. Тірі митохондрия мұндай тепе-теңдікте емес: арна реттеледі, кальций шығады, буферлермен байланысады, потенциал өзгереді. Барлық процесті бір тепе-теңдік санымен алмастыру тұрақты артық жүктеме туралы жаңсақ түсінік береді.
Физиологиядан молекулалық анықтауға
Оқшауланған митохондриялардың кальций сіңіруі 1960-жылдары зерттелді. Kirichok әріптестерімен 2004 жылы митопласт токтарын өлшеп, жоғары селективті арнаны көрсетті. MICU1 2010 жылы, ал MCU Baughman және De Stefani тәуелсіз жұмыстарында 2011 жылы анықталды. Электрофизиология, генетика және құрылымдық әдістер бірін-бірі толықтырады, бірақ өзара алмастырылмайды.
Арна мен реттеуші кешеннің құрылысы
MCU тетрамері және топология
Адам MCU ізашары 351 аминқышқыл қалдығынан тұрады. Импорттан кейін матрикске қараған N-соңғы домен, екі трансмембраналық бөлік және жинақталу спиральдары ішкі мембрана кешенін ұйымдастырады. Төрт MCU суббірлігі пора түзеді: TM2 өткізетін жолға, TM1 липидтерге жақын. Екі бөліктің арасындағы ілмек мембранааралық жаққа шығады.
6DNF — адам голокешені емес, Cyphellophora europaea саңырауқұлағының MCU құрылымы; Baradaran 2018 ажыратымдылығы 3,2 Å екенін көрсетті. Wang 2019 еңбегіндегі 6O58 — 3,8 Å ажыратымдылықтағы адам MCU–EMRE арналарының димері, барлық MICU ақуыздарын қамтымайды. Fan 2020 сипаттаған 6WDN — төмен Ca²⁺ жағдайындағы адам MCU–EMRE–MICU1–MICU2 голокешені, 3,2 Å. Түр, құрам және күй айырмасы маңызды.
DIME сүзгісі және селективтілік
Адам ізашарының нөмірленуі бойынша DIME құрамына Asp261, Ile262, Met263, Glu264 кіреді. Қышқыл қалдықтар селективті сүзгінің маңызды элементтерін түзеді. Олардың орналасуы Ca²⁺ таңдалуын және рутений блокаторларын түсіндіруге көмектеседі, бірақ электростатикалық сызба толық өткізгіштікті сипаттамайды.
Ион сүзгімен және гидратациялық қабықпен әрекеттеседі. Көпионды модельдер берік байланыс пен жылдам өтудің үйлесуін қарастырады. Гидратация энергиясы термодинамикалық шкалаға тәуелді; ол MCU байланысуының әмбебап тұрақтыларын немесе жалғыз дәлелденген ион ығыстыру механизмін бермейді.
MCUb және кешен құрамы
MCUB/CCDC109B кодтайтын MCUb — кешенге қосылғанда кальций өткізгіштігін төмендете алатын паралог. Бұл эксперименттік құрам реттеуі, барлық ұлпадағы міндетті екі MCU және екі MCUb тетрамері емес. Экспрессия мен кешен қайта құрылуы даму, жарақат және бейімделу кезінде өзгереді.
Пора аймағындағы тізбек айырмасының әсері мутагенез және ток өлшеуімен тексеріледі. Транскрипттер қатынасы жүректегі ағынды өздігінен анықтамайды; MCUb өсуі пациентті қорғауды дәлелдемейді.
EMRE және MICU байланысы
EMRE/SMDT1 — адам MCU тиімді тасымалына қажет шағын бір өтімді мембраналық ақуыз. Оның әрекеттесулері функционалдық кешенді қолдайды; мембранааралық жақтағы қышқыл C-соңғы аймақ MICU байланысына қатысады. Sancak 2013 бір ғана пора суббірлігін анықтау сүтқоректілер механизмін толық ашпайтынын көрсетті.
EMRE талабы барлық ағзаларға ортақ емес. Кейбір саңырауқұлақ MCU ақуыздары онсыз жұмыс істейді. Құрылымдарды салыстыру эволюциялық ерекшелікті ескеруі керек.
Липидтер және кардиолипин
Ішкі мембрана электрлік градиентпен бірге липидтік орта береді. Кардиолипин түрлі митохондриялық ақуыздар мен мембраналардың ұйымдасуына әсер етеді; липид өзгерісі жинақталу мен тасымалды өзгерте алады. Бірақ әр кардиолипин бұзылысы тек MCU арқылы әсер етеді деуге болмайды.
Барт синдромында, липид тотығуында және мембрана тұрақсыздығында тыныс алу кешендері, кристалар мен басқа тасымалдаушылар маңызды. «MCU желімі» — тек жуық метафора, нақты кешенді өлшеуді алмастырмайды.
Компонент
Орналасуы
Қызметі
Шектеуі
MCU
Ішкі мембрана; NTD матриксте
Ca²⁺ ену порасы
Потенциал мен реттеушілерге тәуелді
MCUb / MCUB
Ішкі мембрана
Құрам және төмен өткізгіштік
MCU-мен әмбебап қатынасы жоқ
EMRE / SMDT1
Ішкі мембрана
Функциялық қолдау, MICU байланысы
Түрге байланысты
MICU1
Мембранааралық жақ
EF-hand сенсоры, ену реттеуі
Шек жағдайға тәуелді
MICU2
Мембранааралық жақ
MICU1-мен реттеу
Жеке пора емес
MICU3
Мембранааралық жақ
Кей ұлпада жауапты күшейту
MICU2-ні әмбебап алмастырмайды
NCLX / SLC8B1
Ішкі мембрана
Na⁺/Ca²⁺ алмасу, шығару
Ион градиентіне тәуелді
VDAC1
Сыртқы мембрана
Ca²⁺ және метаболиттердің өтуі
Ішкі мембрана арнасы емес
IP₃R
Эндоплазмалық тор мембранасы
Ca²⁺ босату
Жанасу геометриясы маңызды
Grp75 / HSPA9
Бірнеше жасушалық пул
Шаперон және жанасу кешені
Қосымша кальций порасы емес
Cyclophilin D / PPIF
Матрикс
mPTP сезімталдығын реттеу
mPTP құрамы әлі зерттелуде
MICU: кальций сигналын тану
Төмен экспозициядағы EF-hand сенсорлары
MICU1 және MICU2 кальций байланыстыратын EF-hand домендеріне ие. Төмен Ca²⁺ кезінде қажетсіз енуді шектейді; жергілікті өсу олардың күйін өзгертіп, тасымалды қолдайды. Бұл бір әмбебап шектен төмен базалық ағын мүлде нөл дегенді білдірмейді.
Кешен құрамы, Mg²⁺, потенциал, ұлпа және әдіс әртүрлі. «1 мкМ-дан төмен жабық» немесе «дәл 10 мкМ-де ашылады» белгілі жүйені сипаттайды, клиникалық шекара емес.
Гетеродимер және порамен байланыс
MICU1/MICU2 реттеуші жұп түзеді. Суббірліктер арасындағы әрекеттесу, соның ішінде дисульфид байланысы, оны ұйымдастырады; нөмірлеу түр мен жетілген не ізашар тізбекке тәуелді. Төмен және жоғары кальций құрылымдары MICU-дың пораға қатысты орны ауысатынын көрсетеді.
Оң беттер қышқыл кіреберіспен және кешен серіктестерімен байланысады. Бір модельдегі Lys/Arg тізімі барлық құрылымға көшірілмейді. Механикалық «қақпақ» бейнесі де толық емес: қолжетімділік, сезімталдық және өткізгіштік байланысты, бірақ бөлек қасиеттер.
Кооперативтілік және Хилл теңдеуі
Сигмоидалық тәуелділікті жуықтап көрсетуге болады:
J(C)=JmaxK0.5n+CnCn.
C — тәжірибелік компартмент концентрациясы, K₀․₅ — жартылай жауап концентрациясы, n — эмпирикалық Хилл коэффициенті. n шамамен 2,5–3 және микромолярлық K₀․₅ кейбір өлшеуді сипаттайды. Коэффициент байланысқан ион санына автоматты тең емес және фазалық ауысуды дәлелдемейді.
MICU3 және ұлпалық бейімдеу
MICU3 MICU1-мен жұп құрып, шағын сигналға жауапты күшейте алады. Бұл энергетикалық сұранысы тез өзгеретін нейрондарда маңызды. Patron 2019 мұны тәжірибелік жүйелерде көрсетті.
MICU3 — MICU2-нің балама изоформасы емес, жеке ақуыз. Оның болуы барлық нейрон мен бұлшықетте бірдей бірнеше есе күшеюді білдірмейді. Жанасулар, буферлер, импульс жиілігі және митохондрия күйі де әсер етеді.
Тұқым қуалайтын бұзылыстар
Адам MICU1-інің екі аллельдегі ақаулары миопатиямен және неврологиялық белгілермен, соның ішінде даму кідірісі мен қимыл бұзылысымен байланысты. Олар шек пен динамиканың маңызын көрсетеді. Жасушалық жоғалту моделі механизмді ашады, бірақ әр пациентке бірдей фенотип белгілемейді.
Созылмалы дисрегуляция барлық митохондрияның міндетті кальцификациясына тең емес. Тұқым қуалайтын ауруда вариант, фенотип және функционалдық дерек қажет; жай шаршау MICU ақауын анықтамайды.
Эндоплазмалық тор жанасулары және жергілікті берілу
Геометрия және MAM ұғымы
Жанасу аралығы жиі ондаған нанометрмен өлшенеді. 10–30 нм кейбір жанасуларға бағдар, жасуша мен әдіске тәуелді. MAM бастапқыда митохондриямен байланысты мембраналық фракцияны білдіреді; биохимиялық бөліп алу мен микроскопиялық анықтау толық сәйкес емес.
Жанасулар липид алмасуына, аутофагияға және сигнал ұйымдасуына қатысады. Олардың ауданы барлық ұлпада бірдей үлес емес. Көбірек жанасу міндетті түрде жақсы энергиямен қамтамасыз етуге әкелмейді: ұзақ не шамадан тыс берілу жүктемені арттырады.
IP₃R, Grp75 және VDAC
IP₃R тордан кальций босатады. Grp75/HSPA9 сыртқы мембрана VDAC1-імен функционалдық байланысқа қатысады. Кальций мембранааралық кеңістікке жетіп, ішкі мембрананы MCU арқылы өтеді. Бұл бөлек ақуыздар мен мембраналар, бір тұтас түтік емес.
Grp75 бірнеше пулда, соның ішінде матриксте болатын шаперон. Жанасу пулы бүкіл ақуызды тек цитозольдік көпір етпейді. Бұлшықетте рианодин рецепторлары арқылы саркоплазмалық тордан босату да маңызды. Бір конфигурация барлық жанасуды қамтымайды.
Микродомен және орташа цитозольдік мән
Ашық босату арнасының жанында Ca²⁺ қысқа уақытта ондаған микромолярға жетуі мүмкін, ал орташа цитозольдік деңгей төмен болады. Бұл микромолярлық сезімтал MCU жауабын түсіндіреді. 20–50 мкМ кей жағдайға мысал, әр жанасудың міндетті мәні емес.
Диффузия, байланысу және арнаның жабылуы ұзақтықты анықтайды. Жергілікті экспозиция, қашықтық және импульс пішіні орташа саннан маңыздырақ болуы мүмкін. Микродомен кәдімгі физикаға бағынады және термодинамиканы жоймайды.
MFN2, PACS2 және ұйымдастырушы ақуыздар
MFN2 митохондрия динамикасы мен тор жанасуларына қатысады. Оның байланыстырушы рөлі de Brito 2008, Filadi 2015, Naon 2016 жұмыстарында әртүрлі нәтижемен талқыланды. Әдіс, жасуша және жақындық анықтамасы MFN2 жойылса жанасу әрқашан азаяды деуге жол бермейді.
PACS2 және BAP31–FIS1 органеллалар ұйымдасуы мен стресс жауабына қатысты. Олар бір міндетті, тұрақты аралықты қаңқа түзбейді. MFN2 варианттарымен байланысты Шарко—Мари—Тут 2A ауруын тек кальций берілуімен түсіндіру жеткіліксіз: тасымал, бірігу және басқа функциялар маңызды.
Кальций көбіне PDP1 арқылы E1α дефосфорлануын және кешен белсенділігін арттырады. PDK1–4 кері бағытта әрекет етеді. Ізашардағы Ser293/300/232 сигналдық пептид алынғаннан кейінгі Ser264/271/203-ке сәйкес; нөмірлеуді араластыру жалған қайшылық береді.
Mg²⁺ фосфатаза катализіне, Ca²⁺ PDP1-дің кешенмен байланысына қатысады. PDP2 бірдей кальцийлік қосқыш емес. Жеке тәжірибенің активация тұрақтылары әмбебап болмайды. E2 липоил топтары ауыз арқылы қабылданатын липой қышқылына тең емес; R-ALA және PDC туралы материал осы айырманы түсіндіреді.
NAD-тәуелді IDH3
IDH3 2-оксоглутарат түзеді:
Isocitrate+NAD+⟶2Oxoglutarate+CO2+NADH+H+.
Оны NADP-тәуелді IDH2-ден ажырату керек. Кальций, ADP және субстратқа көрінерлік аффиндік циклді жүктемеге сәйкестендіреді. Адам ферментінің суббірлік құрамын құрылымдық бірлік пен жинақталу күйіне қатысты сипаттайды, барлық түрге бір формуламен емес.
Көрінерлік Kₘ-нің миллимолярдан субмиллимолярға түсуі белгілі жағдайға жатады. Ca²⁺ ағынды әрқашан бірдей еселемейді: субстраттар, NADH/NAD⁺, ATP/ADP және кейінгі реакциялар да маңызды.
2-Оксоглутаратдегидрогеназа кешені
OGDH/OGDC тотыға декарбоксилденуді жүзеге асырады:
Кальций субстратқа жауапты күшейте алады; классикалық еңбектер көрінерлік Kₘ азаюын сипаттады. Бұл PDK/PDP қосқышы емес. Осы нақты механизмнің жоқтығы барлық посттрансляциялық модификация жоқ дегенді білдірмейді.
ΔG°′ шамамен −33,5 кДж/моль — стандартты бағдар; шынайы ΔG метаболит белсенділігіне тәуелді. NADH және сукцинил-CoA ағынды шектейді, кешен редокс-күйге сезімтал. Ол тек Ca²⁺ басқаратын шексіз «қозғалтқыш» емес.
ARALAR, CITRIN және малат-аспартат жүйесі
ARALAR/SLC25A12 және CITRIN/SLC25A13 — аспартат пен глутамат тасымалдаушылары, аденин нуклеотидтерінің тасымалдаушылары емес. Реттеуші EF-hand аймақтары мембранааралық жаққа қарап, матрикстен тыс кальцийге жауап береді. Метаболизм реттеуі MCU-дан өткен иондармен шектелмейді.
Малат-аспартат жүйесі цитозольдік NADH тотықсыздандырғыш эквиваленттерін метаболит алмасуы арқылы береді. NADH молекуласы ARALAR/CITRIN жүгі ретінде мембранадан өтпейді. Ұлпалық таралу және серіктестер қолжетімділігі тыныс алуға үлесті анықтайды.
Тыныс алу, АТФ-синтаза және алдын ала реттеу
NADH түзілуі артса, оттек, ADP, фосфат және субстраттар болғанда электрон ағыны мен АТФ қолдау табады. Алдын ала жауап энергетикалық сұраныстың кері байланысын толықтырады. Кальций АТФ тұтынуды да белсендіреді; пайдалысы — өндіріс пен шығын үйлесімі.
Бұл Ca²⁺ IF1-ді әмбебап ығыстырып, роторды әрқашан жылдамдатады деген механизмді дәлелдемейді. IF1, pH, потенциал және жұмыс бағыты бөлек реттеледі. Көп еселі жүктемеде ATP сақталуы нақты тәжірибе нәтижесі, барлық жасушаның міндетті қасиеті емес.
Нысана
Ca²⁺ сезілетін жер
Энергетикалық байланыс
Негізсіз автоматты қорытынды
PDP1 → PDC
Матрикс
E1α дефосфорлануы
Барлық PDP бірдей сезімтал
IDH3
Матрикс
NADH түзетін реакция
IDH2 механизмі дәл сондай
OGDH / OGDC
Матрикс
2-оксоглутаратқа жауап
PDK/PDP PDC сияқты реттейді
ARALAR / CITRIN
Мембранааралық EF-hand
Малат-аспартат жүйесі
NADH немесе нуклеотид тасиды
Тыныс алу және АТФ-синтаза
Біртұтас жауап
Өндірісті сұраныспен үйлестіру
Ca²⁺ ADP, O₂, субстратты алмастырады
Артық жүктеме, буферлер және зақым
Ишемия, реперфузия және эксайтоуыттылық
Оттек тапшылығы АТФ түзілуін төмендетіп, ион гомеостазын бұзады. Na⁺, pH және потенциал өзгерісі цитозольдік жүктемені өсіре алады; кей жағдайда плазмалық Na⁺/Ca²⁺ алмастырғыш бағыты ауысады. Бұл әр пациентке бір концентрация емес, жағдайлық механизм.
Қан ағыны қалпына келгенде pH, тыныс алу, Δψ және ROS бірге өзгереді. Қозғаушы потенциалдың қайтуы жүктеме әлі бар кезде енуді күшейтеді. Нейрондарда NMDA шамадан тыс белсенділігі және басқа Ca²⁺ көздері эксайтоуыттылыққа қатысады. Ұзақтық, орын, буфер және энергия маңызды.
Фосфат және химиялық модель шегі
Фосфат кальцийді ұстап қалуға көмектеседі. Ықтимал стехиометриялар:
Масса мен заряд теңгерімі гранулалар әрқашан жетілген гидроксиапатит екенін дәлелдемейді. pH, Mg²⁺ және органикалық компоненттерге тәуелді аморфты кешендер қарастырылады. Буферлеу бос фракцияны азайтып, жалпы мөлшерді өсіре алады. «99% байланысқан» өлшеу жағдайынсыз әмбебап тұжырым емес.
mPTP және Cyclophilin D
mPTP ұзақ ашылса, ішкі мембрана селективтілігі бұзылып, Δψ және АТФ түзілуі төмендейді. Кальций, тотығу және басқа факторлар ықтималдықты өзгертеді. Cyclophilin D/PPIF сезімталдықты реттейді; ол тек тікелей кальций сенсоры болатын міндетті пора суббірлігі ретінде анықталмаған.
ANT және АТФ-синтазаға қатысты модельдер, оның түрлі жинақтары зерттелуде. Қысқа өткізгіштік оқиғасы тұрақты патологиялық ашылуға тең емес. 1,5 кДа шамасындағы молекулалар өтуі туралы операциялық сипаттама бір нақты пора геометриясын бермейді.
Мембрана зақымынан апоптозға
Ішкі мембрана ұзақ бұзылса, ісіну және сыртқы мембрана зақымы болуы мүмкін. Цитохром c, Apaf-1 және нуклеотидтер апоптосома түзіп, каспаза-9, кейін каспаза-3/7 белсендіреді. Кристалар мен кардиолипин байланысы цитохром c қолжетімділігіне әсер етеді.
Smac/DIABLO және Omi/HtrA2 апоптоз тежегіштерімен әрекеттеседі; AIF пен эндонуклеаза G кей каспазасыз жолдарға қатысады. Бірақ BAX/BAK сыртқы мембрананы mPTP міндетті ашылмай-ақ өткізгіш ете алады. Барлық апоптоз MCU → mPTP → цитохром c тізбегіне сыймайды.
Энергия тапшылығы, некроз және қабыну
Потенциал жоғалғанда АТФ-синтаза кей жағдайда кері жұмыс істеп, АТФ жұмсайды; IF1 және pH ықпал етеді. Таусылудың бірнеше минуттық әмбебап уақыты жоқ. Ауыр тапшылық жиі некрозды қолдайды, бірақ өлім түрін абсолют анықтамайды.
Зақымданған жасушалар митохондриялық ДНҚ, HMGB1 және өзге қауіп сигналдарын босатып, қабынуды іске қосады. Baines және Nakagawa 2005 Cyclophilin D жоғалуында кей некроз бен апоптоз айырмасын көрсетті. Бір реттеушіні тежеу барлық жасуша өлімін болдырмайды.
NCLX: шығару және сигнал ұзақтығы
Алмастырғыш, АТФ сорғысы емес
NCLX/SLC8B1 Na⁺/Ca²⁺ алмасуын қамтамасыз етіп, тәжірибеде Li⁺ пайдалана алады. Кең тараған электрогенді модельде үш Na⁺ енгенде бір Ca²⁺ шығады:
3Naout++Cain2+⇌3Nain++Caout2+.
in — матрикс, out — мембранааралық жақ. Ішке бір оң зарядтың таза ағыны жүреді. Na⁺, Ca²⁺ және кернеу әсер етеді; натрий градиентін өзге тасымал, соның ішінде протон алмасуы қолдайды. NCLX АТФ-ты тікелей қолданбайды.
Ағын теңгерімі және буферлеу
MCU — арна, NCLX — конформациялық циклді тасымалдаушы, сондықтан кинетика әртүрлі. 20–50 әмбебап жылдамдық қатынасы не тұрақты айналым анықталмаған. Жалпы кальций теңгерімі:
dtdCT=JMCU−JNCLX−Jother.
Ағын мен көлем бірдей нормаланса, бос кальциймен байланыс β = dCₜ/dCfree арқылы беріледі. Буфер күшті болса, бірдей жалпы өзгерісте бос концентрация азырақ өзгереді. Импульстер арасындағы толық емес қалпына келу аса үлкен жеке шыңсыз жинақталу туғызады.
Жүрек және жүйке жүйесі
Luongo 2017 ересек тышқан жүрегінде NCLX шартты жойылғанда ауыр дисфункция мен ерте өлімді көрсетті; өзге тәжірибеде экспрессия өсуі жүктемені шектеді. Бұл шығару маңызының модельдік дәлелі, адам жүрек жеткіліксіздігін дайын емдеу емес.
NCLX және PINK1 механизмдері нейродегенерацияда зерттеледі. Тәжірибелік байланыс NCLX тапшылығын Альцгеймер не Паркинсонның жалғыз дәлелденген себебі етпейді. Жеткізу, ұлпалық ерекшелік, қауіпсіздік және бақыланатын клиникалық нәтижелер қажет.
Фармакологиялық құралдар және нутритивтік болжамдар
Рутений қызылы, Ru360 және Ru265
Рутений қызылы тарихи сіңіруді шектеген, бірақ өзге нысаналары бар. Ru360 кей жүйеде селективтірек; плазмалық мембранадан нашар өтуі бүтін жасуша тәжірибесін қиындатады. Бұл барлық препаратта абсолют нөлдік өткізгіштік емес.
Ru265 жақсырақ өтетін құрал ретінде жасалған. Woods 2019 қасиет пен модельдік қорғанысты зерттеді. Атауы бейтарап фенантролин кешенін, толық уытсыздықты немесе клиникалық тиімділікті дәлелдемейді; құрылым, заряд, экспозиция мен уыттылық бөлек бағаланады.
MCU-i4/i11 және DS16570511
Di Marco 2020 MCU-i4/i11-ді MICU1-ге бағытталған қосылыстар ретінде анықтады. Олардың әсерін тек MCU суббірліктерінің арасына байланысумен түсіндіруге болмайды. Сіңіру азайса, сенсор, арна және қозғаушы күш әсерлерін бөлу керек.
Kon 2017 DS1211 емес, DS16570511-ді жасушаларда, оқшауланған митохондрияда және перфузияланған егеуқұйрық жүрегінде зерттеді; белсенділік әртүрлі болды. Yamada 2025 тыныс алу мен потенциалды қоса көптеген әсерді көрсетеді. Селективтілік тексеріледі; атау тікелей MCU байланысын не адамға пайданы дәлелдемейді.
EFHD1 / Mitocalcin
EFHD1, Swiprosin-2 немесе Mitocalcin — митохондриялық реттеуде зерттелетін кальций байланыстырушы ақуыз. Meng 2023 бүйректің ашық жасушалы обыр модельдерінде MCU әрекеттесуін қарастырады. Бұл оны әр кешеннің міндетті суббірлігі немесе әмбебап тежегіші етпейді.
Қызмет ұлпа, орналасу және манипуляцияға қарай сипатталады. «Эндогенді модулятор» әсер бағытын анықтамайды және экспрессияны клиникалық өзгертуге негіз болмайды.
Mg²⁺ және минералдық жағдай
Бос цитозольдік Mg²⁺ жиі 0,5–1 мМ деп бағаланады. Көптеген фермент, нуклеотид және ион процестеріне әсер етеді; тәжірибеде сіңіру мен шекті өзгерте алады. Берік гидратация Ca²⁺ айырмасын түсіндіреді, бірақ Asp261 мен MICU1 арқылы жалғыз атомдық блокаданы дәлелдемейді.
K₀․₅ ығысуы ортаға тәуелді. Расталған тапшылықты түзетудің өзіндік клиникалық негізі бар, бірақ таурат, малат не L-треонат MCU кіреберісін нысаналы қанықтыру тәсілі ретінде дәлелденбеген. Жасушалық концентрация митохондрия қорғанысының қоспа дозасын бермейді.
Cys96 және редокс-реттеу
Dong 2017 матрикстік NTD-дегі Cys96 тотығуын қайта құрылу және күшейген тасымалмен байланыстырды. Бұл арна реттеуші домені, ферменттің катализ орталығы емес. Cys96/Cys97 нөмірін нақты тізбекпен сәйкестендіреді.
Модификация мен олигомеризация стресс, кальций және ROS кері байланысын талқылауға мүмкіндік береді. Әр тиол өзгерісі бірдей дисульфидтік тігіс емес, MICU1/2 әмбебап жойылуы дәлелденбеген. SOD2 материалы супероксид айналуын және кейінгі пероксид қорғанысын түсіндіреді.
R-ALA, NAC, астаксантин және тәуліктік ырғақ
Липой қышқылы, NAC және астаксантин редокс, глутатион және липид зақымы аясында зерттеледі. Бұл ауыз арқылы R-ALA адамның MCU Cys96-ын тікелей қалпына келтіреді, NAC селективті түзетеді немесе астаксантин әр мембранада бірдей орналасады деген дәлел емес. Ферменттегі липоил кофакторы мен бос қоспа өзара алмастырылмайды.
Бастапқы дозалық үйлесімдер MCU емдеуі ретінде валидтелмеген. Диагнозға, тұзға не уақытқа бір әмбебап хаттама берілмейді. Циркадтық реттеу жеке зерттеуді қажет етеді; MCU түнде міндетті жабылады және кешкі антиоксиданттар аритмияны болдырмайды деген пікірге жеке дерек керек. Ұйқы мен белсенділік молекулалық болжамды емге айналдырмайды.
Инфаркт, инсульт және нәтижені көшіру шегі
Жүктемені шектеу ишемия–реперфузия үшін негізді клиникаға дейінгі болжам, бірақ пайдалы энергия жауабын да азайта алады. Кезең, ұлпа, ұзақтық және өтем маңызды. Жедел фармакология мен созылмалы гендік жою бірдей нәтиже бермеуі мүмкін.
Библиография MCU арқылы инфарктты әмбебап 45–60%, өлімдік аритмияны 70% азайтуды немесе инсульт реперфузия терезесін 8–12 сағатқа ұзартуды растамайды. Бұл сандар мақаладағы клиникалық қорытынды емес. Құралдар қалыптасқан көмекті алмастырмайды; жүрек ремоделі мен нейродегенерацияға жеке сынақтар қажет.
Құрал немесе фактор
Ауқымы
Түсіндіру
Рутений қызылы
Тарихи блокатор
Өзге нысаналарын ескеру
Ru360
Селективтірек тәжірибелік құрал
Жасушаға қолжетімділікті бақылау
Ru265
Өтімдірек құрал әзірлеу
Модель қорғанысы клиникалық тиімділік емес
MCU-i4 / MCU-i11
MICU1-ге бағытталған
Дәлелденген MCU пора нысанасын телімеу
DS16570511
Сіңіру ингибиторларын іздеу
Δψ мен тыныс алуды өлшеу; DS1211-мен шатастырмау
EFHD1
Ұлпалық модельдегі ақуыз
Әмбебап міндетті суббірлік емес
Mg²⁺
Минерал және фермент гомеостазы
Тапшылықты түзету валидтелген MCU блокадасы емес
R-ALA / NAC
Редокс және тиол болжамдары
Cys96-ға нысаналы пероралдық әсер дәлелденбеген
Астаксантин
Тәжірибелік липид тотығуы
Адам MCU/MAM әмбебап қорғанысы дәлелденбеген
Зерттеу және дәлелді түсіндіру
Ақуыз мөлшері, арна тогы, бос матрикстік кальций, жалпы жинақталу және АТФ — бөлек өлшемдер. Сенсорлар орналасуға, калибрлеуге және pH-қа тәуелді; оқшауланған органелла бүтін жасушадан өзгеше. Δψ және сіңіру азаюы тікелей MCU блокадасын өздігінен дәлелдемейді.
Күшті механистік зерттеу тасымалды тәуелсіз потенциал мен тыныс алу өлшеуімен, гендік нысана тексеруімен және зақым бағалауымен байланыстырады. Жас, ұлпа, жедел не созылмалы араласу және реперфузия ескеріледі. Клиникалық тиімділік адам нәтижесін қажет етеді; өзгерген сигнал оны алмастырмайды.
MCU кеңістікте ұйымдасқан импульстің метаболизмге жетуін түсіндіреді. MICU, EMRE, жанасулар, NCLX және буферлер амплитуда мен ұзақтықты белгілейді. «Әрқашан ашық» не «әрқашан жабық» бір оңтайлы күй жоқ: нәтиже ағын мен энергия үйлесіміне тәуелді.
Материал қалай дайындалды
Негізі — тарихы, механизмдері, формулалары, үш кестесі және библиографиясы бар берілген мәтін. 2026 жылғы 8 қазанда редакция кезінде RCSB 6DNF, 6O58, 6WDN жазбалары, DS16570511 және MICU1 қосылыстарының бастапқы жарияланымдары, EFHD1 сипаттамасы нысаналы салыстырылды. Құрылымдық библиографиялық идентификаторлар, DS1211 атауы, ARALAR/CITRIN жіктелуі, таңбалар мен бүлінген математикалық белгілеу түзетілді. MFN2 дауы мен mPTP құрамының белгісіздігі ашық сақталды.
Бұл баяндаушы ғылыми шолу және редакциялық тексеру. Барлық әдебиетті жаңадан жүйелі іріктеу, метаталдау, тәуелсіз клиникалық валидация, сыртқы рецензия және GRADE жасалмады. Өзге сілтемелер берілген библиографиялық негізді сақтайды; әр жарияланым толық қайта аудиттелді деген мәлімдеме жоқ. Расталмаған дозалар мен сандық клиникалық уәделер анықталған нәтиже ретінде берілмейді.
Жиі қойылатын сұрақтар
MCU-ды үнемі тежеу керек пе?
Жоқ. Реттелген сигнал энергия жауабын қолдайды, ұзақ артық жүктеме зақымдауы мүмкін. Ұлпа, уақыт, буферлеу және кальций шығуы маңызды.
Нернст қалыпты матрикс кальцийін болжай ма?
Жоқ. Тепе-теңдік есебі қозғаушы күшті көрсетеді; тірі жүйе ену, шығу және байланысуды реттеп, бұл тепе-теңдікте болмайды.
Магний мен антиоксидант тәжірибелері әмбебап емді дәлелдей ме?
Жоқ. Жасушалық концентрация, редокс механизм не модель қорғанысы адам дозасы мен пайдасын анықтамайды. Нысаналы пероралдық MCU түзету валидтелмеген.
Ингибиторды зерттегенде Δψ неге өлшенеді?
Потенциал кальций енуін қозғайды. Оның төмендеуі тікелей блоксыз жинақталуды азайтады; тыныс алу өлшеуі мен нысана тексеруі қажет.