MCU: кальцій, MICU, NCLX і мітохондріальна енергетика — NutriFit
Мітохондріальний кальцієвий уніпортер MCU: від мікродоменів ЕПР до енергетики й перевантаження
Як MCU, MICU й EMRE приймають Ca²⁺ із мікродоменів ЕПР, підтримують дегідрогенази та взаємодіють із NCLX. Структури, формули, перевантаження й межі клінічної інтерпретації.
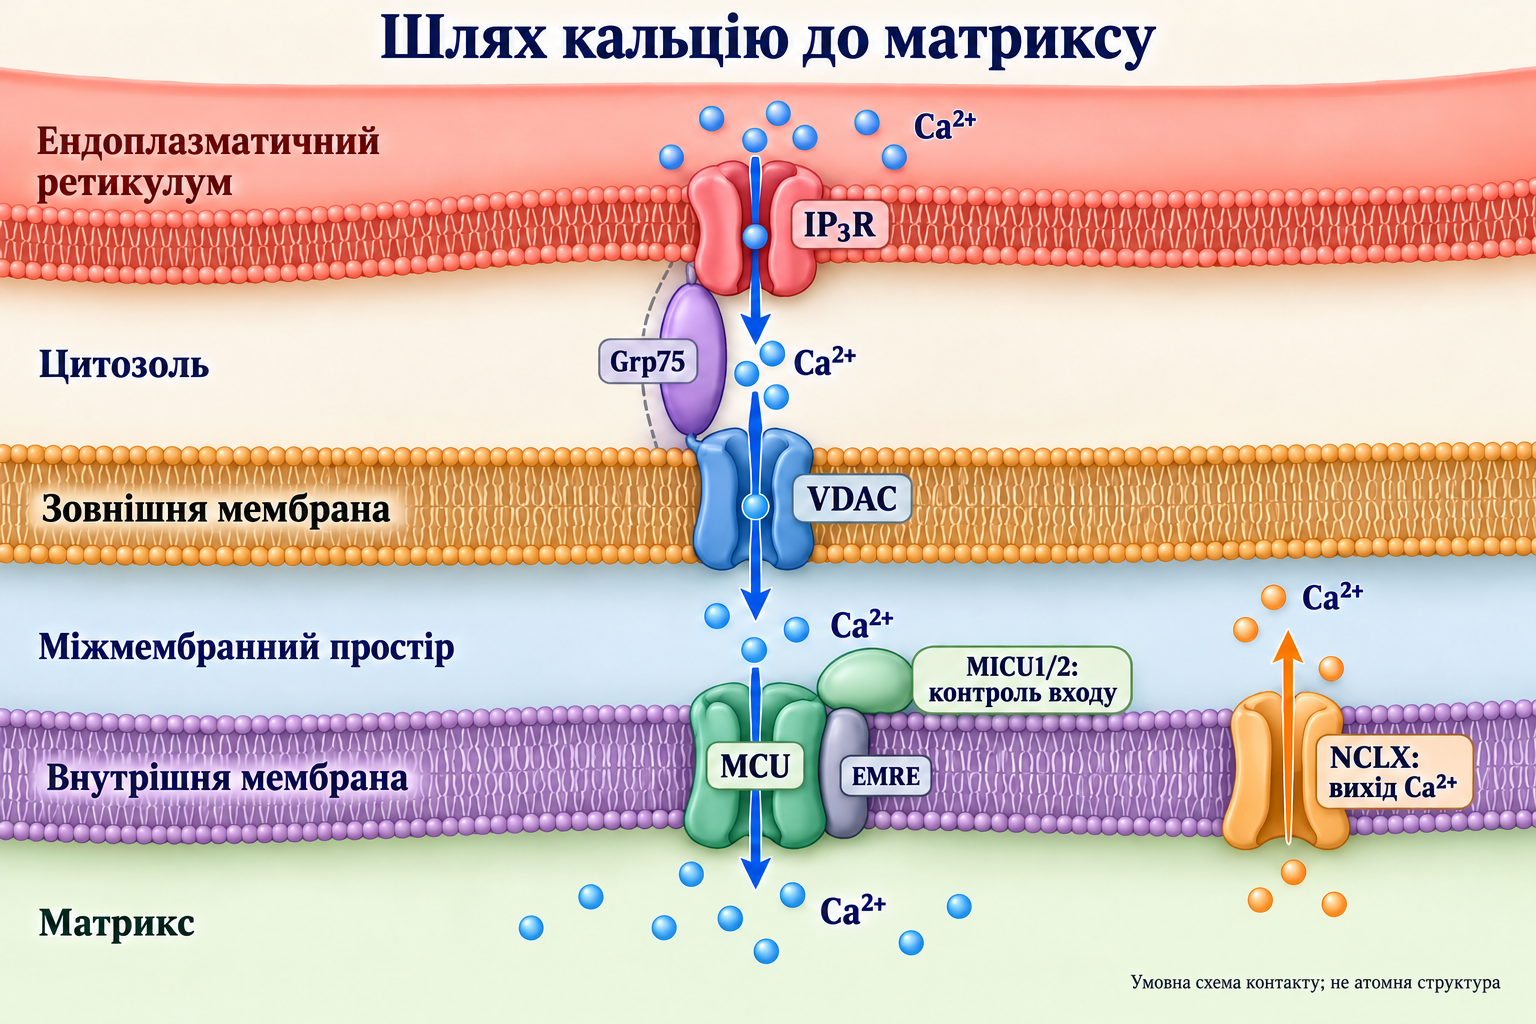
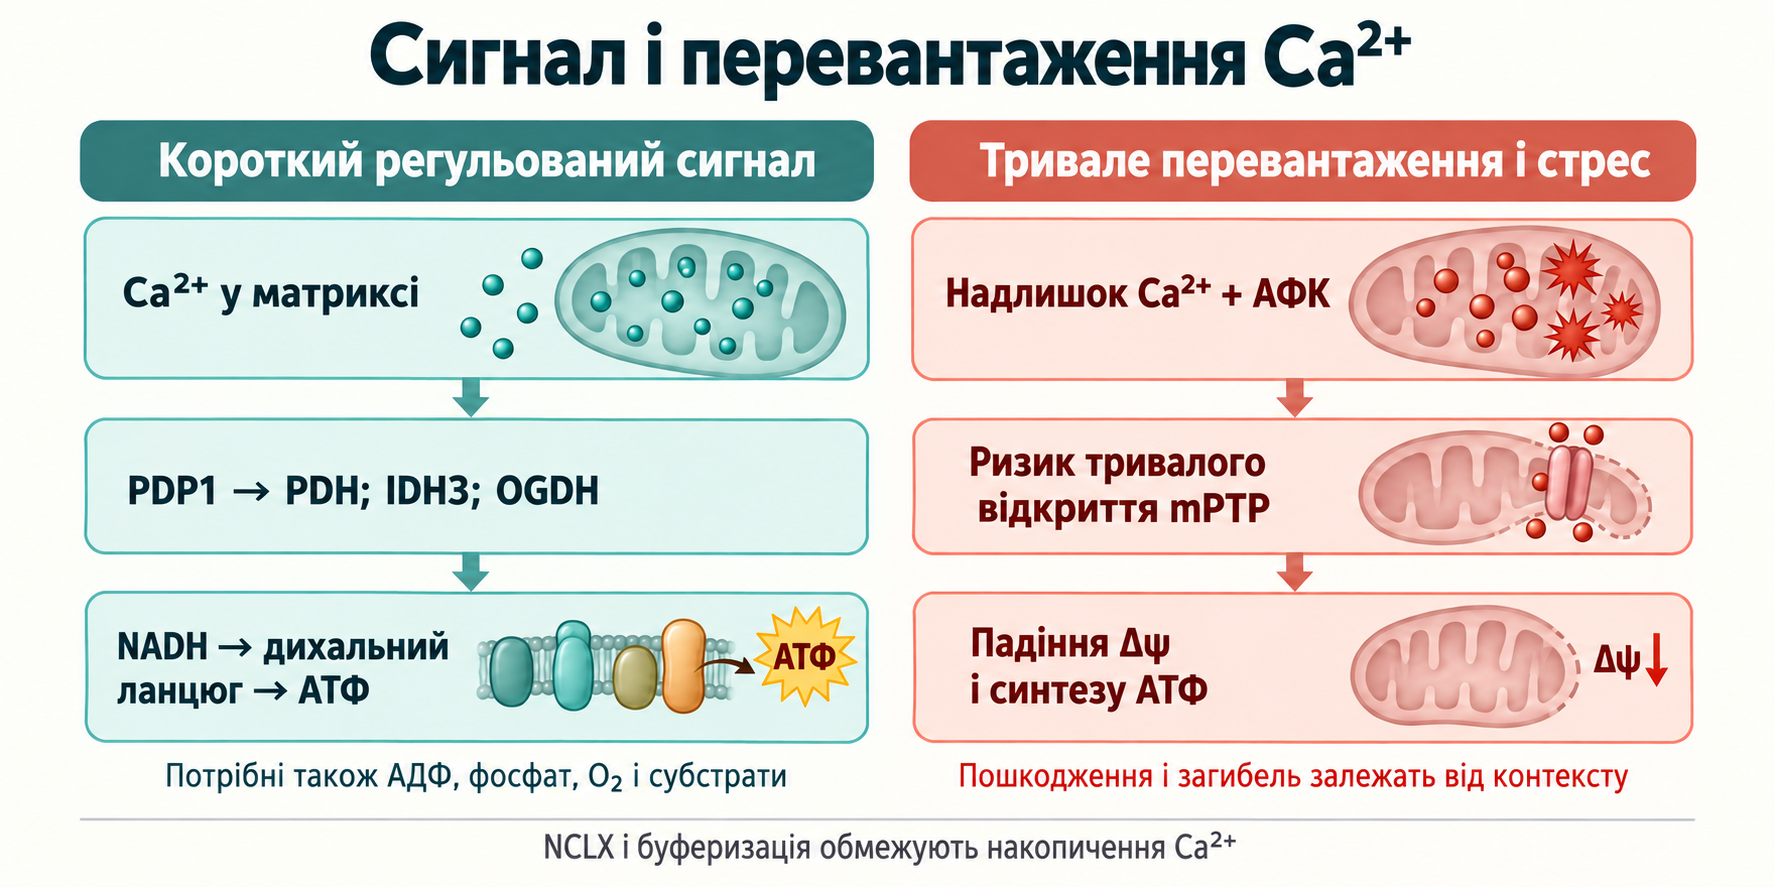
Кальцій пов'язує роботу клітини з енергетичною відповіддю мітохондрій. Під час скорочення м'язів, нейронної сигналізації або секреції короткі підвищення Ca²⁺ можуть прискорювати утворення відновних еквівалентів у матриксі. Для цього кальцій має пройти обидві мембрани, а його надходження — узгоджуватися з виведенням, буферизацією та потребою в АТФ.
MCU утворює канал внутрішньої мембрани. MICU, EMRE, контакти з ендоплазматичним ретикулумом, NCLX і дихальний ланцюг разом визначають результат. Тривале перевантаження за несприятливих умов підвищує ризик пошкодження; корисний сигнал не описується лише кількістю кальцію або експресією MCU.
Електрохімічна основа
Кальцій як сигнал і навантаження
Вільний Ca²⁺ у цитозолі спокою часто становить близько 50–100 нМ, а позаклітинний іонізований кальцій перебуває в мілімолярному діапазоні. Орієнтири залежать від клітини й вимірювання. Канали, насоси та буфери формують імпульси, тому середня концентрація не описує локальну експозицію мітохондрії.
Вільний і сумарний кальцій матриксу — різні величини. Зв'язування з білками, метаболітами й фосфатом дозволяє накопичення без пропорційного зростання вільної фракції. Перевищення субмікромолярного рівня не означає негайного незворотного відкладення солей або загибелі клітини.
Потенціал внутрішньої мембрани
Дихальний ланцюг створює електрохімічний градієнт протонів. Матрикс зазвичай негативний щодо міжмембранного простору; часто наводять Δψ близько −160…−180 мВ, залежно від тканини, навантаження та методу. MCU використовує електричну складову для входу Ca²⁺ і сам не гідролізує АТФ.
Якщо Δψ = ψматрикс − ψміжмембранний простір, а ΔpH = pHматрикс − pHміжмембранний простір, зміна електрохімічного потенціалу протона при вході дорівнює:
ΔμH+=FΔψ−2.303RTΔpH.
F — стала Фарадея, R — газова стала, T — абсолютна температура. Перепад 0,18 В на умовних 5 нм відповідає приблизно 3,6 × 10⁷ В/м, або 360 кВ/см. Це оцінка поля на нанометровій відстані, а не напруга всього організму чи визначення швидкості транспорту.
Межі розрахунку Нернста
Для двовалентного катіона в ідеальній рівновазі:
Δψ=2FRTlnainaout,aoutain=exp(−RT2FΔψ).
За 37 °C знаменник десяткової форми для одновалентного іона становить близько 61,5 мВ. Для Ca²⁺ за Δψ = −180 мВ співвідношення активностей близьке до 7 × 10⁵. Зовнішні 100 нМ дали б умовне внутрішнє значення близько 70 мМ.
Це показує силу рушійного потенціалу, але не прогнозує нормальний вільний кальцій матриксу. Жива мітохондрія перебуває поза такою рівновагою: канал регулюється, кальцій виходить, зв'язується буферами, а напруга змінюється. Одне рівноважне число не замінює цих процесів.
Від фізіології до молекулярної ідентифікації
Поглинання кальцію ізольованими мітохондріями вивчали в 1960-х роках. Записи струмів у мітопластах Kirichok 2004 продемонстрували високоселективний канал. MICU1 знайшли 2010 року; незалежні роботи Baughman і De Stefani ідентифікували MCU 2011 року. Електрофізіологія, генетика й структури відповідають на взаємодоповнювальні питання та не замінюють одна одну.
Архітектура каналу й комплексу
Тетрамер MCU та топологія
Людський попередник MCU містить 351 амінокислотний залишок. Після імпорту він утворює комплекс внутрішньої мембрани з матриксним N-кінцевим доменом, двома трансмембранними ділянками й спіральними елементами складання. Чотири субодиниці MCU формують пору: TM2 звернена до провідного шляху, TM1 — до ліпідів. Петля між ними виходить на міжмембранний бік.
6DNF — грибний MCU Cyphellophora europaea, а не людський голокомплекс; Baradaran 2018 навели роздільну здатність 3,2 Å. Людський MCU–EMRE у 6O58, Wang 2019, є димером каналів при 3,8 Å і не включає всі MICU. 6WDN, Fan 2020, — людський голокомплекс MCU–EMRE–MICU1–MICU2 за низького Ca²⁺, 3,2 Å. Вид, склад і стан принципово важливі.
Фільтр DIME та селективність
DIME охоплює Asp261, Ile262, Met263 і Glu264 за нумерацією людського попередника. Кислі залишки формують важливі елементи селективного фільтра. Геометрія допомагає пояснювати перевагу Ca²⁺ та дію рутенієвих блокаторів, але електростатична схема не описує всю провідність.
Іон взаємодіє з фільтром і гідратною оболонкою. Багатоіонні моделі розглядають поєднання сильного зв'язування зі швидким проходженням. Енергії гідратації залежать від термодинамічної шкали; з них не випливають універсальні константи MCU чи єдиний доведений механізм витіснення іона.
MCUb і зміна складу
MCUb, продукт MCUB/CCDC109B, — паралог MCU, здатний зменшувати провідність у складі комплексу. Це експериментальна регуляція складу, а не обов'язковий тетрамер із двох MCU та двох MCUb у кожній тканині. Експресія й перебудова змінюються під час розвитку, пошкодження та адаптації.
Відмінності порової послідовності перевіряють мутагенезом і струмами. Співвідношення транскриптів саме по собі не визначає потік у серці, а збільшення MCUb не доводить захист пацієнта.
EMRE і зв'язок із MICU
EMRE/SMDT1 — невеликий однопрохідний мембранний білок, необхідний для ефективного людського MCU. Взаємодії підтримують функціональну конфігурацію; кисла C-кінцева область на міжмембранному боці бере участь у зв'язку з MICU. Sancak 2013 показали, чому одна пороутворювальна субодиниця не вичерпує механізм ссавців.
Вимога EMRE не універсальна для всіх організмів. Деякі грибні MCU працюють без такого партнера. Порівняння має враховувати еволюційну архітектуру, а не припускати однаковий набір білків.
Ліпіди та кардіоліпін
Внутрішня мембрана забезпечує також ліпідне оточення. Кардіоліпін впливає на організацію багатьох мітохондріальних білків і мембран; зміни ліпідів можуть позначатися на складанні та транспорті. Загальний ефект не доводить, що кожне порушення кардіоліпіну діє лише через MCU.
При синдромі Барта, окисненні ліпідів і мембранній нестабільності важливі також дихальні комплекси, кристи та інші переносники. «Кардіоліпін як клей MCU» — приблизна метафора, а не вимірювання конкретного комплексу.
Компонент
Розташування
Функція
Обмеження
MCU
Внутрішня мембрана; NTD у матриксі
Вхід Ca²⁺
Залежить від потенціалу й регуляторів
MCUb / MCUB
Внутрішня мембрана
Склад і зниження провідності
Немає універсального співвідношення з MCU
EMRE / SMDT1
Внутрішня мембрана
Підтримка MCU, зв'язок із MICU
Залежність видоспецифічна
MICU1
Міжмембранний бік
EF-hand-сенсор і контроль входу
Поріг залежить від умов
MICU2
Міжмембранний бік
Регуляція з MICU1
Не окрема пора
MICU3
Міжмембранний бік
Посилення в деяких тканинах
Не універсальна заміна MICU2
NCLX / SLC8B1
Внутрішня мембрана
Na⁺/Ca²⁺-обмін і вихід
Залежить від градієнтів
VDAC1
Зовнішня мембрана
Доступ Ca²⁺ і метаболітів
Не канал внутрішньої мембрани
IP₃R
Мембрана ЕПР
Вивільнення Ca²⁺
Важлива геометрія контакту
Grp75 / HSPA9
Кілька клітинних пулів
Шаперон і контактний комплекс
Не додаткова кальцієва пора
Cyclophilin D / PPIF
Матрикс
Чутливість mPTP
Склад mPTP ще досліджують
MICU: розпізнавання сигналу
EF-hand-сенсори за низького кальцію
MICU1 і MICU2 містять кальційзв'язувальні EF-hand-домени. За низького Ca²⁺ обмежують небажаний вхід, а локальне підвищення змінює їхній стан і сприяє транспорту. Це не означає абсолютно нульового базального потоку нижче одного універсального порога.
Досліди різняться складом, Mg²⁺, потенціалом, тканиною та методом. Твердження «закритий нижче 1 мкМ» або «відкривається при 10 мкМ» стосуються певної системи, а не клінічних меж.
Гетеродимер і контакт із порою
MICU1/MICU2 утворюють регуляторну пару. Міжсубодиничні взаємодії, включно з дисульфідним зв'язком, організовують її; нумерація залишків залежить від виду й зрілої або попередникової послідовності. Структури з різним Ca²⁺ показують переміщення MICU щодо пори.
Позитивні поверхні взаємодіють із кислими ділянками входу та партнерами. Перелік Lys/Arg з однієї моделі не переноситься автоматично на всі структури. Механічна «кришка» теж неповна модель: доступність, чутливість і провідність — пов'язані, але різні властивості.
Кооперативність і рівняння Хілла
Сигмоїдальну залежність потоку можна наблизити:
J(C)=JmaxK0.5n+CnCn.
C — концентрація в досліджуваному компартменті, K₀․₅ — концентрація половинного відгуку, n — емпіричний коефіцієнт Хілла. n близько 2,5–3 і мікромолярний K₀․₅ описують окремі вимірювання. Коефіцієнт не дорівнює автоматично числу зв'язаних іонів і не доводить фазовий перехід.
MICU3 і тканинне налаштування
MICU3 може утворювати пару з MICU1 та посилювати відповідь на невеликі імпульси. Це важливо для нейронів зі швидкою зміною енергетичного попиту. Patron 2019 показали таку регуляцію експериментально.
MICU3 — окремий білок, а не альтернативна ізоформа MICU2. Наявність не означає однакового багатократного посилення в усіх нейронах і м'язах. Контакти, буфери, частота та стан мітохондрій також визначають відповідь.
Спадкові порушення
Біалельні дефекти людського MICU1 пов'язані з міопатією та неврологічними проявами, зокрема затримкою розвитку й руховими порушеннями. Вони підтверджують значення порогів і динаміки. Клітинна модель втрати регулятора пояснює механізми, але не задає однаковий фенотип кожному пацієнту.
Хронічна дисрегуляція не зводиться до обов'язкової кальцифікації всіх мітохондрій. Оцінка спадкової хвороби потребує варіанта, фенотипу та функціональних даних; звичайна втома не встановлює дефект MICU.
Контакти ЕПР і локальна передача
Геометрія та поняття MAM
Відстань у контактах часто становить десятки нанометрів. 10–30 нм — орієнтир для частини контактів, залежний від клітини й методу. MAM спочатку означає мембранну фракцію, асоційовану з мітохондріями; біохімічне виділення й мікроскопічне визначення не повністю збігаються.
Контакти беруть участь в обміні ліпідами, аутофагії та організації сигналів. Їхня площа не є фіксованою часткою поверхні в усіх тканинах. Більше контактів не гарантує кращої енергетики: надмірна чи тривала передача підвищує навантаження.
IP₃R, Grp75 і VDAC
IP₃R вивільняє кальцій з ЕПР. Grp75/HSPA9 бере участь у функціональному зв'язку з VDAC1 зовнішньої мембрани. Далі кальцій потрапляє в міжмембранний простір і через MCU перетинає внутрішню мембрану. Це окремі білки й мембрани, а не одна трубка.
Grp75 — шаперон із кількома пулами, включно з матриксним; контактний пул не робить весь білок суто цитозольним. У м'язах важливий і вихід із саркоплазматичного ретикулуму через ріанодинові рецептори. Одна конфігурація не описує всіх контактів.
Мікродомен і середня концентрація
Поблизу відкритого каналу вивільнення Ca²⁺ може короткочасно досягати десятків мікромолів, хоча середнє цитозольне значення нижче. Це пояснює реакцію мікромолярно чутливого MCU. 20–50 мкМ — приклад для певних умов, а не властивість кожного контакту.
Дифузія, зв'язування й закриття каналів задають тривалість. Локальна експозиція, відстань і форма імпульсу можуть бути інформативнішими за середнє число. Мікродомени підкоряються звичайній фізиці та не скасовують термодинаміки.
MFN2, PACS2 та інші організатори
MFN2 бере участь у динаміці мітохондрій і контактах ЕПР. Роль tether обговорювали роботи з різними результатами: de Brito 2008, Filadi 2015, Naon 2016. Методи, клітини й визначення близькості не дозволяють стверджувати, що видалення MFN2 завжди зменшує контакти.
PACS2 та BAP31–FIS1 також пов'язані з міжорганельною організацією і стресом. Вони не формують одного обов'язкового каркаса з фіксованою відстанню. Хвороба Шарко—Марі—Тута 2A при варіантах MFN2 не пояснюється лише втратою кальцієвої передачі: важливі транспорт, злиття та інші функції.
Кальцій та енергетична відповідь
PDP1 і піруватдегідрогеназа
PDC пов'язує гліколіз із циклом трикарбонових кислот:
Pyruvate+CoA−!SH+NAD+⟶Acetyl−!CoA+CO2+NADH+H+.
Ca²⁺ регулює його переважно через PDP1, сприяючи дефосфорилюванню E1α та активації. PDK1–4 діють протилежно. Ser293/300/232 попередника відповідають Ser264/271/203 після видалення сигнального пептиду; змішування нумерацій створює уявні суперечності.
Mg²⁺ потрібний для каталізу фосфатази, Ca²⁺ впливає на зв'язок PDP1 із комплексом. PDP2 не є рівноцінним кальцієвим перемикачем. Константи активації конкретних дослідів не універсальні. Ліпоїльні групи E2 не тотожні пероральній ліпоєвій кислоті; це пояснює матеріал про R-ALA та PDC.
NAD-залежна IDH3
IDH3 утворює 2-оксоглутарат:
Isocitrate+NAD+⟶2Oxoglutarate+CO2+NADH+H+.
Її відрізняють від NADP-залежної IDH2. Кальцій, ADP та зміни видимої спорідненості до субстрату допомагають узгоджувати цикл із навантаженням. Склад людського багатосубодиничного ферменту описують відповідно до структурної одиниці та стану складання, а не однією формулою для всіх видів.
Перехід видимого Kₘ із мілімолярного в субмілімолярний діапазон стосується конкретного досліду. Ca²⁺ не завжди збільшує потік в однакову кількість разів: важливі субстрати, NADH/NAD⁺, ATP/ADP та наступні реакції.
Кальцій може посилювати відповідь на субстрат; класичні роботи описували менший видимий Kₘ. Це не перемикач PDK/PDP. Відсутність саме цієї схеми не означає відсутності всіх посттрансляційних модифікацій.
ΔG°′ близько −33,5 кДж/моль — стандартний орієнтир; реальне ΔG залежить від активностей. NADH і сукциніл-CoA обмежують потік, а комплекс чутливий до редокс-стану. Він не безумовний «локомотив», керований лише Ca²⁺.
ARALAR, CITRIN і малат-аспартатний човник
ARALAR/SLC25A12 і CITRIN/SLC25A13 — переносники аспартату та глутамату, а не аденінових нуклеотидів. Регуляторні EF-hand-області звернені на міжмембранний бік і реагують на кальцій поза матриксом. Метаболічна регуляція не обмежується іонами, які вже пройшли MCU.
Човник передає відновні еквіваленти цитозольного NADH через обмін метаболітами. NADH не проходить мембрану як вантаж ARALAR/CITRIN. Тканинний розподіл і доступність партнерів визначають внесок у дихання.
Дихання, АТФ-синтаза й випереджальна регуляція
Більше NADH може підтримувати потік електронів і АТФ за доступності кисню, ADP, фосфату та субстратів. Випереджальна відповідь доповнює зворотний зв'язок енергетичного попиту. Кальцій також активує витрачання АТФ, тому корисною є узгодженість виробництва й споживання.
Це не доводить універсального витіснення IF1 кальцієм і прискорення ротора. IF1, pH, потенціал та напрям роботи мають окрему регуляцію. Збереження ATP при багатократному навантаженні — контекстне спостереження, а не обов'язкова властивість усіх клітин.
Мішень
Де сприймається Ca²⁺
Енергетичний зв'язок
Необґрунтований автоматичний висновок
PDP1 → PDC
Матрикс
Дефосфорилювання E1α
Усі PDP однаково чутливі
IDH3
Матрикс
Утворення NADH
IDH2 має такий самий механізм
OGDH / OGDC
Матрикс
Відповідь на 2-оксоглутарат
PDK/PDP регулює як PDC
ARALAR / CITRIN
EF-hand на міжмембранному боці
Малат-аспартатний човник
Переносять NADH або нуклеотиди
Дихання й АТФ-синтаза
Інтегральна відповідь
Узгодження зі споживанням
Ca²⁺ замінює ADP, O₂ і субстрати
Перевантаження, буфери та пошкодження
Ішемія, реперфузія й ексайтотоксичність
Обмеження кисню зменшує АТФ і порушує іонний гомеостаз. Зміни Na⁺, pH і потенціалу можуть підвищувати цитозольне навантаження; за певних умов плазматичний Na⁺/Ca²⁺-обмінник змінює напрям. Це контекстний механізм, а не фіксована концентрація в кожного пацієнта.
Відновлення кровотоку одночасно змінює pH, дихання, Δψ та АФК. Повернення рушійного потенціалу полегшує вхід, поки навантаження триває. У нейронах надмірна активація NMDA й інші джерела Ca²⁺ беруть участь в ексайтотоксичності. Важливі тривалість, локалізація, буфери та енергетика.
Фосфат і межі хімічної моделі
Фосфат сприяє утриманню кальцію. Можливі стехіометричні схеми:
Баланс речовини й заряду не доводить, що гранули завжди є зрілим гідроксиапатитом. Розглядають аморфні комплекси, залежні від pH, Mg²⁺ та органічних компонентів. Буферизація знижує вільну фракцію, водночас збільшуючи сумарне накопичення. «99% зв'язано» не універсальне без умов вимірювання.
mPTP і Cyclophilin D
Тривале відкриття mPTP руйнує селективність внутрішньої мембрани, знижує Δψ та синтез АТФ. Кальцій, окиснення й інші фактори змінюють імовірність. Cyclophilin D/PPIF регулює чутливість; він не встановлений як обов'язкова пороутворювальна субодиниця з єдиною функцією прямого сенсора кальцію.
Моделі з ANT та АТФ-синтазою, включно з різними формами її організації, досліджують далі. Короткі події проникності не тотожні стійкому патологічному відкриттю. Операційний опис проходження молекул близько 1,5 кДа не визначає точну геометрію.
Від мембранного пошкодження до апоптозу
Тривале порушення внутрішньої мембрани може викликати набухання та пошкодження зовнішньої. Цитохром c, Apaf-1 і нуклеотиди формують апоптосому, активуючи каспазу-9 і каспази-3/7. Кристи та зв'язок із кардіоліпіном впливають на доступність цитохрому c.
Smac/DIABLO й Omi/HtrA2 взаємодіють із системами інгібіторів апоптозу; AIF та ендонуклеазу G розглядають у деяких каспазонезалежних шляхах. Проте BAX/BAK можуть проникнювати зовнішню мембрану без обов'язкового mPTP. Не весь апоптоз проходить одну лінію MCU → mPTP → цитохром c.
Енергетичний колапс, некроз і запалення
За втрати потенціалу АТФ-синтаза іноді працює зворотно й витрачає АТФ; IF1 і pH впливають на це. Виснаження не має фіксованої тривалості в кілька хвилин. Тяжкий дефіцит часто сприяє некрозу, але не абсолютно визначає тип загибелі.
Клітини можуть вивільняти мітохондріальну ДНК, HMGB1 та інші сигнали небезпеки, залучаючи запалення. Baines і Nakagawa 2005 при втраті Cyclophilin D розрізнили деякі некротичні й апоптотичні механізми. Блокування одного регулятора не гарантує попередження всіх видів смерті.
NCLX: виведення та тривалість
Обмінник, а не АТФ-залежний насос
NCLX/SLC8B1 забезпечує Na⁺/Ca²⁺-обмін і експериментально використовує Li⁺. Поширена електрогенна модель має три вхідні Na⁺ на один вихідний Ca²⁺:
3Naout++Cain2+⇌3Nain++Caout2+.
in — матрикс, out — міжмембранний бік. Сумарно всередину входить один позитивний заряд. Потік залежить від Na⁺, Ca²⁺ і напруги; натрієвий градієнт підтримують інші процеси, зокрема протонний обмін. NCLX прямо не використовує АТФ.
Баланс потоків і буферизація
MCU — канал, NCLX — переносник із конформаційним циклом, тому кінетика різна. Універсального співвідношення швидкостей 20–50 чи фіксованого обороту не встановлено. Баланс сумарного кальцію:
dtdCT=JMCU−JNCLX−Jother.
За однакової нормалізації потоків та об'єму зв'язок із вільним кальцієм визначає β = dCₜ/dCfree. Сильніший буфер дає меншу зміну вільної концентрації за однакового приросту сумарної. Неповне відновлення між імпульсами накопичує кальцій навіть без надзвичайного окремого піка.
Серце й нервова система
Luongo 2017 показали тяжку дисфункцію й ранню загибель після умовного видалення NCLX у серці дорослої миші; посилення експресії в інших дослідах обмежувало навантаження. Це доказ у моделі, а не готове лікування людської серцевої недостатності.
NCLX і механізми PINK1 вивчають при нейродегенерації. Експериментальні зв'язки не роблять дефіцит NCLX єдиною встановленою причиною Альцгеймера або Паркінсона. Потрібні доставка, тканинна специфічність, безпека та контрольовані клінічні результати.
Фармакологічні інструменти й нутритивні гіпотези
Рутенієвий червоний, Ru360 і Ru265
Рутенієвий червоний історично обмежував поглинання, але має інші мішені. Ru360 більш вибірковий у низці систем; слабка проникність плазматичної мембрани ускладнює досліди з інтактними клітинами. Вона не абсолютно нульова для будь-яких препаратів і умов.
Ru265 розроблений як краще проникний інструмент. Woods 2019 досліджували властивості та захист у моделях. Назва не доводить нейтрального фенантролінового складу, повної нетоксичності чи клінічної ефективності: структуру, заряд, експозицію й ризики оцінюють окремо.
MCU-i4/i11 та DS16570511
Di Marco 2020 ідентифікували MCU-i4/i11 як MICU1-направлені сполуки. Їх не можна пояснювати лише зв'язуванням між MCU. Зниження накопичення потребує відокремлення ефектів на сенсор, канал і рушійний потенціал.
Kon 2017 вивчали DS16570511, а не DS1211, у клітинах, ізольованих мітохондріях і перфузованому серці щура; активність різнилася. Yamada 2025 показує множинні ефекти, включно з диханням і потенціалом. Вибірковість потребує перевірки, а назва не підтверджує прямого зв'язку з MCU або користі людині.
EFHD1 / Mitocalcin
EFHD1, Swiprosin-2 або Mitocalcin — кальційзв'язувальний білок, досліджуваний у мітохондріальній регуляції. Meng 2023 розглядає взаємодію з MCU в моделях світлоклітинного раку нирки. Це не робить його обов'язковою субодиницею всіх комплексів чи універсальним гальмом.
Функцію описують за тканиною, локалізацією й маніпуляцією. «Ендогенний модулятор» не визначає напрям ефекту та не обґрунтовує клінічну зміну експресії.
Mg²⁺ і мінеральний статус
Вільний цитозольний Mg²⁺ часто оцінюють як 0,5–1 мМ. Він регулює численні ферменти, нуклеотиди й іонні процеси; експериментально змінює поглинання та поріг. Сильна гідратація пояснює відмінності від Ca²⁺, але не доводить єдиної атомної блокади Asp261 та MICU1.
Зсув K₀․₅ залежить від середовища. Корекція підтвердженого дефіциту має власні клінічні підстави, однак таурат, малат чи L-треонат не встановлені як адресне насичення входу MCU. З клітинної концентрації не випливає доза для мітохондріального захисту.
Cys96 і редокс-контроль
Dong 2017 пов'язали окисний стан Cys96 матриксного NTD із перебудовою й посиленням транспорту. Це регуляторний домен каналу, не каталітичний центр ферменту. Cys96/Cys97 співвідносять із конкретною послідовністю.
Модифікації й олігомеризація дозволяють обговорювати зворотний зв'язок стресу, кальцію та АФК. Не кожна зміна тіолу — однакова дисульфідна зшивка, й універсального усунення MICU1/2 не доведено. Матеріал про SOD2 пояснює перетворення супероксиду та подальший захист від пероксидів.
R-ALA, NAC, астаксантин і добові ритми
Ліпоєву кислоту, NAC та астаксантин досліджують щодо редокс-стану, глутатіону й ліпідів. Це не доводить прямого відновлення Cys96 людини пероральною R-ALA, вибіркового впливу NAC або однієї орієнтації астаксантину в усіх мембранах. Ферментний ліпоїльний кофактор і вільна добавка не взаємозамінні.
Початкові дозові комбінації не валідовані як лікування MCU. Матеріал не задає універсального протоколу за діагнозом, сіллю чи часом. Циркадіанна регуляція — окрема тема; обов'язкове нічне закриття MCU й профілактика аритмій вечірніми антиоксидантами потребують власних даних. Сон і активність не перетворюють гіпотезу на лікування.
Інфаркт, інсульт і трансляція
Обмеження перевантаження — обґрунтована доклінічна гіпотеза для ішемії–реперфузії, але може знижувати корисну енергетичну відповідь. Важливі стадія, тканина, тривалість і компенсація. Гостра фармакологія та хронічне генетичне видалення можуть давати різні результати.
Бібліографія не підтверджує універсального зменшення інфаркту на 45–60%, фатальних аритмій на 70% чи розширення реперфузійного вікна інсульту до 8–12 годин через MCU. Ці числа не є клінічними висновками. Інструменти не замінюють установленої допомоги; ремоделювання серця й нейродегенерація потребують окремих випробувань.
Інструмент або фактор
Контекст
Інтерпретація
Рутенієвий червоний
Історичний блокатор
Враховувати інші мішені
Ru360
Більш вибірковий інструмент
Контролювати доступ у клітину
Ru265
Проникніша розробка
Захист моделі не дорівнює клінічній ефективності
MCU-i4 / MCU-i11
MICU1-направлені сполуки
Не приписувати доведену порову мішень
DS16570511
Скринінг поглинання
Вимірювати Δψ і дихання; не плутати з DS1211
EFHD1
Ендогенний білок у тканинних моделях
Не універсальна субодиниця
Mg²⁺
Мінеральний і ферментний гомеостаз
Корекція дефіциту не валідована блокада
R-ALA / NAC
Редокс-гіпотези
Адресна пероральна корекція Cys96 не доведена
Астаксантин
Експериментальне окиснення ліпідів
Універсальний людський захист MCU/MAM не доведений
Дослідження системи й читання доказів
Кількість білка, струм, вільний матриксний кальцій, сумарне накопичення й АТФ — різні величини. Сенсори залежать від локалізації, калібрування та pH; ізольовані органели відрізняються від клітини. Зниження Δψ і поглинання саме по собі не доводить прямої блокади MCU.
Сильне дослідження поєднує транспорт з незалежними вимірюваннями потенціалу й дихання, генетичною перевіркою та оцінкою пошкодження. Враховують вік, тканину, гостре або хронічне втручання й реперфузію. Клінічна ефективність потребує результатів у людей, а не лише зміни сигналу.
MCU пояснює шлях просторово організованого імпульсу до метаболізму. MICU, EMRE, контакти, NCLX і буфери задають амплітуду й тривалість. Єдиного оптимального стану «завжди відкрито» чи «завжди закрито» немає: результат залежить від узгодженості потоків та енергетики.
Як підготовлено матеріал
Основою був наданий текст з історією, механізмами, формулами, трьома таблицями й бібліографією. Під час редагування 8 жовтня 2026 року адресно зіставлено RCSB для 6DNF, 6O58, 6WDN, первинні публікації DS16570511 та MICU1-направлених сполук і опис EFHD1. Виправлено структурні бібліографічні ідентифікатори, DS1211, класифікацію ARALAR/CITRIN, знаки й пошкоджену математичну розмітку. Суперечності MFN2 та невизначеність mPTP залишено явними.
Це наративний огляд і редакційна перевірка. Нова систематична вибірка всієї літератури, метааналіз, незалежна клінічна валідація, зовнішнє рецензування та GRADE не проводилися. Інші посилання зберігають надану бібліографічну основу без заяви про повний новий аудит. Непідтверджені дози та численні обіцянки клінічного захисту не подані як установлені результати.
Часті питання
Чи потрібно постійно гальмувати MCU?
Ні. Регульовані сигнали підтримують енергетику, а тривале перевантаження може пошкоджувати. Важливі тканина, час, буферизація та вихід кальцію.
Чи прогнозує Нернст нормальний кальцій матриксу?
Ні. Розрахунок показує рушійну силу; жива система регулює вхід, вихід і звʼязування та не перебуває в такій рівновазі.
Чи доводять магній і антиоксиданти універсальне лікування?
Ні. Клітинні концентрації, редокс-механізм або захист моделі не визначають дозу й користь людині. Адресну пероральну корекцію MCU не валідовано.
Навіщо вимірювати Δψ при дослідженні інгібітора?
Потенціал рухає вхід кальцію. Його падіння зменшує накопичення без прямої блокади; потрібні незалежні вимірювання дихання й перевірка мішені.