MCU: calcio, MICU, NCLX y energía mitocondrial — NutriFit
Uniportador mitocondrial de calcio MCU: de los microdominios del RE al metabolismo y la sobrecarga
Cómo MCU, MICU y EMRE reciben Ca²⁺ de microdominios del RE, regulan deshidrogenasas y se coordinan con NCLX. Estructuras, ecuaciones, sobrecarga y límites farmacológicos y nutricionales.
El calcio conecta el trabajo celular con la respuesta energética mitocondrial. Durante la contracción muscular, la señalización neuronal o la secreción, aumentos breves de Ca²⁺ pueden acelerar la producción de equivalentes reductores en la matriz. Para ello debe atravesar ambas membranas mitocondriales, y su entrada debe coordinarse con la salida, la amortiguación y la demanda de ATP.
MCU forma un canal de la membrana interna. Las proteínas MICU, EMRE, los contactos con el retículo endoplasmático, NCLX y la cadena respiratoria determinan conjuntamente el resultado. Una sobrecarga sostenida en condiciones adversas aumenta el riesgo de daño; ni la cantidad de calcio ni la expresión de MCU describen por sí solas una señal útil.
Fundamento electroquímico
El calcio como señal y como carga
El Ca²⁺ libre del citosol en reposo suele situarse alrededor de 50–100 nM, mientras que el calcio ionizado extracelular está en el intervalo milimolar. Estos valores orientativos dependen de la célula y del método. Canales, bombas y amortiguadores configuran los pulsos; la concentración media no describe la exposición local de una mitocondria.
Es necesario distinguir el calcio libre del total en la matriz. Su unión a proteínas, metabolitos y fosfato permite acumularlo sin aumentar proporcionalmente la fracción libre. Esto no implica que cualquier valor superior al intervalo submicromolar cause inmediatamente precipitación irreversible o muerte celular.
Potencial de la membrana interna
La cadena respiratoria genera un gradiente electroquímico de protones. La matriz suele ser negativa respecto al espacio intermembrana; se citan valores de Δψ próximos a −160…−180 mV, que varían según tejido, carga y medición. MCU utiliza la componente eléctrica para introducir Ca²⁺ y no hidroliza ATP directamente.
Definiendo Δψ = ψmatriz − ψespacio intermembrana y ΔpH = pHmatriz − pHespacio intermembrana, el cambio del potencial electroquímico del protón al entrar es:
ΔμH+=FΔψ−2.303RTΔpH.
F es la constante de Faraday, R la constante de los gases y T la temperatura absoluta. Una diferencia de 0,18 V a través de 5 nm equivaldría a unos 3,6 × 10⁷ V/m, o 360 kV/cm. Es una estimación sobre una distancia nanométrica, no una tensión de todo el organismo ni una medición de velocidad de transporte.
Qué significa el cálculo de Nernst
Para un catión divalente en equilibrio ideal:
Δψ=2FRTlnainaout,aoutain=exp(−RT2FΔψ).
A 37 °C, el denominador de la forma decimal para un ion monovalente es aproximadamente 61,5 mV. Para Ca²⁺ y Δψ = −180 mV, la razón de actividades es cercana a 7 × 10⁵. Una concentración libre externa de 100 nM produciría un valor interno hipotético de unos 70 mM.
El cálculo ilustra la fuerza impulsora, pero no predice el Ca²⁺ libre normal de la matriz. Una mitocondria viva está fuera de ese equilibrio: hay regulación del canal, salida, unión a amortiguadores y cambios de potencial. Sustituir estos procesos por un único número crea una imagen errónea de sobrecarga permanente.
De la fisiología a la identificación molecular
La captación por mitocondrias aisladas se estudiaba ya en la década de 1960. Los registros de mitoplastos de Kirichok y colaboradores en 2004 demostraron un canal de alta selectividad. MICU1 se identificó en 2010, y los trabajos independientes de Baughman y De Stefani identificaron MCU en 2011. Electrofisiología, genética y estructura responden preguntas complementarias y no son intercambiables.
Arquitectura y regulación del complejo
Tetrámero MCU y topología
El precursor humano de MCU tiene 351 residuos. Tras la importación, organiza un complejo de la membrana interna con un dominio N-terminal orientado a la matriz, dos segmentos transmembrana y elementos helicoidales de ensamblaje. Cuatro subunidades forman el poro: TM2 mira hacia la vía conductora y TM1 hacia el entorno lipídico. El bucle entre ambos segmentos se orienta al espacio intermembrana.
6DNF corresponde al MCU del hongo Cyphellophora europaea, no al holocomplejo humano; Baradaran 2018 comunicó una resolución de 3,2 Å. El MCU–EMRE humano de 6O58, Wang 2019, es un dímero de canales a 3,8 Å y no contiene todos los MICU. 6WDN, Fan 2020, representa el holocomplejo humano MCU–EMRE–MICU1–MICU2 con Ca²⁺ bajo, a 3,2 Å. Especie, composición y estado son diferencias esenciales.
Filtro DIME y selectividad
La secuencia DIME comprende Asp261, Ile262, Met263 y Glu264 en la numeración del precursor humano. Los residuos ácidos forman elementos importantes del filtro selectivo. Su disposición ayuda a explicar la preferencia por Ca²⁺ y el bloqueo por rutenio, aunque una descripción electrostática no explica toda la conductancia.
El ion interactúa con el filtro y con su capa de hidratación. Los modelos multiiónicos abordan cómo combinar unión fuerte y conducción rápida. Las energías de hidratación dependen de la escala termodinámica y no determinan directamente constantes universales de MCU ni prueban un único mecanismo de desplazamiento entre iones.
MCUb y composición del canal
MCUb, codificado por MCUB/CCDC109B, es un parálogo capaz de reducir la conductancia al incorporarse al complejo. Es regulación experimentalmente demostrada de la composición, no una organización obligatoria de dos MCU y dos MCUb en todo tejido. La abundancia de MCUb y el remodelado varían durante desarrollo, daño y adaptación.
Las diferencias de secuencia en la región del poro requieren mutagénesis y mediciones de corriente para definir su efecto. Una razón de transcritos no determina por sí sola el flujo cardíaco, y aumentar MCUb no demuestra protección clínica.
EMRE y conexión con MICU
EMRE, producto de SMDT1, es una proteína pequeña con un único segmento transmembrana, necesaria para el transporte eficaz por MCU humano. Sus interacciones sostienen el complejo funcional; su región C-terminal ácida en el lado intermembrana contribuye a conectarlo con MICU. Sancak 2013 mostró por qué identificar el poro no completaba el mecanismo de mamíferos.
La dependencia de EMRE no es universal. Algunos MCU de hongos funcionan sin este socio. La comparación estructural debe considerar la arquitectura evolutiva y no asumir la misma composición proteica en todas las mitocondrias.
Lípidos y cardiolipina
La membrana interna aporta el entorno lipídico además del gradiente eléctrico. La cardiolipina influye en la organización de diversas proteínas y membranas; cambios lipídicos pueden modificar ensamblaje y transporte. Sus efectos generales no prueban que cualquier alteración de su metabolismo actúe exclusivamente a través de MCU.
Al discutir síndrome de Barth, oxidación lipídica o inestabilidad de membrana, también importan complejos respiratorios, crestas y otros transportadores. Llamarla «pegamento de MCU» es solo una metáfora aproximada y no sustituye la medición del complejo.
Componente
Localización
Función principal
Limitación importante
MCU
Membrana interna; NTD en matriz
Poro de entrada de Ca²⁺
Depende de potencial y reguladores
MCUb / MCUB
Membrana interna
Composición y menor conductancia
Sin proporción universal respecto a MCU
EMRE / SMDT1
Membrana interna
Soporte funcional y conexión con MICU
Dependencia variable entre especies
MICU1
Lado intermembrana
Sensor EF-hand y control de entrada
Umbral dependiente del complejo
MICU2
Lado intermembrana
Regulación junto a MICU1
No es un poro independiente
MICU3
Lado intermembrana
Amplificación en ciertos tejidos
No sustituye universalmente a MICU2
NCLX / SLC8B1
Membrana interna
Intercambio Na⁺/Ca²⁺ y salida
Depende de gradientes iónicos
VDAC1
Membrana externa
Acceso de Ca²⁺ y metabolitos
No es un canal de membrana interna
IP₃R
Membrana del RE
Liberación de Ca²⁺
Transferencia dependiente del contacto
Grp75 / HSPA9
Diversas poblaciones celulares
Chaperona y participación en contactos
No es otro poro de calcio
Cyclophilin D / PPIF
Matriz
Sensibilidad de mPTP
La composición molecular de mPTP sigue investigándose
MICU y reconocimiento de la señal
Sensores EF-hand con exposición baja
MICU1 y MICU2 contienen dominios EF-hand que unen calcio. Con Ca²⁺ bajo restringen la entrada inapropiada; el aumento local cambia su estado y facilita transporte. Esto coordina la entrada con la señal, sin implicar flujo basal absolutamente nulo bajo un umbral universal.
Los experimentos difieren en composición, Mg²⁺, potencial, tejido y método. «Cerrado por debajo de 1 µM» o «abierto exactamente a 10 µM» caracteriza determinadas condiciones y no establece límites clínicos.
Heterodímero y contacto con el canal
MICU1 y MICU2 forman una pareja reguladora. Interacciones entre subunidades, incluida una unión disulfuro, contribuyen a organizarla; la numeración cambia según especie y precursor o proteína madura. Las estructuras con calcio bajo y alto muestran reubicación de MICU respecto al poro.
Superficies positivas de MICU interactúan con regiones ácidas de entrada y socios del complejo. Una lista de Lys/Arg de un modelo no puede trasladarse a todas las estructuras. Tampoco basta la imagen de una tapa mecánica: accesibilidad, sensibilidad y conductancia están relacionadas, pero son propiedades distintas.
Cooperatividad y ecuación de Hill
Una relación sigmoidal entre calcio y flujo puede aproximarse por:
J(C)=JmaxK0.5n+CnCn.
C es la concentración en el compartimento experimental, K₀․₅ la concentración de semirrespuesta y n el coeficiente empírico de Hill. Valores de n próximos a 2,5–3 y K₀․₅ micromolar describen algunas mediciones. El coeficiente no equivale automáticamente al número de iones unidos ni demuestra una transición de fase proteica.
MICU3 y ajuste tisular
MICU3 puede asociarse funcionalmente con MICU1 y potenciar la respuesta mitocondrial a señales pequeñas. Es relevante en neuronas con demanda energética rápidamente variable. Patron 2019 mostró esta regulación en sistemas experimentales.
MICU3 es una proteína distinta, no una isoforma alternativa de MICU2. Su presencia no implica una amplificación idéntica en todo músculo o neurona. Contactos, amortiguadores, frecuencia de pulsos y estado mitocondrial también determinan la respuesta.
Alteraciones hereditarias
Defectos bialélicos de MICU1 humano se asocian con miopatía y manifestaciones neurológicas, incluidos retraso del desarrollo y trastornos motores. Demuestran la importancia fisiológica de los umbrales y la dinámica. Un modelo celular de pérdida reguladora explica mecanismos, pero no define un fenotipo idéntico en todos los pacientes.
La desregulación crónica no equivale a calcificación obligatoria de todas las mitocondrias. La evaluación de una enfermedad hereditaria requiere variante, fenotipo y datos funcionales; la fatiga común no diagnostica un defecto MICU.
Contactos RE–mitocondria y entrega local
Geometría y concepto de MAM
La separación en los contactos suele medirse en decenas de nanómetros. El intervalo 10–30 nm orienta sobre algunos contactos y depende de célula y método. MAM designa originalmente una fracción de membrana asociada a mitocondrias; su aislamiento bioquímico y la definición microscópica del contacto no coinciden por completo.
Los contactos participan en intercambio lipídico, autofagia y organización de señales. No ocupan una fracción fija de superficie en todos los tejidos. Una mayor cantidad no garantiza mejor suministro energético: transferencia excesiva o prolongada puede aumentar la carga.
IP₃R, Grp75 y VDAC
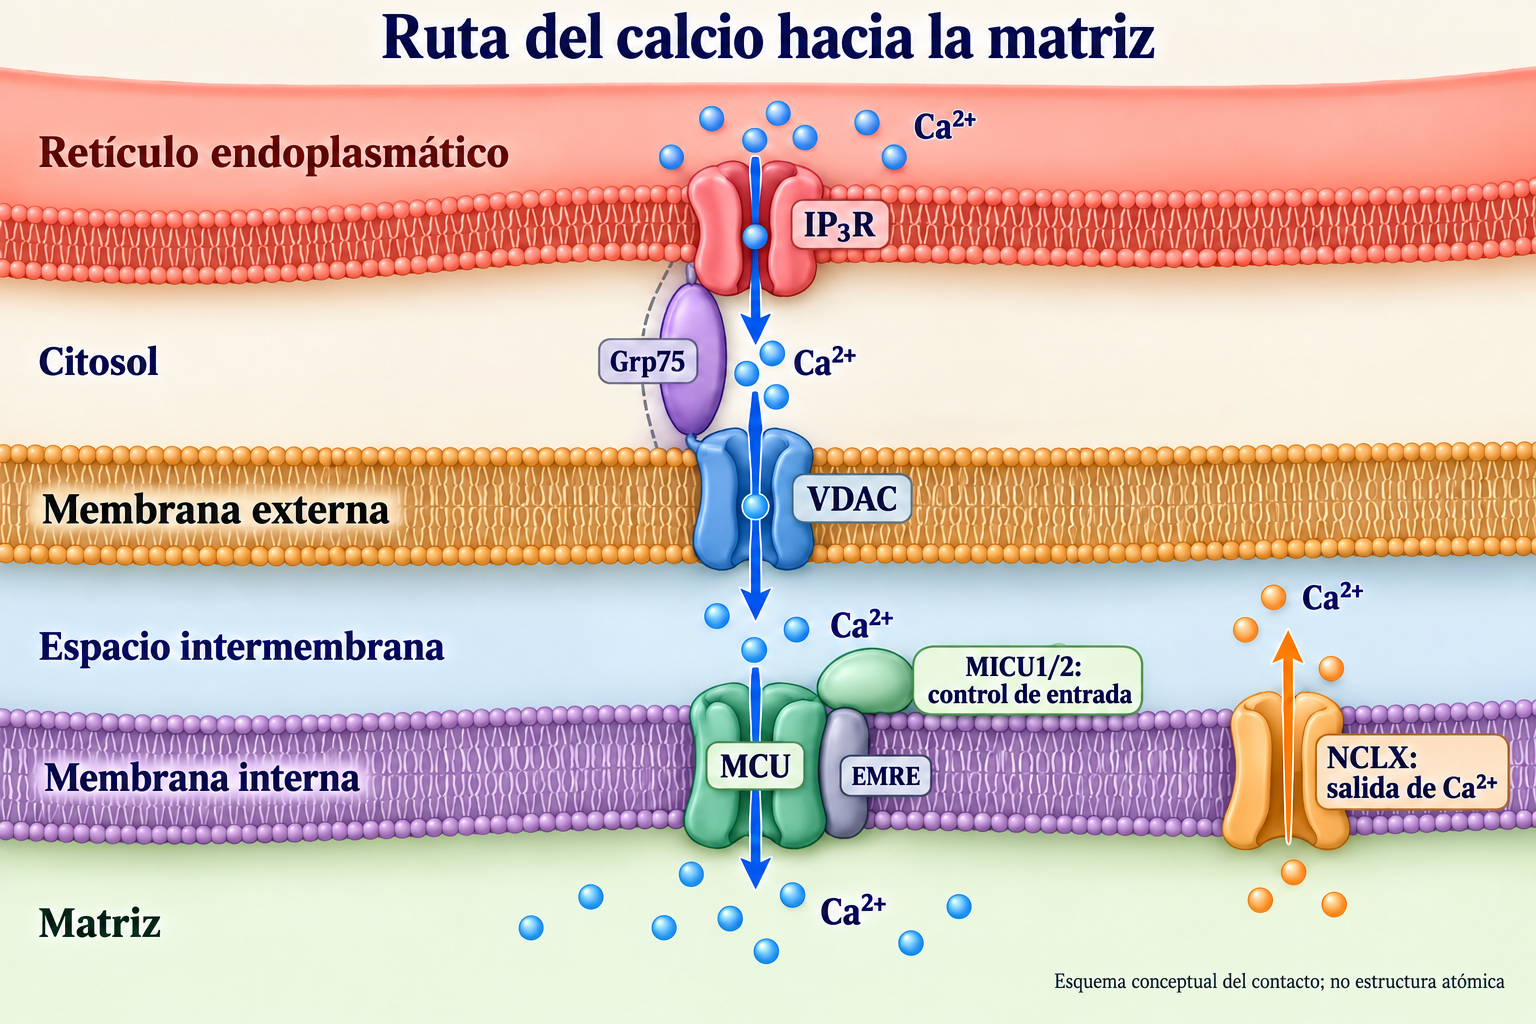
IP₃R libera calcio del RE. Grp75/HSPA9 participa en el acoplamiento funcional con VDAC1 de la membrana externa. El calcio llega después al espacio intermembrana y cruza la membrana interna por MCU. Son proteínas y membranas separadas, no una tubería única IP₃R–Grp75–VDAC–MCU.
Grp75 es una chaperona con varias poblaciones, incluida la matricial; la fracción de contacto no convierte toda la proteína en un puente exclusivamente citosólico. En músculo también importa la liberación del retículo sarcoplásmico por receptores de rianodina. Una configuración no abarca todos los contactos.
Microdominios frente a concentración media
Cerca de un canal abierto, el calcio local puede alcanzar brevemente decenas de micromolar, con una media citosólica mucho menor. Esto explica la respuesta de MCU, sensible al intervalo micromolar. Los 20–50 µM ilustran algunos contextos y no describen cada contacto.
Difusión, unión y cierre de canales determinan duración. Exposición local, distancia y forma temporal pueden ser más informativas que una concentración promediada. Los microdominios obedecen la física habitual y no eliminan límites termodinámicos.
MFN2, PACS2 y otros organizadores
MFN2 participa en dinámica mitocondrial y regulación de contactos. Su función de anclaje se ha debatido en trabajos con resultados diferentes: de Brito 2008, Filadi 2015 y Naon 2016. Métodos, células y definiciones de proximidad obligan a evitar la afirmación de que eliminar MFN2 siempre reduce contactos.
PACS2 y BAP31–FIS1 también intervienen en organización interorgánulo y estrés. No forman un único armazón obligatorio con distancia fija. La enfermedad de Charcot–Marie–Tooth tipo 2A asociada a variantes de MFN2 no se explica solo por pérdida de transferencia de calcio; también importan transporte, fusión y otras funciones.
Calcio y respuesta energética
PDP1 y piruvato deshidrogenasa
El complejo piruvato deshidrogenasa conecta glucólisis y ciclo de los ácidos tricarboxílicos:
Pyruvate+CoA−!SH+NAD+⟶Acetyl−!CoA+CO2+NADH+H+.
El calcio lo regula principalmente mediante PDP1, que favorece desfosforilación de E1α y activación. Las cinasas PDK1–4 actúan en sentido contrario. Los sitios E1α Ser293/300/232 del precursor corresponden a Ser264/271/203 tras retirar el péptido de direccionamiento; mezclar numeraciones genera contradicciones aparentes.
Mg²⁺ participa en catálisis de la fosfatasa y Ca²⁺ en la asociación de PDP1 al complejo. PDP2 tiene propiedades diferentes y no es un interruptor equivalente. Constantes de activación de experimentos concretos no son universales. Los grupos lipoilo de E2 tampoco equivalen al ácido lipoico oral, como explica el artículo sobre R-ALA y PDC.
Isocitrato deshidrogenasa IDH3 dependiente de NAD
IDH3 produce 2-oxoglutarato:
Isocitrate+NAD+⟶2Oxoglutarate+CO2+NADH+H+.
Difiere de IDH2 dependiente de NADP. La regulación por calcio y nucleótidos ayuda a coordinar el ciclo con la carga; ADP y la afinidad aparente por el sustrato son importantes. La composición multisubunidad humana debe describirse según la unidad estructural y el ensamblaje, no con una fórmula única para toda especie.
Los cambios publicados de Kₘ aparente desde valores milimolares a submilimolares corresponden a condiciones particulares. No significan que el calcio multiplique siempre el flujo por un factor fijo: también importan sustratos, NADH/NAD⁺, ATP/ADP y reacciones posteriores.
Complejo 2-oxoglutarato deshidrogenasa
OGDH/OGDC realiza otra descarboxilación oxidativa:
El calcio puede potenciar la respuesta al sustrato; trabajos clásicos describieron menor Kₘ aparente. No es el interruptor PDK/PDP de PDC. La ausencia de esa regulación concreta no implica ausencia de toda modificación postraduccional.
Un ΔG°′ cercano a −33,5 kJ/mol es una referencia; el ΔG real depende de actividades metabólicas. NADH y succinil-CoA pueden limitar el flujo y el complejo es sensible al estado redox. No constituye un motor incondicional controlado exclusivamente por Ca²⁺.
ARALAR, CITRIN y lanzadera malato–aspartato
ARALAR/SLC25A12 y CITRIN/SLC25A13 transportan aspartato y glutamato a través de la membrana interna, no nucleótidos de adenina. Sus regiones EF-hand reguladoras miran al espacio intermembrana y responden al calcio fuera de la matriz. El control metabólico no se limita a iones que ya atravesaron MCU.
La lanzadera transfiere equivalentes reductores del NADH citosólico mediante intercambio de metabolitos. La molécula NADH no cruza como carga de ARALAR/CITRIN. Distribución tisular y disponibilidad de socios determinan su contribución a la respiración.
Respiración, ATP sintasa y regulación anticipatoria
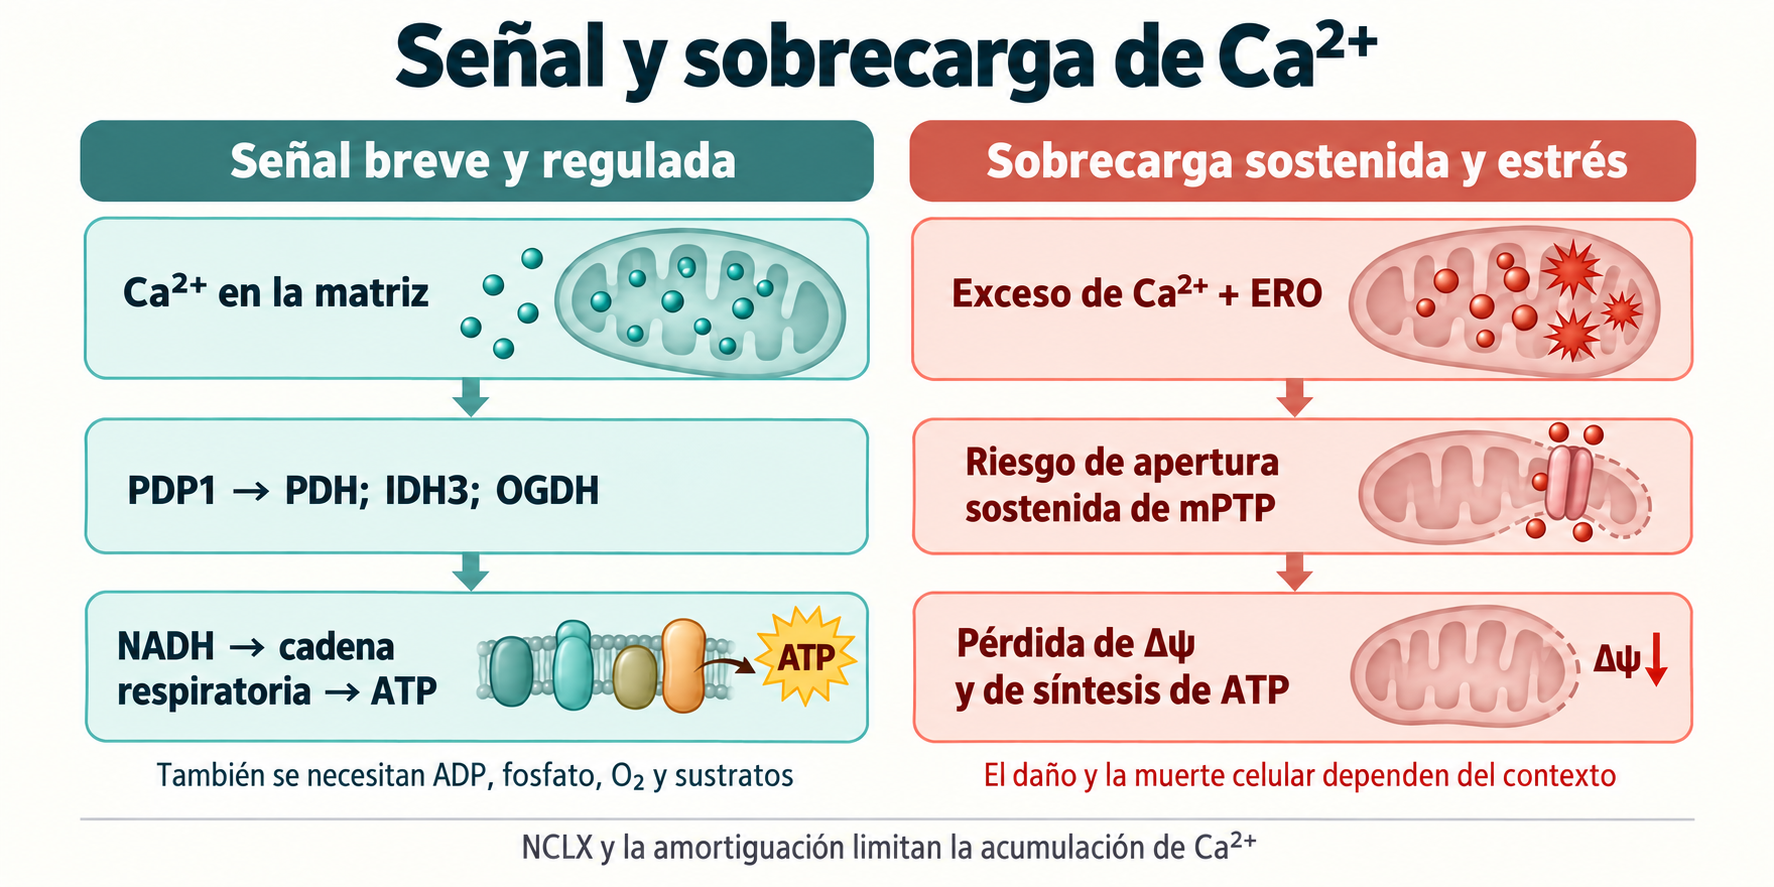
Producir más NADH puede sostener transporte electrónico y ATP si hay oxígeno, ADP, fosfato y sustratos. Esta respuesta anticipatoria complementa la retroalimentación de la demanda. El calcio también activa procesos consumidores de ATP; la utilidad reside en coordinar producción y consumo.
No demuestra que Ca²⁺ desplace universalmente IF1 y acelere siempre el rotor de ATP sintasa. IF1, pH, potencial y dirección del enzima tienen regulación propia. Mantener ATP durante una carga multiplicada es una observación contextual, no una conducta obligatoria de todas las células.
Diana
Lugar de respuesta al Ca²⁺
Relación energética
Inferencia automática injustificada
PDP1 → PDC
Matriz
Desfosforilación de E1α y oxidación del piruvato
Todas las PDP responden igual
IDH3
Matriz
Reacción productora de NADH
IDH2 usa el mismo mecanismo
OGDH / OGDC
Matriz
Respuesta al 2-oxoglutarato
PDK/PDP lo regula como PDC
ARALAR / CITRIN
EF-hand del lado intermembrana
Lanzadera malato–aspartato
Transportan NADH o nucleótidos
Respiración y ATP sintasa
Respuesta integrada
Ajuste de equivalentes reductores a la demanda
Ca²⁺ sustituye ADP, O₂ y sustratos
Sobrecarga, amortiguación y daño
Isquemia, reperfusión y excitotoxicidad
La limitación de oxígeno reduce ATP y altera la homeostasis iónica. Cambios en Na⁺, pH y potencial pueden elevar la carga citosólica; en ciertas condiciones se invierte el intercambiador Na⁺/Ca²⁺ de la membrana plasmática. Es un mecanismo contextual, no una concentración fija en todos los pacientes.
Restaurar el flujo cambia simultáneamente pH, respiración, Δψ y ERO. Recuperar la fuerza impulsora puede facilitar entrada mientras persiste la carga. La activación excesiva de NMDA y otras fuentes participan en excitotoxicidad neuronal. Duración, localización, amortiguación y energía determinan la sobrecarga.
Fosfato y límites del modelo químico
El fosfato ayuda a retener calcio. Entre las estequiometrías posibles se encuentran:
Las ecuaciones equilibran masa y carga, pero no demuestran que los gránulos mitocondriales sean siempre hidroxiapatita madura. Se consideran complejos amorfos influidos por pH, Mg²⁺ y componentes orgánicos. La amortiguación puede reducir la fracción libre mientras aumenta el total. «99% unido» no es universal sin las condiciones de medición.
mPTP y Cyclophilin D
La apertura sostenida del poro de transición de permeabilidad puede destruir selectividad de membrana interna, reducir Δψ y perjudicar ATP. Ca²⁺, oxidación y otros factores modifican su probabilidad. Cyclophilin D/PPIF regula sensibilidad; no está establecida como subunidad porogénica obligatoria cuya única función sea detectar directamente calcio.
Se investigan modelos relacionados con ANT y ATP sintasa, incluidas distintas organizaciones de esta. Los episodios transitorios no equivalen a apertura patológica sostenida. Una descripción operacional de paso de moléculas de alrededor de 1,5 kDa no establece una geometría exacta.
Daño de membrana y apoptosis
La alteración persistente de la membrana interna puede causar hinchamiento y daño externo. Citocromo c liberado, Apaf-1 y nucleótidos permiten formar el apoptosoma, activar caspasa-9 y después caspasas-3/7. Las crestas y las interacciones citocromo c–cardiolipina influyen en su disponibilidad.
Smac/DIABLO y Omi/HtrA2 interactúan con inhibidores de apoptosis; AIF y endonucleasa G participan en algunas vías independientes de caspasas. Sin embargo, BAX/BAK puede permeabilizar la membrana externa sin apertura obligatoria de mPTP. No toda apoptosis sigue una única secuencia MCU → mPTP → citocromo c.
Fallo energético, necrosis e inflamación
Tras perder potencial, ATP sintasa puede invertirse y consumir ATP bajo determinadas condiciones; IF1 y pH influyen. El agotamiento no sucede siempre en un número fijo de minutos. El déficit grave favorece con frecuencia necrosis, pero no determina absolutamente la modalidad de muerte.
Las células dañadas liberan ADN mitocondrial, HMGB1 y otras señales de peligro, implicando inflamación. Los trabajos de Baines y Nakagawa 2005 con pérdida de Cyclophilin D distinguieron mecanismos necróticos y apoptóticos. Cuestionan que bloquear un regulador prevenga toda muerte celular.
NCLX: salida y duración de la señal
Intercambiador, no bomba de ATP
NCLX/SLC8B1 media intercambio Na⁺/Ca²⁺ de membrana interna y puede utilizar Li⁺ experimentalmente. El modelo electrogénico habitual introduce tres Na⁺ por un Ca²⁺ que sale:
3Naout++Cain2+⇌3Nain++Caout2+.
in representa matriz y out el lado intermembrana. En esta dirección entra una carga positiva neta. El flujo depende de sodio, calcio y potencial; otros procesos, incluido intercambio con protones, sostienen el gradiente de sodio. NCLX no consume directamente ATP como bomba.
Balance y amortiguación
MCU es un canal y NCLX un transportador con ciclo conformacional; su cinética difiere. No está establecido un cociente universal de velocidades de 20–50 ni un recambio fijo. El balance del calcio total se escribe:
dtdCT=JMCU−JNCLX−Jother.
Con normalización coherente de flujos y volumen, la relación con calcio libre utiliza β = dCₜ/dCfree. Mayor amortiguación reduce el cambio libre para la misma variación del total. Una recuperación incompleta entre pulsos puede acumular calcio sin una señal individual excepcionalmente grande.
Corazón y sistema nervioso
Luongo 2017 observó disfunción grave y muerte temprana al eliminar condicionalmente NCLX en corazón de ratón adulto; aumentar expresión limitó sobrecarga en otros experimentos. Demuestra importancia de la salida en un modelo, no un tratamiento listo para insuficiencia cardíaca humana.
Se investigan cambios de NCLX y vías relacionadas con PINK1 en neurodegeneración. Estas asociaciones no establecen que su déficit sea causa única de Alzheimer o Parkinson. La traslación requiere entrega, selectividad tisular, seguridad y resultados clínicos controlados.
Herramientas farmacológicas e hipótesis nutricionales
Rojo de rutenio, Ru360 y Ru265
El rojo de rutenio se utiliza históricamente para limitar captación, pero tiene otras dianas. Ru360 es más selectivo en varios sistemas; su baja permeabilidad plasmática dificulta estudios en células intactas. No puede llamarse absolutamente nula bajo cualquier preparación.
Ru265 se desarrolló como herramienta de rutenio más permeable. Woods 2019 investigó propiedades y protección experimental. Estructura, carga, exposición y toxicidad deben evaluarse para ese compuesto: el nombre no demuestra que sea un complejo neutro de fenantrolina, totalmente inocuo o clínicamente protector.
MCU-i4/i11 y DS16570511
Di Marco 2020 identificó MCU-i4 y MCU-i11 como compuestos dirigidos a MICU1. Su acción no se explica exclusivamente por unión entre subunidades MCU. Reducir acumulación requiere separar efectos sobre sensor, canal y fuerza impulsora.
Kon 2017 estudió DS16570511, no DS1211, en células, mitocondrias aisladas y corazones de rata perfundidos; la potencia varió entre sistemas. Yamada 2025 indica múltiples efectos, incluidos respiración y potencial. La selectividad necesita pruebas; el nombre no demuestra unión directa a MCU ni beneficio humano.
EFHD1 / Mitocalcin
EFHD1, Swiprosin-2 o Mitocalcin es una proteína que une calcio e interesa en regulación mitocondrial. Meng 2023 estudió interacción con MCU en modelos de carcinoma renal de células claras. Esto no la convierte en subunidad obligatoria de todos los holocomplejos ni en freno universal.
Su papel depende de tejido, localización y manipulación. «Modulador endógeno» no determina dirección del efecto ni fundamenta una estrategia clínica para cambiar su expresión.
Mg²⁺ y estado mineral
El Mg²⁺ citosólico libre suele estimarse en 0,5–1 mM. Influye en numerosos enzimas, nucleótidos y procesos iónicos; experimentalmente modifica captación y umbral. La hidratación fuerte explica diferencias respecto a Ca²⁺, pero no prueba una única geometría de bloqueo por Asp261 y MICU1.
El desplazamiento de K₀․₅ depende del medio. Corregir un déficit confirmado tiene fundamento clínico propio, pero elegir taurato, malato o L-treonato no está establecido para saturar específicamente la entrada de MCU. Una concentración experimental no proporciona una dosis de suplemento para proteger mitocondrias.
Cys96 y regulación redox
Dong 2017 relacionó el estado oxidativo de Cys96 en el NTD matricial de MCU con reorganización y mayor transporte en sistemas estudiados. Es un dominio regulador de canal, no el centro catalítico de un enzima. La numeración Cys96/Cys97 debe corresponder a secuencia y publicación.
Modificaciones redox y oligomerización sugieren retroalimentación entre estrés, carga de calcio y ERO. No toda modificación tiol es la misma unión disulfuro, ni está demostrada la pérdida universal de regulación MICU1/2. El artículo sobre SOD2 explica conversión del superóxido y defensa posterior frente a peróxidos en este sistema de múltiples niveles.
R-ALA, NAC, astaxantina y ritmos diarios
Se estudian ácido lipoico, NAC y astaxantina por su relación con redox, glutatión y lípidos. Esto no demuestra reducción directa de Cys96 humano por R-ALA oral, recuperación selectiva por NAC ni orientación única de astaxantina en todas las membranas. Los grupos lipoilo unidos a enzimas y los suplementos libres tampoco son intercambiables.
Las combinaciones de dosis originales no están validadas como tratamiento de MCU por las referencias. No se establece un protocolo universal según diagnóstico, sal o horario. La regulación circadiana del metabolismo merece estudio independiente; cerrar obligatoriamente MCU de noche y prevenir arritmias con antioxidantes vespertinos requiere datos propios. Sueño y actividad no convierten una hipótesis molecular en tratamiento.
Infarto, ictus y límites de traslación
Limitar sobrecarga es una hipótesis preclínica razonable para isquemia–reperfusión. También puede reducir una respuesta energética útil. Importan fase, tejido, duración y compensación; farmacología aguda y eliminación genética crónica no tienen por qué coincidir.
La bibliografía no establece reducción universal del infarto del 45–60%, de arritmias mortales del 70% ni ampliación de la ventana de reperfusión del ictus a 8–12 horas mediante inhibidores MCU. No son resultados clínicos de este artículo. Las herramientas experimentales no sustituyen atención médica establecida; remodelado cardíaco y neurodegeneración requieren ensayos propios.
Herramienta o factor
Contexto
Interpretación
Rojo de rutenio
Bloqueador histórico
Considerar otras dianas
Ru360
Bloqueador experimental más selectivo
Controlar entrada en células intactas
Ru265
Desarrollo de herramienta permeable
Protección del modelo no equivale a eficacia humana
MCU-i4 / MCU-i11
Compuestos dirigidos a MICU1
No atribuirles diana poral MCU demostrada
DS16570511
Cribado de inhibidores
Medir Δψ y respiración; no confundir con DS1211
EFHD1
Proteína endógena y modelos tisulares
No es subunidad universal obligatoria
Mg²⁺
Homeostasis mineral y enzimática
Corregir déficit no valida bloqueo MCU
R-ALA / NAC
Hipótesis redox y tioles
Corrección oral dirigida a Cys96 no demostrada
Astaxantina
Oxidación lipídica experimental
Protección humana universal de MCU o MAM no demostrada
Investigación e interpretación de pruebas
Abundancia proteica, corriente, calcio matricial libre, acumulación total y ATP son mediciones diferentes. Los sensores fluorescentes dependen de localización, calibración y pH; mitocondrias aisladas difieren de células intactas. Reducir Δψ y captación no demuestra por sí solo bloqueo directo del canal.
Un estudio mecanístico sólido combina transporte con medición independiente de potencial y respiración, comprobación genética y evaluación de daño. Edad, tejido, intervención aguda o crónica y reperfusión importan al comparar. La eficacia clínica requiere resultados humanos; una señal modificada no los sustituye.
MCU explica cómo un pulso espacialmente organizado llega a reacciones metabólicas. MICU, EMRE, contactos, NCLX y amortiguadores fijan amplitud y duración. No existe una única posición óptima «siempre abierto» o «siempre cerrado»: la respuesta y el riesgo dependen de flujos y energía coordinados.
Cómo se preparó el material
La base fue el texto científico proporcionado, con historia, mecanismos, ecuaciones, tres tablas y bibliografía. Durante la edición del 8 de octubre de 2026 se compararon selectivamente registros RCSB de 6DNF, 6O58 y 6WDN, publicaciones primarias de DS16570511 y compuestos dirigidos a MICU1, y descripción de EFHD1. Se corrigieron identificadores bibliográficos estructurales, DS1211, clasificación de ARALAR/CITRIN, signos electroquímicos y marcado matemático dañado. La controversia MFN2 y la composición incierta de mPTP permanecen explícitas.
Es una revisión narrativa y examen editorial. No hubo nueva selección sistemática de toda la literatura, metaanálisis, validación clínica independiente, revisión externa ni evaluación GRADE. Otras referencias conservan la base bibliográfica aportada sin afirmar una auditoría nueva completa de cada publicación. Dosis no demostradas y promesas numéricas de protección clínica no se presentan como resultados establecidos.
Preguntas frecuentes
¿Conviene inhibir permanentemente MCU?
No. Las señales reguladas apoyan la energía, pero una sobrecarga sostenida puede lesionar. Tejido, momento, amortiguación y salida de calcio determinan el resultado.
¿Nernst predice el calcio normal de la matriz?
No. El cálculo de equilibrio ilustra fuerza impulsora; el sistema vivo regula entrada, salida y unión, y no ocupa ese equilibrio.
¿Magnesio y antioxidantes validan un tratamiento universal?
No. Concentraciones celulares, mecanismos redox y protección de modelos no establecen dosis ni beneficio humano. No validan una corrección oral dirigida a MCU.
¿Por qué medir Δψ al estudiar un inhibidor?
El potencial impulsa la entrada. Su caída reduce acumulación sin bloquear directamente el canal; se necesitan medidas independientes de respiración y validación de la diana.