
Адипонектин: мультимерлер, AdipoR1/R2 және май қышқылдарының тотығуы
ADIPOQ және HMW түзілуі, инверсияланған рецепторлар, церамид гидролизі, APPL1, бұлшықет AMPK және бауыр PPAR-α. Адамдағы байланыстар, генетика және клиникалық шектеулер.
Адипонектин май тінін бұлшықет, бауыр, қантамыр және иммундық жүйе физиологиясымен байланыстырады. Оның негізгі көзі адипоциттер болғанымен, висцералдық семіздік кезінде қандағы деңгейі жиі төмендейді. Сондықтан оны биомаркер әрі емнің ықтимал нысанасы ретінде зерттейді. Бірақ жоғары концентрацияның ауру қаупімен кері байланысы көрсеткішті көтеру аурудың алдын алады дегенді білдірмейді.
ADIPOQ және айналымдағы мультимерлер
Адамның 3q27.3 аймағындағы ADIPOQ гені 244 аминқышқыл қалдығынан тұратын бөлінетін ақуызды кодтайды. Бұрынғы атаулары — Acrp30, apM1, GBP28 және AdipoQ. Құрылымы кесіліп алынатын сигналдық пептидтен, өзгермелі N-ұштық аймақтан, Gly-X-Y қайталанулары бар коллагенге ұқсас бөліктен және C-ұштық глобулалық доменнен тұрады. Прекурсордың есептелген массасы электрофорездегі көрінерлік массадан өзгеше: модификациялар мен өлшеу тәсілі «30 кДа» атауын түсіндіруге көмектеседі. Домен шекаралары мен қалдық нөмірлері ағза түрі және нақты тізбекпен бірге берілуі керек.
Shapiro және Scherer зерттеген глобулалық құрылымда (1998; PDB 1C28) C1q/TNF тобына ұқсас β-сэндвич қатпары бар. Үш бас ковалентті емес байланыстармен бірігеді, ал коллагенге ұқсас тізбектер үштік шиыршық сабақты құрайды. Қатпар ұқсастығы адипонектинді қабынуды қоздыратын TNF цитокиніне айналдырмайды. Әр үшінші орындағы глицин тығыз орналасуға мүмкіндік береді; гидроксилдену мен гликозилдену құралуға және секрецияға әсер етеді.
Толық ұзындықтағы гормон негізінен олигомерлер түрінде айналады. LMW тримері — құрылымдық бірлік, MMW гексамері — екі тример, HMW кешені — бірнеше тример, көбіне 12–18 суббірлік деп сипатталады. Шамамен 70, 140 және бірнеше жүз кДа массалар аналитикалық жуықтаулар. Фракциялар үлесі жынысқа, алмасу жағдайына, үлгіні дайындауға және әдіске тәуелді. LMW тиісті тәжірибелерде белсенді, сондықтан оны барлық жағдайда енжар қор деп атауға болмайды.
Глобулалық gAd фрагменті тәжірибелерде кең қолданылады. Лейкоциттік эластаза гормонды ыдырата алады, бірақ бұл қандағы қалыпты gAd үлесін немесе нақты физиологиялық рөлін әмбебап түрде анықтамайды. Рекомбинантты фрагменттің әсерін бүкіл табиғи гормонға автоматты түрде көшіруге болмайды.
Модификациялар және секрецияны бақылау
Консервативті N-ұштық цистеин молекулааралық дисульфидтік байланыстарға қатысады: адам прекурсорында Cys36, тышқанда Cys39. Айырмашылық ағза түріне байланысты; сигналдық пептидті алып тастаудан Cys39-дың Cys36-ға айналуы емес. Он сегіз қалдық кесілсе, нөмір он сегізге өзгереді. Мутациялық зерттеулер жоғары олигомерлер үшін цистеиннің маңызын дәлелдейді, ал тримерлердің ковалентті емес байланыстары сақталуы мүмкін (Pajvani және әріптестері, 2003; Wang және әріптестері, 2007).
Коллагенге ұқсас домендегі лизиндер гидроксилденіп, кейін гликозилденеді. Wang және әріптестері (2006) зерттелген тізбекте 68, 71, 80 және 104 орындарын сипаттады: төрт лизинді аргининмен алмастыру HMW құралуын таңдамалы бұзды. Нөмірлерде түр мен прекурсор номенклатурасы ескеріледі. Гидроксилазалар оттекті, темірді және 2-оксоглутаратты пайдаланады; гидроксилизинге галактоза мен глюкоза қосылады:
Lys — лизин, Hyl — гидроксилизин. Пролиннің гидроксилденуі құрылым тұрақтылығына көмектеседі, бірақ пролин мен лизин бірдей гликозилденеді деген сөз емес. Пролиннің нақты орындары, әр ферменттің үлесі және белсенділіктің толық жоғалуы коллаген жөніндегі жалпы мәліметтен емес, тікелей тәжірибеден негізделуі тиіс.
Эндоплазмалық торда (ЭПТ) ERp44 адипонектинді уақытша аралас дисульфидпен ұстайды. Ero1-Lα тиолға тәуелді ұсталу мен босатылуды реттейді; DsbA-L мультимерленуге және ЭПТ стрессінен қорғануға көмектеседі (Wang және әріптестері, 2007; Liu және әріптестері, 2008). DsbA-L атауы гомологияны білдіреді, міндетті классикалық бактериялық оксидаза қызметін емес. Адам гені — GSTK1, жеке DSBAL локусы емес. Ero1 — тотықтырғыш фермент; оны ERp44-ті тікелей тотықсыздандыратын фермент деп қана түсіндіру дұрыс емес. Қатпарлану, ұсталу, құралу, Гольджи арқылы өту және секреция — бөлек сатылар.
HMW үлесін түсіндіру
Pajvani және әріптестері (2004) кешендердің таралуын тиазолидиндиондармен ем кезіндегі инсулинге сезімталдық өзгерісімен байланыстырды. Екі өлшемсіз қатынас әртүрлі шаманы көрсетеді:
H, M, L — бірдей бірліктермен, салыстырмалы әдіспен өлшенген HMW, MMW және LMW концентрациялары. Бөлімдер оң болып, фракциялар бірдей есептелсе:
Бірінші қатынастағы 0,5 екіншісінде 1,0 болады. Оларды шатастыру нәтижені айтарлықтай өзгертеді. Ешқайсысы әмбебап клиникалық эталон емес: бір HMW пайызы барлық популяцияда инсулинге төзімділікті немесе денсаулықты анықтамайды. Жалпы концентрация, әдіс, бүйрек қызметі, жыныс, жас және жағдай маңызды.
Қабыну, адипоцит гипертрофиясы, гипоксия, тотығу және ЭПТ стрессі семіздік кезінде экспрессияны не секрецияны төмендетуі мүмкін. TNF-α/IL-6, NF-κB/JNK, PPAR-γ қызметінің бұзылуы және дұрыс қатпарланбаған ақуыздарға жауап тәжірибелік байланыстар береді. Созылмалы инсулинге төзімділік те секрецияға әсер етеді. Бір жасуша диаметрі, міндетті ADIPOQ промотор метилденуі немесе IRE1 арқылы мРНҚ-ның әмбебап ыдырауы әр науқас үшін дәлелденген емес. Бұл ауыр ауруда концентрацияның жоғары болуы парадоксынан бөлек мәселе.
Рецепторлар, адаптерлер және сфинголипидтер
Yamauchi және әріптестері (2003) AdipoR1 мен AdipoR2-ні анықтады. Екеуі де бірнеше тінде кездеседі; бұлшықеттегі AdipoR1 мен бауырдағы AdipoR2-ге зерттеу назарын аудару ерекше локализацияны білдірмейді. Адам AdipoR1-інде 375, AdipoR2-де 386 қалдық бар, екіншісінде 311 емес. Бастапқы ADIPOR1 «1p36.13–q41» белгісі үйлеспейтін координаттарды біріктіреді және сақталмайды.
Олар PAQR тобына жатады. Жеті трансмембраналық шиыршық кәдімгі GPCR дегенді білдірмейді: N-ұшы цитоплазмада, C-ұшы жасуша сыртында. Tanabe және әріптестері (2015) ішінде мырыш бар қуыс құрылымын анықтады. nature14301 — DOI бөлігі, дұрыс PDB коды емес. Лигандты тану, липид субстратының енуі және сигнал беру тәжірибеде зерттеледі; гормонсыз рецептор құрылымы бүкіл байланысу геометриясын анықтамайды.
Vasiliauskaité-Brooks және әріптестері (2017) тазартылған AdipoR2-нің адипонектинмен күшейетін өзіндік базалық церамидазалық белсенділігін және байланысқан май қышқылы бар құрылымын көрсетті. Бұл Holland және әріптестерінің (2011) рецепторға байланысты церамидаза нәтижелерін толықтырады. Мырышты қуыс пен ұсынылған субстрат қалпы каталитикалық модельді қолдайды, бірақ барлық деталь мен физиологиялық селективтілікті шешпейді. Қалдық нөмірлері нақты рецептор және түрмен салыстырылуы тиіс.
Реакциялар ажыратылады:
Гидролиз сфингозин-1-фосфатты (S1P) тікелей түзбейді; келесі фосфорлануды сфингозинкиназалар орындайды. Церамидтер фосфатаза және киназа жолдарымен Akt сигналын бұзып, апоптозға ықпал ете алады. Сфинголипид теңгерімін өзгерту кейбір модельдерде кардиомиоцит пен β-жасуша тіршілігін, соның ішінде AMPK-тан тәуелсіз жолдармен, қолдайды. Әр церамид пен S1P әсері жағдайға тәуелді; барлық «уытты липидтің» жойылуы немесе әмбебап қорғаныс клиникалық қорытынды емес.
CDH13 өнімі T-кадгерин GPI-якорьмен бекіген, кәдімгі жасушаішілік құйрығы жоқ. Hug және әріптестері (2004) гексамер мен HMW байланысуын, тример және глобулалық фрагменттердің байланыспауын көрсетті. Ол әсіресе жүрек-қантамыр тіндеріндегі гормон жиналуына көмектеседі; Denzel және әріптестері (2010) тышқан кардиопротекциясындағы маңызын көрсетті. Бұл классикалық киназалық рецептор немесе толық дәлелденген міндетті AdipoR–интегрин кешені емес.
APPL1-дің BAR, PH және PTB домендері мембрана мен эндосома қатынасын сигнал берумен байланыстырады. Mao және әріптестері (2006) AdipoR-мен байланысын, липид тотығуына, глюкоза сіңірілуіне және GLUT4 ауысуына әсерін көрсетті. PTB арқылы цитоплазмалық аймақты тану рецептор тирозинінің алдын ала фосфорлануын міндетті етпейді. APPL1 Akt, IRS және Rab тасымалы арқылы адипонектин мен инсулин жолдарын байланыстырады. APPL2 бәсекелесу және APPL1-мен әрекеттесу арқылы тежеуі мүмкін, бірақ барлық метаболикалық стрессте толық бөгелу барын дәлелдемейді. Бастапқы 887 қалдық адам APPL1-інің канондық ұзындығы емес.
Бұлшықет: митохондриялық тотығуға қолжетімділік
Адипонектин LKB1 және кальций/CaMKKβ жолдарының қатысуымен AMPK каталитикалық α-суббірлігіндегі Thr172 фосфорлануын күшейте алады. Iwabu және әріптестері AdipoR1-ді кальций сигналы, PGC-1α және тотығу қабілетімен байланыстырды. Белсенділік өсімі модельге тәуелді; клиникада әмбебап 100–500 есе жауап анықталмаған.
AMPK ацетил-КоА-карбоксилазаны фосфорлап тежейді. ACC2-мен байланысты малонил-КоА бұлшықет CPT1B-сін тежейді. Ол азайса, тежелу әлсіреп, ұзын тізбекті ацил топтары митохондриялық тотығуға көбірек қолжетімді болады. CPT1 және карнитин тасымалы материалы тасымал мен β-тотығуды ажыратады. CPT1B сыртқы мембранада ацилкарнитин түзеді; CACT ішкі мембрана арқылы карнитин/ацилкарнитинді алмастырады; CPT2 матрикс жағында ацил-КоА-ны қайта түзеді. CPT2-ні алып тастау не цитозоль ацил-КоА-сының ішкі мембранадан тікелей өтуін көрсету механизмді өзгертеді.
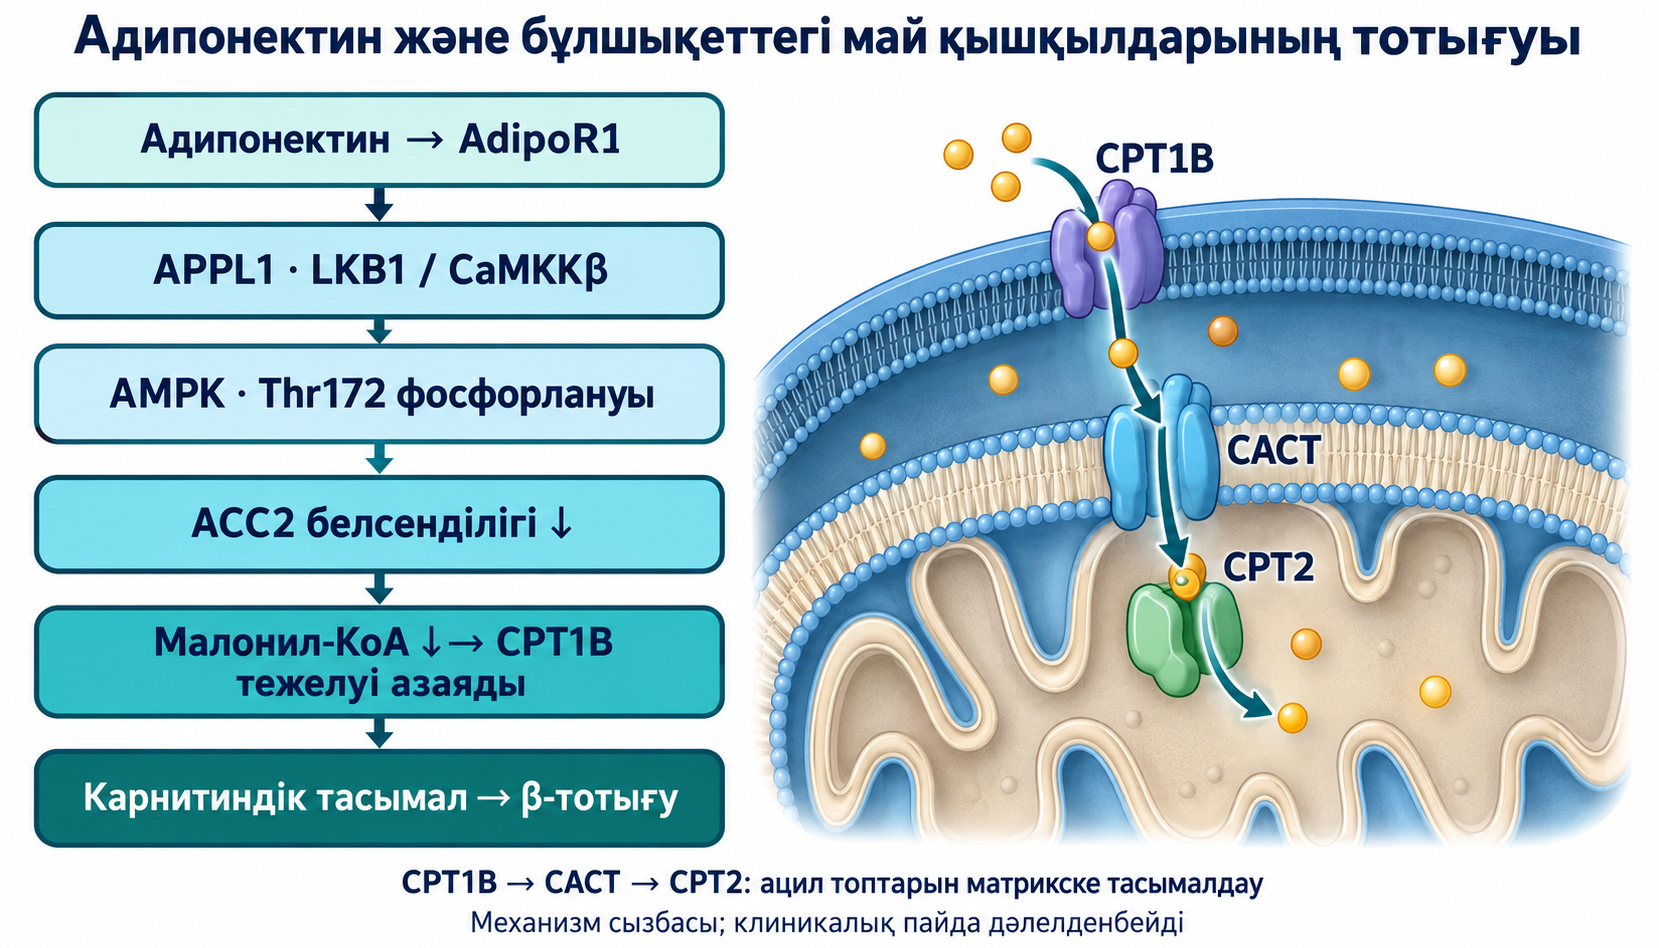
AMPK-қа байланысты глюкоза сіңірілуі GLUT4 везикулаларын, Rab-GAP TBC1D1 және TBC1D4/AS160 реттегіштерін, Rab белсенуін, жақындасу мен SNARE арқылы мембрана қосылуын қамтиды. Фосфорлану орындары мен киназалар түр және стимулға тәуелді. Инсулинге тәуелсіз сигнал сезімталдық жақсаруымен қатар жүруі мүмкін, бірақ ауыр диабетте қалыпты сіңірілуге кепілдік бермейді. DAG/PKC және церамид/Akt липидтік төзімділікті түсіндіреді; DAG β-тотығудың тікелей субстраты емес, алдымен оның ацил бөліктері босатылуы қажет.
PGC-1α митохондриялардың ұзақ бейімделуін үйлестіреді. AMPK фосфорлануы, NAD-қа тәуелді SIRT1 деацетилденуі, NRF, ERRα және TFAM бағдарламалары оның белсенділігін реттейді. NAMPT және NAD алмасуы да қатысады; NAD SIRT1 косубстраты, жай аллостериялық қосқыш емес. PGC-1α және митохондриялық биогенез мақаласы осы желіні түсіндіреді. Сигналдар тұрақты аса белсенділікке не барлық талшықтың I түрге міндетті ауысуына әкелмейді.
Бауыр: тотығу, липогенез және глюкоза
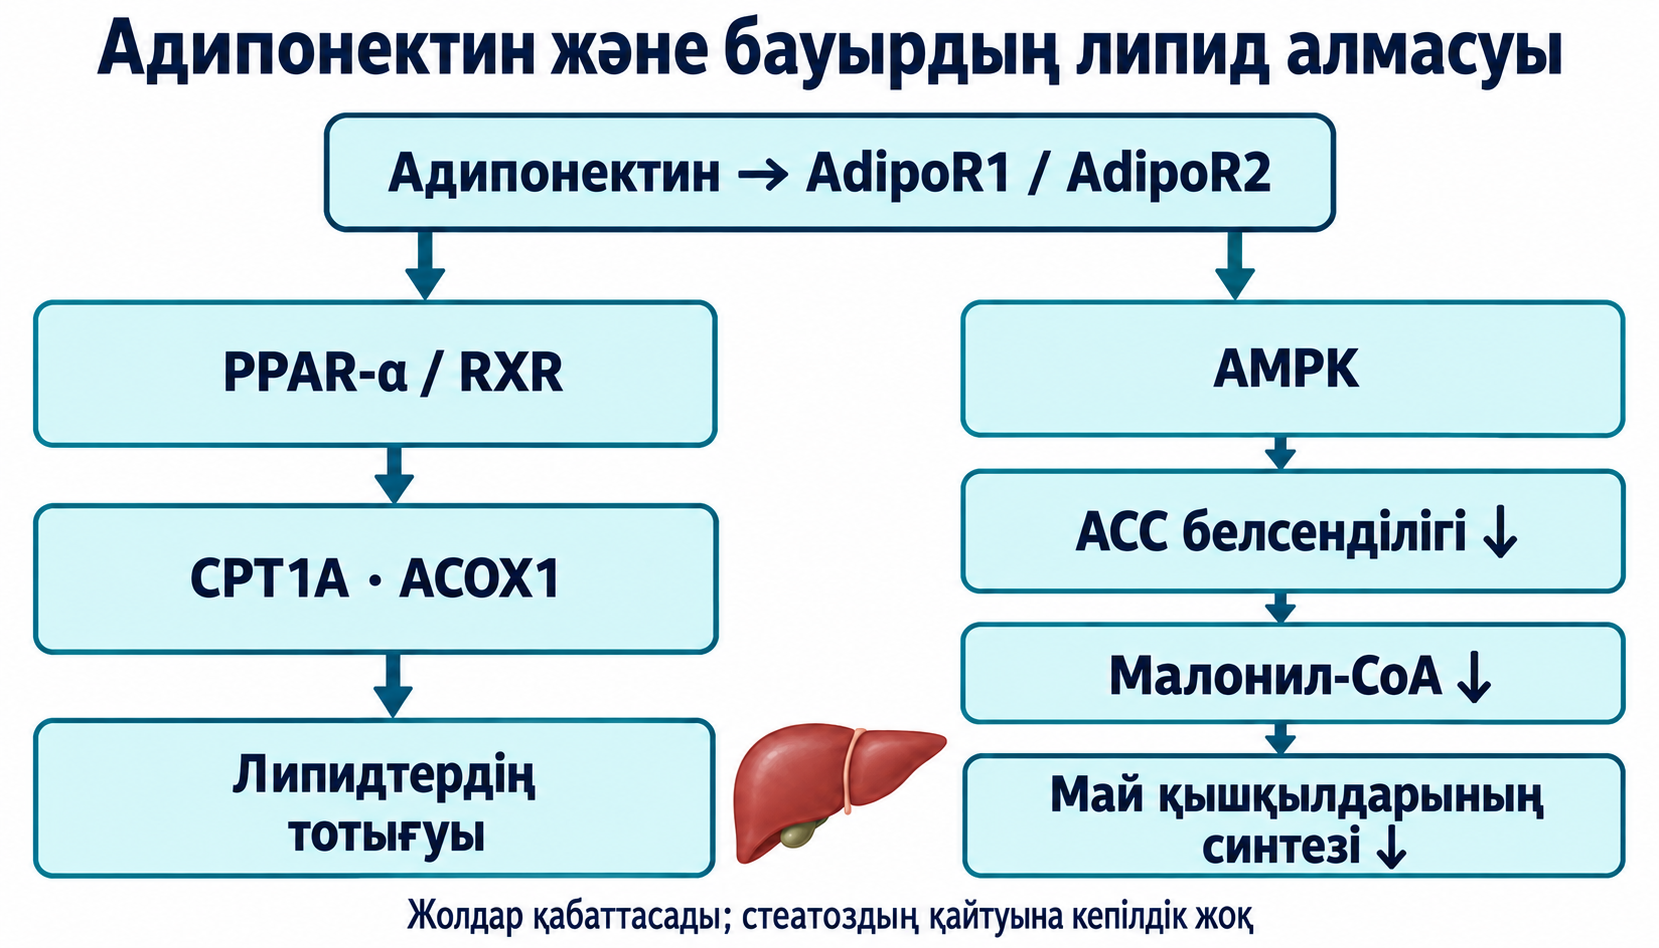
AdipoR2-ге байланысты PPAR-α белсенділігі липид айналымының транскрипциялық бағдарламаларын қолдайды. PPAR-α RXR-мен жұптасып, жауап элементтеріне байланысады; нысаналар арасында митохондриялық тасымал мен пероксисомалық тотығуға қатысты CPT1A, ACOX1 бар. APOA1 липопротеин биологиясына жатады, β-тотығу ферменті емес. Пероксисомалар кейбір өте ұзын май қышқылдарын қысқартады; бірінші саты сутек асқын тотығын түзеді, электрондарды митохондрия секілді тыныс тізбегінде сақтамайды. Бауырда AdipoR1 және AMPK та жұмыс істейді, сондықтан жолдар қабаттасады.
AMPK арқылы ACC тежелуі малонил-КоА мен de novo липогенезді төмендетуі мүмкін. SREBP-1c өңделуі мен транскрипциясы FASN, SCD1-ге әсер етеді. ACC1 Ser79 немесе ACC2 Ser212/Ser221 нөмірлері түр мен изоформаға байланысты өзгереді, адамның әмбебап координаттары емес. Сызба екіұшты нөмірсіз реттелу бағытын көрсетеді.
CREB–CRTC2 PCK1 және G6PC-ті реттейді. Фосфорланған CRTC2 14-3-3-пен байланысып ядродан тыс қалуы мүмкін. Бірақ адипонектиннің глюкоза өндірісін азайтуы міндетті тікелей AMPK→CRTC2 Ser171 сатысымен шектелмейді: Miller және әріптестері (2011) LKB1–AMPK-сыз әсерді көрсетті. Туыстас киназалар мен басқа механизмдер маңызды. Бір түйінді тежеу қажетті бауырлық глюкоза өндірісін бірден толық тоқтатпайды. Тышқан бауырының жақсаруы адам MASLD немесе MASH-ының адипонектинмен кері дамуын дәлелдемейді.
Қантамыр және иммундық әсерлер
Эндотелий тәжірибелері AMPK/Akt, eNOS, NO қолжетімділігі, Hsp90 және ангиогенезбен байланыс көрсетеді (Ouchi және әріптестері, 2004). NO тегіс бұлшықеттегі ерігіш гуанилатциклазаны іске қосып, цГМФ/PKG және босаңсуды арттырады. Супероксид NO-ны тұтынып, пероксинитрит түзе алады. Аргинин→цитруллин+NO сызбасы пайдалы, бірақ теңестірілмеген реакция eNOS-тың дәл стехиометриясы емес. Бұл барлық адамдағы қысымның қалыпқа келуін көрсетпейді.
Ouchi және әріптестері (1999) TNF туғызған адгезия молекулаларының өзгерісін көрсетті. NF-κB/IκB, VCAM-1, ICAM-1 және E-селектин қабыну мен моноцит келуін байланыстырады. Макрофаг тәжірибелері цитокиндер, IL-10/IL-1Ra, липид сіңірілуі және көбік жасушалары өзгерісін қолдайды. M1/M2 — кеңірек жасушалық күйлер спектрінің қарапайым моделі. Гормон барлық адгезияны не атеросклерозды жоймайды.
Тышқан ишемия–реперфузия модельдері AMPK және COX-2 қорғанысын көрсетті (Shibata және әріптестері, 2005); T-кадгерин мен сфинголипидтер оны толықтырады. Қысымдық жүктеме модельдері гипертрофияға қарсы әсерді қолдайды (Shibata және әріптестері, 2004). TSC2 бағыты түзетіледі: AMPK TSC2 арқылы mTORC1 тежелуін күшейте алады, mTOR-ды тежеу үшін TSC2-ні баспайды. Нақты тәжірибедегі инфаркт аумағы адамға 30–50% төмендеу уәдесі емес.
Адамдағы байланыстар және парадокс
Төмен деңгей көптеген когортта семіздік, инсулинге төзімділік, 2-типті диабет және майлы бауырмен бірге кездеседі. Аралықтар қабаттасып, әдіске тәуелді: 5–20 мкг/мл — сипаттама, әмбебап референс емес; төмендеу патогномониялық белгі емес. Жыныс пен андроген әсері бір санды диагнозға айналдырмайды. Бауырдың жұлдызша жасушаларын тәжірибелік тежеу фиброзға қарсы болжамды қолдайды, бірақ қан көрсеткіші MASH фиброзын жеке анықтамайды.
Pischon және әріптестері (2004) HPFS-тегі 18 225 ер адамның ішінен кірістірілген жағдай–бақылау үлгісін зерттеді: алты жылда 266 оқиға, 532 бақылау. Жоғарғы квинтильді төменгімен салыстырғанда кең түзетуден кейін RR 0,41, 95% СА 0,24–0,70; LDL/HDL қосылғанда 0,56, 0,32–0,99 болды. Бастапқы 0,44 және «липид түзетуінен кейін 56% төмен» дұрыс емес. RR 0,56 үшін салыстырмалы төмендеу 100×(1−RR)=44%; бұл жеке адамның абсолюттік қаупін төмендету емес.
Spranger және әріптестері (2003), EPIC-Potsdam кірістірілген зерттеуінде, жоғарғы және төменгі квартиль үшін OR 0,3, 95% СА 0,2–0,7, P=0,0051 хабарлады. Бұл мүмкіндіктер қатынасы, бастапқы RR 0,37 емес. Екі жұмыс та гормонды көтеретін араласуды зерттемеген және қорғаныстың дәл 80%-ын HMW түсіндіретінін көрсетпейді.
Созылмалы жүрек жеткіліксіздігінде жоғары деңгей өлімнің жиілеуімен бірге жүруі мүмкін (Kistorp және әріптестері, 2005). Жүдеу, натрийурездік пептидтер, секреция мен шығарылу, кері себептілік және тіндік төзімділік ықтимал себептер. Бүйрек ауруы түсіндіруді өзгертеді, бірақ Zoccali және әріптестері (2002) терминалдық бүйрек ауруында көбірек жүрек-қантамыр оқиғасын төмен гормонмен байланыстырған. Бұл диализдегі жоғары деңгейдің әмбебап зиянын дәлелдемейді. Бүйректегі айналым еркін мономердің сүзілуден бір ШСЖ шегінде толық тоқтауына қарағанда күрделі. Жоғары сан денсаулыққа кепілдік те, гормонның себептік зиянына дәлел де емес.
Swarbrick және әріптестері (2006; түзетілген PMID 17019599) Roux-en-Y алдында, бір және он екі айдан кейін 19 әйелді бақылаған. HMW өсуі инсулинге сезімталдықпен байланысты болды. Бұл 4–12 аптада әмбебап 150–280% өсімді анықтамайды, гормонды салмақ азаюынан және басқа өзгерістерден бөлмейді, барлық операцияда бірдей реттілікті дәлелдемейді.
Генетика және араласулар
ADIPOQ rs2241766 (+45T>G), rs1501299 (+276G>T), rs266729 (−11377C>G) нұсқалары гормон және метаболикалық нәтижелермен зерттелген. Hara және әріптестері (2002) ерте жапондық ассоциациялық жұмыс ұсынды. Нұсқалардың тіркесуі, тегі, үлгі көлемі, тағам және аралас факторлар маңызды. Синонимдік нұсқа РНҚ өңделуінің өзгерісін автоматты дәлелдемейді; промотор аллелі экспрессияны әрдайым 40% азайтпайды; бір SNP диета тағайындамайды. ADIPOR1/2 кандидаттары да жеке жаттығу қарқынын немесе сенімді MASH болжамын анықтамайды.
Okada-Iwabu және әріптестері (2013) анықтаған AdipoRon — тышқандарда рецепторға тәуелді әсері бар эксперименттік шағын молекулалық агонист. Нақты жағдайда глюкоза көрсеткіштері мен тірі қалу жақсарған. Тышқандағы ауыз арқылы әсер адамның тіркелген дәрісі, жаттығуды алмастыру немесе ұзақ өмір сүрудің дәлелі емес. Толық гормон өндірісін құралу, модификация, экспозиция және жеткізу қиындатады; «мүмкін емес» және міндетті грамдық доза негізсіз.
Тиазолидиндиондар PPAR-γ-ны белсендіріп, әсіресе HMW-ды арттыра алады. Pajvani 2004 сезімталдық өзгерісімен байланысты қолдайды, әмбебап S_A 0,25-тен 0,65-ке ауысуын немесе бүкіл ем әсерін гормон түсіндіретінін емес. Пиоглитазон ауру, пайда және қауіп бойынша таңдалады; төмен зерттеу биомаркері жеке көрсетілім емес.
EPA/DHA, FFA4/GPR120, β-аррестин–TAB1–TAK1 және PPAR жолдары тәжірибелік байланыс береді. Wu және әріптестерінің (2013) метаталдауында 14 сынақ, ем тобында 682, бақылауда 641 қатысушы болды; 36 сынақ пен 2514 адам емес. Біріктірілген өсім 0,37 мкг/мл, нәтижелер әркелкі. Суррогатты көтеру диабеттің алдын алуды немесе тәулігіне әмбебап 2,5–3,5 г тағайындауды анықтамайды.
EGCG, куркумин, ресвератрол және астаксантиннің тәжірибелік қабынуға қарсы не редокс жолдары және әркелкі шағын адам зерттеулері бар. Формалар, дозалар, адамдар және нәтижелер өзгеше. Куркуминоид–пиперин сынағы фитосомалық формаға тән әсерді дәлелдемейді; тікелей DNMT1/ADIPOQ механизмі мен EGCG-дің нақты пайыздары бастапқы сілтемелерден шықпайды. Астаксантиннің мембраналық биологиясы науқаста LH3 қалпына келуін көрсетпейді. Міндетті қоспалар жиынтығы негізделмеген.
Ашытылатын талшықтар, микробиота, қысқа тізбекті май қышқылдары, ішек тосқауылы және эндотоксемия тағамды май қабынуымен байланыстырады. Cani және әріптестерінің (2007) тышқан жұмысы зерттеу бағытын қолдайды, адам ішегін кепілді «бітеуді» емес. Бутират гистон деацетилазаларына ықпал етеді; H3K9ac — ацетилдену, H3K4me3 — метилдену, «гипергидроксилдену» емес. FFAR2/3 және GLP-1 ықтималдық қосады, барлық адамда міндетті ADIPOQ эпигенетикалық тізбегін дәлелдемейді.
Аэробтық, аралық және күш жаттығулары жиырылулық AMPK, митохондриялық бейімделу және дене құрамы арқылы пайдалы. Гормон жауабы бағдарламаға, салмақ өзгерісіне, бастапқы күйге және әдіске тәуелді. Шолулар әмбебап 18–35% өсімді немесе рецептордың міндетті екі-үш есе артуын анықтамайды. Ең жоғары жүрек соғу жиілігінің бір пайызы әр адамның Zone 2 немесе FatMax деңгейін белгілемейді. HIIT және күш жүктемелері дәлелденбеген HMW нысанасынан тәуелсіз дараланады.
Клиникалық тұрғыдан дұрыс тұжырымдау
| Форма не жол | Тәжірибелік ерекшелік | Түсіндіру шегі |
|---|---|---|
| LMW тримері | Толық ұзындықтағы негізгі олигомер | Барлық жағдайда белсенді емес деп саналмайды |
| MMW гексамері | Жоғары құралу; T-кадгерин байланысы | Қалыпты тұрақты үлес жоқ |
| HMW | Модификацияға тәуелді құралу; метаболикалық байланыстар | Әмбебап диагноз шегі не ем нысанасы жоқ |
| gAd | Протеолиздік не рекомбинантты глобулалық домен | Экспозиция толық гормонға тең болмауы мүмкін |
| AdipoR1/R2 | Кері 7-TM топологиясы, сигналдық және липидтік қызмет | Тіндік басымдық ерекше орналасу емес |
| T-кадгерин | GPI-якорь, MMW/HMW жиналуы | Кәдімгі жасушаішілік сигналдық құйрық жоқ |
Клиникалық бағалау гликемияны, липидтерді, қысымды, семіздікті, көрсетілім болса бауырды, бүйректі, белгілер мен ем мақсатын қарастырады. HOMA-IR — талдауға тәуелді ашқарын суррогаты; міндетті 30% төмендеу адипонектин емінің расталған нәтижесі емес. ТГ/HDL үшін бірліктер керек: бір шек мг/дл мен ммоль/л арасында бірдей болмайды. CAP және эластография бауырдың әртүрлі қырын бағалайды. Бастапқы міндетті панель, S_A≥0,55, он екі апталық табыс алгоритмі мен тұрақты дозалар жағдайға сай бағалаумен ауыстырылды.
Бұл — даулы идентификаторларды, механизмдерді және клиникалық нәтижелерді нысаналы тексерген баяндау ғылыми шолуы. Қолжетімді бастапқы аннотациялар, баспа материалдары және құрылымдық жарияланымдар 2026 жылғы 8 қазанда тексерілді. Жүйелі іздеу, дербес GRADE бағалауы, клиникалық валидация немесе сыртқы рецензия жасалмады. Механизмдер модель шектерімен сақталды; негізсіз сандық ережелер алынып, шешілмеген детальдар аталды. Адипонектин май биологиясын субстрат алмасуымен байланыстырады, ал ем шешімдері науқас үшін дәлелденген нәтижелерге сүйенеді.
Жиі қойылатын сұрақтар
Адипонектиннің жоғары болуы әрқашан пайдалы ма?
Жоқ. Жоғары деңгей қолайлы алмасумен де, ауыр аурумен, жүдеумен және клиренстің өзгеруімен де қатар жүруі мүмкін.
HMW әмбебап ем мақсаты ма?
Жоқ. Әдістер мен жағдайлар өзгеше; бір қатынас диагноз немесе ем тағайындамайды.
AdipoR S1P-ті тікелей түзеді ме?
Жоқ. Гидролиз сфингозин түзеді, оны кейін сфингозинкиназа фосфорлайды.
AdipoRon жаттығуды алмастыра ма?
Тышқандағы нәтижелер адамда клиникалық баламалылықты дәлелдемейді.
Төмен көрсеткіш қоспалар жиынтығын қажет ете ме?
Жоқ. Биомаркердің өзгеруі науқас нәтижелерінің жақсарғанын дәлелдемейді.
Дереккөздер
- Scherer PE, Williams S, Fogliano M, Baldini G, Lodish HF. A novel serum protein similar to C1q, produced exclusively in adipocytes. Journal of Biological Chemistry
- Maeda K, Okubo K, Shimomura I, Funahashi T, Matsuzawa Y, Matsubara K. cDNA cloning and expression of a novel adipose specific collagen-like factor, apM1 (AdiPose Most abundant Gene transcript 1). Biochemical and Biophysical Research Communications
- Shapiro L, Scherer PE. The crystal structure of a complement-1q family protein suggests an evolutionary link to tumor necrosis factor. Current Biology
- Pajvani UB, Du X, Combs TP, Berg AH, Rajala MW, Schulthess T, Engel J, Brownlee M, Scherer PE. Structure-function studies of the adipocyte-secreted hormone Acrp30/adiponectin. Implications for metabolic regulation and bioactivity. Journal of Biological Chemistry