BCAA almashinuvining buzilishi: ketokislotalar, BCKDH va insulin rezistentligi
Leysin, izoleysin va valin almashinuvi, BCKDH boshqaruvi, insulin signallari va tajribaviy hamda klinik dalillarning chegaralari.
Leysin, izoleysin va valin almashinuvi, BCKDH boshqaruvi, insulin signallari va tajribaviy hamda klinik dalillarning chegaralari.
Leysin, izoleysin va valin — yon zanjiri tarmoqlangan almashinmaydigan aminokislotalar, BCAA. Ular oqsil sintezi, azot almashinuvi va jismoniy yuklamaga moslashish uchun zarur. Qondagi yuqori miqdor semizlik bilan ko‘p uchraydi va kuzatuv tadqiqotlarida keyinchalik 2-tur diabet rivojlanishi bilan bog‘liq. Ammo qon konsentratsiyasi oksidlanish tezligini, BCKDH faolligini yoki insulin rezistentligining sababini bevosita o‘lchamaydi. BCAA, ulardan hosil bo‘ladigan tarmoqlangan α-ketokislotalar BCKA va keyingi mahsulotlar alohida molekulalardir.
Ularning alifatik yon zanjirlari gidrofob, amin va karboksil guruhlari esa fiziologik pH da erkin aminokislotani svitterion qiladi. Yon zanjir gidrofobligi butun molekulaning istalgan membranadan erkin o‘tishini anglatmaydi. Zarur aminokislota ehtiyoji umumiy oqsil yetarliligi bilan baholanadi; kimyo universal davolovchi doza bermaydi.
Leysin — 2-amino-4-metilpentan kislota, izoleysin — 2-amino-3-metilpentan kislota, valin — 2-amino-3-metilbutan kislota. Izoleysinda ikkita xiral markaz bor; tabiiy L-izoleysin 2S,3S konfiguratsiyaga ega. Umumiy tarmoqlangan tuzilish ularning uglerod taqdiri, tashilishi va signal ta’sirini bir xil qilmaydi.
Plazmadagi zaxira ovqatdan kirish, o‘z oqsilining parchalanishi, yangi oqsilga qo‘shilish, to‘qimalar orasidagi almashinuv va oksidlanishga bog‘liq. Mushak, yog‘ to‘qimasi, buyrak va miya transaminlanishda qatnashadi. Jigarda BCAT faolligi nisbatan past, lekin jigar boshqa to‘qimalardan kelgan ketokislotalarni qayta ishlaydi. BCAA jigarni butunlay «chetlab o‘tadi» yoki faqat mushakda oksidlanadi deyish ortiqcha umumlashtirishdir.
Sitozoldagi BCAT1 va mitoxondriyadagi BCAT2 amin guruhini α-ketoglutaratga o‘tkazadi. B6 vitaminidan hosil bo‘ladigan piridoksalfosfat, PLP, Shiff asosi oraliqlari orqali azot ko‘chishini ta’minlaydi:
Reaksiya qaytar. Glutamat ALT orqali azotni piruvatga berib, alanin hosil qilishi mumkin. Alaninning jigarga tashilishi mushakdagi azot almashinuvini glyukoza–alanin siklidagi glyukoneogenez bilan bog‘laydi. Glutamin ham azot tashuvchisidir. Miyada glutamat GABA sinteziga ham aloqador. Bu BCAA vazifasi mushak oqsilidan kengligini ko‘rsatadi, biroq bitta qon tahlilidan miya neyromediatorlarini hisoblashga imkon bermaydi.
LAT1 yengil SLC7A5 va og‘ir SLC3A2/CD98 zanjirlaridan tuzilgan, yirik neytral aminokislotalarni natriyga bog‘liq bo‘lmagan tarzda almashtiradi. Nicklin et al. (2009) o‘rganilgan hujayralarda ichki glutamin almashinuvi zarur aminokislotalar kirishiga yordam berishini ko‘rsatdi. Bu glutamin hamma to‘qimada yagona substrat degani emas. Yoneshiro et al. (2019) SLC25A44 ni mitoxondriyadagi BCAA tashuvchisi deb aniqlab, qo‘ng‘ir yog‘dagi oksidlanishni energiya muvozanati bilan bog‘ladi. Ular uni BCKA tashuvchisi deb isbotlamagan. Ayrim BCKA ning plazmatik membranadan monokarboksilat tashuvchilari bilan o‘tishi ham ichki mitoxondriya membranasi uchun umumiy yo‘lni belgilamaydi.
Leysin α-ketoizokaproat KIC, izoleysin α-keto-β-metilvalerat KMV, valin α-ketoizovalerat KIV hosil qiladi. Tizimli nomlari — 4-metil-2-oksopentanoat, 3-metil-2-oksopentanoat va 3-metil-2-oksobutanoat. Ular boshlang‘ich amin guruhini yo‘qotgan; BCKA — BCAA ning boshqa nomi emas.
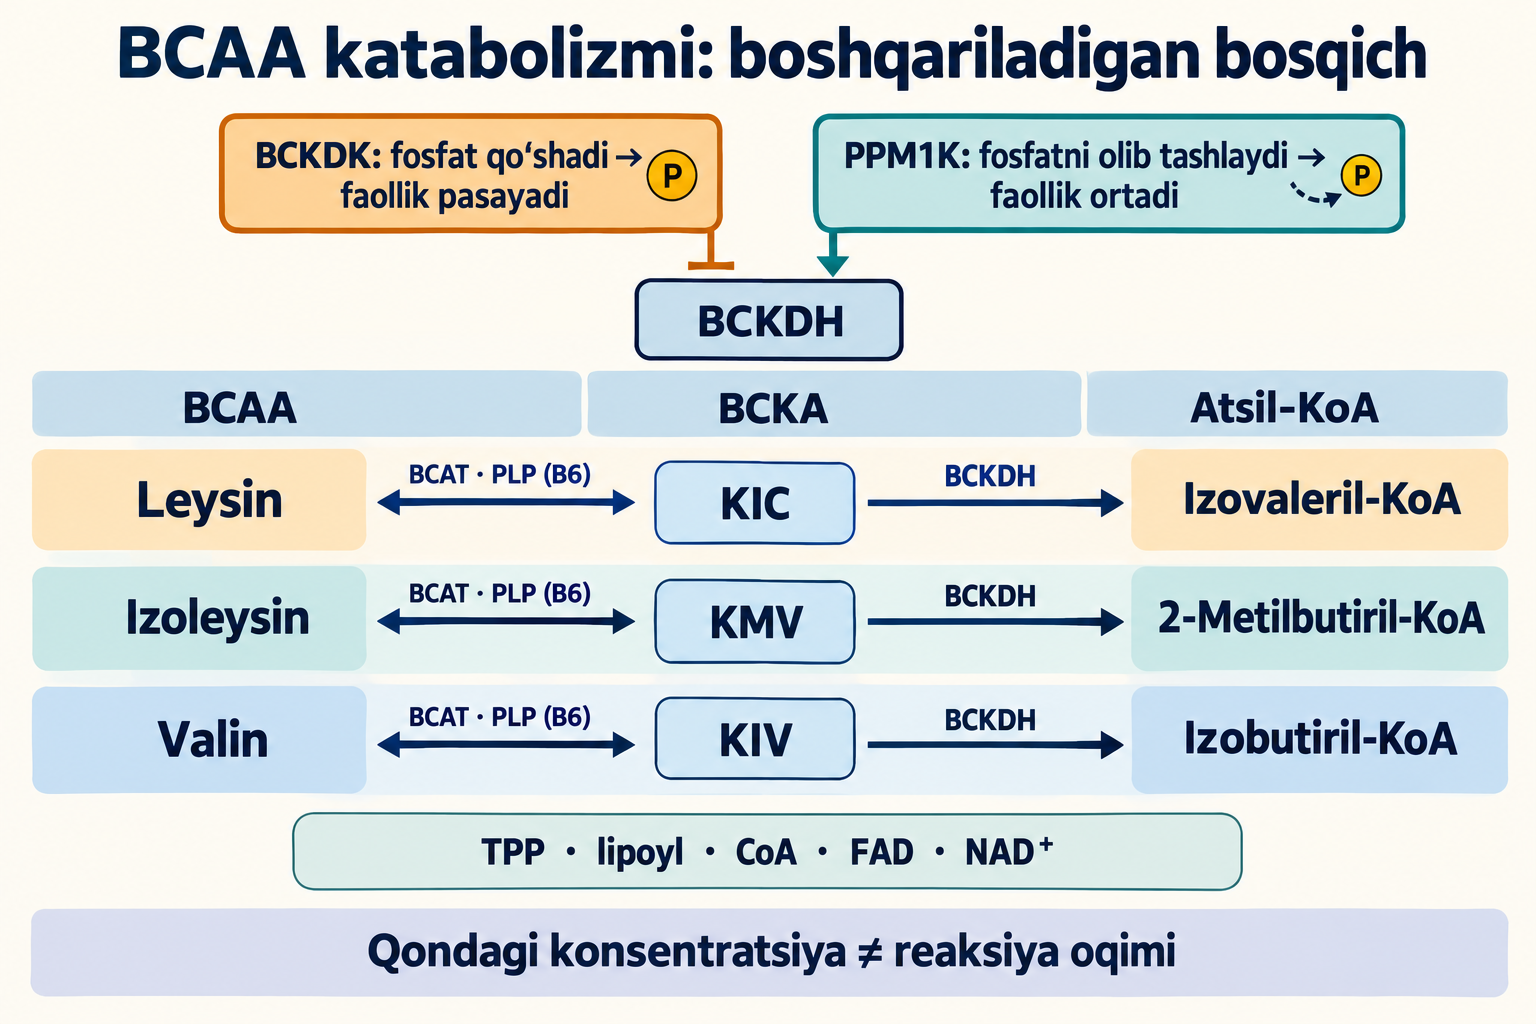
Rasm uch uglerod yo‘lini va umumiy BCKDH tugunini ajratadi. BCAT yo‘nalishi qaytar, BCKDH orqali oksidlovchi dekarboksillanish amalda qaytmasdir. Fosforlanish kompleks faolligini boshqaradi, qon konsentratsiyasi esa boshqa o‘lchov bo‘lib qoladi.
BCKDH — piruvatdegidrogenaza PDH va α-ketoglutaratdegidrogenazaga qarindosh mitoxondrial ko‘p fermentli kompleks. E1 α2β2 tuzilishida BCKDHA/BCKDHB ni tutadi. DBT mahsuloti E2 24 subbirlikli o‘zak hosil qiladi; moslashuvchan lipoil domenlari oraliq mahsulotlarni faol markazlar orasida ko‘chiradi. E3 — boshqa komplekslarda ham ishlaydigan digidrolipoamiddegidrogenaza DLD. Umumiy massa hamda chetdagi E1/E3 soni yig‘ilishiga bog‘liq, barcha komplekslarda doimiy bir xil stexiometriya yo‘q.
E1 tiamindifosfat TPP/TDP va Mg²⁺ dan foydalanadi. Tiazoliy halqasining reaktiv markazi ketokislota bilan ishlash va CO₂ chiqishini ta’minlaydi. Qaytarilgan asil oraliq mahsulot E2 lipoil guruhiga, keyin CoA ga o‘tadi. E3 lipoamidning oksidlangan holatini tiklaydi: FAD vaqtincha qaytariladi, so‘ng elektronlarni NAD⁺ ga berib NADH hosil qiladi. Umumiy reaksiya:
| Qism | Reaksiya va kofaktor | Oziqlanish xulosasining chegarasi |
|---|---|---|
| BCAT1/2 | B6 dan PLP; azotni ko‘chirish | Ta’minot yetarli bo‘lsa, qo‘shimcha B6 oqimni albatta oshirmaydi |
| E1 BCKDHA/BCKDHB | B1 dan TPP va Mg²⁺; dekarboksillanish | Oddiy insulin rezistentligida tiamin boshqaruvchi fosforni olib tashlashi isbotlanmagan |
| E2 DBT | Kovalent lipoil guruhi va B5 bilan bog‘liq CoA | Qo‘shimchadagi erkin α-lipoik kislota ferment lipoillanishiga teng emas |
| E3 DLD | B2 dan FAD va B3 bilan bog‘liq NAD⁺ | Yetarli kofaktor muayyan oksidlanish tezligini kafolatlamaydi |
Lipoillanish LIAS va lipoil guruhlarini o‘tkazadigan ichki ferment tizimini talab qiladi. Umumiy kofaktorlar lipoik kislota, PDH va redoks almashinuvi bog‘lanishini tushuntiradi, lekin barcha komplekslarni har bir metabolitga bir xil sezgir qilmaydi.
| Aminokislota | BCKA | Dastlabki asil-CoA | Uglerod taqdiri |
|---|---|---|---|
| Leysin | KIC | Izovaleril-CoA | Asetil-CoA va asetoasetat; ketogen |
| Izoleysin | KMV | 2-Metilbutiril-CoA | Asetil-CoA va propionil-CoA, so‘ng suksinil-CoA; aralash |
| Valin | KIV | Izobutiril-CoA | 3-HIB orqali propionil-CoA va suksinil-CoA; glyukogen |
Leysin yo‘li izovaleril-CoA-degidrogenaza, biotinga bog‘liq metilkrotonil-CoA-karboksilaza va HMG-CoA ni o‘z ichiga oladi. Metilmalonil-CoA-epimeraza MCEE bu leysin tarmog‘iga emas, valin va izoleysindan keladigan keyingi propionil almashinuviga tegishli. Propionil-CoA-karboksilaza biotin va ATP ishlatadi; metilmalonil-CoA-mutaza suksinil-CoA hosil qilish uchun B12 kofaktori adenozilkobalaminga muhtoj. BCAA umumiy nomi uch xil uglerod yakunini qamrab oladi.
BCKDK kinazasi E1 ni fosforlab BCKDH faolligini kamaytiradi. Mitoxondrial PPM1K, PP2Cm deb ham ataladi, fosfatni olib faol ulushni oshiradi. Bu almashinmaydigan aminokislotalarni saqlovchi qaytar fiziologik boshqaruvdir. KIC BCKDK ni tormozlashi mumkin; substrat to‘planishi kompleksning muqarrar va qaytmas o‘chishini anglatmaydi.
Wynn et al. (2004) yetilgan inson E1α sidagi Ser292 ni o‘rgangan. Raqamlash turga va mitoxondriyaga yo‘naltirish ketma-ketligi hisobga olinishiga bog‘liq. Fosforlanish halqa tuzilishini buzib, E2 lipoil domeni bog‘lanishi va qaytaruvchi asillanishga xalal beradi. Dekarboksillanishning o‘zi keskin susaymagan. «Fosfat ketokislota kirishini yopadi» degan izoh bu strukturaviy natijaga mos emas.
Lu et al. (2009) hujayra va sichqonlarda PP2Cm vazifasini ko‘rsatdi; yetishmovchilik zarang siropi kasalligining oraliq yoki davriy turiga o‘xshash fenotip berdi. Bu semizligi bor har bir odamda PPM1K bir xil kamayishi yoki BCAA/BCKA fosforlangan ferment foizini o‘lchashini isbotlamaydi. Ekspressiya, tashish, substrat, NADH/NAD⁺, erkin CoA, oziqlanish va to‘qima oqimga ta’sir qiladi. Neinast et al. (2019) izotop tadqiqoti faollik, konsentratsiya va haqiqiy oksidlanishni ajratish kerakligini ko‘rsatadi.
Leysin normal oziq signalining bir qismidir. Wolfson et al. (2016) uning Sestrin2 bilan bog‘lanishini aniqladi. Bog‘lanish GATOR2 ni Sestrin2 tormozidan chiqaradi; GATOR2 DEPDC5–NPRL2–NPRL3 dan tuzilgan GATOR1 ning tormozlanishiga yordam beradi. Odatda GATOR1 RagA/B uchun GAP vazifasini bajaradi. Uning tormozlanishi RagA/B–GTP va RagC/D–GDP holatiga mTORC1 ni Ragulator va Raptor orqali lizosomaning sitozolik yuzasiga jalb qilish imkonini beradi (Sancak et al., 2008; 2010).
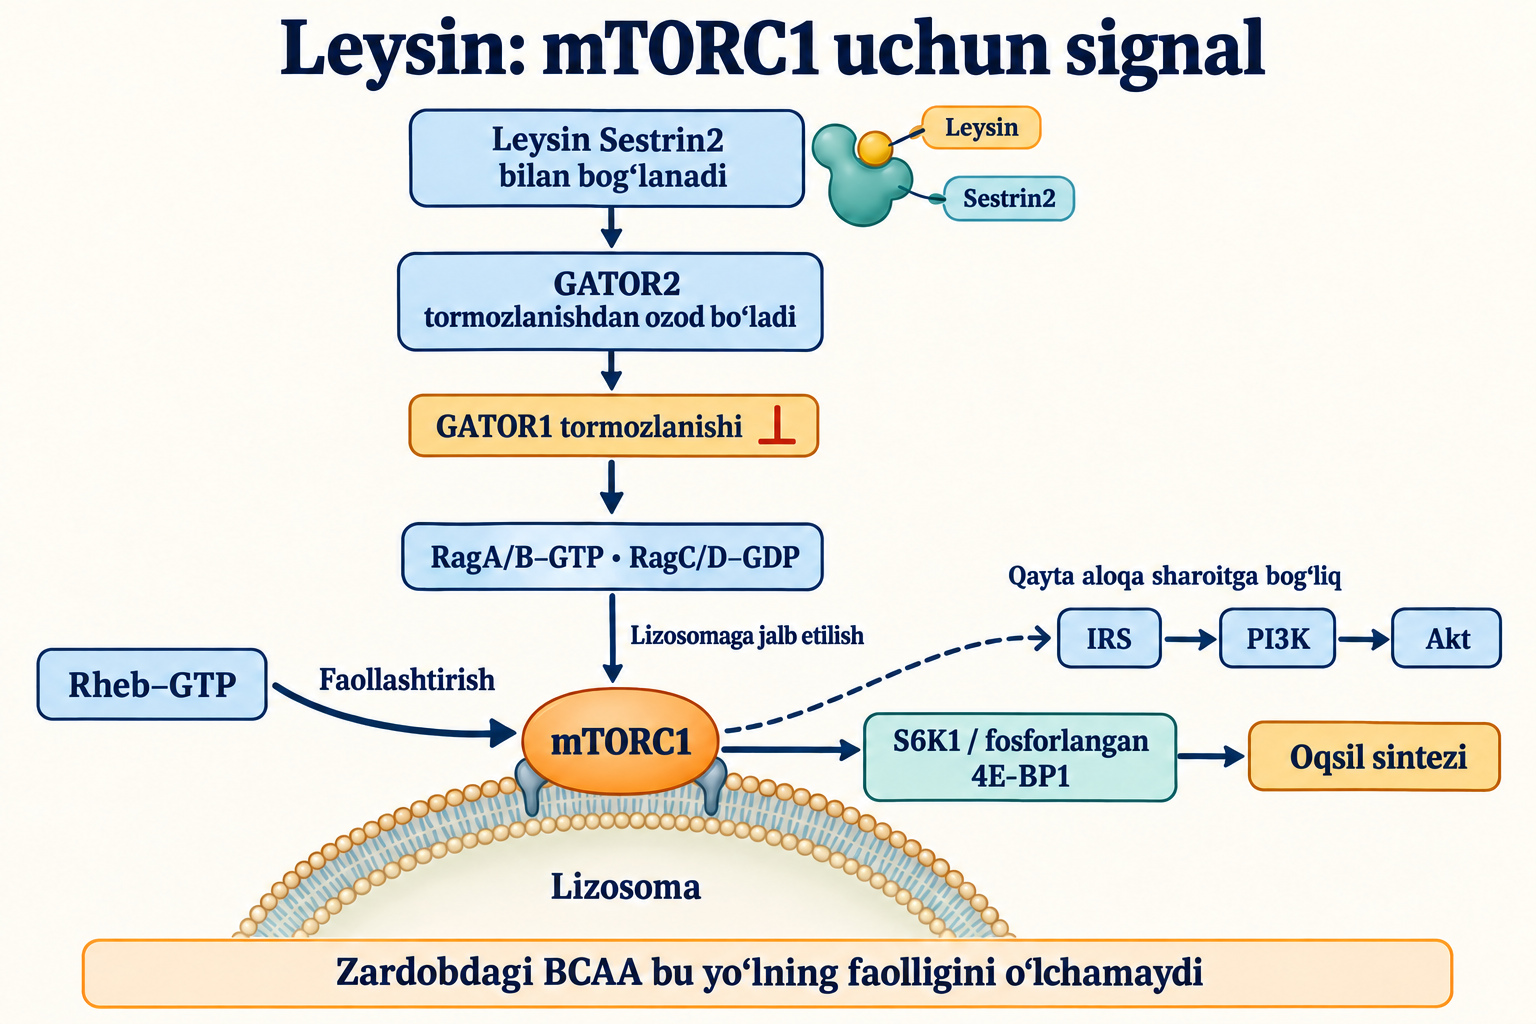
Rasm nomlangan holatlar ketma-ketligini beradi: GATOR1 tormozlanishi faol Rag holatiga yo‘l ochadi, faol Rag ni bevosita tormozlamaydi. Rag kompleksni joylashtiradi; alohida Rheb–GTP kinazani faollashtiradi. Insulin PI3K–Akt orqali Rheb uchun GAP bo‘lgan TSC1/2 ni cheklaydi. Energiya tanqisligi va AMPK TSC hamda Raptor orqali mTORC1 ni cheklashi mumkin. Leysin mavjudligi har qanday gormonal yoki energetik vaziyatda bir xil faollikni kafolatlamaydi.
mTORC1 S6K1 ni faollashtiradi va 4E-BP1 ni fosforlaydi; oxirgisi translatsiya boshlanishidagi tormozni bo‘shatadi. Uzoq ortiqcha signal ayrim modellarda IRS ga salbiy qayta aloqa qilib PI3K–Akt javobini kamaytirishi mumkin. Ammo IRS1 serinlarining barcha fosforlanishi zararli emas. Copps et al. (2010) sichqon Ser307 sini alaninga almashtirish sezgirlikni yomonlashtirganini ko‘rsatdi; insondagi mos qoldiq Ser312. Joy, vaqt, to‘qima va parallel signallar muhim.
Mushakda Akt2 TBC1D4/AS160, Rab va GLUT4 ning membranaga ko‘chishini boshqaradi. Buzilish glyukoza kirishini kamaytirishi mumkin, lekin Akt ning barcha vazifasini yo‘q qilmaydi. Biswas et al. (2020) miotubalar va sichqon modellarida BCKA, mTOR va insulin signalini tekshirdi. KIC ta’siri ekspozitsiyaga bog‘liq va boshqa ketokislotalardan farqli bo‘lgan; bu universal zaharli qon chegarasini bermaydi.
BCKDH orqali qoldiq oqim bo‘lsa, tarmoqlangan asil-CoA va keyingi mahsulotlar hosil bo‘ladi. Ortiqcha substrat asil-CoA/erkin CoA muvozanati, qaytaruvchi ekvivalentlar va boshqa yoqilg‘i oksidlanishini o‘zgartirishi mumkin. To‘liq blok bir vaqtning o‘zida barcha keyingi BCAA-asosli asil-CoA ni cheksiz hosil qila olmaydi. Qisman nuqson, turli to‘qima va substrat ortiqligi boshqa vaziyatdir.
Asilkarnitinlar asil guruhlarini qayta ishlashni aks ettirib, erkin CoA zaxirasini saqlashga yordam berishi mumkin. C3 yoki C5 yuqoriligi avtomatik toksiklik dalili emas. Propionilkarnitin C3 toq zanjirli yog‘ kislotalari, boshqa aminokislotalar, propionat va B12 almashinuvi bilan ham bog‘liq. C5 signali izovaleril-, 2-metilbutiril- va pivaloilkarnitinni qamrashi mumkin; ayrim dorilar oxirgisiga ta’sir qiladi. C5-OH bir qancha irsiy buzilishlarda uchraydi, alohida biotin tanqisligi testi emas.
3-Gidroksiizobutirat, 3-HIB, valin yo‘lida BCKDH dan keyin hosil bo‘ladi. Jang et al. (2016) mushakdan chiqadigan 3-HIB sichqonlarda endoteliy orqali yog‘ kislotalari tashilishi va insulin rezistentligini kuchaytirganini ko‘rsatdi. Uni ishlab chiqarish faol katabolizmni talab qiladi: bu kompleksdan oldingi BCKA yig‘ilishi yoki to‘liq o‘chishidan boshqa mexanizm.
Leysinning tez ta’siri, jumladan glutamatdegidrogenaza faollashuvi, va KIC metabolizmi ATP hosil bo‘lishi hamda ATP-sezgir kaliy kanallari orqali insulin ajralishini kuchaytirishi mumkin. O‘tkir sekretor javob β-hujayraning surunkali stressidan farq qiladi. Insulinni rag‘batlantirish o‘z-o‘zidan oshqozon osti bezi jarohati emas.
Sun et al. (2016) katabolik genlar va KLF15 o‘zgarishini inson yurak yetishmovchiligi namunalari hamda bosim bilan yuklangan sichqon modellariga bog‘ladi. BCKA ajratilgan mitoxondriyalarda nafas va ROS ni o‘zgartirdi. Li et al. (2017) BCAA yig‘ilishi, geksozamin/O-GlcNAc yo‘li susayishi, PDH tormozlanishi va sichqon yuragining ishemiya–reperfuziyaga moyilligini tekshirdi. Shu ishning bevosita taqqoslashida PDH ni BCAA tormozladi, BCKA emas. Ikki natijani «BCKA barcha bemorda PDH ni raqobatli tormozlaydi» deb birlashtirish noto‘g‘ri.
White et al. (2018) kalamushlarda BCKDK/PPM1K ni ATP-sitratliaza ACLY va lipogenez bilan bog‘ladi. Fruktozaga sezgir ChREBPβ bu tugunni boshqardi; Ser454 o‘rganilgan kemiruvchi oqsiliga tegishli. ACLY sitozolik asetil-CoA, ACC malonil-CoA, FASN asosan C16 palmitat hosil qiladi. C18:1 oleat uzayish va desaturatsiyani talab qiladi, FASN ning bevosita mahsuloti emas. Malonil-CoA uzun yog‘ kislotalari mitoxondriyaga kirishini boshqaradigan CPT1A asiltransferazasini tormozlaydi, barcha oksidlanish «kanallarini» yopmaydi. Bu steatoz/MASLD uchun muhim, lekin BCKA fibrozning yagona sababi ekanini ko‘rsatmaydi.
Zhenyukh et al. (2018) endoteliy hujayralarida yuqori BCAA bilan bog‘liq ROS va yallig‘lanish signallarini o‘rgandi; 2017-yilgi ish qon mononuklear hujayralari haqida edi. Hujayradagi mTOR, NOX va NF-κB javoblari barcha oraliqlarni yoki odam tomirlaridagi uzluksiz teng ekspozitsiyani isbotlamaydi.
Gematoensefalik to‘siqda BCAA triptofan, tirozin va fenilalanin kabi yirik neytral aminokislotalar bilan raqobatlashadi. Prekursor kirishi serotonin va katexolamin sinteziga ta’sir qilishi mumkin; erkin triptofan, bog‘lanish, transportga moyillik va mahalliy almashinuv ham muhim. Fernstrom (2005) sharhi yuqori BCAA dan serotonin tanqisligi, depressiya yoki uglevodga ishtiyoqgacha universal zanjir o‘rnatmaydi. Zarang siropi kasalligida nevrologik toksiklikni odatdagi oqsil iste’moliga bevosita ko‘chirish mumkin emas.
Newgard et al. (2009) semiz va ozg‘in odamlarda BCAA bilan bog‘liq metabolik belgini topdi; yog‘li ratsion va BCAA qo‘shish tajribalari kemiruvchilarda o‘tkazildi. Wang et al. (2011) kelajak diabetini tekshirdi: dastlab mos 2422 odam orasida 12 yilda 201 holat yuz berdi. Batafsil metabolomik taqqoslash tanlangan guruhlarni ishlatdi. Uch aminokislotali bashorat to‘plamiga izoleysin, tirozin va fenilalanin kirgan, uch BCAA yig‘indisi emas. Yuqori kvartildagi katta nisbiy xavf universal klinik chegara yoki barcha odatiy testlardan qat’iy erta aniqlash muddatini bermaydi.
| Dalil | Nimani qo‘llab-quvvatlaydi | Asosiy chegara |
|---|---|---|
| Newgard/Wang kohortalari | Metabolik xavf bilan bog‘liqlik | Tanlash va qo‘shimcha omillar yagona sababni aniqlamaydi |
| Lotta (2016), Mahendran (2017), Jia (2025) genetikasi | Bog‘lanish ikki yo‘nalishda bo‘lishi mumkin | Instrument, pleiotropiya va to‘qima ta’sirlari xulosani cheklaydi |
| Genetik sichqon va hujayra modellari | BCAT/BCKDH/mTOR va metabolitlar fenotipni o‘zgartiradi | Aralashuv joyi, doza va tur muhim |
| Karusheva (2019) sinovi | Qisqa cheklash ovqat javobini o‘zgartirdi | Uzoq profilaktika yoki klamp sezgirligi yaxshilanishi isbotlanmagan |
Lotta et al. (2016) PPM1K hududini ham qamragan genetik instrumentlar bilan sababiy gipotezani qo‘lladi. Mahendran et al. (2017) insulin rezistentligi → yuqori BCAA yo‘nalishini qo‘llab-quvvatladi. Jia et al. (2025) kattaroq ikkiyo‘nalishli tahlilda BCAA ni lipidlar bilan bog‘lab, yuqori miqdorni yomon metabolik holatning oqibati sifatida ham ko‘rdi. Qayta aloqa mumkin, ammo konkret odamning diabetini BCAA keltirib chiqargani isbotlanmaydi. BCAA konsentratsiyasi genetikasi BCKA uchun bir xil sababiylikni avtomatik belgilamaydi.
She et al. (2007) qarshi misol beradi: mitoxondrial BCAT siz sichqonlarda BCAA yuqori bo‘lsa ham energiya sarfi oshgan va metabolik ko‘rsatkichlar yaxshilangan. Birinchi bosqichni bloklash ketokislota hosil bo‘lgach BCKDH ni bloklashga teng emas. Konsentratsiya yo‘lni bilish o‘rnini bosmaydi.
LC–MS/MS izomerlarni tasdiqlangan usulda ajratishni talab qiladi. Leysin va izoleysin molekulyar massasi taxminan 131,17, nominal protonlangan ioni 132,1 atrofida — bir xil. Faqat massa ularni ajratmaydi. Irsiy nuqson shubhasida alloizoleysin ham muhim. Matritsa, usul va tahliloldi holat natijaga ta’sir qiladi: ovqat, mashq, kasallik, buyrak faoliyati va namuna vaqti muayyan laboratoriya talabiga ko‘ra baholanadi.
Olson et al. (2013) sichqon to‘qimasidagi BCKA ni o-fenilendiamin bilan hosilalash va izotop ichki standart orqali o‘lchadi. Siklli xinoksalinol hosilalari paydo bo‘ladi. 2,4-Dinitrofenilgidrazin gidrazon hosil qiladi — boshqa kimyo. Barcha usul bir xil hosilalashni talab qilmaydi; sichqon to‘qima qiymatlari odam plazmasi me’yori emas.
Yig‘indi konsentratsiya birligini saqlaydi:
Masalan, 130 + 65 + 220 = 415 µmol/L — hisob, optimal qiymat yoki diagnostik chegara emas. KIC, KMV va KIV yig‘indisi o‘lchangan ketokislota zaxirasini tasvirlaydi. BCAA/BCKA BCAT faolligi yoki BCKDH fosforlanishining bevosita tahlili emas.
| Ko‘rsatkich | Nimani o‘lchaydi | Chegara |
|---|---|---|
| Leu, Ile, Val va yig‘indi | Aminokislota zaxirasi | Usulga xos me’yor kerak; universal insulin rezistentligi chegarasi yo‘q |
| KIC, KMV, KIV va yig‘indi | Ketokislota zaxirasi | Plazma va to‘qima farqli; konsentratsiya oqim emas |
| C3 | Propionilkarnitin | Boshqa substratlar va B12 ta’sir qiladi |
| C5 va C5-OH | Bir necha asilkarnitin/izomer | Irsiy buzilish va dori ta’siri; tarkibni aniqlash kerak |
| Fisher nisbati | Odatda BCAA/(fenilalanin + tirozin) | Tarixan jigar kasalliklarida; miya neyromediatori yoki universal diabet testi emas |
| HOMA1-IR | Och qoringa glyukoza–insulin modeli | Birlik, insulin usuli va β-hujayraga bog‘liq; BCKDH ni o‘lchamaydi |
HOMA1-IR uchun (Matthews et al., 1985), I₀ µU/mL bo‘lsa:
I₀ = 10 va G₀ = 5 mmol/L, taxminan 90 mg/dL, ikki ifodada ham 2,22 beradi. Bu universal chegara emas. HOMA2 boshqa model; insulin ajralishining kamligi chalg‘ituvchi past indeks berishi mumkin. HOMA-IR, TyG va QUICKI taqqoslanishi ularning chegarasini ochib beradi.
BT2 — benzotiofenkarboksilatlar oilasidagi tajribaviy BCKDK ingibitori. Tso et al. (2014) o‘z tahlilida IC50 taxminan 3,19 µM deb xabar berdi; bu odam dozasi emas. Zhou et al. (2019) semiz sichqon modellarida yaxshilanish topdi. Acevedo et al. (2024) ROS va lipogenezni kamaytiruvchi qo‘shimcha mitoxondrial ajratish ta’sirini ko‘rsatdi. Shu sabab BT2 samarasini faqat BCAA ning maxsus kamayishiga bog‘lash mumkin emas; tasdiqlangan davolash sxemasi kelib chiqmaydi. Genistein yoki kurkuminning BCKDK bilan bog‘lanishi va qo‘shimchalar bilan klinik tormozlash bu yerda tasdiqlanmagan.
Karusheva et al. (2019) kichik randomizatsiyalangan krossover sinovida 2-tur diabetli 12 kishini o‘rgandi. Kaloriyasi teng ratsion va aminokislota aralashmasi zarur aminokislotalar yetarliligini saqladi. Qisqa cheklash och qoringa BCAA ni 17%, ovqat bilan bog‘liq miqdorni 62% kamaytirdi; ovqatdan keyingi insulin ajralishi 28% pasaydi, OGIS 24% oshdi. Giperinsulinemik euglikemik klamp bilan tana va jigar sezgirligi farqlanmadi. «Klamp 28% yaxshilandi» va «jigar yog‘i 22% kamaydi» shu sinov natijalari emas. Mikrobiom, FGF21 va yog‘ to‘qima o‘zgarishlari uzoq klinik foydani almashtirmaydigan oraliq natijalardir.
Fontana et al. (2016) odamlarda umumiy oqsil cheklashini, sichqonlarda tanlab BCAA cheklashini tekshirdi: bular boshqa aralashuvlar. Cummings et al. (2018) ham dieta sabab semirgan sichqonlarni o‘rgandi. Har bemor uchun majburiy kamaytirish foizi belgilanmaydi.
BCAA almashinmaydigan aminokislotalardir. Oqsil ehtiyoji yosh, o‘sish, homiladorlik, mushak massasi, mashq va kasalliklarga, jumladan buyrak holatiga bog‘liq. Alohida BCAA qo‘shimchalari to‘liq oqsil yoki zardob proteiniga teng emas. O‘simlik mahsulotlarida ham BCAA bor; umumiy aminokislota tarkibi muhim. Faollik va yaxshi metabolik holat almashinuvni o‘zgartirishi mumkin, lekin «2-zona»ning bir xil davomiyligi PPM1K faollashtirish protokoli emas.
Tiaminga javob beradigan zarang siropi kasalligi mutaxassis kuzatuvini talab qiladi. Kam uchraydigan irsiy holat barcha semiz odamga yuqori B1/B6/magniy dozasini asoslamaydi. DLD yetishmovchiligi bir necha kompleksga ta’sir etib laktatasidoz keltirishi mumkin. Resveratrol–SIRT1, berberin–AMPK va sulforafan–KEAP1/NRF2 mexanistik tadqiqot yo‘nalishlari, bemor BCKDH sini fosforsizlantirishning isbotlangan usullari emas. Glukorafanin — sulforafan prekursoridir; mirozinaza va biologik o‘zlashtirilish ekspozitsiyani o‘zgartiradi. Universal doza jadvali soxta aniqlik yaratardi. Metformin, SGLT2 ingibitorlari va inkretin dorilari tasdiqlangan ko‘rsatmalarga ega, lekin PPM1K ga yo‘naltirilgan isbotlangan sxema emas; tirzepatid GIP/GLP-1 qo‘sh agonistidir.
Yuqori BCAA xavf bahosini to‘ldirishi mumkin, insulin rezistentligini yakka o‘zi tashxislamaydi; normal qiymat uni inkor etmaydi. Diabet tasdiqlangan glyukoza, HbA1c, kerak bo‘lsa tolerantlik testi va klinik vaziyat bilan aniqlanadi (NIDDK). Bosim, lipidlar, tana tarkibi, ovqat, dori va hamroh kasalliklar muhim. Metabolomik panel hamma uchun majburiy emas. Aminokislotalarning keskin o‘zgarishi, alloizoleysin va bolalikdan yoki dekompensatsiyada kuzatiladigan nevrologik belgilar irsiy nuqsonni mutaxassis orqali izlashni talab qiladi, o‘zicha oqsil cheklashni emas.
Material 2026-yil 8-oktabrda tayyorlandi. Material boshlang‘ich tadqiqotlarni maqsadli tekshirish va alohida belgilangan klinik/ma’lumotnoma manbalariga tayanadi. Bu tizimli sharh, GRADE bahosi yoki mustaqil taqriz emas. Ayrim to‘liq matnlar mavjud bo‘lmagan: ochiq annotatsiya, metama’lumot va parchalar ishlatildi; ochilmagan aniq usullar tekshirilmadi. O‘rnatilgan biokimyo, hujayra mexanizmi, sichqon modeli va klinik dalilning vazni har xil. Bog‘liqlikni tashxis yoki davoga aylantirishdan oldin aminokislota, ketokislota, keyingi mahsulot va oqimni ajratish kerak.
Yo‘q. Xavf belgisi bo‘lishi mumkin, lekin ovqat, to‘qima va almashinuv ta’sir qiladi. Klinik vaziyat va tasdiqlangan testlar kerak.
Yo‘q. U tashish, hosil bo‘lish va chiqarishga bog‘liq konsentratsiyalarni taqqoslaydi, ferment fosforlanishini o‘lchamaydi.
Ular almashinmaydi. Tajribaviy cheklash universal davolovchi ratsion bermaydi; oqsil yetarliligi va individual ehtiyoj muhim.
Yo‘q. U BCKDK ingibitsiyasiga qo‘shimcha mitoxondrial ajratish ta’siriga ega tajribaviy birikma; bu yerda tasdiqlangan davo sxemasi yo‘q.