
Секреторний IgA (sIgA): трансцитоз полімерного імуноглобулінового рецептора (pIgR), імунне виключення патогенів і симбіоз із коменсальною мікробіотою
Як утворюється секреторний IgA і проходить крізь епітелій, як він може обмежувати патогени й підтримувати окремих коменсалів та чому фекальна sIgA сама по собі не є діагнозом чи ціллю лікування.
Секреторний імуноглобулін A (sIgA) поєднує роботу плазматичних клітин, кишкового епітелію та просвітної мікробіоти. У власній пластинці утворюється переважно полімерний IgA; епітеліальний рецептор pIgR переносить його до апікальної поверхні і після розщеплення залишає на антитілі секреторний компонент. Отримана молекула зв’язує мікроорганізми та їхні продукти, не обов’язково запускаючи запалення. sIgA не лише виключає патогени: деякі коменсали використовують IgA для стабільного перебування у слизу. Саме по собі значення sIgA у калі чи слині не описує всю систему й не доводить потреби «підсилювати імунітет» добавкою.
1. Складові секреторного IgA
Мономер IgA складається з двох важких α-ланцюгів і двох легких ланцюгів, як і інші антитіла, але секреторний комплекс зазвичай містить два мономери. Їхні Fc-ділянки сполучаються за участю J-ланцюга, а зовні розташований секреторний компонент (SC) — відщеплена позаклітинна частина pIgR. Димер має до чотирьох Fab-сайтів розпізнавання. Полімерність забезпечує високу авідність до повторюваних бактеріальних епітопів, навіть якщо окремий Fab помірно зв’язує антиген. Секреторний IgM також може проходити крізь pIgR завдяки J-ланцюгу; сироватковий мономерний IgA — не та сама молекула, що просвітний sIgA.
У людей є підкласи IgA1 та IgA2. Довший O-глікозильований шарнір IgA1 надає Fab гнучкості, але може бути мішенню деяких бактеріальних IgA1-протеаз. Шарнір IgA2 коротший, тому він стійкіший саме до цих протеаз, а не до всіх кишкових ферментів. Частки підкласів відрізняються між сироваткою, секретами та відділами кишки й залежать від методу відбору. Варіанти дисульфідної організації IgA2 також не дають змоги зобразити всі молекули однією схемою.
J-ланцюг, кодований JCHAIN, синтезують плазматичні клітини, що секретують IgA та IgM. Він спрямовує складання Fc-хвостів в асиметричний комплекс із міжланцюговими дисульфідними зв’язками. Кріоелектронні структури Kumar і колег та Wang і колег показали, що J-ланцюг — не просто «скріпка»: він задає геометрію полімерного Fc-ядра й поверхню, яку розпізнає pIgR. Структури пояснюють збирання димерного й більш високоорганізованого IgA, але не визначають швидкість секреції у живій запаленій кишці. Без прямої перевірки структури й нумерації конкретні переліки пар Cys з попереднього рукопису не слід вважати універсальною картою людського sIgA.
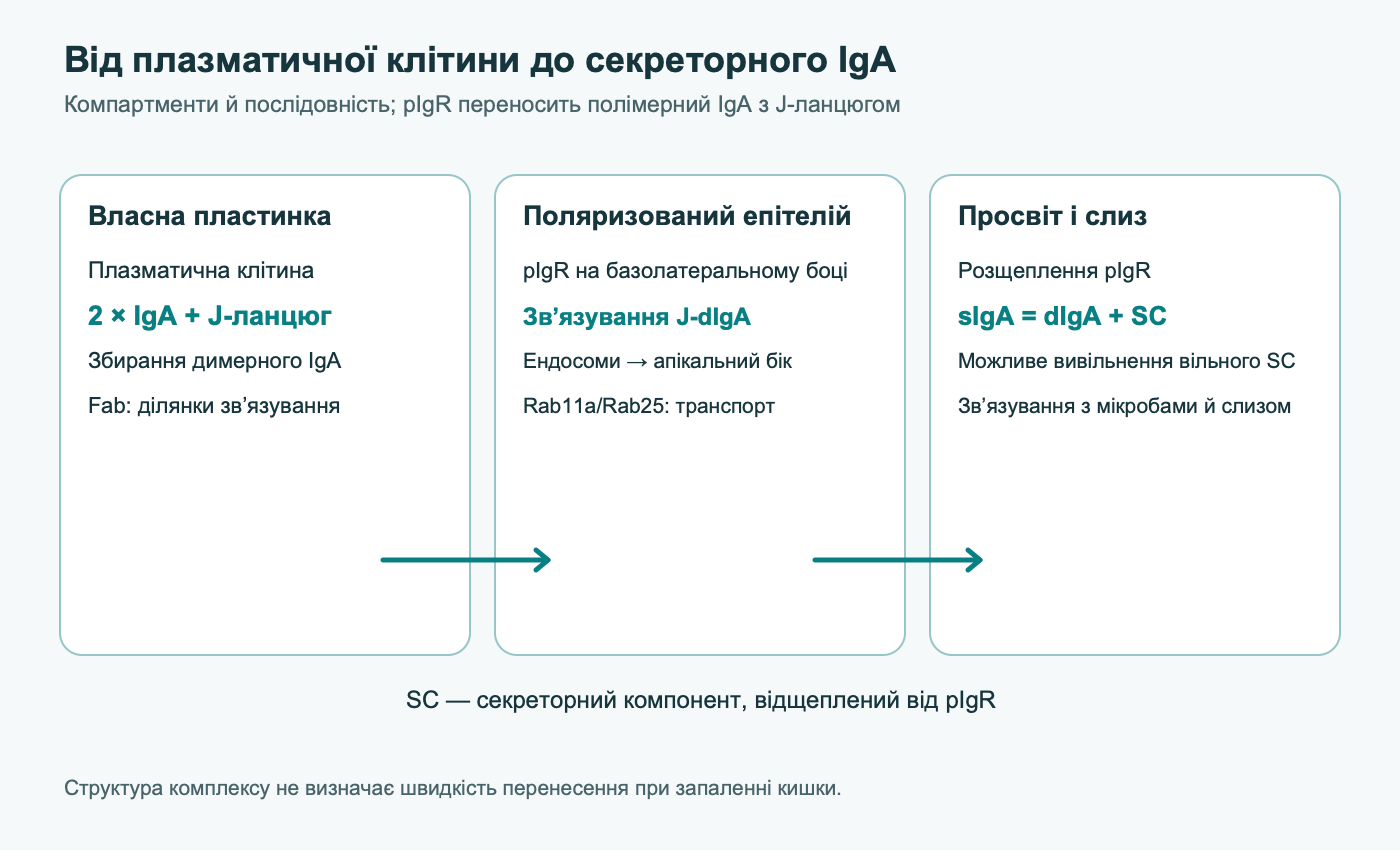
Ковалентне збирання відбувається до контакту з епітелієм, у секреторному апараті плазматичної клітини. Окиснення тіольних груп цистеїну формує дисульфідні містки (2 R–SH → R–S–S–R); правильне згортання хвостових ділянок важких ланцюгів і J-ланцюга визначає, чи впізнає комплекс рецептор. Виявлення JCHAIN у транскриптомі біопсії не показує кількості зрілих молекул dIgA: потрібні вимірювання білка та секретованого полімеру. В описі структури важливо відрізняти сталий принцип — асиметричне Fc-ядро, зібране J-ланцюгом, — від номерів залишків, що зсуваються залежно від урахування сигнального пептиду, підкласу й рекомбінантної конструкції.
Позаклітинна частина pIgR містить п’ять імуноглобуліноподібних доменів D1–D5. D1 починає розпізнавання полімерного імуноглобуліну з J-ланцюгом; решта доменів огортають комплекс. Дисульфідний зв’язок SC із деякими молекулами IgA стабілізує комплекс, але частка ковалентних і нековалентних форм залежить від біоматеріалу та аналізу. Після апікального розщеплення ектодомен pIgR залишається на антитілі як SC. Частина pIgR переноситься без зв’язаного IgA та вивільняє вільний SC, який також може взаємодіяти з мікробними поверхнями.
Глікани IgA і SC є функціональною частиною молекули. N-глікани важких ланцюгів і SC, O-глікани шарніра IgA1 та їхнє фукозилювання і сіалювання створюють неоднорідну поверхню. Вона може впливати на стійкість до протеолізу, взаємодію з муцином і мікробними лектинами, а також бути «оманливою мішенню» для адгезинів. Глікозилювання змінюється залежно від клітини-продуцента й стану тканини. Твердження, що кожен патоген зв’язується з будь-яким sIgA саме через SC, так само хибне, як припущення, що контакт визначає лише Fab. Для конкретного мікроба треба порівнювати ціле антитіло, специфічність Fab та варіанти глікозилювання.
За певних умов SC підвищує стійкість IgA у секретах, але не робить його невразливим. Виживання антитіла змінюють бактеріальні протеази, pH, травні ферменти й час транзиту. Одне структурне дослідження не дає підстав приписувати «десятки годин» кожному відділу кишки й будь-якій дозі.
2. Спрямований шлях: плазматична клітина — pIgR — просвіт
Плазматичні клітини власної пластинки виділяють dIgA з J-ланцюгом під епітелієм. Епітеліальна клітина синтезує pIgR, проводить його через ендоплазматичний ретикулум і апарат Гольджі та розміщує на базолатеральній поверхні. Рецептор зв’язує dIgA або полімерний IgM і потім інтерналізується. Сигнали сортування в цитоплазматичному хвості pIgR, адаптери, клатрин та ендосомні білки регулюють рух. Комплекс переходить із ранньої базолатеральної ендосоми через переробні ендосомні компартменти до апікальної мембрани. Rab11a і Rab25 беруть участь у сортуванні та спрямованій доставці в досліджених поляризованих клітинах, але жодна ГТФаза не є універсальним «мотором» усього шляху.
На апікальному боці позаклітинна частина pIgR протеолітично вивільняється разом із dIgA як sIgA; частина незавантажених рецепторів утворює вільний SC. Отже, просвітний sIgA залежить щонайменше від кількості плазматичних клітин, синтезу dIgA, експресії та полярності pIgR, везикулярного трафіку, протеолізу й розведення секретів. Зростання мРНК PIGR не гарантує зростання функціонального перенесення, а низька концентрація у розведеному калі не доводить недостатнього вироблення.
Напрям руху має значення: pIgR міститься на епітелії, а антитіло надходить до нього з тканини. Змішування апікального й базолатерального компартментів у культурі може представити пасивне просочування білка як трансцитоз. Переконливіша модель використовує поляризований моношар, додає dIgA знизу, вимірює sIgA і SC зверху та перевіряє цілісність контактів разом із блокуванням або генетичною зміною pIgR. Якщо моношар пошкоджений, антитіло може пройти між клітинами, тож поява IgA з іншого боку вже не доводить активного рецепторного перенесення. Спільна локалізація з Rab11a вказує на маршрут, але не вимірює швидкість.
Твердження про «строго фіксовану» константу зв’язування pIgR з кожним dIgA вводить в оману: афінність залежить від того, чи використовували D1 або повний SC, валентності, гліканів і умов аналізу. Рецептор віддає перевагу полімерним формам із J-ланцюгом, але це не доводить абсолютної відсутності будь-яких інших слабких контактів. Також не встановлено єдиного місця апікального розщеплення й однієї протеази для всіх епітеліїв. Структурне зв’язування, маршрутизація та секреція — різні експериментальні результати.
3. Як B-клітини стають джерелом кишкового IgA
Пейєрові бляшки та ізольовані лімфоїдні фолікули є місцями індукції відповіді. M-клітини фолікулярного епітелію та антигенпрезентувальні клітини доставляють і презентують частини просвітних антигенів. Після активації B-клітини й плазмобласти мігрують до власної пластинки — ефекторного місця секреції. Ділянка кишки, вік, харчування, інфекції та попередній контакт з антигеном змінюють внесок шляхів. Часто повторювана оцінка, ніби «70% усіх лімфоцитів тіла містяться в GALT», не потрібна для пояснення механізму й залежить від визначення тканини.
За T-залежної відповіді CD40 на B-клітині взаємодіє з CD40L фолікулярного T-хелпера; IL-21 та інші локальні сигнали підтримують гермінативний центр, соматичну гіпермутацію та відбір клонів. Антигенна специфічність важлива для нейтралізації токсинів та окремих патогенів. У T-незалежних шляхах епітеліальні, дендритні й стромальні клітини через BAFF і APRIL можуть підтримувати переключення на IgA за іншої організації T-клітинної допомоги. Це не означає, що більша частина людського IgA обов’язково утворюється одним T-незалежним шляхом або що кожен такий IgA слабкий і поліреактивний. Розподіл залежить від виду, відділу кишки, мікробіоти та антигену.
Переключення класу — хімічна перебудова ДНК, а не проста зміна секреції білка. TGF-β через SMAD сприяє транскрипції ділянки Cα. AID (AICDA) дезамінує цитидини у транскрибованих switch-ділянках: dC → dU. UNG видаляє урацил, а ендонуклеазні та репараційні етапи створюють розриви; з’єднання кінців наближає VDJ до Cα. Активація AID і соматична гіпермутація пов’язані, але відбуваються в різних ділянках локусу імуноглобуліну. IL-10, IL-21, BAFF/APRIL і ретиноева кислота змінюють контекст відповіді; жоден сигнал сам по собі не перетворює будь-яке зростання фекального IgA на якісний захист.
Ретиноева кислота, що утворюється з вітаміну A за участю локальних клітин, допомагає програмувати кишковий хомінг. Інтегрин α4β7 взаємодіє з ендотеліальним MAdCAM-1; CCR9/CCL25 особливо важливий для тонкої кишки, а CCR10/CCL28 бере участь у розподілі до інших слизових і відділів кишки. Після виходу з крові плазмобласти дозрівають до IgA-секретувальних клітин. Вісь хомінгу складніша за стрілку «вітамін A → IgA»: дефіцит її порушує, але додаткові високі дози не довели універсального посилення клінічного захисту в людей без дефіциту.
4. Імунне виключення не стерилізує мікробіоту
Fab антитіла може перекрити мікробний адгезин або ділянку токсину, що зв’язується з рецептором. Мультивалентний sIgA зв’язує повторювані епітопи на сусідніх клітинах і утворює агрегати; Moor і колеги також показали «зчеплення» бактерій, що діляться, у визначеній моделі. Кластерам важче досягти поверхні епітелію, і вони можуть виводитися зі слизом та кишковим потоком. Глікани SC та IgA здатні додатково утримувати деякі мікроорганізми у слизовому середовищі. Водночас організація, стерильність і швидкість оновлення внутрішнього та зовнішнього слизу відрізняються у тонкій і товстій кишці та змінюються при запаленні. sIgA обмежує небажаний контакт, але не знищує всіх покритих бактерій.
Антитіла до холерного токсину можуть перешкоджати зв’язуванню його B-субодиниці з GM1; дія проти інших токсинів залежить від епітопу та локальної концентрації. Розпізнавання LPS саме по собі не є хімічною детоксикацією ліпіду A. sIgA може утримувати бактеріальні структури у просвіті й зменшувати доступ до тканини, тоді як дефосфорилювання LPS — інша реакція, наприклад за участю кишкової лужної фосфатази. Твердження, що будь-який sIgA повністю усуває сигнал LBP/CD14/TLR4, надто сильне.
Внутрішньоклітинну нейтралізацію під час трансцитозу показано для окремих антигенспецифічних IgA та вірусних моделей, зокрема ротавірусу. Це не доводить, що кожен вірус із попереднього рукопису розмножується в одному ендосомному компартменті та виводиться цим шляхом. Антиген, зв’язаний dIgA з боку власної пластинки, також може переноситися до просвіту — механізм «імунної екскреції». Його значення залежить від доступу антитіла до антигену та цілісності епітелію; це не насос, який гарантовано очищає кров від будь-якого алергену.
IgA зазвичай слабше, ніж IgG, активує класичний шлях комплементу через C1q, що відповідає постійно заселеній слизовій. Але «не запальний» не означає «без ефекторних функцій». Мієлоїдний FcαRI/CD89 міститься переважно з тканинного боку бар’єра. Мономерні та мультивалентні комплекси IgA можуть по-різному організовувати ITAM-сигнали рецептора: у деяких моделях слабка активація залучає SHP-1 і обмежує запалення, а щільне перехресне зв’язування активує Syk та ефекторні клітини. Це окремий від просвітного виключення процес, особливо важливий при проникненні імунних комплексів у тканину.
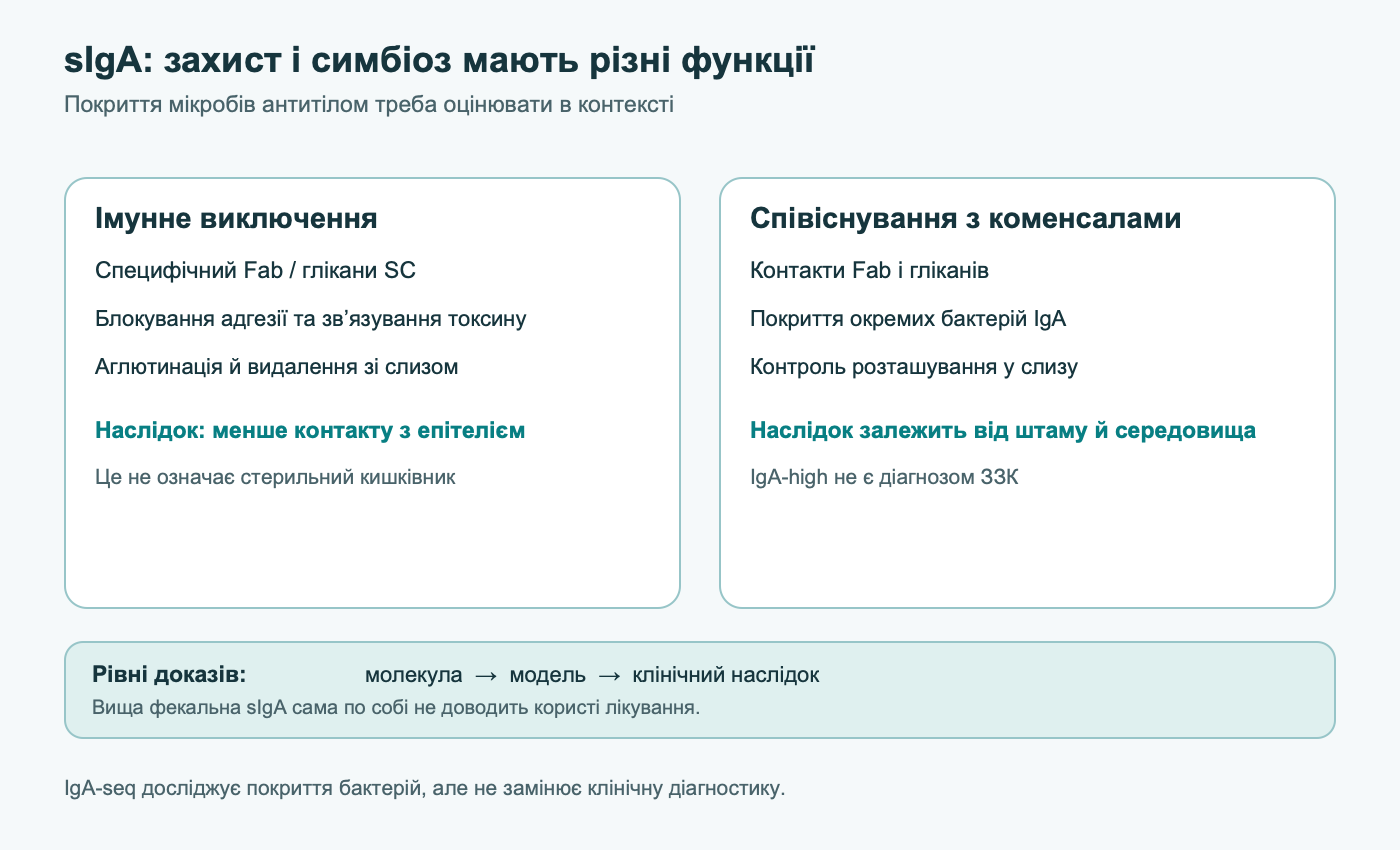
Зв’язування та функціональна нейтралізація — різні речі. ELISA підтверджує контакт антитіла з очищеним антигеном, але не блокування інфекції у живому епітелії. Для токсину потрібно виміряти, чи перешкоджає антитіло зв’язуванню з рецептором і токсичній дії; для бактерій — адгезію, інвазію та поширення; для вірусу — інфекційність на обраному етапі циклу. Висока авідність до очищеного LPS не дорівнює вимкненню TLR4 після потрапляння комплексу в тканину. Для різних інфекцій можуть бути потрібні різні специфічності Fab, хоча шлях перенесення спільний.
5. Покриття коменсалів: маркер контакту, а не ярлик «патоген»
Покриття бактерій IgA вимірюють проточною цитометрією, потім фракції сортують і визначають їхній склад (IgA-seq). Palm і колеги встановили, що бактерії з високим покриттям IgA, виділені з матеріалу людей із запальними захворюваннями кишки, підвищували схильність до коліту після перенесення стерильним мишам. Це сильний функціональний експеримент, але не діагностичне правило, за яким кожен таксон IgA-high є «винним» у кожного пацієнта. Результат залежить від стану хазяїна, суміші мікробів, методу сортування й моделі. Високе покриття може означати активний імунний контроль, близькість до слизу або відкриття антигену під час запалення, а не однакову вірулентність усіх представників таксона.
Bunker і колеги описали поліреактивний IgA, що обмежує патобіонтів, а Donaldson і колеги показали, що окремі члени мікробіоти використовують IgA для колонізації слизової. Тому «менше IgA на бактеріях» не завжди краще, а «більше» не завжди вказує на хворобу. Зв’язок може залежати від розпізнавання поверхневих антигенів Fab, гліканів SC, росту бактерій та властивостей слизу. Визначити внесок кожного механізму для Bacteroides чи Akkermansia без дослідів з конкретним штамом та антитілом неможливо. Широке твердження попереднього рукопису, ніби IgA пригнічує флагелін, інвазини й синтез ендотоксину в усіх названих коменсалів, не підтверджується однією серією експериментів.
Утримання мікроба у зовнішньому слизу відрізняється від неконтрольованого росту щільної біоплівки. У здоровій товстій кишці мікроби взаємодіють із зовнішнім шаром MUC2, але структура внутрішнього шару різниться між видами й порушується при коліті. Частка покритих бактерій у калі не описує їхній просторовий розподіл біля стінки кишки. Функціональне питання полягає в тому, чи зменшує конкретне антитіло інвазію, патологічне запалення або поширення мікроба за певного складу спільноти.
6. Дефіцит IgA, запалення й хвороби: різні клінічні питання
Селективний дефіцит IgA визначають за стійко низьким сироватковим IgA при нормальних IgG та IgM у відповідному віці; поширений критерій — менше 0,07 г/л у людей старше чотирьох років. Діагноз потребує клінічного контексту та виключення вторинних причин. Його не встановлюють за одним результатом фекального sIgA. Багато людей із таким імунним фенотипом не мають тяжких симптомів; у частини бувають інфекції дихальних шляхів і ШКТ, автоімунні стани або алергічні хвороби. Компенсація секреторним IgM із J-ланцюгом через pIgR можлива, але відрізняється між пацієнтами. Варіанти HLA та генів регуляції B-клітин створюють схильність, однак дефект TACI не описує всіх пацієнтів. За підозри на целіакію при дефіциті IgA важливі тести, що не залежать лише від IgA. Реакції на компоненти крові можливі в окремих людей, але анафілаксія не є неминучою для кожного.
При запальних захворюваннях кишки одночасно змінюються маса епітелію, експресія pIgR, склад і потік антитіл, проникність та мікробне навантаження. Цитокіни за деяких умов індукують PIGR; тяжке ушкодження епітелію в інших умовах може зменшувати ефективне перенесення. Твердження, що хронічне запалення кишки завжди пригнічує pIgR на 60–80% і майже зупиняє sIgA, не можна узагальнювати на виразковий коліт і хворобу Крона. Склад клітин біопсії та місце відбору сильно впливають на рівень мРНК. Високе покриття бактерій IgA може співіснувати з пошкодженим бар’єром. Механістичне дослідження потребує парних вимірювань тканини, просвіту й клінічної активності, а не одного маркера.
IgA допомагає обмежувати контакт із мікробами, але дефіцит sIgA не є ні необхідною, ні достатньою причиною надмірного бактеріального росту в тонкій кишці (СІБР). На нього впливають моторика, анатомія, кислотність, ліки, жовч і харчування. Результати аспіратів і дихальних тестів залежать від методу; не можна оголошувати універсальний поріг КУО, а потім виводити «системну ендотоксемію» з низького фекального IgA. Бактеріальна транслокація в мезентеріальні вузли — окреме явище з іншою доказовою базою, особливо у моделях тяжкого ушкодження.
Інтерпретуючи sIgA, треба враховувати матрицю зразка. Слина, дуоденальний аспірат, кал і біопсія тканини відображають різні органи, час транзиту й методи розведення. Водянистий кал та запальний ексудат змінюють концентрацію на грам зразка навіть за незмінної секреції. Загальний IgA не показує антигенну специфічність, полімерність, склад SC чи здатність зв’язати конкретний штам. Для порівняння у часі важливі той самий лабораторний метод, інфекційний стан, ліки й час забору. За повторних тяжких інфекцій лікар оцінює й інші імуноглобуліни та функціональні відповіді; комерційний результат «низький sIgA» не повинен замінювати таку оцінку.
IgA-нефропатія пов’язана з галактозодефіцитним IgA1, автоантитілами до його зміненого O-глікозильованого шарніра та циркулюючими комплексами, що відкладаються в мезангії. Це системна багатоступенева хвороба; її не можна пояснити низьким sIgA в калі чи автоматично приписати неправильному хомінгу кишкових плазматичних клітин. Підвищення загального sIgA добавкою не є доведеним лікуванням. Зв’язки стресу, сну й харчування з імунними показниками також потребують урахування часу, початкового стану здоров’я та типу зразка. Твердження про неминуче пряме пригнічення PIGR кортизолом і фіксоване зниження секреції на 50–70% у всіх людей не є встановленим клінічним правилом.
| Вимірювання | Що воно може показати | Чого воно не доводить |
|---|---|---|
| Сироваткові IgA, IgG та IgM | Допомагають оцінити системний фенотип імуноглобулінів | Не вимірюють окремо швидкість перенесення через pIgR |
| sIgA у калі чи секреті | Кількість антитіла в конкретному зразку | Не встановлює універсальний діагноз «слабкого бар’єра» |
| мРНК PIGR або забарвлення тканини | Експресію у вибраній ділянці й стані | Не гарантує завершеного трансцитозу |
| IgA-seq | Покриття та склад відсортованих бактерій | Не доводить причинність кожного таксона в людини |
| Інфекції, ендоскопія, клінічний перебіг | Наслідки, важливі для пацієнта | Не визначають автоматично, який етап осі sIgA змінився |
7. Харчування, мікробні препарати та пасивні антитіла
Ферментація харчових волокон утворює ацетат, пропіонат і бутират. Ці коротколанцюгові жирні кислоти можуть діяти через рецептори FFAR2/FFAR3 і HCAR2, енергетичний обмін і гістондеацетилази. У дослідах на мишах і клітинах ацетат посилював відповідь IgA на мікробіоту, а бутират впливав на утворення мукозального IgA; окремо вивчали експресію pIgR у клітинах епітеліальної лінії HT-29. Вплив однієї кислоти на B-клітину та вплив суміші продуктів ферментації на епітелій — різні експерименти. Ці роботи не встановлюють фіксованого зростання PIGR у 2,5–4 рази чи дози інуліну для лікування дефіциту IgA. Відповідь залежить від початкової мікробіоти, переносимості волокон, місця ферментації та хвороби.
Результати пробіотиків також залежать від штаму та кінцевої точки. Buts і колеги виявили зростання секреції sIgA та SC у тонкій кишці щурят після Saccharomyces boulardii; це не плацебо-контрольоване дослідження дорослих із ЗЗК і не підстава обіцяти зростання фекального sIgA у людей на 40–65% за 7–10 днів. Дослідження Lactobacillus rhamnosus GG у дітей із ротавірусною діареєю та при хворобі Крона стосувалися різних популяцій й імунних результатів. Виміряне зростання антитіла слід відрізняти від зменшення хвороби; результати різних штамів не можна складати в одну «дозу sIgA». Безпеку живих препаратів особливо важливо оцінювати в людей з імунокомпрометацією. Див. матеріал про безпеку пробіотиків.
Вітамін A та його метаболіт ретиноева кислота беруть участь у хомінгу й дозріванні відповіді IgA; харчовий дефіцит справді може порушувати мукозальний імунітет. Вітамін D і цинк впливають на багато клітин і бар’єрні процеси. Але відсутність дефіциту не означає, що високі дози посилюють захист від інфекцій. Твердження про обов’язковий людський VDRE у PIGR, абсолютну залежність кожного плазмобласта від одного рецептора та падіння кишкового sIgA «понад 80%» через дефіцит вітаміну A не слід перетворювати на універсальні поради. Корекція встановленого дефіциту й лікування імунодефіциту — окремі питання.
Бичаче молозиво містить переважно коров’ячі імуноглобуліни, особливо IgG; склад залежить від часу після отелення, обробки та імунізації тварин. Це не людський dIgA, який утворюється у власній пластинці, і прийом усередину не виправляє генетичний або клітинний дефіцит IgA. У двох подвійних сліпих плацебо-контрольованих дослідженнях Otto і колег 90 здорових добровольців отримували таблетки гіперімунного молозива від корів, імунізованих проти штамів ETEC, перед експериментальним зараженням ETEC O78. Одна схема містила 400 мг білка молозива тричі на день із буфером; групи порівняння відрізнялися дозою й буфером. У деяких групах захист від діареї був високим, але це контрольована модель зараження одним штамом і специфічними антитілами. Це не доводить, що звичайне молозиво в будь-якій дозі запобігає всій діареї мандрівників або лікує ЗЗК. Дослідження дитячої ротавірусної діареї також стосувалися спеціально імунного матеріалу й іншого результату. Харчовий білок може руйнуватися та спричиняти небажані реакції, тому ці дані не підтримують масову «замісну терапію sIgA».
8. Методика та межі огляду
Це наративний огляд структурних, клітинних, тваринних і обмежених людських даних про кишковий sIgA. 9 жовтня 2026 року безпосередньо перевірено первинні записи, важливі для спірних тверджень про структуру IgA, вплив S. boulardii та випробування гіперімунного молозива. Також зіставлено початкові людські зразки й перенесення мікробіоти мишам у дослідженні покриття IgA. Це не вичерпний систематичний пошук, метааналіз чи формальна оцінка ризику похибки кожної цитованої публікації.
Молекулярна структура пояснює можливий механізм, клітинні й тваринні моделі перевіряють його за визначених умов, а клінічне випробування відповідає лише на виміряне питання. Доступні дослідження не встановлюють універсального порогу фекального sIgA для діагностики «проникного кишківника» й не показують, що підвищення одного результату добавкою покращує перебіг ЗЗК, СІБР чи IgA-нефропатії. Окреме значення треба тлумачити разом із симптомами, віком, інфекціями, лікуванням і способом забору зразка.
9. Висновок
Вісь «плазматична клітина — dIgA з J-ланцюгом — епітеліальний pIgR — секреторний компонент — просвіт» пояснює залежність мукозального захисту від кількох компартментів. sIgA може виключати патогени, нейтралізувати окремі токсини та допомагати регулювати розташування коменсалів без обов’язкового запалення. За змін мікробіоти й слизу ті самі антитіла можуть ставати маркерами активного контакту; самі по собі вони не означають здоров’я чи хвороби. Клінічне тлумачення надійніше, коли окремо оцінюють імунодефіцит, запальну хворобу й наслідок конкретного втручання, а не зводять їх до одного числа sIgA.
Часті питання
Що таке секреторний IgA?
Зазвичай це полімерний IgA, який пройшов крізь епітеліальний pIgR і зберіг його відщеплений позаклітинний секреторний компонент. Він діє у слизових секретах.
Чим він відрізняється від сироваткового IgA?
Сироватковий IgA часто мономерний; sIgA зазвичай має J-ланцюг і секреторний компонент. Їхні концентрації та клінічне значення не можна ототожнювати.
Чи доводить низький sIgA у калі імунодефіцит?
Ні. Селективний дефіцит оцінюють за сироватковими IgA, IgG та IgM з урахуванням віку й причин. Результат калу залежить від збору, розведення, транзиту та запалення.
Чому IgA покриває корисні бактерії?
Покриття може обмежувати доступ до епітелію та в деяких системах підтримувати колонізацію слизової. Воно не обов’язково вбиває бактерію чи свідчить про патогенність.
Чи можуть пробіотик або клітковина підвищити sIgA?
Окремі штами й метаболіти змінювали імунні показники у конкретних клітинних, тваринних або обмежених людських дослідженнях. Універсальної дози для низького результату не встановлено.
Чи замінює бичаче молозиво людський sIgA?
Ні. Випробування специфічного гіперімунного молозива проти ETEC вивчали пасивні антитіла при контрольованому зараженні; звичайне молозиво не виправляє людський дефіцит IgA.
Чи може IgA-seq діагностувати ЗЗК?
Метод допомагає вивчати взаємодію імунітету й мікробіоти, але не замінює клінічну діагностику й автоматично не визначає причинну бактерію в пацієнта.
Джерела
- Macpherson, A. J., McCoy, K. D., Johansen, F. E., & Brandtzaeg, P. (2008). The immune geography of IgA and its dynamic interactions with the commensal microbiota. Nature Reviews Immunology, 8(6), 448-458.
- Pabst, O., & Slack, E. (2020). IgA and the intestinal microbiota: the importance of being specific. Mucosal Immunology, 13(1), 12-21.
- Kumar, N., Arthur, C. P., Ciferri, C., & Matsumoto, M. L. (2020). Structure of the secretory immunoglobulin A core. Science, 367(6481), 1008-1014.
- Wang, Y., Wang, G., Li, Y., Zhu, Q., Shen, H., Gao, N., & Xiao, J. (2020). Structural insights into secretory immunoglobulin A and its interaction with a pneumococcal adhesin. Cell Research, 30(7), 602-609.
- Stadtmueller, B. M., Yang, Z., Robinson, M. V., Dam, K. M., & Bjorkman, P. J. (2016). The structure and dynamics of secretory component and its interactions with polymeric immunoglobulins. eLife, 5, e10640.
- Johansen, F. E., & Kaetzel, C. S. (2011). Regulation of the polymeric immunoglobulin receptor and IgA transport: new features of an old system. Frontiers in Immunology, 2, 85.
- Bunker, J. J., Flynn, T. M., Koval, J. C., Shaw, D. G., Meisel, M., McDonald, B. D., ... & Bendelac, A. (2015). Innate-like Polyreactive Antibodies Inhibit Pathogenic Commensals in the Gut. Cell, 163(2), 437-448.
- Palm, N. W., de Zoete, M. R., Cullen, T. W., Barry, N. A., Stefanowski, J., Hao, L., ... & Flavell, R. A. (2014). Immunoglobulin A coating identifies colitogenic bacteria in inflammatory bowel disease. Cell, 158(5), 1000-1010.
- Donaldson, G. P., Ladinsky, M. S., Yu, K. B., Sanders, J. G., Yoo, B. B., Chou, W. C., ... & Mazmanian, S. K. (2018). Gut microbiota utilize immunoglobulin A for mucosal colonization. Science, 360(6390), 795-800.
- Mathias, A., & Corthésy, B. (2011). N-Glycans on secretory component: mediators of the interaction between secretory IgA and gram-negative bacteria. Journal of Biological Chemistry, 286(15), 13322-13333.
- Royle, L., Roos, A., Harvey, D. J., Wormald, M. R., van Gijlswijk-Janssen, D., Redwan, E. R., ... & Dwek, R. A. (2003). Secretory IgA N- and O-glycans provide a multivalent glycan shield. Journal of Biological Chemistry, 278(22), 20140-20153.
- Fagarasan, S., Kinoshita, K., Muramatsu, M., Ikuta, K., & Honjo, T. (2001). In situ class switching and differentiation to IgA-producing cells in the gut lamina propria. Nature, 413(6856), 639-645.
- Reboldi, A., Arnon, T. I., Rodda, L. B., Atakilit, A., Sheppard, D., & Cyster, J. G. (2016). IgA production relies on Peyer's patch dendritic cells that acquire and present antigen from M cells. Science, 352(6287), aaf4822.
- Cerutti, A. (2008). The regulation of IgA class switching. Nature Reviews Immunology, 8(6), 421-434.
- Tezuka, H., Abe, Y., Iwata, M., Takeuchi, H., Ishikawa, H., Matsushita, M., ... & Ohteki, T. (2007). Regulation of IgA production by naturally occurring dendritic cells through retinoic acid. Nature, 448(7156), 929-933.
- Mora, J. R., Bono, M. R., Manlongat, N., Cao, B., Cavanagh, L. L., Mackay, C. R., ... & von Andrian, U. H. (2003). Selective imprinting of gut-homing T cells by Peyer's patch dendritic cells. Nature, 424(6944), 88-93.
- Iwata, M., Hirakiyama, A., Eshima, Y., Kagechika, H., Kato, C., & Song, S. Y. (2004). Retinoic acid imprints gut-homing specificity on T cells. Immunity, 21(4), 527-538.
- Rojas, R., & Apodaca, G. (2002). Immunoglobulin transport across polarized epithelia. Nature Reviews Molecular Cell Biology, 3(12), 944-955.
- Su, T., Wang, X., & Apodaca, G. (2010). Rab11a and Rab25 coordinate apical recycling and transcytosis in polarized epithelial cells. Molecular Biology of the Cell, 21(9), 1563-1574.
- Burns, J. W., Siadat-Pajouh, M., Krishnaney, A. A., & Greenberg, H. B. (1996). Protective effect of rotavirus VP6-specific IgA monoclonal antibodies that lack neutralizing activity. Science, 272(5258), 104-107.
- Moor, K., Diard, M., Sellin, M. E., Felmy, B., Wotzka, S. Y., Campos, A., ... & Slack, E. (2017). High-avidity IgA protects the intestine by enchaining growing bacteria. Nature, 544(7651), 498-502.
- Macpherson, A. J., Gatto, D., Sainsbury, E., Harriman, G. R., Hengartner, H., & Zinkernagel, R. M. (2000). A primitive T cell-independent mechanism of intestinal mucosal IgA responses to commensal bacteria. Science, 288(5474), 2222-2226.
- Suzuki, K., Meek, B., Doi, Y., Muramatsu, M., Chiba, T., Honjo, T., & Fagarasan, S. (2004). Aberrant expansion of segmented filamentous bacteria in IgA-deficient gut. Proceedings of the National Academy of Sciences, 101(7), 1981-1986.
- Pasquier, B., Launay, P., Kanamaru, Y., Karasuyama, H., Said, M., Mota, G., ... & Monteiro, R. C. (2005). Identification of FcalphaRI as an inhibitory receptor that suppresses inflammatory responses. Immunity, 22(1), 31-42.
- Yel, L. (2010). Selective IgA deficiency. Journal of Clinical Immunology, 30(1), 10-16.
- Suzuki, R., Suzuki, Y., & Nihei, Y. (2018). Development of IgA nephropathy: lessons from galactose-deficient IgA1 and animal models. Kidney Research and Clinical Practice, 37(4), 316-324.
- Moldoveanu, Z., Wyatt, R. J., Lee, J. Y., Tomana, M., Julian, B. A., Mestecky, J., ... & Novak, J. (2007). Patients with IgA nephropathy have increased levels of galactose-deficient IgA1. Kidney International, 71(11), 1148-1154.
- Wu, W., Sun, M., Chen, F., Cao, A. T., Liu, H., Zhao, Y., ... & Cong, Y. (2017). Microbiota metabolite short-chain fatty acid, acetate, promotes intestinal IgA response to microbiota which is mediated by GPR43. Infection and Immunity, 85(7), e00847-16.
- Isobe, J., Maeda, S., Obata, Y., Iizuka, K., Horibe, M., & Hase, K. (2020). Commensal-bacteria-derived butyrate promotes the generation of mucosal IgA through HDAC inhibition. Biochemical and Biophysical Research Communications, 526(3), 820-826.
- Kabeerdoss, J., Devi, R. S., Mary, R. R., & Ramakrishna, B. S. (2011). Effect of Faecalibacterium prausnitzii and short-chain fatty acids on the expression of polymeric immunoglobulin receptor in HT-29 colonic epithelial cells. Journal of Biosciences, 36(5), 903-909.
- Malin, M., Suomalainen, H., Saxelin, M., & Isolauri, E. (1996). Promotion of IgA immune response in patients with Crohn's disease by oral bacteriotherapy with Lactobacillus GG. Annals of Nutrition and Metabolism, 40(3), 137-145.
- Kaila, M., Isolauri, E., Soppi, E., Virtanen, E., Laine, S., & Arvilommi, H. (1992). Enhancement of the circulating antibody response to human rotavirus in children with diarrhea by oral administration of Lactobacillus GG. Pediatric Research, 32(2), 141-144.
- Buts, J. P., Bernasconi, P., Vaerman, J. P., & Dive, C. (1990). Stimulation of secretory IgA and secretory component of immunoglobulins in small intestine of rats treated with Saccharomyces boulardii. Digestive Diseases and Sciences, 35(2), 251-256.
- Mora, J. R., Iwata, M., & von Andrian, U. H. (2008). Vitamin effects on the immune system: vitamins A and D take centre stage. Nature Reviews Immunology, 8(9), 685-698.
- Otto W, Najnigier B, Stelmasiak T, Robins-Browne RM. Randomized control trials using a tablet formulation of hyperimmune bovine colostrum to prevent diarrhea caused by enterotoxigenic Escherichia coli in volunteers. Scand J Gastroenterol. 2011;46:862-868.
- Sarker, S. A., Casswall, T. H., Mahalanabis, D., Alam, N. H., Albert, M. J., Brüssow, H., ... & Fuchs, G. J. (1998). Successful treatment of rotavirus diarrhea in children with immunoglobulin from immunized bovine colostrum. Pediatric Infectious Disease Journal, 17(12), 1149-1154.