Sekretor IgA (sIgA): polimer immunoglobulin retseptori (pIgR) orqali transsitoz, patogenlarni immun chetlatish va kommensal mikrobiota bilan simbioz
Sekretor IgA qanday yig‘ilib epiteliydan o‘tishi, patogenlarni cheklab ayrim kommensallarni qo‘llab-quvvatlashi va najas sIgA si nega yakka holda tashxis ham, davolash nishoni ham emasligini tushuntiradi.
Sekretor immunoglobulin A (sIgA) plazmatik hujayralar, ichak epiteliysi va ichak bo‘shlig‘idagi mikrobiota faoliyatini bog‘laydi. Shilliq qavatning xususiy qatlamida asosan polimer IgA hosil bo‘ladi; epiteliy retseptori pIgR uni apikal yuzaga tashiydi va parchalanganda antitanada sekretor komponentni qoldiradi. Hosil bo‘lgan molekula mikroorganizmlar va ularning mahsulotlariga yallig‘lanishni shart qilmasdan bog‘lanadi. sIgA faqat patogenlarni chetlatmaydi: ayrim kommensallar shilliqda barqaror joylashish uchun IgA dan foydalanadi. Najas yoki so‘lakdagi sIgA miqdori tizimning butun holatini ko‘rsatmaydi va «immunitetni ko‘taruvchi» qo‘shimcha kerakligini isbotlamaydi.
1. Sekretor IgA tarkibi
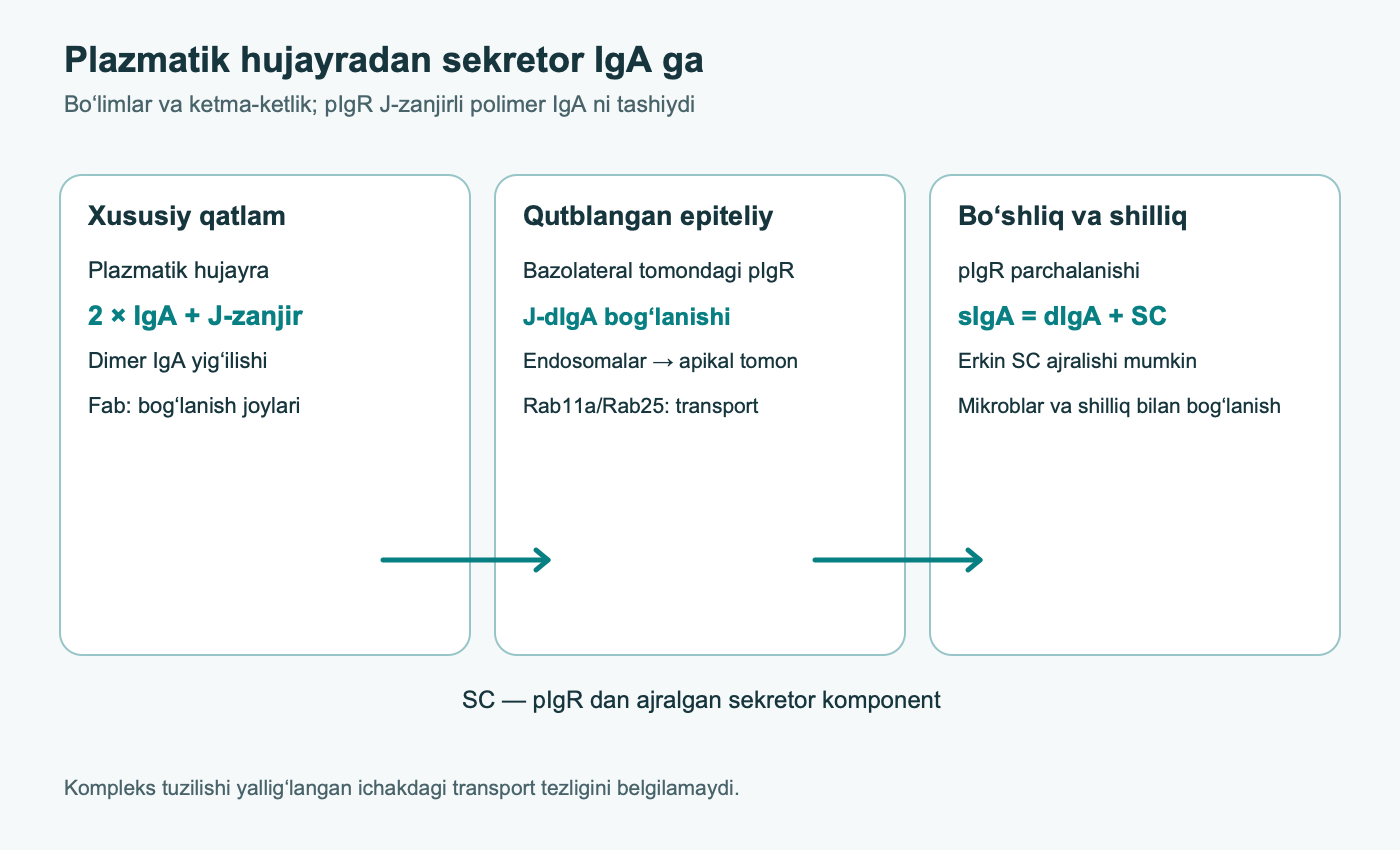
IgA monomeri boshqa antitanalar kabi ikkita og‘ir α-zanjir va ikkita yengil zanjirdan iborat, ammo sekretor kompleks odatda ikkita monomerni o‘z ichiga oladi. Ularning Fc qismlari J-zanjir yordamida birikadi, tashqi tomonda esa pIgR ning ajralgan hujayradan tashqari qismi — sekretor komponent (SC) joylashadi. Dimerda antigenni taniydigan to‘rttagacha Fab joyi bor. Polimerlik alohida Fab antigen bilan o‘rtacha bog‘lansa ham takroriy bakterial epitoplarga yuqori avidlik beradi. J-zanjir borligi sababli sekretor IgM ham pIgR orqali o‘tishi mumkin; zardobdagi monomer IgA ichak bo‘shlig‘idagi sIgA bilan bir xil molekula emas.
Odamlarda IgA1 va IgA2 kichik turlari mavjud. IgA1 ning uzunroq O-glikozillangan bo‘g‘imi Fab ga egiluvchanlik beradi, biroq ayrim bakterial IgA1 proteazalari uchun nishon bo‘lishi mumkin. IgA2 bo‘g‘imi qisqaroq va shu proteazalarga nisbatan chidamliroq, lekin ichakdagi barcha fermentlarga chidamli emas. Kichik turlarning ulushi zardob, sekretlar va ichak qismlarida farq qiladi hamda namuna olish usuliga bog‘liq. IgA2 disulfid bog‘lari tuzilishining variantlari ham barcha molekulalarni bitta chizma bilan tasvirlashga yo‘l qo‘ymaydi.
JCHAIN kodlaydigan J-zanjirni IgA va IgM ajratuvchi plazmatik hujayralar sintez qiladi. U Fc dumlarini zanjirlararo disulfid bog‘lari bo‘lgan asimmetrik kompleksga yig‘ilishini boshqaradi. Kumar va hamkasblari hamda Wang va hamkasblarining kriyoelektron tuzilmalari J-zanjir shunchaki «qisqich» emasligini ko‘rsatdi: u polimer Fc yadrosining geometriyasi va pIgR taniydigan yuzani belgilaydi. Tuzilmalar dimer va undan yuqori darajada tashkil topgan IgA qanday yig‘ilishini tushuntiradi, lekin tirik yallig‘langan ichakdagi sekretsiya tezligini ko‘rsatmaydi. Tuzilma va qoldiq raqamlari bevosita tekshirilmasa, oldingi qo‘lyozmadagi muayyan Cys juftliklarini inson sIgA si uchun universal xarita deb qabul qilmaslik kerak.
Kovalent yig‘ilish epiteliy bilan aloqa qilishdan oldin, plazmatik hujayraning sekretor apparatida yuz beradi. Sistein tiol guruhlarining oksidlanishi disulfid ko‘priklarini hosil qiladi (2 R–SH → R–S–S–R); og‘ir zanjirlar va J-zanjir dum qismlarining to‘g‘ri buklanishi kompleks retseptor tomonidan tanilishini belgilaydi. Biopsiya transkriptomida JCHAIN aniqlanishi yetilgan dIgA molekulalari sonini ko‘rsatmaydi: oqsil va ajratilgan polimerni o‘lchash kerak. Tuzilmani tasvirlaganda barqaror tamoyil — J-zanjir yig‘adigan asimmetrik Fc yadrosi — bilan signal peptidi, kichik tur va rekombinant konstruksiyaga qarab o‘zgaradigan qoldiq raqamlarini farqlash lozim.
pIgR ning hujayradan tashqari qismi D1–D5 deb nomlangan beshta immunoglobulinga o‘xshash domendan iborat. D1 J-zanjirli polimer immunoglobulinni tanishni boshlaydi, qolgan domenlar kompleksni o‘rab turadi. SC bilan ayrim IgA molekulalari orasidagi disulfid bog‘i kompleksni barqarorlashtiradi, ammo kovalent va nokovalent shakllar ulushi biologik material va tahlilga qarab o‘zgaradi. Apikal parchalanishdan so‘ng pIgR ektodomеni antitanada SC bo‘lib qoladi. pIgR ning bir qismi IgA bilan bog‘lanmagan holda tashilib, erkin SC ni chiqaradi; u ham mikrob yuzalari bilan ta’sirlashishi mumkin.
IgA va SC glikanlari molekulaning funksional qismidir. Og‘ir zanjirlar va SC dagi N-glikanlar, IgA1 bo‘g‘imidagi O-glikanlar hamda ularning fukozillanishi va sialillanishi turli xil sirt hosil qiladi. Bu proteolizga chidamlilik, mutsin va mikrob lektinlari bilan o‘zaro ta’sirga ta’sir qilishi yoki adgezinlar uchun «soxta nishon» bo‘lishi mumkin. Glikozillanish ishlab chiqaruvchi hujayra va to‘qima holatiga bog‘liq. Har bir patogen har qanday sIgA ga aynan SC orqali bog‘lanadi deyish ham, faqat Fab kontaktni belgilaydi deyish ham noto‘g‘ri. Muayyan mikrob uchun butun antitana, Fab xususiyati va glikozillanish variantlarini solishtirish kerak.
Ayrim sharoitlarda SC sekretlardagi IgA barqarorligini oshiradi, ammo uni buzilmas qilmaydi. Bakterial proteazalar, pH, ovqat hazm qilish fermentlari va tranzit vaqti antitana saqlanishiga ta’sir qiladi. Bitta tuzilma tadqiqoti ichakning har bir qismi va istalgan doza uchun «o‘nlab soat» yashashini asoslamaydi.
Xususiy qatlamdagi plazmatik hujayralar epiteliy ostidan J-zanjirli dimer IgA chiqaradi. Epiteliy hujayrasi pIgR sintez qiladi, uni endoplazmatik to‘r va Golji apparatidan o‘tkazadi va bazolateral yuzaga joylashtiradi. Retseptor dIgA yoki polimer IgM ni bog‘laydi, so‘ng ichkariga olinadi. pIgR sitoplazmatik dumidagi saralash signallari, adapterlar, klatrin va endosoma oqsillari transportni boshqaradi. Kompleks erta bazolateral endosomadan qayta ishlovchi endosoma qismlari orqali apikal membranaga ko‘chadi. O‘rganilgan qutblangan hujayralarda Rab11a va Rab25 saralash hamda yo‘naltirilgan yetkazishda qatnashadi, lekin hech bir GTPaza butun yo‘lning universal «motori» emas.
Apikal tomonda pIgR ning hujayradan tashqari qismi dIgA bilan birga proteolitik ajralib, sIgA hosil qiladi; yuklanmagan retseptorlarning bir qismi erkin SC chiqaradi. Shuning uchun ichak bo‘shlig‘idagi sIgA miqdori kamida plazmatik hujayralar soni, dIgA sintezi, pIgR ifodalanishi va qutblanishi, vezikula transporti, proteoliz va sekretlar suyulishiga bog‘liq. PIGR mRNK ortishi funksional transport ortishini kafolatlamaydi, suyulgan najasdagi past konsentratsiya esa ishlab chiqarish kamligini isbotlamaydi.
Harakat yo‘nalishi muhim: pIgR epiteliyda, antitana esa unga to‘qima tomondan keladi. Hujayra madaniyatida apikal va bazolateral qismlarni aralashtirish passiv oqib o‘tishni transsitozdek ko‘rsatishi mumkin. Ishonchliroq model qutblangan monoqatlamdan foydalanadi, dIgA ni pastdan qo‘shadi, yuqorida sIgA va SC ni o‘lchaydi hamda pIgR bloklanganda yoki genetik o‘zgartirilganda hujayra tutashuvlarining butunligini tekshiradi. Monoqatlam shikastlansa, antitana hujayralar orasidan o‘tadi va narigi tomonda IgA paydo bo‘lishi faol retseptor transportini isbotlamaydi. Rab11a bilan bir joyda ko‘rinish yo‘lga ishora qiladi, tezlikni miqdoriy o‘lchamaydi.
Har bir dIgA uchun pIgR bilan «qat’iy belgilangan» bog‘lanish konstantasi bor deyish chalg‘itadi: yaqinlik tahlilda D1 yoki to‘liq SC ishlatilishi, valentlik, glikanlar va sharoitga bog‘liq. Retseptor J-zanjirli polimer shakllarni afzal ko‘radi; bundan boshqa kuchsiz o‘zaro ta’sirlar mutlaqo yo‘q degan xulosa chiqmaydi. Barcha epiteliya turlari uchun yagona apikal parchalanish joyi va bitta proteaza ham aniqlanmagan. Tuzilmaviy bog‘lanish, yo‘naltirish va sekretsiya alohida tajriba natijalaridir.
3. B-hujayralar qanday qilib ichak IgA manbaiga aylanadi
Peyer pilakchalari va alohida limfoid follikullar javob induksiyasi joylaridir. Follikul epiteliyidagi M-hujayralar va antigen taqdim qiluvchi hujayralar ichak bo‘shlig‘idagi antigen qismlarini olib keladi va taqdim etadi. Faollashgach, B-hujayralar va plazmoblastlar sekretsiya amalga oshadigan effektor joy — xususiy qatlamga ko‘chadi. Ichak hududi, yosh, ovqatlanish, infeksiyalar va oldingi antigen ta’sirlari yo‘llar ulushini o‘zgartiradi. «Tanadagi barcha limfotsitlarning 70 foizi GALT da» degan mashhur son mexanizmni tushuntirish uchun kerak emas va to‘qima qanday ta’riflanishiga bog‘liq.
T-hujayraga bog‘liq javobda B-hujayradagi CD40 follikulyar T-yordamchidagi CD40L bilan ta’sirlashadi; IL-21 va boshqa mahalliy signallar germinal markazni, somatik gipermutatsiya va klon tanlanishini qo‘llab-quvvatlaydi. Antigen xususiyati toksinlar va ayrim patogenlarni neytrallashda muhim. T-hujayraga bog‘liq bo‘lmagan yo‘llarda epiteliy, dendrit va stromal hujayralar BAFF va APRIL orqali IgA ga sinf almashinishini qo‘llashi mumkin; T-yordami boshqacha tashkil topadi. Bu inson IgA sining ko‘pi bitta T-mustaqil yo‘ldan keladi yoki har bir bunday IgA kuchsiz va polireaktiv degani emas. Ulush tur, ichak qismi, mikrobiota va antigenga bog‘liq.
Sinf almashinuvi oqsil ajralishining oddiy o‘zgarishi emas, DNK ning kimyoviy qayta tuzilishidir. TGF-β SMAD orqali Cα hududi transkripsiyasini qo‘llaydi. AID (AICDA) transkripsiyalanayotgan switch hududlarida sitidinlarni dezaminlab dC → dU ga aylantiradi. UNG uratsilni olib tashlaydi, endonukleaza va ta’mirlash bosqichlari uzilishlar hosil qiladi, so‘ng uchlarni biriktirish VDJ ni Cα ga yaqinlashtiradi. AID faollashuvi va somatik gipermutatsiya bog‘liq, ammo immunoglobulin lokusining boshqa qismlarida sodir bo‘ladi. IL-10, IL-21, BAFF/APRIL va retinoik kislota javob sharoitini o‘zgartiradi; ularning hech biri najasdagi har qanday IgA ortishini o‘z-o‘zidan sifatli himoyaga aylantirmaydi.
Mahalliy hujayralar A vitaminidan hosil qiladigan retinoik kislota ichakka yo‘nalishni dasturlashga yordam beradi. α4β7 integrin endotelial MAdCAM-1 bilan ta’sirlashadi; CCR9/CCL25 ingichka ichak uchun ayniqsa muhim, CCR10/CCL28 esa boshqa shilliq joylar va ichak qismlariga taqsimlanishda qatnashadi. Qondan chiqqan plazmoblastlar IgA ajratuvchi hujayralarga yetiladi. Yo‘nalish o‘qi «A vitamini → IgA» dan murakkabroq: A vitamini tanqisligi uni buzadi, ammo tanqislik bo‘lmagan odamlarda qo‘shimcha yuqori dozalar klinik himoyani universal ravishda oshirishi ko‘rsatilmagan.
4. Immun chetlatish mikrobiotani steril qilmaydi
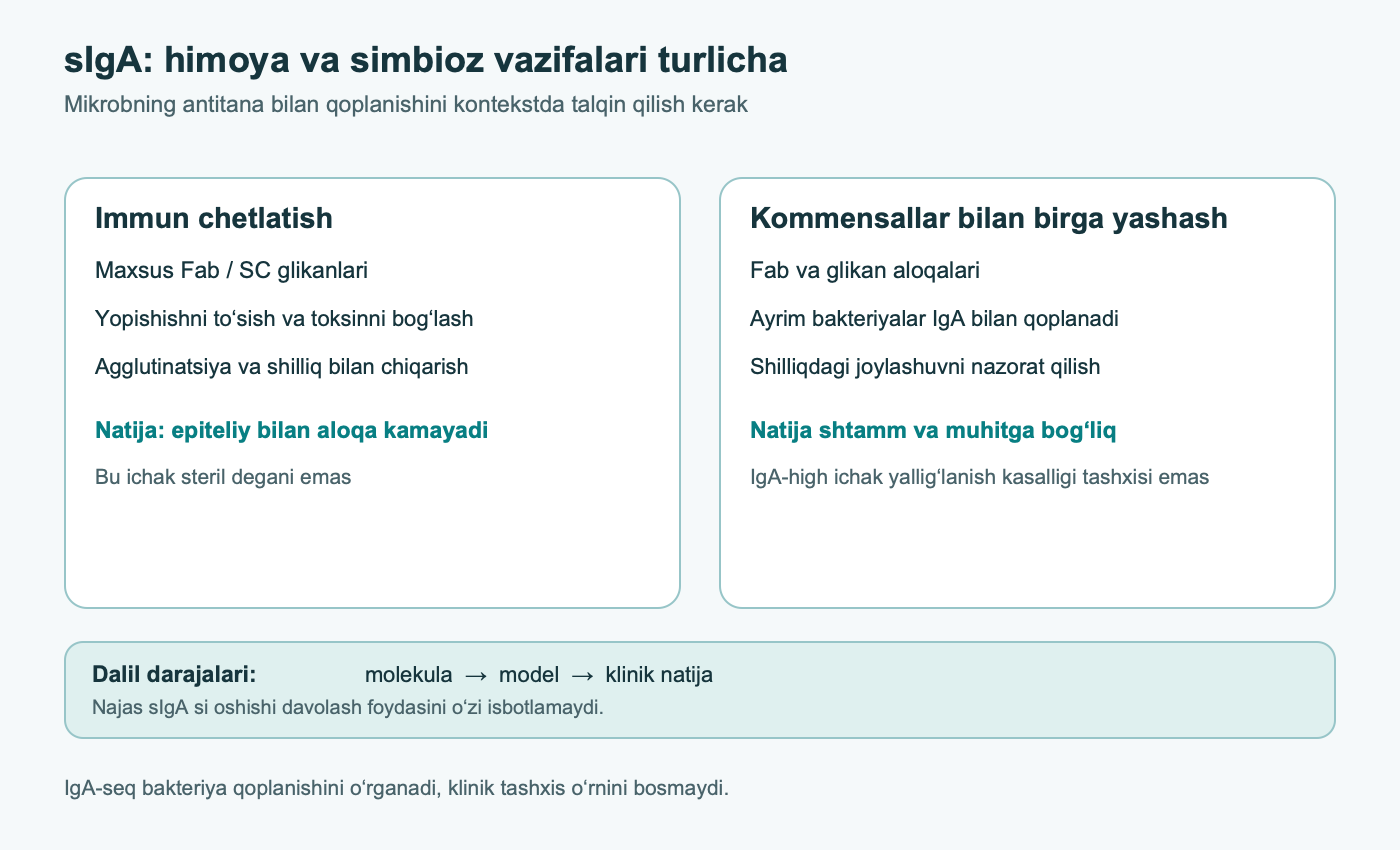
Antitananing Fab qismi mikrob adgezinini yoki toksinning retseptorga bog‘lanish qismini to‘sishi mumkin. Ko‘p valentli sIgA qo‘shni hujayralardagi takroriy epitoplarga bog‘lanib, agregatlar hosil qiladi; Moor va hamkasblari aniq modelda bo‘linayotgan bakteriyalarning «zanjirlanishi»ni ham ko‘rsatgan. Bunday guruhlar epiteliy yuzasiga yetishi qiyinroq va shilliq hamda ichak oqimi bilan chiqib ketishi mumkin. SC va IgA glikanlari ayrim mikroblarni shilliq muhitda qo‘shimcha ushlab qoladi. Biroq ichki va tashqi shilliq qatlamlarning tuzilishi, sterilligi va yangilanish tezligi ingichka va yo‘g‘on ichakda farq qiladi va yallig‘lanishda o‘zgaradi. sIgA istalmagan aloqani kamaytiradi, ammo qoplangan barcha bakteriyalarni yo‘q qilmaydi.
Vabo toksiniga qarshi antitanalar uning B-subbirligi GM1 ga bog‘lanishiga xalaqit berishi mumkin; boshqa toksinlarga ta’sir epitope va mahalliy konsentratsiyaga bog‘liq. LPS ni tanish lipid A ni kimyoviy zararsizlantirish emas. sIgA bakterial tuzilmalarni ichak bo‘shlig‘ida ushlab, to‘qimaga yetishini kamaytirishi mumkin; LPS defosforillanishi esa, masalan ichak ishqoriy fosfatazasi bilan kechadigan boshqa reaksiyadir. Har qanday sIgA LBP/CD14/TLR4 signalini butunlay to‘sadi deyish asossiz darajada qat’iy.
Transsitoz paytidagi hujayra ichidagi neytrallash ayrim antigen-spetsifik IgA va virus modellari, jumladan rotavirusda ko‘rsatilgan. Bu avvalgi qo‘lyozmada tilga olingan har bir virus bitta endosoma qismida ko‘payib, shu yo‘l bilan chiqariladi degani emas. Xususiy qatlam tomonda dIgA ga birikkan antigen ham bo‘shliqqa qarab olib o‘tilishi mumkin; bu «immun ekskretsiya» deyiladi. Uning ahamiyati antitananing antigenga yetishi va epiteliy butunligiga bog‘liq; u qondagi har qanday allergenni kafolatli tozalaydigan nasos emas.
IgA odatda C1q orqali komplementning klassik yo‘lini IgG ga qaraganda sustroq faollashtiradi; bu doimiy mikrob yashaydigan shilliq qavatga mos. Ammo «yallig‘lanishsiz» degani «effektor vazifasi yo‘q» degani emas. Miyeloid FcαRI/CD89 asosan to‘siqning to‘qima tomonida joylashadi. Monomer va ko‘p valentli IgA komplekslari retseptorga bog‘langan ITAM signallarini turlicha tashkil qilishi mumkin: ayrim modellarda kuchsiz faollashuv SHP-1 ni jalb qilib yallig‘lanishni cheklaydi, zich o‘zaro bog‘lanish esa Syk va effektor hujayralarini faollashtiradi. Bu ichak bo‘shlig‘idagi chetlatishdan alohida jarayon va immun komplekslar to‘qimaga kirganda ayniqsa muhim.
Bog‘lanish va funksional neytrallash ham boshqa-boshqa. ELISA antitananing tozalangan antigenga tegishini tasdiqlaydi, tirik epiteliyda infeksiya to‘silishini emas. Toksin uchun antitana retseptorga birikishni va zaharli ta’sirni to‘xtatishini; bakteriya uchun yopishish, invaziya va tarqalishni; virus uchun siklning tanlangan bosqichidagi yuqumlilikni o‘lchash kerak. Tozalangan LPS ga yuqori avidlik kompleks to‘qimaga kirganidan so‘ng TLR4 ni o‘chirish bilan teng emas. Tashish yo‘li umumiy bo‘lsa ham, turli infeksiyalarga turli Fab xususiyliklari kerak bo‘lishi mumkin.
5. Kommensallar qoplanishi: aloqa belgisi, «patogen» yorlig‘i emas
Bakteriyalarning IgA bilan qoplanishini oqim sitometriyasi orqali o‘lchash, so‘ng fraksiyalarni ajratib, tarkibini aniqlash mumkin (IgA-seq). Palm va hamkasblari yallig‘lanishli ichak kasalligi bo‘lgan odamlardan ajratilgan, IgA bilan kuchli qoplangan bakteriyalar steril sichqonlarga ko‘chirilgandan so‘ng kolitga moyillikni oshirganini topdilar. Bu kuchli funksional tajriba, ammo har bir bemorda har qanday IgA-high takson «aybdor» degan diagnostik qoida emas. Natija mezbon holati, mikrob aralashmasi, saralash usuli va modelga bog‘liq. Yuqori qoplama faol immun nazorat, shilliqqa yaqinlik yoki yallig‘lanishda antigen ochilishini anglatishi mumkin; taksonning barcha a’zolari bir xil virulent degani emas.
Bunker va hamkasblari patobiontlarni cheklaydigan polireaktiv IgA ni tasvirlagan, Donaldson va hamkasblari esa mikrobiotaning ayrim vakillari shilliq qavatni kolonizatsiya qilishda IgA dan foydalanishini ko‘rsatgan. Shuning uchun «bakteriyada IgA kam bo‘lsa yaxshi» har doim to‘g‘ri emas, «ko‘p» ham har doim kasallikni bildirmaydi. Aloqa Fab ning sirt antigenlarini tanishi, SC glikanlari, bakteriya o‘sishi va shilliq xususiyatlariga bog‘liq bo‘lishi mumkin. Bacteroides yoki Akkermansia uchun aniq shtamm va antitanani o‘rganmasdan har bir mexanizm ulushini belgilab bo‘lmaydi. Avvalgi qo‘lyozmadagi IgA barcha tilga olingan kommensallarda flagellin, invazin va endotoksin sintezini bostiradi degan umumiy fikr bitta tajribalar majmuasi bilan tasdiqlanmagan.
Mikrobni tashqi shilliq qatlamda ushlab turish zich biofilmning nazoratsiz o‘sishidan farq qiladi. Sog‘lom yo‘g‘on ichakda mikroblar tashqi MUC2 qatlamiga ta’sir qiladi; ichki qatlam tuzilishi turlar orasida farq qiladi va kolitda buziladi. Najasdagi qoplangan bakteriyalar ulushi ularning ichak devori yaqinidagi fazoviy taqsimlanishini ko‘rsatmaydi. Funksional savol — muayyan antitana ma’lum jamoada invaziya, patologik yallig‘lanish yoki mikrob tarqalishini kamaytiradimi.
6. IgA tanqisligi, yallig‘lanish va kasallik: turli klinik savollar
Selektiv IgA tanqisligi tegishli yoshda IgG va IgM normal bo‘lib, zardob IgA doimiy pastligi bilan belgilanadi; to‘rt yoshdan kattalarda keng ishlatiladigan mezon 0,07 g/L dan past. Tashxis uchun klinik holat va ikkilamchi sabablarni chiqarib tashlash zarur. U bitta najas sIgA natijasiga qarab qo‘yilmaydi. Bunday immun fenotipli ko‘pchilikda og‘ir alomatlar bo‘lmaydi; ayrimlarda nafas yo‘li yoki oshqozon-ichak infeksiyalari, autoimmun holatlar yoki allergik kasalliklar uchraydi. J-zanjirli sekretor IgM pIgR orqali qisman o‘rnini bosishi mumkin, ammo bu bemorlarda farq qiladi. HLA va B-hujayra boshqaruvchi genlar variantlari moyillik tug‘diradi, biroq TACI nuqsoni hammani tavsiflamaydi. IgA tanqisligida seliakiya gumon qilinsa, faqat IgA ga tayanmaydigan testlar muhim. Ayrim odamlarda qon mahsulotlariga nojo‘ya reaksiya bo‘lishi mumkin, ammo hammada anafilaksiya muqarrar emas.
Yallig‘lanishli ichak kasalligida epiteliy miqdori, pIgR ifodalanishi, antitana tarkibi va oqimi, o‘tkazuvchanlik va mikrob yuki bir vaqtda o‘zgaradi. Ayrim sharoitlarda sitokinlar PIGR ni kuchaytiradi; boshqa vaziyatlarda og‘ir epiteliy shikasti samarali transportni kamaytirishi mumkin. Surunkali ichak yallig‘lanishi doim pIgR ni 60–80% pasaytirib, sIgA ni deyarli to‘xtatadi degan fikr yarali kolit va Kron kasalligiga umumlashtirilmaydi. Biopsiyadagi hujayra tarkibi va namuna olingan joy mRNK darajasiga kuchli ta’sir qiladi. IgA bilan bakteriyalar qoplanishi oshgan holda to‘siq shikastlangan bo‘lishi mumkin. Mexanizmni o‘rganish uchun bitta marker emas, to‘qima, ichak bo‘shlig‘i va klinik faollikni juftlab o‘lchash kerak.
IgA mikrob bilan aloqani cheklashga yordam beradi, ammo sIgA tanqisligi ingichka ichak bakteriyalarining haddan tashqari ko‘payishiga (SIBO) na zarur, na yetarli sababdir. Ichak harakati, anatomiya, kislotalilik, dorilar, safro va ovqatlanish ham ta’sir qiladi. Aspirat soni va nafas testlari usulga bog‘liq; universal KOE chegarasini e’lon qilib, past najas IgA dan «tizimli endotoksemiya» chiqarib bo‘lmaydi. Mezenterial tugunlarga bakterial translokatsiya boshqa dalilga ega alohida hodisa, ayniqsa og‘ir shikastlanish modellarida.
sIgA natijasini talqin qilishda namuna turini hisobga olish kerak. So‘lak, o‘n ikki barmoq ichak aspirati, najas va to‘qima biopsiyasi turli a’zolar, tranzit va suyultirish usullarini aks ettiradi. Suvli najas va yallig‘lanish ekssudati sekretsiya o‘zgarmasa ham bir gramm namuna konsentratsiyasini o‘zgartiradi. Umumiy IgA antigen xususiyligi, polimerlik, SC tarkibi yoki muayyan shtammga bog‘lanish qobiliyatini ko‘rsatmaydi. Vaqt bo‘yicha taqqoslashda bir xil laboratoriya usuli va infeksiya holati, dori hamda namuna olingan vaqtni hisobga olish muhim. Qaytalanuvchi og‘ir infeksiyalarda klinitsist boshqa immunoglobulinlar va funksional javoblarni ham ko‘radi; tijoriy «sIgA past» natijasi buni almashtirmasligi kerak.
IgA nefropatiyasi galaktozasi kamaygan IgA1, o‘zgargan O-glikozillangan bo‘g‘imga qarshi autoantitanalar va mezangiyga cho‘kadigan aylanma komplekslar bilan bog‘liq. Bu tizimli, ko‘p bosqichli kasallik; uni najas sIgA pastligi bilan tushuntirib yoki avtomatik ravishda ichak plazmatik hujayralarining noto‘g‘ri yo‘nalishiga bog‘lab bo‘lmaydi. Qo‘shimcha bilan umumiy sIgA ni oshirish isbotlangan davolash emas. Stress, uyqu, ovqatlanish va immun ko‘rsatkichlar o‘rtasidagi aloqalarni ham vaqt, boshlang‘ich salomatlik va namuna turiga qarab baholash lozim. Kortizol PIGR ni doim bevosita bostiradi va hammada sekretsiyani 50–70% tushiradi degan gap klinik qoida sifatida tasdiqlanmagan.
O‘lchov
Nimani ko‘rsatishi mumkin
Nimani isbotlamaydi
Zardob IgA, IgG va IgM
Tizimli immunoglobulin fenotipini baholashga yordam beradi
pIgR orqali transport tezligini alohida o‘lchamaydi
Najas yoki sekret sIgA
Muayyan namunadagi antitana miqdorini
Universal «zaif to‘siq» tashxisini belgilamaydi
PIGR mRNK yoki to‘qima bo‘yog‘i
Tanlangan joy va holatdagi ifodalanishni
Transsitoz tugallanganini kafolatlamaydi
IgA-seq
Ajratilgan bakteriyalar qoplanishi va tarkibini
Odamda har bir takson sabab ekanini isbotlamaydi
Infeksiya, endoskopiya, klinik kechish
Bemor uchun muhim natijalarni
sIgA o‘qining qaysi bosqichi o‘zgarganini avtomatik ko‘rsatmaydi
7. Ovqatlanish, mikrob preparatlari va passiv antitanalar
Oziq tolalar fermentatsiyasi atsetat, propionat va butirat hosil qiladi. Bu qisqa zanjirli yog‘ kislotalari FFAR2/FFAR3 va HCAR2 retseptorlari, energiya almashinuvi hamda giston deatsetilazalari orqali ta’sir qilishi mumkin. Sichqon va hujayra tajribalarida atsetat mikrobiotaga qarshi IgA javobini kuchaytirgan, butirat esa shilliq IgA hosil bo‘lishiga ta’sir qilgan; pIgR ifodalanishi HT-29 epiteliy hujayralarida alohida o‘rganilgan. Bitta kislotaning B-hujayraga ta’siri va fermentatsiya aralashmasining epiteliyga ta’siri turli tajribalardir. Bu ishlar PIGR aniq 2,5–4 marta oshadi yoki IgA tanqisligini davolaydigan inulin dozasi borligini ko‘rsatmaydi. Javob boshlang‘ich mikrobiota, tolaga chidamlilik, fermentatsiya joyi va kasallikka bog‘liq.
Probiotik natijalari ham shtamm va yakuniy ko‘rsatkichga xos. Buts va hamkasblari Saccharomyces boulardii berilganidan so‘ng kalamush bolalari ingichka ichagida sIgA va SC sekretsiyasi ortganini ko‘rsatgan; bu yallig‘lanishli ichak kasalligi bo‘lgan kattalardagi platsebo-nazoratli tadqiqot emas va odamlarda 7–10 kunda najas sIgA si 40–65% oshadi deb va’da qilishga asos bermaydi. Rotavirus diareyasi bo‘lgan bolalar va Kron kasalligida Lactobacillus rhamnosus GG tadqiqotlari turli guruhlar hamda immun natijalarini o‘lchagan. Antitana oshganini kasallik kamayishidan farqlash kerak; turli shtammlar natijalarini bitta «sIgA dozasi»ga birlashtirib bo‘lmaydi. Immuniteti susaygan odamlarda tirik preparatlar xavfsizligini alohida baholash muhim. Probiotiklar xavfsizligi haqidagi maqolaga qarang.
A vitamini va uning metaboliti retinoik kislota yo‘nalish hamda IgA javobi yetilishida ishtirok etadi; ovqatdagi tanqislik shilliq immunitetiga xalaqit berishi mumkin. D vitamini va rux ko‘plab hujayralar va to‘siq jarayonlariga ta’sir qiladi. Ammo tanqislik bo‘lmasa, yuqori doza infeksiyadan himoyani kuchaytiradi degani emas. PIGR da odam uchun majburiy VDRE borligi, har bir plazmoblast bitta retseptorga mutlaq bog‘liqligi yoki A vitamini tanqisligi ichak sIgA sini «80% dan ko‘proq» tushirishi haqidagi gaplar universal tavsiyaga aylanmasligi kerak. Aniqlangan tanqislikni tuzatish immun tanqisligini davolashdan alohida masala.
Sigir og‘iz suti asosan sigir immunoglobulinlarini, ayniqsa IgG ni o‘z ichiga oladi; tarkibi tug‘ishdan keyingi vaqt, qayta ishlash va hayvonni immunizatsiya qilishga bog‘liq. Bu xususiy qatlamda ishlab chiqariladigan inson dIgA si emas va og‘iz orqali qabul qilish IgA ning genetik yoki hujayraviy tanqisligini tuzatmaydi. Otto va hamkasblarining ikkita ikki tomonlama ko‘r, platsebo-nazoratli sinovida ETEC shtammlari bilan immunizatsiya qilingan sigirlardan olingan giperimmun og‘iz suti tabletkalarini 90 nafar sog‘lom ko‘ngilli O78 ETEC bilan tajribaviy zararlashdan oldin olgan. Rejimlardan birida og‘iz suti oqsili 400 mg dan bufer bilan kuniga uch mahal berilgan; taqqoslash guruhlari doza va bufer bo‘yicha farq qilgan. Ayrim guruhlarda diareyadan himoya yuqori bo‘lgan, ammo bu bitta shtamm va maxsus antitanalar bilan nazoratli zararlash edi. Oddiy og‘iz suti istalgan dozada sayohatchilar diareyasining barchasini oldini oladi yoki yallig‘lanishli ichak kasalligini davolaydi degani emas. Bolalardagi rotavirus diareyasi tadqiqotlari ham maxsus immun material va boshqa natijani ko‘rgan. Oziq oqsili parchalanishi va nojo‘ya reaksiya keltirishi mumkin; bu ma’lumotlar keng ko‘lamli «sIgA o‘rnini bosish davosi»ni asoslamaydi.
8. Usul va sharh chegaralari
Bu ichak sIgA si bo‘yicha tuzilmaviy, hujayraviy, hayvoniy va cheklangan inson dalillarining bayoniy sharhidir. 2026-yil 9-oktabrda IgA tuzilishi, S. boulardii ta’siri va giperimmun og‘iz suti sinovlari haqidagi bahsli da’volarga tegishli birlamchi yozuvlar bevosita tekshirildi. IgA bilan qoplanish tadqiqotidagi inson namunalari va mikrobiotani sichqonlarga ko‘chirish tajribasi ham solishtirildi. Bu har bir keltirilgan ish bo‘yicha to‘liq tizimli qidiruv, meta-tahlil yoki xatolik xavfini rasmiy baholash emas.
Molekula tuzilishi ehtimoliy mexanizmni tushuntiradi, hujayra va hayvon modellari uni belgilangan sharoitlarda sinaydi, inson tajribasi esa faqat o‘lchangan klinik savolga javob beradi. Mavjud ishlar «oqib turuvchi ichak» tashxisi uchun universal najas sIgA chegarasini belgilamaydi va qo‘shimcha bilan bitta tahlil natijasini oshirish yallig‘lanishli ichak kasalligi, SIBO yoki IgA nefropatiyasi kechishini yaxshilashini ko‘rsatmaydi. Alohida natijani alomatlar, yosh, infeksiyalar, davolash va namuna olish usuli bilan birga talqin qilish kerak.
9. Xulosa
«Plazmatik hujayra — J-zanjirli dIgA — epiteliy pIgR — sekretor komponent — ichak bo‘shlig‘i» o‘qi shilliq himoya bir necha qismlarga bog‘liqligini tushuntiradi. sIgA patogenlarni chetlatishi, ayrim toksinlarni neytrallashi va kommensallarning joylashuvini majburiy yallig‘lanishsiz boshqarishga yordam berishi mumkin. Mikrobiota va shilliq o‘zgarganda shu antitanalar faol aloqa belgisi bo‘lishi mumkin; o‘z-o‘zicha salomatlik yoki kasallikni anglatmaydi. Klinik talqin immun tanqisligi, yallig‘lanishli kasallik va muayyan aralashuv natijasini bitta sIgA soniga jamlamay, alohida baholaganda ishonchliroq bo‘ladi.
Tez-tez beriladigan savollar
Sekretor IgA nima?
Odatda u epiteliy pIgR idan o‘tgan va ajralgan hujayradan tashqari sekretor komponentni saqlagan polimer IgA dir. U shilliq sekretlarda faoliyat ko‘rsatadi.
Sekretor IgA zardob IgA sidan nimasi bilan farq qiladi?
Zardob IgA si ko‘pincha monomer; sIgA odatda J-zanjir va sekretor komponentni o‘z ichiga oladi. Ularning konsentratsiyasi va klinik ma’nosini tenglashtirib bo‘lmaydi.
Najas sIgA si pastligi immun tanqisligini isbotlaydimi?
Yo‘q. Selektiv tanqislik yosh va ehtimoliy sabablarni hisobga olib, zardob IgA, IgG va IgM bilan baholanadi. Najas natijasiga yig‘ish, suyulish, tranzit va yallig‘lanish ta’sir qiladi.
Nega IgA foydali bakteriyalarni qoplaydi?
Qoplanish epiteliyga yetishni cheklashi va ayrim tizimlarda shilliq qavat kolonizatsiyasini qo‘llashi mumkin. Bu bakteriyani shartta o‘ldirmaydi va patogenligini anglatmaydi.
Probiotik yoki tola sIgA ni oshira oladimi?
Ayrim shtamm va metabolitlar maxsus hujayra, hayvon yoki cheklangan inson tadqiqotlarida immun ko‘rsatkichlarini o‘zgartirdi. Past najas natijasini davolash uchun universal doza belgilanmagan.
Sigir og‘iz suti inson sIgA sini almashtiradimi?
Yo‘q. ETEC ga qarshi maxsus giperimmun og‘iz suti sinovlari nazoratli zararlashda passiv antitanalarni o‘rgangan; oddiy og‘iz suti inson IgA tanqisligini tuzatmaydi.
U immunitet-mikrobiota aloqasini o‘rganishga yordam beradi, ammo klinik tashxisni almashtirmaydi va bir bemordagi sababchi bakteriyani avtomatik aniqlamaydi.