
Спеціалізовані про-резолюційні медіатори: біохімія резолвінів, протектинів і марезинів
Ферментативні шляхи EPA/DHA, стереохімія, рецептори й ефероцитоз. Аналітичні межі SPM та результати невеликих робіт, REDUCE-IT, STRENGTH і GAUDI.
Ферментативні шляхи EPA/DHA, стереохімія, рецептори й ефероцитоз. Аналітичні межі SPM та результати невеликих робіт, REDUCE-IT, STRENGTH і GAUDI.
Запалення завершується не лише тому, що зникає подразник. Для відновлення тканини потрібно обмежити подальший приплив нейтрофілів, прибрати загиблі клітини, переробити їхній вміст і повернути епітелію бар’єрну функцію. Ці завдання потребують рецепторів, ферментів, енергії та узгодженої роботи кількох клітинних популяцій. Ліпідні сигнальні молекули, об’єднані назвою «спеціалізовані про-резолюційні медіатори», або SPM, стали широко досліджуваними учасниками цього процесу.
Резолвіни, протектини й марезини утворюються описаними ферментативними шляхами з довголанцюгових омега-3 жирних кислот; ліпоксини пов’язані з арахідоновою кислотою. Хімічно визначені молекули виявляють активність у клітинних і тваринних моделях. Проте біологічна концепція, виявлення ендогенної речовини, дія введеного аналога й ефективність пероральної добавки — різні рівні доказів. Особливо обережного тлумачення потребують дуже низькі концентрації SPM у крові людини та обіцянки «обійти дефект розв’язання запалення» готовою риб’ячою олією.
Під час гострої відповіді судинна проникність і хемотаксичні сигнали доставляють клітини до ушкодження. Нейтрофіли використовують інтегрини, перебудовують актиновий цитоскелет, фагоцитують і виділяють активні форми кисню. Це корисно в обмеженому місці й часі, але тривала присутність активованих гранулоцитів ушкоджує навколишню тканину. Припинення рекрутування та очищення вогнища становлять окрему частину захисної відповіді.
У класичних моделях описано перемикання класів ліпідних медіаторів: початкове переважання простагландинів і лейкотрієнів змінюється іншим профілем оксиліпінів. PGE2 і PGD2 можуть готувати таку зміну через експресію ліпоксигеназ і сигнали циклічного AMP. Але це не вимикач синтезу всіх прозапальних молекул. Різні клітини зберігають різні ферментативні програми, а судинні, імунні й репаративні процеси перекриваються.
Універсального розкладу «запалення до 24 годин, розв’язання після 24 годин» немає. Можна визначити час максимального числа нейтрофілів та інтервал подальшого зменшення їхньої кількості, але це характеристика конкретної моделі. Хронічна інфекція, повторне ушкодження, гіпоксія й фіброз змінюють динаміку. Часові інтервали мишачого перитоніту не можна переносити на людський артрит або атеросклероз.
SPM не охоплюють усю біологію розв’язання. Анексин A1, аденозин, цитокіни, нервові сигнали й рецептори розпізнавання загиблих клітин утворюють мережу. Активне завершення запалення не означає, що кожна його невдача спричинена нестачею одного резолвіну. Можуть зберігатися стимул, дефект ефероцитозу, недоступність субстрату або нечутливість клітини.
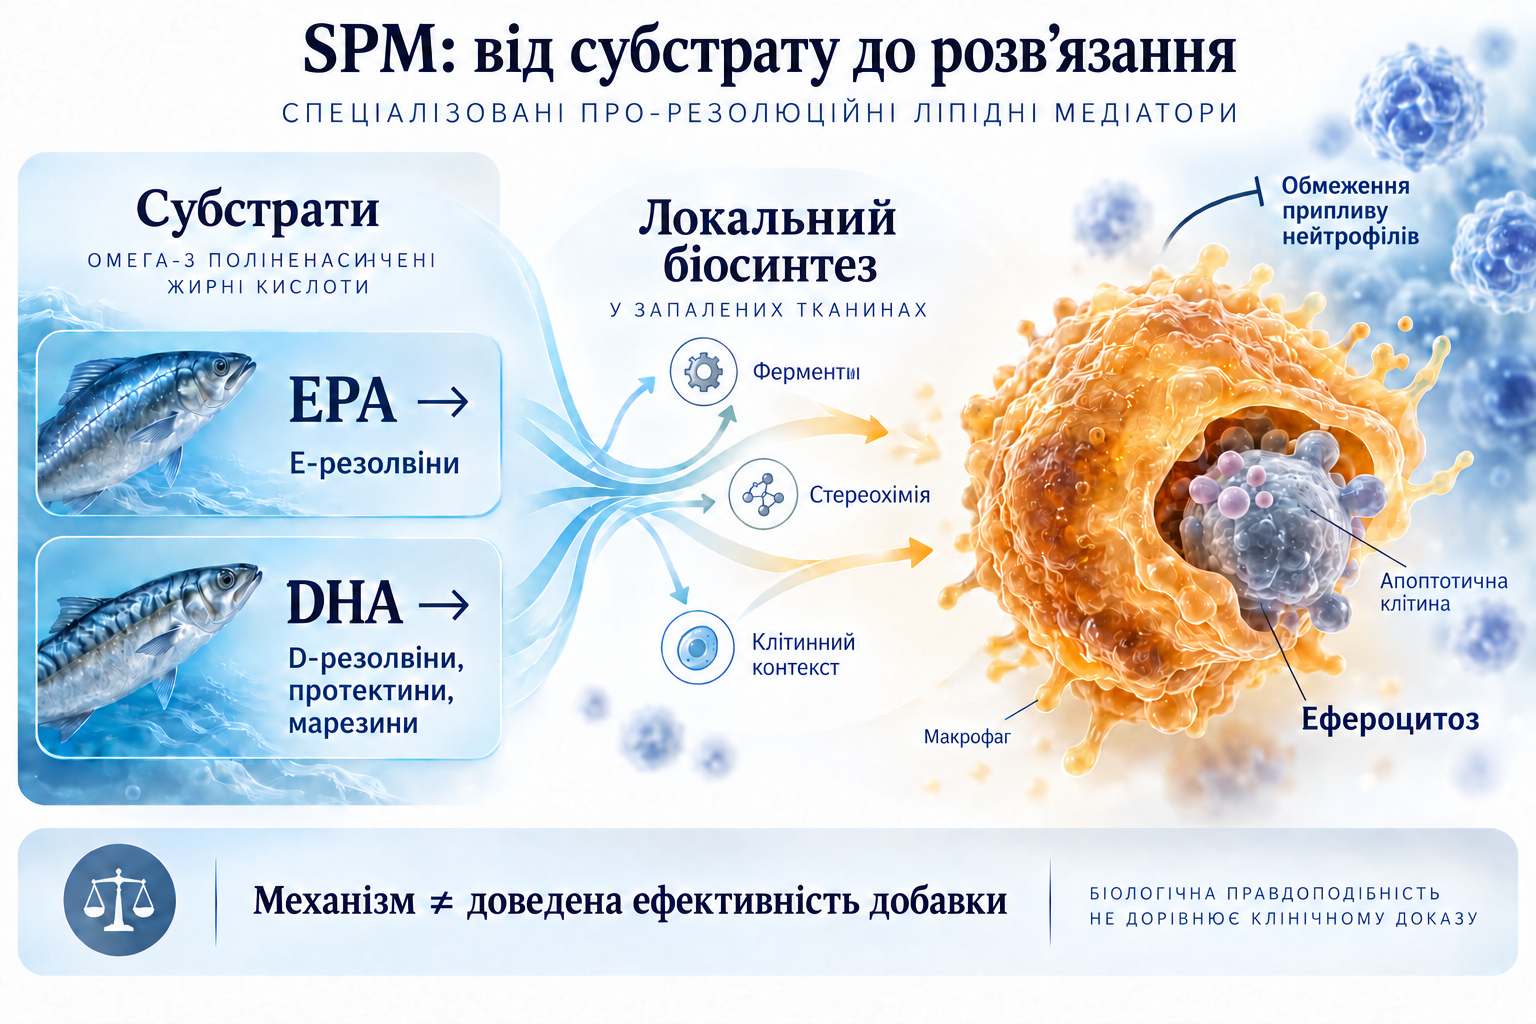
EPA має 20 атомів вуглецю й п’ять подвійних зв’язків, DHA — 22 атоми й шість зв’язків. Їхній мембранний пул зазвичай входить до складних ліпідів. Фосфоліпаза A2 звільняє кислоту, яка може стати субстратом оксигенази, знову естерифікуватися або окиснюватися. Тому вміст EPA в еритроцитах не дорівнює швидкості утворення RvE1 у запаленій тканині.
Ліпоксигенази — залізовмісні ферменти. Вони віднімають водень від поліненасиченого субстрату й забезпечують приєднання молекулярного кисню з утворенням гідропероксиду. Важливі положення кисню, конфігурація хірального центру й геометрія подвійних зв’язків. 17S-HpDHA та 17S-HDHA позначають відповідно гідропероксид і відновлений гідроксипродукт; їх не можна без пояснення підміняти.
Пероксидазні системи можуть відновлювати ліпідний гідропероксид до гідроксильної групи. Глутатіонзалежна реакція потребує відновленого глутатіону та подальшого відновлення окисненого глутатіону за участю NADPH. Неферментативне перекисне окиснення також дає оксигеновані ліпіди, переважно складнішу суміш ізомерів. Поява «гідрокси-DHA» сама по собі не доводить синтез певного активного SPM.
Локалізація впливає на доступність субстрату. 5-ліпоксигеназа може переміщуватися до ядерної оболонки; FLAP організовує взаємодію з жирнокислотним субстратом. Кальцій, фосфорилювання, редокс-стан і сусідні клітини змінюють результат. Трансклітинний біосинтез означає використання іншою клітиною проміжного продукту першої, а не обов’язкове перебігання всіх реакцій в одному вільному цитозолі.
Цитохроми P450 належать до іншої системи: монооксигеназній реакції потрібні перенесення електронів, зазвичай від NADPH через редуктазу, і кисень. COX-2 має циклооксигеназну й пероксидазну функції. Ацетилювання аспірином змінює її продукти й у певних моделях сприяє утворенню епімерів. Це не доводить користі аспірину для кожної людини заради SPM.
Класичний шлях RvE1 починається з оксигенації EPA при C18 та утворення 18-HEPE. Подальша 5-ліпоксигеназна обробка й епоксидний проміжний етап дають тригідроксильований продукт. Структура RvE1 — 5S,12R,18R-тригідрокси-6Z,8E,10E,14Z,16E-EPA. Це конкретна молекула, а не будь-яка EPA з трьома гідроксильними групами.
У роботі Arita та співавторів хімічний синтез дозволив зіставити фізичні властивості й біологічні ефекти синтетичного RvE1 з досліджуваним ліпідом. Це сильніше за ідентифікацію за однією масою й одним фрагментом. Для RvE2 описано дигідроксильовану гілку, а E-серія містить продукти з іншими положеннями оксигенації. RvE3 і RvE4 не можна зводити до однієї реакції або автоматично приписувати їм фармакологію RvE1.
R- і S-конфігурації при C18 залежать від ферменту й умов. Описано аспіринзалежні й незалежні шляхи, але твердження про обов’язково еквімолярну суміш 18R/18S-HEPE від нативної COX-2 надмірне. Стереохімічний склад треба вимірювати, особливо в комерційних концентратах. Сумарний 18-HEPE без розділення ізомерів не характеризує продукт повністю.
18-HEPE корисний як маркер гілки метаболізму EPA. Проте він може накопичуватися саме через обмеження наступної реакції. Зростання після олії не доводить пропорційного утворення RvE1, активації рецептора або стабілізації бляшки. Кожна наступна ланка потребує окремого вимірювання.
Вихідна точка D-серії — утворення 17S-гідроперокси-DHA ліпоксигеназним шляхом. Наступні оксигенації й перетворення епоксидів дають різні продукти. RvD1 має конфігурації 7S,8R,17S, а RvD2 — 7S,16R,17S. Положення третьої групи змінює форму молекули й фармакологічну поведінку.
RvD3 і RvD4 пов’язані з іншою гілкою, а RvD5 і RvD6 є дигідроксильованими сполуками. RvD1–RvD6 — сімейство, а не шість взаємозамінних назв однієї активності. Лабільні епоксиди при неферментативному розкритті можуть давати близькі маси, але іншу конфігурацію й дію.
Аспірин-тригеровані D-резолвіни мають іншу конфігурацію C17, зазвичай 17R. Це може змінити чутливість до окремих шляхів інактивації. Однакове подовження напіввиведення або спільний клінічний ефект не можна приписувати всім епімерам. Стабільність кожного аналога встановлюють у конкретній системі.
17-HDHA часто вимірюють як маркер оксигенації DHA. Він не дорівнює RvD1 і не замінює гідропероксид у всіх реакціях. Фраза «17-HDHA перетворюється на будь-який D-резолвін за один крок» приховує додаткові оксигенації, епоксидні перетворення й стереоспецифічне розкриття. Спрощена етикетка не спрощує клітинну біохімію.
Протектин D1 і нейропротектин D1 — одна структурно визначена молекула в різних тканинних контекстах. Для неї описано 10R,17S-конфігурацію та спряжену триєнову систему. Шлях включає оксигенацію DHA й епоксидний інтермедіат. Подібний дигідроксипродукт не можна автоматично називати NPD1: protectin DX та інші ізомери потрібно розрізняти.
NPD1 вивчають у виживанні клітин сітківки, реакціях нервової тканини й функції макрофагів. Спряжені зв’язки мають характерні спектральні властивості, що доповнюють мас-спектрометрію. Нейропротекція введеної речовини в моделі не є доказом профілактики хвороби Альцгеймера добавкою.
Марезиновий шлях включає оксигенацію DHA при C14 до гідропероксиду, потім 13,14-епоксид і стереоспецифічне утворення MaR1 з конфігурацією 7R,14S. Дослідження макрофагів і людської 12-ліпоксигенази розглядають його як окрему гілку. Видова й клітинна специфічність важливі: мишачу «12/15-LOX» не можна механічно прирівнювати до людських ізоформ.
MaR2 і кон’югати MCTR розширюють сімейство. Пептидоліпідні кон’югати в репарації передбачають приєднання глутатіону й послідовну переробку пептидної частини; споріднені RCTR та PCTR описано для резолвінів і протектинів. Це окремі хімічні продукти, а не просто «марезин у капсулі». Вони пов’язують сигналізацію з регенерацією, але не встановлюють універсального людського протоколу.
n-3 DPA має 22 атоми вуглецю й п’ять подвійних зв’язків та також може давати про-резолюційні продукти. Схожі назви не роблять їх тотожними DHA-похідним. Відмінності зв’язків впливають на ферментативні реакції, хроматографію та спектри. У сумішах EPA, DHA і DPA треба враховувати кожен субстрат.
Арахідонова кислота дає не лише прозапальні простагландини й лейкотрієни. Трансклітинні шляхи 5- і 12/15-ліпоксигеназ утворюють ліпоксини. Взаємодія нейтрофілів із тромбоцитами показує розподіл реакцій між клітинами. Аспірин-ацетильована COX-2 може давати 15R-продукти для аспірин-тригерованих ліпоксинових епімерів.
Тому поділ «омега-6 запальні, омега-3 протизапальні» недостатній. Результат визначають ферменти, стан клітини, час і рецептори. Повне витіснення арахідонової кислоти не є метою фізіологічного розв’язання. Організму потрібні різні сигнали, зокрема для початку нормального захисту.
Для RvE1 описано ChemR23/CMKLR1 і BLT1. Перший також розпізнає хемерин, другий бере участь у відповіді на LTB4; вони не є винятковою власністю резолвіну. Специфічне зв’язування RvE1 у мембранах людських нейтрофілів характеризувалося Kd 48,3 нМ. Це параметр досліду, а не універсальна лікувальна концентрація.
Для RvD1 часто вказують FPR2/ALX і GPR32, для RvD2 — GPR18. FPR2 розпізнає різні ліганди, а ефект залежить від контексту. Людська експресія GPR32 та відсутність прямого функціонального аналога в звичних мишачих моделях ускладнюють перенесення. Рецепторна карта — робоча гіпотеза, а не остаточний каталог.
У роботі Chiang MaR1 активував LGR6 у рекомбінантних системах; радіомічений ліганд, надекспресія й пригнічення гена доповнювали функціональні вимірювання. У людських і мишачих фагоцитах 0,01–10 нМ MaR1 посилювали фагоцитоз та ефероцитоз. Це діапазон дослідів, не обґрунтування пероральної дози. Для NPD1 запропоновано GPR37 на основі трансфікованих клітин і мишей без Gpr37.
GPCR-сигнали можуть включати G-білки, кальцій, ERK і PI3K–AKT. Однакова стрілка «рецептор → вимкнення NF-κB» спрощує картину. Ці шляхи регулюють також міграцію, виживання й поглинання; напрямок залежить від часу та стану клітини. Для встановлення рецептора потрібні відтворюване зв’язування, функціональна відповідь і зміна після генетичного чи фармакологічного втручання.
Залишаються суперечки щодо відтворюваності деяких призначень і фізіологічних концентрацій. Негативний результат однієї системи не скасовує всю біологію, але позитивний сигнал за штучно високої експресії не доводить дію в людській тканині. Розрив між хімічною активністю й ендогенною фізіологією — частина питання.
[[figure:resolution]]
У низці моделей резолвіни зменшують трансендотеліальну або трансепітеліальну міграцію. Можливі зміни інтегринів, відповіді на LTB4 й актинової поляризації. Це не параліч усієї рухливості. Нейтрофіл має зберігати реакцію на інфекцію; результат залежить від стимулу й концентрації.
NETs — позаклітинні структури хроматину й гранулярних білків. Вони можуть підтримувати захист, але й ушкодження та тромбозапалення. Окремі SPM змінюють NET-утворення в певних моделях. Не можна стверджувати, що кожен резолвін прямо пригнічує PAD4 або гарантує профілактику сепсису: потрібні конкретні молекула, модель і клінічний доказ.
Апоптотична клітина експонує фосфатидилсерин назовні. Gas6, протеїн S і TAM-рецептори, зокрема MerTK, допомагають її розпізнати. Активація перебудовує цитоскелет через малі GTPази й формує фагоцитарну чашу. Фагосома дозріває та взаємодіє з лізосомами; поглинання й перетравлення — різні етапи.
SPM можуть посилювати ефероцитоз, а успішне поглинання саме змінює ліпідні й цитокінові сигнали. Це зворотний зв’язок, а не одностороння команда. Неприбрані апоптотичні клітини зазнають вторинного некрозу й вивільняють ушкоджувальний вміст. Якість очищення важлива незалежно від початкового сигналу.
Ефероцитоз приносить макрофагу багато ліпідів, білків і нуклеїнових кислот. Лізосомні гідролази переробляють їх, а холестерин треба безпечно перерозподілити або вивести. LXR і PPAR, ABCA1/ABCG1 та ліпопротеїнові акцептори забезпечують адаптацію до навантаження. Енергетична або лізосомна недостатність порушує повторне поглинання навіть за зовнішнього сигналу.
Мітохондрії дають ATP і метаболічні сигнали. Гліколіз, цикл трикарбонових кислот та окиснення жирних кислот змінюються зі стимулом і киснем. Поділ на винятково гліколітичний запальний і винятково β-окиснювальний резолюційний макрофаг надмірно жорсткий. Тканинні стани численніші.
M1/M2 корисні для лабораторних умов, але не повністю описують клітину in vivo. CD206, CD163 або Arg1 окремо не доводять універсальної репарації, особливо при перенесенні мишачих маркерів на людину. Відновлення може перейти в фіброз. Ефероцитоз, цитокіни, метаболізм і тканинний результат вимірюють окремо.
SPM досліджують як регулятори нейроімунних взаємодій. Сигнали макрофагів можуть зменшувати сенситизацію ноцицепторів; описано вплив на TRPV1/TRPA1-пов’язані шляхи. Відсутність GPR37 продовжувала запальний біль у мишей, і фагоцитарна функція була одним із механізмів. Це не встановлене знеболювання у пацієнта.
Узагальнення «SPM сильніші за морфін і не мають побічних ефектів» некоректне. Моделі, способи введення та точки різні. Посилення мікробного кліренсу в окремих умовах не гарантує відсутності інфекційного ризику при тривалій терапії. Концепція імунорезольвенту потребує клінічної перевірки безпеки.
У кишечнику завершення запалення поєднується з відновленням щільних контактів і контролем мікробіоти. Кишкова лужна фосфатаза показує інший механізм — переробку фосфорильованих субстратів, зокрема ліпіду A. SPM працюють в іншій системі; спільна мета не робить механізми взаємозамінними.
Секреторний IgA обмежує контакт патогенів зі слизовою без обов’язкового руйнівного запалення. Бар’єр і розв’язання пов’язані, але виконують різні завдання. Потрібні контроль стимулу, імунне виключення, очищення й відновлення. Один сигнал не замінює решту.
При атеросклерозі дефект ефероцитозу накопичує загиблі пінисті клітини й збільшує некротичне ядро. Досліджують ліпідні співвідношення, розщеплення MerTK і введені медіатори. Це підґрунтя нових підходів. Але універсального людського діагностичного порога RvD1/LTB4 немає; значення залежить від тканини й аналізу.
Ревматоїдна синовія містить нейтрофіли, макрофаги й фібробластоподібні синовіоцити. RANKL сприяє остеокластогенезу, цитокіни підтримують ушкодження. RvD1 у культурі людських синовіоцитів може змінити p38, NF-κB або AKT, але це не рандомізоване лікування. З нього не отримують відсотків полегшення болю чи скасування НПЗП.
Подібні гіпотези розглядають при кишкових запальних хворобах, пародонтиті, метаболічних і нейродегенеративних порушеннях. Низький рівень може бути наслідком хвороби, фази, ліків або помилки; високий — компенсацією. «Дефіцит» є функціональним поняттям дослідження, не стандартним діагнозом за додатковою панеллю.
Надійний аналіз використовує рідинну хроматографію з тандемною мас-спектрометрією, автентичні й внутрішні стандарти. Важливі утримування, кілька діагностичних іонів, форма піка й розділення ізомерів. Валідують екстракцію, матрицю, перенесення й стабільність. Сигнал нижче межі кількісного визначення не дозволяє точну концентрацію.
Плазма, сироватка й стимульована культура — різні матриці. Згортання активує клітини та змінює оксиліпіни; затримка обробки, температура й зберігання також впливають. Розбіжності можуть походити з підготовки та аналіту, а не лише біології людей.
ELISA зручний, але близькі ліпіди можуть перехресно реагувати. Значення не дорівнює автоматично структурно підтвердженому RvD1. Висока чутливість не компенсує низьку специфічність. У дослідницьких панелей немає універсальних клінічних референсів для лікування за одним результатом.
Валідована робота підтвердила деякі SPM у стимульованих спільних культурах людських нейтрофілів і тромбоцитів, певно диференційованих макрофагах та мишачій селезінці. В інших системах специфічного утворення не було; також не спостерігали його в нестимульованих клітинах і стимульованій людській крові за цих умов. Це підтримує окремі шляхи й обмежує твердження про завжди вимірювані кров’яні рівні.
Негативне вимірювання не означає «SPM ніколи немає», позитивне — «завжди є лікувальна концентрація». Потрібні спільні критерії та зв’язок експозиції з функцією. Збільшення сумарного переліку оксиліпінів після добавки не доводить посиленого ендогенного розв’язання.
Ліпідні аутакоїди діють локально й швидко метаболізуються. Дегідрогенази окиснюють гідроксили з перенесенням на NAD+, редуктази змінюють подвійні зв’язки за відновних кофакторів, ω-окиснення змінює ланцюг. Ферменти й позиції різні для сімейств. Єдиного напіввиведення «5–15 хвилин для всіх» немає.
Для RvD1 описано оксо-продукти; не кожна зміна скасовує всю активність. Стереохімія й середовище визначають стабільність. Досліджують епімери, захищені похідні, ароматичні заміни й проліки. Стабілізація може змінити розподіл, селективність і токсичність, що потребує окремого вивчення.
Офтальмологічні аналоги RvE1, зокрема RX-10045, розглядали в клінічній розробці. Реєстрація або проведення випробування не доводить усіх заявлених очних результатів і не переноситься на добавку. Місцева, внутрішньоочна й системна експозиція різні. Ефективність потребує доступних результатів конкретної роботи.
EPA/DHA змінюють мембрани, ліпопротеїни, конкуренцію ферментів та інші оксиліпіни. Збагачені олії можуть містити 18-HEPE, 17-HDHA, 14-HDHA. «SPM complex» не повідомляє кількості готового RvE1/MaR1, ізомерів або підтвердженої стабільності.
Моногідроксипродукт не гарантовано обходить усі ферментативні обмеження. Потрібні наступні реакції й клітинний контекст; можливі естерифікація, катаболізм, інші тканини й альтернативні продукти. «Доставка за потребою» вимагає трасерів і тканинних вимірювань, а не лише плазменного маркера.
Травлення включає жовчне емульгування, гідроліз і захоплення ентероцитами. Довгі кислоти можуть знову входити до ліпідів і транспортуватися хіломікронами. Це загальна фізіологія, не доведений маршрут кожного продукту 17-HDHA. Вільна кислота, етиловий ефір, тригліцерид і фосфоліпід різні; біодоступність залежить від форми й їжі.
Універсальна фармакопейна стандартизація, оптична чистота й миттєва конверсія потребують продуктового доказу. Грами олії не дорівнюють мікрограмам гідроксипродуктів або дозі активного резолвіну. Ці величини потрібно розрізняти.
Подвійне сліпе плацебо-контрольоване дослідження Souza включало 22 здорових добровольців. Вивчали гостру відповідь на 1,5, 3 і 4,5 г збагаченої олії та профілі й лейкоцитарні функції через 2, 4, 6 і 24 години. Автори повідомили дозозалежне зростання виміряних медіаторів, найбільше на ранніх точках. Це біохімічні й клітинні результати, не профілактика інфаркту, лікування артриту чи тривала безпека.
Склад і короткий час важливі. Суміш кислот та гідроксипродуктів не дозволяє приписати все 18-HEPE. Позитивний ex vivo тест не встановлює клінічного поліпшення. Аналітичні суперечки треба враховувати при незалежному відтворенні.
Неконтрольована робота включала 23 дорослих з ожирінням, які отримували 2 г/добу 28–30 днів. Первинне питання — оксиліпінові зміни від вихідного рівня; виміряні RvE1 та n-3 DPA-похідний MaR1 зросли у 3,5 і 4,7 раза. D-резолвіни й кількість досліджених імунних клітин не зросли. Порівняння до/після обмежує причинність; мала вибірка й численні точки потребують поправок. Це не доводить лікування ожиріння, діабету або функціонального дефіциту.
Відкрита OMEGA-SPM-DOSE включала 10 здорових і 10 пацієнтів зі стабільною симптомною периферичною артеріальною хворобою. Послідовно давали емульсію 15, 30 і 60 мл/добу, відповідно 1,5, 3 і 6 г олії, по п’ять днів із дев’ятьма днями перерви. Первинна точка — сумарні виміряні плазменні SPM; повідомлено зростання медіаторів і фагоцитозу. Без осліплення й плацебо, за малої вибірки й послідовної дози висновки обмежені. Фагоцитоз не замінює ходьбу, ампутації, судинні події або якість життя. Потрібен визначений продукт і контрольована клінічна точка.
REDUCE-IT рандомізував 8179 пацієнтів на статинах із серцево-судинною хворобою або діабетом і ризиками. Тригліцериди становили 135–499 мг/дл, LDL — 41–100 мг/дл. Ікосапент етил, очищений етиловий ефір EPA, давали по 2 г двічі, разом 4 г/добу, проти плацебо. Медіана спостереження — 4,9 року.
Комбінована точка включала серцево-судинну смерть, нефатальні інфаркт та інсульт, реваскуляризацію й нестабільну стенокардію. Події: 17,2% проти 22,0%; відношення ризиків 0,75, 95% довірчий інтервал 0,68–0,83. Різниця часток — 4,8 процентного пункту, модельний відносний ризик зменшився приблизно на чверть. Це різні показники.
Госпіталізації через фібриляцію/тріпотіння передсердь: 3,1% проти 2,1%. Серйозні кровотечі: 2,7% проти 2,1%, p=0,06. Користь обговорюють разом із безпекою. Це не звичайна олія або готові SPM і не загальна доза 4 г для всіх.
Рандомізація встановлює ефект втручання, не єдиного молекулярного посередника. REDUCE-IT не доводить причинної ролі RvE1/RvE2. Потрібні вимірювання, часовий зв’язок, аналіз посередництва й альтернатив. Без цього «доведена тканинна генерація резолвінів» некоректна.
STRENGTH включив 13078 пацієнтів високого ризику на статинах із високими тригліцеридами й низьким HDL. Подвійне сліпе порівняння: 4 г/добу омега-3 карбоксильних кислот проти кукурудзяної олії. Точка — смерть, нефатальні інфаркт/інсульт, реваскуляризація, госпіталізація через нестабільну стенокардію. Медіана спостереження — 41,3 і 41,4 місяця. Зупинено достроково через безперспективність очікуваної користі.
Події: 12,0% проти 12,2%; відношення ризиків 0,99, 95% інтервал 0,90–1,09. Шлунково-кишкові небажані явища частіші при втручанні. Негативний результат певної форми EPA/DHA обмежує перенесення REDUCE-IT на всі олії.
Склад, форма, контрольна олія, експозиція й дизайн можуть пояснювати відмінності. Версію «DHA зменшила синтез 18-HEPE на 40%» ці випробування не встановили. Вторинний аналіз також не показав користі за найвищої досягнутої EPA. Це не єдине пояснення, але суперечить простому аргументу недостатньої дози.
GAUDI — подвійне сліпе рандомізоване пілотне дослідження дорослих 18–68 років із симптомним колінним остеоартритом. Зі 100 набраних 85 увійшли в ITT, основний аналіз — лише 51 за протоколом: 23 олія, 28 оливкове плацебо. Капсули 500 мг: чотири щодня шість тижнів, потім дві шість тижнів; спостереження до тижня 24. Первинна точка — зміна VAS.
На тижні 12 VAS був 3,4 проти 4,6, p=0,031. Але різниця відсоткового зменшення, 44,8% проти 28,4%, не була значущою, p=0,066. WOMAC не відрізнявся, на тижні 24 VAS також. Мала PP-вибірка й ретроспективна реєстрація обмежують упевненість. Це попередній сигнал, не поліпшення WOMAC на 38%, доведене скасування НПЗП або лікування ревматоїдного артриту.
SPM і гідроксипродуктові суміші не дають універсального протоколу «розв’язати запалення за 12 тижнів». Відсотки болю, WOMAC і потреби в НПЗП вимагають конкретної контрольованої роботи зі складом, дозою, вибіркою й точкою. Культура синовіоцитів або огляд не замінює джерело. Непідтверджені точні числа виключають.
Це стосується пародонтальних кишень, сухого ока, нейродегенерації й кишечника. Місцева речовина, системний аналог і харчова суміш різні. CRP чи оксиліпіни не доводять ремонту тканини й відсутності інфекції або кровотечі. Аспірин/антикоагулянти потребують оцінки конкретного продукту й ситуації.
Перспектива — поєднати точну хімічну ідентифікацію, локальну експозицію, рецепторну фармакологію й клінічний результат. Потрібні відтворювана аналітика, дози компонентів, контроль і негативні результати. Біохімія SPM складніша за гасло «омега-3 вимикає запалення». Активне розв’язання — реальне фізіологічне завдання, а надійна фармакологія потребує доказу кожної ланки.
Ні. Субстрати, гідроксипродукти й кінцеві резолвіни різні; назва комплексу не встановлює склад та ефективність.
Він встановив ефект препарату EPA в даній популяції, не RvE1/RvE2 як єдиний причинний механізм.
Універсальних референсів немає; потрібні валідований аналіз, тканинний контекст і функціональний зв’язок.