
Қабынудың басылуын қолдайтын арнайы медиаторлар: резолвиндер, протектиндер және марезиндер биохимиясы
EPA/DHA фермент жолдары, стереохимия, рецепторлар және эффероцитоз. SPM өлшеу шектеулері мен шағын жұмыстар, REDUCE-IT, STRENGTH, GAUDI нәтижелері.
EPA/DHA фермент жолдары, стереохимия, рецепторлар және эффероцитоз. SPM өлшеу шектеулері мен шағын жұмыстар, REDUCE-IT, STRENGTH, GAUDI нәтижелері.
Қабыну тітіркендіргіш жоғалғандықтан ғана аяқталмайды. Тіннің қалпына келуі үшін жаңа нейтрофилдердің келуін шектеу, өлген жасушаларды жою, олардың құрамын өңдеу және эпителий тосқауылын қалпына келтіру қажет. Бұл міндеттер рецепторларды, ферменттерді, энергияны және бірнеше жасуша популяциясының үйлесімін талап етеді. SPM деп аталатын, қабынудың басылуын қолдайтын арнайы липидтік медиаторлар осы үдерістің кең зерттелетін қатысушыларына айналды.
Резолвиндер, протектиндер және марезиндер ұзын тізбекті омега-3 май қышқылдарынан сипатталған ферменттік жолдармен түзіледі; липоксиндер арахидон қышқылымен байланысты. Химиялық құрамы нақты молекулалар жасушалық және жануарлық модельдерде белсенді. Бірақ биологиялық ұғым, эндогенді затты анықтау, енгізілген аналогтың әсері және ішілетін қоспаның тиімділігі — дәлелдің әртүрлі деңгейлері. Адам қанындағы өте төмен SPM мөлшерін және балық майымен «қабынудың басылу ақауын айналып өту» уәдесін сақтықпен түсіндіру керек.
Жедел жауап кезінде тамыр өткізгіштігі мен хемотаксис сигналдары жасушаларды зақымдалған жерге жеткізеді. Нейтрофилдер интегриндерді пайдаланып, актин қаңқасын өзгертеді, фагоцитоз жасап, реактивті оттегі түрлерін бөледі. Бұл шектеулі жерде және уақытта пайдалы, бірақ белсенген гранулоциттердің ұзақ сақталуы айналадағы тінді зақымдайды. Сондықтан жасушалардың келуін тоқтату және ошақты тазалау қорғаныстың бөлек бөлігі.
Классикалық модельдерде липидтік медиаторлар кластарының ауысуы сипатталған: бастапқы простагландиндер мен лейкотриендер басымдығын басқа оксилипин бейіні алмастырады. PGE2 және PGD2 липоксигеназа экспрессиясы мен циклдік AMP сигналдары арқылы осы ауысуға дайындық жасай алады. Бірақ бұл барлық қабындырушы молекуланы бір мезгілде өшіретін тетік емес. Әр жасушаның ферменттік бағдарламасы бөлек, ал тамырлық, иммундық және қалпына келтіру үдерістері қабаттасады.
«Қабыну 24 сағатқа дейін, басылу содан кейін» деген әмбебап кесте жоқ. Тәжірибеде нейтрофил санының шегін және кейінгі азаю аралығын анықтауға болады; ол нақты модельді сипаттайды. Созылмалы инфекция, қайталама жарақат, гипоксия және фиброз динамиканы өзгертеді. Тышқан перитонитінің уақытын адамның артритіне немесе атеросклерозына көшіруге болмайды.
SPM бүкіл басылу биологиясын қамтымайды. Аннексин A1, аденозин, цитокиндер, жүйкелік сигналдар және өлі жасушаларды танитын рецепторлар өзара әрекеттеседі. Белсенді басылудың болуы әр сәтсіздік бір резолвиннің тапшылығынан дегенді білдірмейді. Себеп жалғасқан стимул, эффероцитоз ақауы, субстраттың жетімсіздігі немесе сигналға сезімсіздік болуы мүмкін.
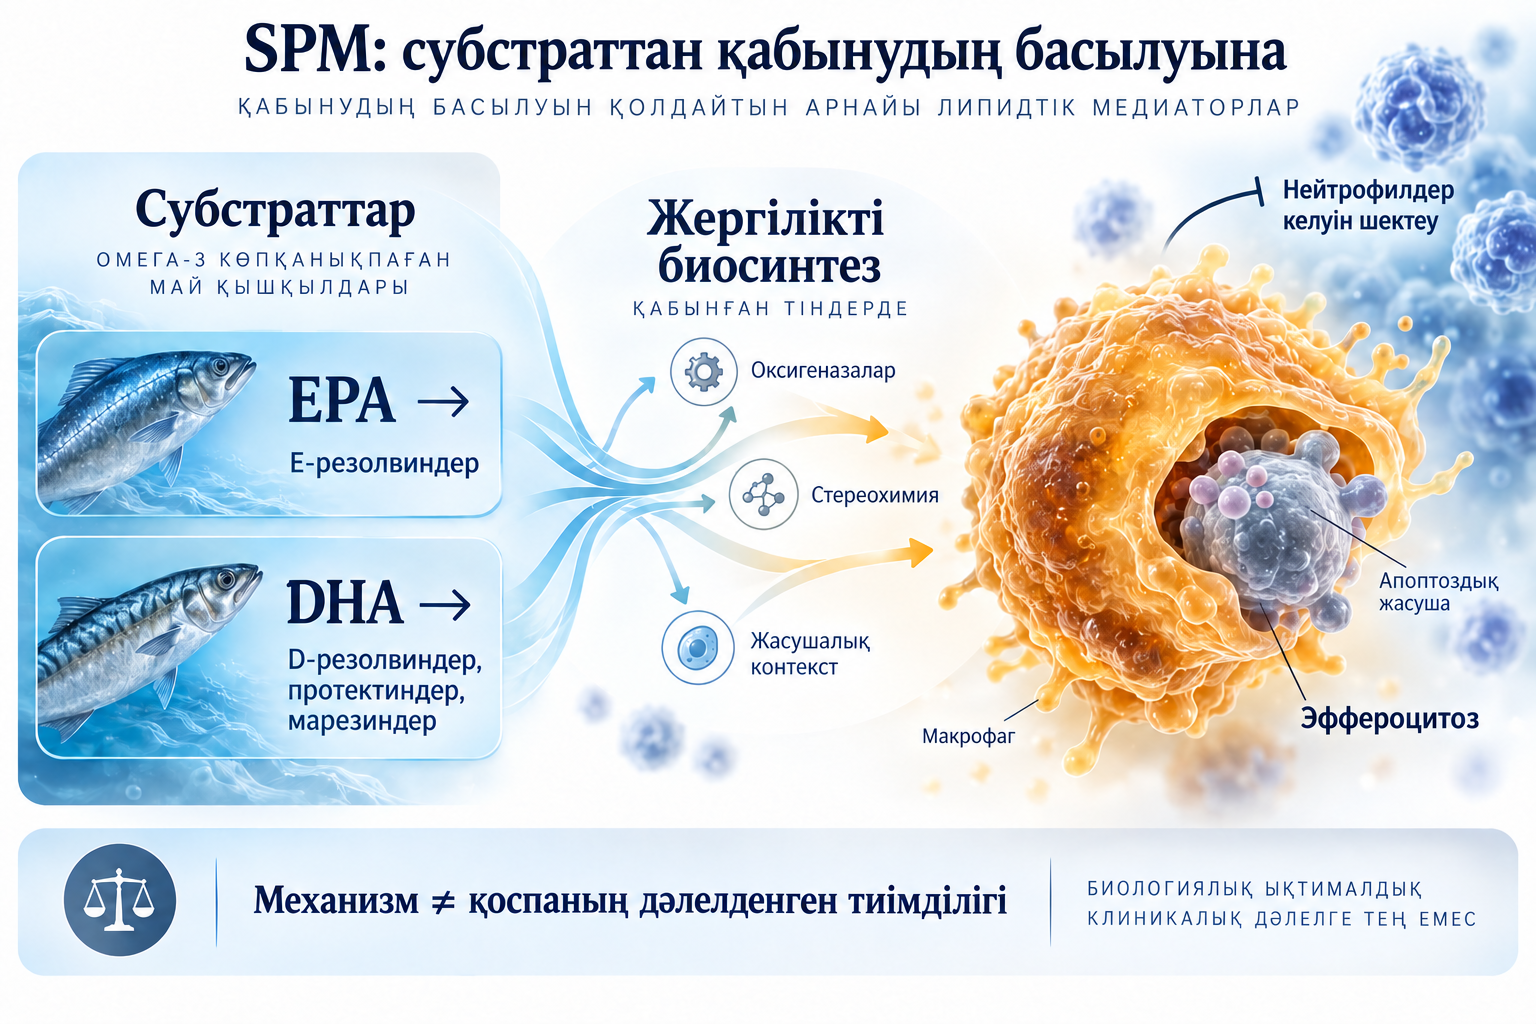
EPA құрамында 20 көміртек пен бес қос байланыс, DHA құрамында 22 көміртек пен алты қос байланыс бар. Мембранадағы қоры әдетте күрделі липидтер құрамында болады. Фосфолипаза A2 қышқылды босатады; ол оксигеназа субстратына айналуы, қайта эстерификациялануы немесе тотығуы мүмкін. Сондықтан эритроцит EPA мөлшері қабынған тіндегі RvE1 түзілу жылдамдығына тең емес.
Липоксигеназалар — темірі бар ферменттер. Олар көпқанықпаған субстраттан сутегін алып, молекулалық оттегінің қосылуын қамтамасыз етіп, гидропероксид түзеді. Оттегі орны, хиральді орталық және қос байланыс геометриясы маңызды. 17S-HpDHA гидропероксидті, 17S-HDHA оның тотықсызданған гидроксиөнімін білдіреді; оларды түсіндірмей алмастыруға болмайды.
Пероксидаза жүйелері гидропероксидті гидроксилге дейін тотықсыздандырады. Глутатионға тәуелді реакцияға тотықсызданған глутатион және NADPH көмегімен оның қайта қалпына келуі қажет. Ферментсіз пероксидтік тотығу да оттектенген липидтер береді, көбіне күрделі изомер қоспасы түрінде. «Гидрокси-DHA» анықталуы нақты белсенді SPM синтезін дәлелдемейді.
Жасушадағы орын субстратқа қолжетімділікті өзгертеді. 5-липоксигеназа ядро қабықшасына ауыса алады; FLAP май қышқылымен өзара әрекетті ұйымдастыруға қатысады. Кальций, фосфорлану, редокс күйі және көрші жасушалар нәтижеге әсер етеді. Трансжасушалық биосинтез бір жасуша аралық өнімін басқасы пайдаланатынын білдіреді, барлық реакция бір еркін цитозольде жүреді деген сөз емес.
P450 цитохромдары басқа жүйеге жатады: монооксигенация үшін әдетте NADPH-тан редуктаза арқылы электрон жеткізу және оттегі керек. COX-2 циклооксигеназа және пероксидаза қызметтерін атқарады. Аспиринмен ацетилдену өнімдерді өзгертіп, кей модельдерде эпимерлерге ықпал етеді. Бұл SPM түзу үшін барлық адамға аспирин қажет деген дәлел емес.
RvE1 классикалық жолы EPA-ның C18 орнында оттектенуі мен 18-HEPE түзілуінен басталады. 5-липоксигеназа өңдеуі және эпоксидтік аралық саты тригидроксилденген өнімге жеткізеді. RvE1 құрылымы 5S,12R,18R-тригидрокси-6Z,8E,10E,14Z,16E-EPA ретінде анықталған. Бұл үш гидроксилі бар кез келген EPA емес, нақты молекула.
Arita және әріптестері химиялық синтез арқылы синтетикалық RvE1 қасиеттері мен әсерін зерттелген липидпен салыстырды. Бұл бір масса және бір фрагмент бойынша танудан сенімдірек. RvE2 үшін дигидроксилденген тармақ сипатталған; басқа E өнімдерінің оттектену орындары бөлек. RvE3/RvE4-ті бір реакцияға біріктіріп немесе RvE1 рецепторлық фармакологиясын автоматты беруге болмайды.
C18 орнындағы R/S конфигурация фермент пен жағдайға тәуелді. Аспиринге тәуелді және тәуелсіз жолдар бар, бірақ табиғи COX-2 әрдайым дәл тең 18R/18S-HEPE қоспасын береді деу артық. Стереохимияны, әсіресе коммерциялық концентратта, өлшеу керек. Изомерсіз жалпы 18-HEPE өнімді толық сипаттамайды.
18-HEPE EPA тармағының маркері ретінде пайдалы. Бірақ келесі реакция шектелсе, аралық өнім жиналады. Май ішкеннен кейінгі өсу RvE1 пропорциялық түзілуін, рецептор белсенуін немесе бляшка тұрақтануын дәлелдемейді. Әр келесі буынға жеке өлшем керек.
D қатарының бастапқы сатысы — липоксигеназа жолымен 17S-гидроперокси-DHA түзілуі. Қосымша оттектену және эпоксид өзгерістері әртүрлі өнім береді. RvD1 гидроксил конфигурациясы 7S,8R,17S, RvD2-де 7S,16R,17S. Үшінші топтың орны пішін мен фармакологияны өзгертеді.
RvD3/RvD4 басқа тармақпен байланысты, RvD5/RvD6 дигидроксилденген заттар. RvD1–RvD6 — бір белсенділіктің алты атауы емес, отбасы. Тұрақсыз эпоксидтің ферментсіз ашылуы массасы ұқсас, конфигурациясы мен әсері бөлек өнімдер бере алады.
Аспирин қоздырған D-резолвиндер C17 конфигурациясымен, әдетте 17R, ерекшеленеді. Бұл кей инактивация жолына сезімталдықты өзгертеді. Барлық эпимерге бірдей жартылай шығарылу ұзақтығын немесе клиникалық әсерді телуге болмайды. Әр аналогтың тұрақтылығы нақты жүйеде анықталады.
17-HDHA DHA оттектену маркері ретінде жиі өлшенеді. Ол RvD1 емес және барлық реакцияда гидропероксидті алмастырмайды. «Бір сатыда кез келген D-резолвинге айналады» деу қосымша оттектенуді, эпоксид өзгерісін және стереоспецификалық ашылуды жасырады. Қаптамадағы жеңіл схема жасуша биохимиясын жеңілдетпейді.
Протектин D1 мен нейропротектин D1 әр тіндік контексте бір анықталған молекуланы білдіреді. Оның 10R,17S конфигурациясы және конъюгацияланған триен жүйесі сипатталған. Жол DHA оттектенуі мен эпоксид аралығын қамтиды. Ұқсас дигидроксиөнімді автоматты NPD1 деуге болмайды: protectin DX және басқа изомерлерді ажырату қажет.
NPD1 торқабық жасушаларының өміршеңдігі, жүйке тіні жауабы және макрофаг қызметі үшін зерттеледі. Конъюгацияланған байланыстардың спектрі масс-спектрометрияны толықтырады. Модельдегі енгізілген зат нейропротекциясы қоспамен Альцгеймер ауруын алдын алуды дәлелдемейді.
Марезин жолы DHA-ның C14 орнында гидропероксидке оттектенуін, кейін 13,14-эпоксидті және 7R,14S конфигурациялы MaR1 түзілуін қамтиды. Макрофаг пен адам 12-липоксигеназа зерттеулері оны жеке тармақ санайды. Түрлік және жасушалық ерекшелік маңызды: тышқанның «12/15-LOX» атауын адам изоформаларына тікелей көшіруге болмайды.
MaR2 және MCTR конъюгаттары отбасын кеңейтеді. Тінді жөндеуге қатысты пептидолипидтер глутатион қосылуы және пептид бөлігін кезеңді өңдеу арқылы түзіледі; RCTR/PCTR топтары резолвин және протектин жолдары үшін сипатталған. Бұл «капсуладағы марезин» ғана емес, жеке химиялық өнімдер. Олар сигналды регенерациямен байланыстырады, бірақ адамға әмбебап ем хаттамасын бермейді.
n-3 DPA-да 22 көміртек пен бес қос байланыс бар және ол да про-резолюциялық өнімдер бере алады. Ұқсас атау DHA туындыларымен теңдік емес. Қос байланыстар ферменттерге, хроматографияға және спектрге әсер етеді. EPA/DHA/DPA қоспасында әр субстраттың үлесін ескеру керек.
Арахидон қышқылы тек қабындырушы простагландиндер мен лейкотриендердің көзі емес. 5- және 12/15-липоксигеназа трансжасушалық жолдары липоксин береді. Нейтрофил–тромбоцит байланысы реакциялардың бөлінуін көрсетеді. Аспиринмен ацетилденген COX-2 эпимерлік липоксиндерге арналған 15R өнімдеріне қатыса алады.
Сондықтан «омега-6 қабындырады, омега-3 басады» жеткіліксіз. Фермент, жасуша күйі, уақыт және рецептор нәтижені анықтайды. Арахидон қышқылын толық ығыстыру физиологиялық мақсат емес. Қалыпты қорғанысты бастайтын сигналдар да қажет.
RvE1 үшін ChemR23/CMKLR1 және BLT1 сипатталған. ChemR23 хемеринді де таниды, BLT1 LTB4 жауабына қатысады; олар бір резолвинге ғана арналмаған. Адам нейтрофил мембранасындағы арнайы байланыс Kd 48,3 нМ мәнімен сипатталды. Бұл тәжірибе параметрі, әмбебап ем концентрациясы емес.
RvD1 үшін FPR2/ALX және GPR32, RvD2 үшін GPR18 жиі көрсетіледі. FPR2 әртүрлі лигандты таниды, жауап контекске тәуелді. Адам GPR32 экспрессиясы мен қалыпты тышқан моделінде тікелей аналогтың болмауы аударуды қиындатады. Карта — пайдалы гипотеза, жабылған каталог емес.
Chiang зерттеуінде MaR1 рекомбинант жүйеде LGR6 белсендірді; радиобелгі, артық экспрессия және генді басу функционал өлшемдерді толықтырды. Адам/тышқан фагоциттерінде 0,01–10 нМ MaR1 фагоцитоз және эффероцитозды арттырды. Бұл ауыз дозасын негіздемейді. NPD1 үшін GPR37 трансфекцияланған жасушалар және Gpr37 жойылған тышқандар негізінде ұсынылған.
GPCR сигналы G-ақуыз, кальций, ERK, PI3K–AKT қамтуы мүмкін. Барлық SPM үшін «рецептор → NF-κB өшуі» тым қарапайым. Жолдар миграция, өміршеңдік және жұтуды да реттейді; бағыт уақыт пен күйге байланысты. Рецепторды бекітуге қайталанатын байланыс, жауап және генетикалық/фармакологиялық өзгеріс керек.
Кей рецептордың қайталануы мен физиологиялық концентрация жөнінде келіспеушілік бар. Бір жүйедегі теріс нәтиже бүкіл биологияны жоққа шығармайды, ал жасанды жоғары экспрессиядағы оң сигнал адам тінін дәлелдемейді. Химиялық белсенділік пен эндогенді физиология арасы маңызды мәселе.
[[figure:resolution]]
Кей модельде резолвиндер эндотелий не эпителий арқылы көшуді азайтады. Интегрин, LTB4 жауабы және актин поляризациясы өзгеруі мүмкін. Бұл барлық қозғалыстың салдануы емес. Инфекцияға жауап сақталуы керек; нәтиже стимул мен мөлшерге тәуелді.
NETs хроматин мен гранула ақуыздарынан тұрады. Қорғанысқа көмектескенімен, зақым мен тромбқабынуды да қолдайды. Кей SPM нақты модельде NET түзілуін өзгертеді. Әр резолвин PAD4-ті тікелей басады немесе сепсистен қорғайды деуге нақты молекула, модель және клиникалық дәлел қажет.
Апоптоздық жасуша сыртында фосфатидилсерин ашады. Gas6, protein S және MerTK секілді TAM рецепторлары оны тануға көмектеседі. Белсену шағын GTPазалармен қаңқаны өзгертіп, фагоциттік тостаған түзеді. Фагосома жетіліп, лизосомамен әрекеттеседі; жұту және қорыту бөлек сатылар.
SPM эффероцитозды арттыра алады, ал сәтті жұту макрофагтың липидтік және цитокиндік сигналын өзгертеді. Бұл кері байланыс. Алынбаған апоптоздық жасушалар екінші некроз арқылы зиянды құрамын шығарады. Тазалау сапасы бастапқы сигналдан тәуелсіз маңызды.
Эффероцитоз көп липид, ақуыз және нуклеин қышқылын әкеледі. Лизосомалық гидролазалар оларды өңдейді; холестерин қауіпсіз таралуы не шығарылуы керек. LXR/PPAR, ABCA1/ABCG1 және липопротеин акцепторлары жүктемеге бейімдейді. Энергия не лизосома жеткіліксіздігі сыртқы сигнал болса да қайталап жұтуды бұзады.
Митохондрия ATP-мен бірге метаболикалық сигнал береді. Гликолиз, үшкарбон қышқылдары циклі және май тотығуы стимул мен оттегіне қарай өзгереді. Қабынушы макрофаг тек гликолиз, басушы тек β-тотығу қолданады деу қатаң. Тіндік күйлер екеуден әлдеқайда көп.
M1/M2 зертханалық жағдайды сипаттайды, in vivo толық тұлға емес. CD206, CD163 немесе Arg1 жалғыз жөндеуші фенотипті дәлелдемейді, әсіресе тышқан маркерін адамға көшіргенде. Жөндеу фиброзға ауысуы мүмкін. Эффероцитоз, цитокин, метаболизм және тін нәтижесін бөлек өлшейді.
SPM нейроиммундық реттегіш ретінде зерттеледі. Макрофаг сигналдары ноцицептор сезімталдануын азайта алады; TRPV1/TRPA1 жолдарына әсер сипатталған. GPR37 жоқ тышқандарда қабыну ауыруы ұзағырақ болып, фагоциттік қызмет зерттелді. Бұл пациенттегі дәлелді жансыздандыру емес.
«SPM морфиннен күшті және жанама әсерсіз» дұрыс емес. Модель, енгізу және нәтиже әртүрлі. Кей жағдайда микроб тазалануының артуы ұзақ емде инфекция қаупі жоқ екенін кепілдемейді. Иммунорезолвент ұғымы клиникалық қауіпсіздік тексеруін қажет етеді.
Ішекте қабыну аяқталуы тығыз байланыстарды және микробиотамен қатынасты қалпына келтірумен қатар жүреді. Ішек сілтілік фосфатазасы фосфорланған субстраттарды, соның ішінде lipid A, өңдейтін басқа жолды көрсетеді. SPM басқа сигнал жүйесі; ортақ мақсат механизмдерді алмастырмайды.
Секреторлық IgA патогеннің шырыштыға байланысын міндетті бұзушы қабынусыз шектейді. Тосқауыл және басылу байланысты, міндеттері бөлек. Стимул бақылауы, иммундық шектеу, өлі жасуша жою және тін қалпына келуі керек. Бір сигнал қалғанын алмастырмайды.
Атеросклерозда эффероцитоз ақауы өлген көбік жасушаларын жинап, некроз ядросын үлкейтеді. Липид қатынасы, MerTK бөлінуі және енгізілген медиаторлар зерттеледі. Бұл жаңа тәсілге механизмдік негіз. Адамға әмбебап RvD1/LTB4 диагностикалық шек жоқ; тін мен талдау сапасы маңызды.
Ревматоид синовияда нейтрофил, макрофаг және фибробластқа ұқсас синовиоцит бар. RANKL остеокласт түзілуін, тұрақты цитокин зақымды қолдайды. RvD1 культурада p38/NF-κB/AKT өзгерте алады, бірақ бұл рандомизацияланған артрит емі емес. Одан ауырсыну пайызы не ҚҚСП тоқтату көрсеткішін алуға болмайды.
Ішек қабынуы, пародонтит, метаболикалық және нейродегенерациялық ауруда ұқсас гипотеза бар. Төмен деңгей ауру, кезең, дәрі немесе талдау қатесінен, жоғары деңгей компенсациядан болуы мүмкін. «Тапшылық» — функционал зерттеу ұғымы, қосымша панель арқылы стандарт диагноз емес.
Сенімді анықтау сұйық хроматография–тандем масс-спектрометрия және шынайы/ішкі стандарттарды қолданады. Ұсталу уақыты, бірнеше диагностикалық ион, шың пішіні және изомер ажырату маңызды. Экстракция, матрица, тасымал қалдығы және тұрақтылық тексеріледі. Сандық шектен төмен сигнал дәл концентрация бермейді.
Плазма, сарысу және стимулданған культура әртүрлі матрицалар. Ұю кезінде жасушалар оксилипинді өзгертеді; өңдеу кідірісі, температура және сақтау әсер етеді. Зерттеу айырмасы адам биологиясынан ғана емес, сынама мен анали́ттен де шығады.
ELISA ыңғайлы, бірақ ұқсас липидтер айқаспалы реакция береді. Оның саны құрылымы расталған RvD1-ге автоматты тең емес. Сезімталдық спецификалықтың орнын баспайды. Зерттеу панельдерінде бір нәтижеге қарап ем тағайындайтын әмбебап референс жоқ.
Валидацияланған жұмыста кей SPM стимулданған адам нейтрофил–тромбоцит кокультурасында, арнайы дифференцияланған макрофагта және тышқан көкбауырында расталды. Басқа жүйелерде ерекше түзілу болмады; стимулсыз жасуша мен стимулданған адам қанында да берілген жағдайда байқалмады. Бұл нақты жолдарды қолдап, қанда әрдайым өлшенеді дегенді шектейді.
Теріс өлшем «SPM жоқ», оң өлшем «ем концентрациясында үнемі бар» деген сөз емес. Ортақ критерий және жергілікті экспозиция–функция байланысы қажет. Қоспадан кейін оксилипин тізімінің өсуі пациенттің эндогенді басылуы жақсарғанын дәлелдемейді.
Липид аутакоидтары жергілікті әсер етіп, жылдам метаболизденуі мүмкін. Дегидрогеназа гидроксилді NAD+-қа электрон беру арқылы тотықтырады, редуктаза тотықсыздандырғыш кофактормен қос байланысты өзгертеді, ω-тотығу тізбекті өңдейді. Фермент пен орын әртүрлі. Барлық SPM үшін бір «5–15 минут» жартылай шығарылу жоқ.
RvD1 оксоөнімдері сипатталған; барлық өзгеріс барлық белсенділікті жоймайды. Стереохимия және орта тұрақтылыққа әсер етеді. Эпимер, қорғалған туынды, ароматтық алмастыру және продәрі зерттеледі. Тұрақтандыру таралу, селективтік және уыттылықты да өзгертеді.
RX-10045 секілді көзге арналған RvE1 аналогтары клиникалық әзірлеуде зерттелген. Тіркеу не сынақ барлық көз нәтижесінің табысын немесе ішілетін қоспаны дәлелдемейді. Жергілікті, көз ішілік және жүйелік экспозиция бөлек. Нақты зерттеу нәтижелері қажет.
EPA/DHA мембрана, липопротеин, фермент бәсекесі және басқа оксилипиндерді өзгертеді. Байытылған майда 18-HEPE, 17-HDHA, 14-HDHA болуы мүмкін. «SPM complex» дайын RvE1/MaR1 мөлшерін, изомерлерді немесе тұрақтылықты көрсетпейді.
Моногидроксиөнім барлық фермент шектеуін кепілді айналып өтпейді. Кейінгі реакция және контекст керек; эстерификация, катаболизм, басқа тіндер және балама өнімдер мүмкін. «Қажет кезде жеткізуге» трассер мен тін өлшемі керек, тек плазма маркері емес.
Қорыту өтпен эмульгация, ферменттік гидролиз және энтероцит жұтуын қамтиды. Ұзын қышқылдар күрделі липидке қайта кіріп, хиломикронмен тасымалданады. Бұл жалпы физиология, әр 17-HDHA өнімінің дәлелденген маршруты емес. Бос қышқыл, этил эфирі, триглицерид және фосфолипид бөлек; түрі және тамақ биожетімділікті өзгертеді.
Барлық концентраттың фармакопея стандарты, оптикалық тазалығы және лезде конверсиясы нақты өнім бойынша дәлелденуі керек. Май грамы гидроксиөнім микрограмына немесе белсенді резолвин дозасына тең емес. Зерттеу мен этикеткада шамалар бөлінеді.
Souza-ның қос соқыр плацебо-бақыланатын зерттеуінде 22 сау ерікті болды. 1,5, 3, 4,5 г байытылған майдың жедел жауабы, липид бейіні және лейкоцит қызметі 2, 4, 6, 24 сағатта зерттелді. Авторлар ерте нүктелерде дозалық медиатор өсуін хабарлады. Бұл биохимиялық/жасушалық нәтиже, инфаркт алдын алу, артрит емдеу не ұзақ қауіпсіздік емес.
Қоспа құрамы мен қысқа уақыт маңызды. Бірнеше қышқыл мен гидроксиөнім әсерін бір 18-HEPE-ге беру мүмкін емес. Ex vivo оң тест клиникалық жақсаруды орнатпайды. Төмен плазма деңгейінің аналитикалық таласын тәуелсіз қайталауда ескеру керек.
Бақылаусыз жұмыста семіздігі бар 23 ересек 28–30 күн 2 г/тәулік алды. Бастапқы оксилипин өзгерісі зерттелді; өлшенген RvE1 және n-3 DPA-MaR1 3,5 және 4,7 есе өсті. D-резолвин және зерттелген иммундық жасуша саны өспеді. Дейін/кейін салыстыру себептілікті шектейді; шағын үлгі мен көп көрсеткіш түзетулерді қажет етеді. Семіздік, диабет немесе тапшылық емі дәлелденбейді.
Ашық OMEGA-SPM-DOSE-де 10 сау және тұрақты симптомдық шеткері артерия ауруы бар 10 пациент болды. Эмульсия ретімен 15, 30, 60 мл/тәулік, яғни 1,5, 3, 6 г май, бес күннен берілді; арада тоғыз күн үзіліс болды. Негізгі көрсеткіш жалпы өлшенген плазма SPM еді; медиаторлар мен фагоцитоз өсті деп хабарланды. Соқырлау/плацебо жоқ, үлгі аз, доза ретімен артты. Фагоцитоз жүру, ампутация, тамыр оқиғасы немесе өмір сапасын алмастырмайды. Клиникаға нақты өнім және бақыланатын нәтиже керек.
REDUCE-IT статин қабылдаған, жүрек-тамыр ауруы немесе диабет пен қауіп факторлары бар 8179 пациентті рандомизациялады. Триглицерид 135–499 мг/дл, LDL 41–100 мг/дл болды. Тазартылған EPA этил эфирі икосапент этил 2 г-нан күніне екі рет, 4 г/тәулік, плацебомен салыстырылды. Бақылау медианасы 4,9 жыл.
Құрама нүкте жүрек-тамыр өлімі, өлімсіз инфаркт/инсульт, коронарлық реваскуляризация және тұрақсыз стенокардияны қамтыды. Оқиға 17,2% және 22,0%; hazard ratio 0,75, 95% сенім аралығы 0,68–0,83. Үлес айырмасы 4,8 пайыздық тармақ, уақыттық салыстырмалы қауіп шамамен төрттен бірге азайды. Бұл екі бөлек өлшем.
Жүрекшелер фибрилляциясы/дірілі бойынша аурухана 3,1% қарсы 2,1%; ауыр қан кету 2,7% қарсы 2,1%, p=0,06. Пайда қауіпсіздікпен талданады. Бұл кәдімгі май немесе дайын SPM сынағы емес, барлық адамға 4 г беру негізі емес.
Рандомизация араласу әсерін көрсетеді, жалғыз молекулалық делдалды емес. RvE1/RvE2 себептік рөлі дәлелденбеген. Өлшемдер, уақыт байланысы, медиаторлық талдау және баламалар керек. Оларсыз «тінде резолвин түзілуі дәлелді» деу дұрыс емес.
STRENGTH жоғары қауіптегі, статин қабылдаған, триглицериді жоғары және HDL төмен 13078 пациентті қамтыды. Қос соқыр салыстыру 4 г/тәулік омега-3 карбоксил қышқылы мен жүгері майы болды. Нүкте жүрек-тамыр өлімі, өлімсіз инфаркт/инсульт, реваскуляризация және тұрақсыз стенокардия госпитализациясы. Бақылау медианасы 41,3 және 41,4 ай; пайда ықтималдығы төмен болғандықтан ерте тоқтады.
Оқиға 12,0% қарсы 12,2%; hazard ratio 0,99, 95% аралық 0,90–1,09. Асқазан-ішек жағымсыз әсері жиірек болды. Бұл нақты EPA/DHA түрінің теріс нәтижесі REDUCE-IT-ті барлық майға таратуға жол бермейді.
Құрам, түр, салыстырма май, экспозиция және дизайн айырмасы маңызды болуы мүмкін. «DHA 18-HEPE синтезін 40% азайтты» осы сынақтармен бекітілмеген. Екінші талдау ең жоғары EPA деңгейінде де пайда таппады. Бұл жалғыз түсінік емес, бірақ жеткіліксіз доза уәжін әлсіретеді.
GAUDI 18–68 жастағы симптомдық тізе остеоартриті бар ересектердің қос соқыр рандомизацияланған пилоты. 100 алынған адамның 85-і ITT-де, негізгі талдау тек 51 хаттамалық қатысушыда: 23 май, 28 зәйтүн плацебосы. 500 мг капсула алғашқы алты апта төрттен, келесі алты апта екіден; бақылау 24-аптаға дейін. Негізгі нүкте VAS өзгерісі.
12-апта VAS 3,4 қарсы 4,6, p=0,031. Бірақ бастапқыдан пайыздық азаю 44,8% қарсы 28,4%, p=0,066, мәнді емес. WOMAC өзгеше болмады, 24-апта VAS айырмасы да жоқ. Шағын PP мен ретроспективті тіркеу сенімді шектейді. Алдын ала сигнал WOMAC 38% жақсаруы, ҚҚСП тоқтауы немесе ревматоид артрит әсері емес.
SPM қоспалары «12 аптада қабынуды басу» әмбебап хаттамасын бермейді. Ауырсыну, WOMAC және ҚҚСП пайызы нақты құрам, доза, үлгі және нүктесі бар бақылаулы зерттеу талап етеді. Синовиоцит культурасы не шолу оны алмастырмайды. Дәлелсіз нақты ем сандарын алып тастау керек.
Бұл пародонт қалтасы, құрғақ көз, нейродегенерация және ішекке де қатысты. Жергілікті зат, жүйелік аналог, тағам қоспасы бөлек араласулар. CRP/оксилипин өзгерісі тін жөндеуін немесе инфекция/қан кету жоқтығын дәлелдемейді. Аспирин/антикоагулянтпен қауіпсіздік нақты өнім мен жағдайға сүйенеді.
Келешек — нақты химиялық тану, жергілікті экспозиция, рецептор фармакологиясы және клиникалық нәтижені біріктіру. Қайталанатын талдау, компонент дозасы, бақылау және теріс нәтижелер керек. SPM биохимиясы «омега-3 қабынуды өшіреді» ұранынан күрделі. Белсенді басылу — шынайы физиологиялық міндет, сенімді фармакология әр буынды дәлелдеуді қажет етеді.
Жоқ. Субстрат, гидроксиөнім және резолвин бөлек; кешен атауы құрам мен тиімділікті бекітпейді.
Нақты популяцияда EPA препараты әсерін көрсетті, RvE1/RvE2 жалғыз механизмін емес.
Әмбебап клиникалық референс жоқ; сенімді талдау, тін контексті және функция байланысы қажет.