
NETs: PAD4, імунний тромбоз та автоімунні ризики
Ферментологія PAD4, NOX2, мієлопероксидази й еластази; NETs у тромбозі та автоімунітеті, кліренс хроматину й негативні випробування DNase.
Нейтрофіл може знищувати поглинутий матеріал усередині фагосоми, виділяти вміст гранул і формувати позаклітинні структури з хроматину та білків. Останні називають нейтрофільними позаклітинними пастками, або NETs. У першій роботі Брінкмана та колег 2004 року ці структури зв’язували мікроорганізми й концентрували протимікробні компоненти. Проте та сама просторова організація здатна утримувати тромбоцити, ушкоджувати судинний бар’єр і показувати імунній системі власні ядерні антигени. Тому питання полягає в тому, де, за якого запального стану та як довго вони зберігаються.
NETs — складний об’єкт. ДНК служить каркасом, гістони беруть участь в упаковці хроматину, а нейтрофільна еластаза, мієлопероксидаза та інші гранулярні білки надають додаткових властивостей. Вимірювання лише вільної ДНК не визначає походження всього матеріалу, цілісність комплексу чи його ферментативну активність. Зв’язок маркера з тяжкістю хвороби також не доводить, що пригнічення маркера поліпшить клінічні наслідки.
Утворення NETs не зводиться до одного виду смерті
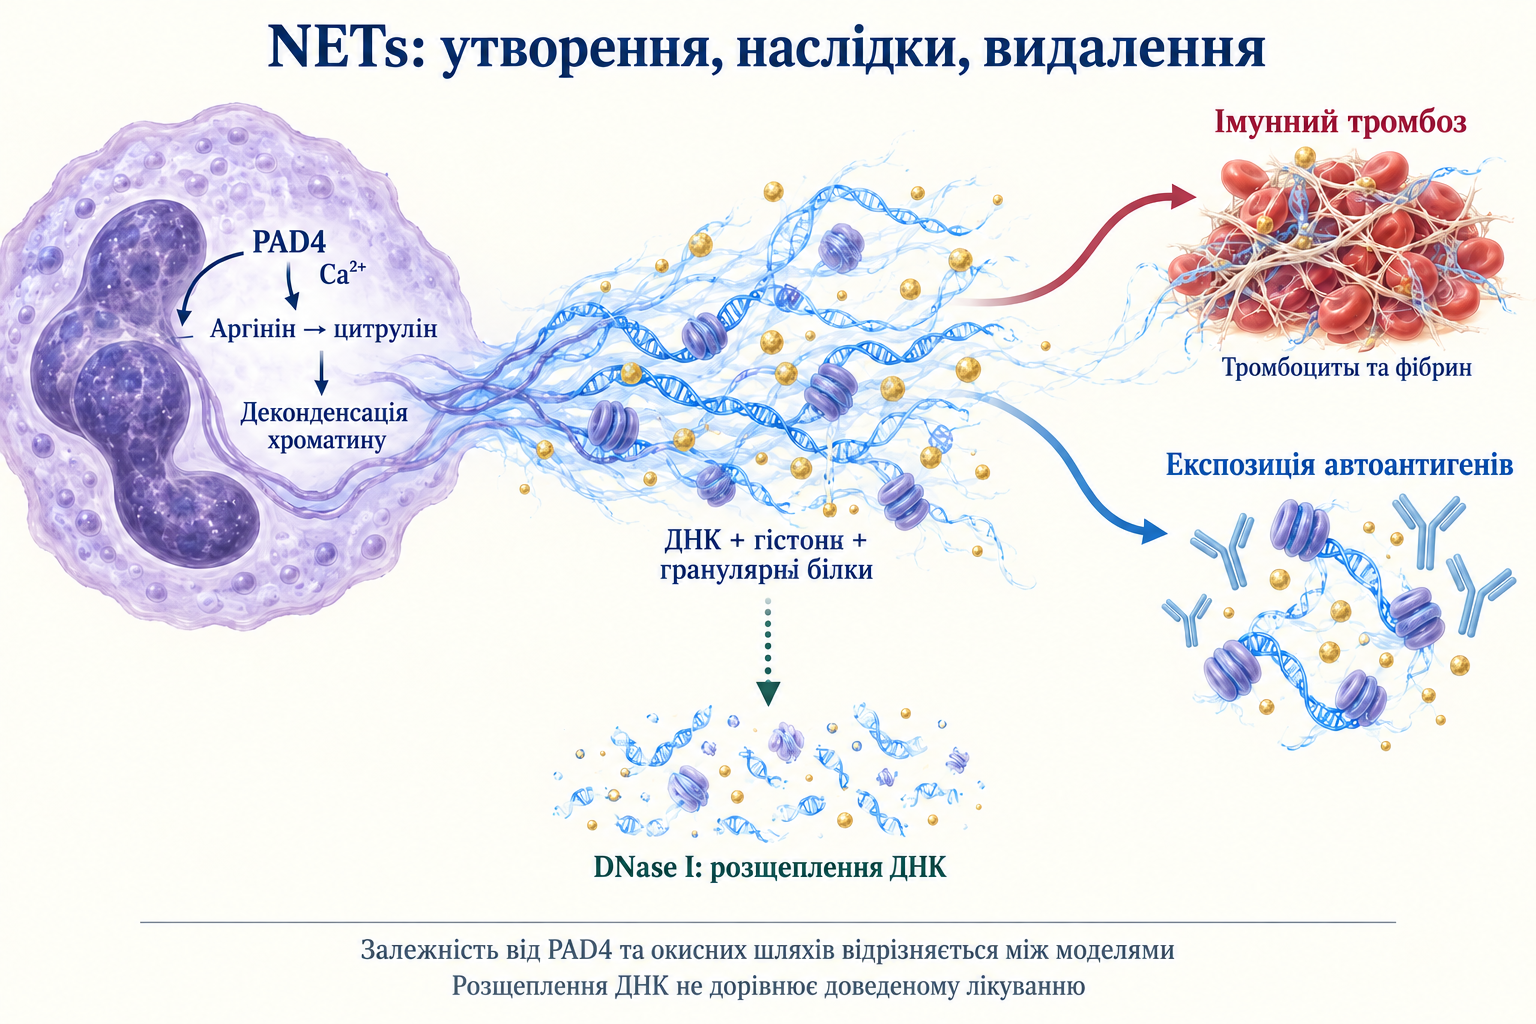
Термін «нетоз» історично пов’язували з програмою, за якої хроматин деконденсується, ядерна оболонка руйнується, а вміст виходить після ушкодження плазматичної мембрани. Тіам і колеги показали таку послідовність із перебудовою цитоскелета та внутрішньоклітинних мембран у досліджених системах. Активність PAD4 та його ядерна локалізація були важливими для деконденсації й руйнування ядерної оболонки. Це опис конкретного механізму, а не однакової послідовності в усіх тканинах людини.
У літературі також описано виділення позаклітинної ДНК без негайної загибелі клітини. Класифікація залежить від того, чи вимірювали цілісність мембрани, долю нейтрофіла та походження ДНК. Тому нейтральне «утворення NETs» часто точніше за висновок про смерть клітини за одним знімком. Позаядерна ДНК інших ушкоджених клітин, звичайний некроз і NETs можуть співіснувати в запаленій тканині; зводити їх до однієї величини не можна.
Кенні та колеги 2017 року порівняли різні шляхи утворення NETs у людських нейтрофілах, зокрема клітини пацієнтів із дефектами NADPH-оксидази та недостатністю мієлопероксидази. Залежність від окисних реакцій і гранулярних ферментів відрізнялася між дослідженими умовами. Твердження про необхідний фермент має супроводжуватися назвою клітинної системи й контексту, а не перетворюватися на універсальну схему.
PAD4 змінює білковий аргінін, а не синтезує оксид азоту
PAD4 — пептидиларгініндеіміназа. Вона гідролітично перетворює аргініновий залишок білка на цитруліновий: білковий аргінін + H₂O → білковий цитрулін + аміак, який у фізіологічному середовищі переважно представлений амонієм. Позитивно заряджена гуанідинієва група аргініну замінюється нейтральною групою цитруліну. Змінюється один бічний ланцюг; це не означає видалення гістону чи розщеплення ДНК.
Кальцій бере участь у формуванні активної конформації PAD4. Фермент використовує каталітичний цистеїн і воду; NAD⁺ не витрачається як кофактор цієї реакції. У ядрі цитрулінування гістонів може послаблювати електростатичні взаємодії з негативно зарядженою ДНК та сприяти деконденсації. Упаковка також залежить від протеолізу, інших модифікацій гістонів і структурних перебудов. Цитрулінований гістон H3 тому корисний як одна з ознак певних шляхів, але не є еквівалентом будь-якого NET-комплексу.
Цю реакцію слід відрізняти від перетворень вільного аргініну в обміні азоту. Синтаза оксиду азоту використовує вільний аргінін та іншу ферментну систему; спільний продукт цитрулін не робить реакції взаємозамінними. Так само харчовий цитрулін не свідчить про цитрулінування гістонів і не обґрунтовує вплив на NETs амінокислотною добавкою.
NOX2, мієлопероксидаза й еластаза діють у різних компартментах
NOX2 — багатокомпонентний комплекс NADPH-оксидази. У зібраному комплексі електрони від NADPH проходять через FAD і гемові центри до кисню, утворюючи супероксид. Мембранні та цитозольні компоненти забезпечують просторову організацію; подальші перетворення активних форм кисню включають утворення перекису водню. Ці реакції можуть брати участь у сигналюванні та протимікробній функції, але підвищення загального показника окиснення не доводить утворення NETs.
Мієлопероксидаза — гемовий фермент гранул. Вона використовує перекис водню й за наявності хлориду сприяє утворенню гіпохлоритної кислоти: H₂O₂ + Cl⁻ + H⁺ → HOCl + H₂O. На відміну від PAD4, тут змінюється окисний стан субстратів. Кількість мієлопероксидази, її розташування поруч із ДНК та каталітична активність — три різні вимірювання. Локальне хімічне середовище й доступність субстратів впливають на те, які реакції справді відбуваються в позаклітинному комплексі.
Нейтрофільна еластаза — серинова протеаза, а не кальцій-залежна деіміназа. У деяких людських клітинних моделях її переміщення з гранул до ядра та розщеплення гістонів допомагають деконденсації. Папаяннопулос і колеги показали участь еластази й мієлопероксидази в дослідженому механізмі. Проте в роботі Мартінод та колег 2016 року миші без еластази все ж утворювали NETs за дослідженого стерильного запалення, а дефіцит ферменту не запобігав експериментальному венозному тромбозу. Це обмежує універсальність, не скасовуючи ролі еластази в інших умовах.
Як хроматин стає учасником тромбу
NETs можуть створювати поверхню взаємодії тромбоцитів, еритроцитів, білків згортання та судинного ендотелію. У роботі Фукса й колег 2010 року позаклітинні пастки підтримували адгезію й активацію тромбоцитів та відкладення фібрину в експериментальних системах. Самі гістони також спричиняли тромбоцитарні ефекти. Це пояснює можливий зв’язок запалення з тромбоутворенням, але не робить кожну позаклітинну ДНК повноцінним тромбом.
Згортання зберігає власну ферментологію. Активовані фактори XII і XI — серинові протеази; XIIa не слід описувати як цинк-залежну металопротеїназу. Послідовне утворення IXa та Xa, робота кофакторів VIIIa й Va на фосфоліпідних поверхнях і участь кальцію забезпечують утворення тромбіну. Тромбін розщеплює фібриноген, а XIIIa стабілізує фібрин поперечними зв’язками. ДНК-каркас і фібринова мережа можуть взаємодіяти, проте це різні молекулярні структури.
Контактний шлях, клітинні поверхні, тканинний фактор і ушкодження ендотелію роблять неоднаковий внесок у різних хворобах. Наявність NETs не доводить, що нейтрофіли синтезували тканинний фактор або що всі природні антикоагулянтні механізми повністю вимкнені. Частина білків може зв’язуватися з поверхнею ззовні; плазмове вимірювання не визначає клітинне джерело.
У мишачій роботі Мартінод 2013 року після експериментального обмеження венозного кровотоку тромб через 48 годин виявляли менш ніж у 10% тварин без PAD4 та у 90% тварин дикого типу. Це виражений ефект у конкретній моделі, узгоджений з участю нейтрофільного PAD4. Однак генетичний дефіцит у миші не дорівнює лікарському пригніченню в дорослої людини, а венозна модель не встановлює однакової ролі NETs у всіх мікротромбозах, артеріальних подіях та інфекціях.
Автоімунітет: експозиція антигенів і недостатнє видалення
При ревматоїдному артриті Кхандпур і колеги виявили посилене утворення NETs у досліджених нейтрофілах крові та синовіальної рідини й зв’язок з антитілами до цитрулінованих білків. Такі структури можуть показувати імунній системі змінені власні білки та підтримувати запальну відповідь синовіальних клітин. У зворотному напрямі антитіла й запальні сигнали можуть посилювати активність нейтрофілів. Це можлива петля підтримання хвороби, а не доказ єдиного первинного джерела автоантигенів чи однакового механізму в усіх пацієнтів.
При системному червоному вовчаку важливий також кліренс. Хаккім і колеги знайшли підгрупу сироваток пацієнтів, які погано руйнували NETs; це було пов’язано з ураженням нирок. Серед механізмів були пригнічення DNase I та антитіла, що обмежували доступ ферменту. Асоціація стосується підгрупи: її не можна переносити на кожного пацієнта чи видавати за самостійний діагностичний тест вовчакового нефриту.
DNASE1L3 додає інший рівень. У роботі Сісіріка та колег порушення видалення хроматину в мікрочастинках апоптотичних клітин сприяло автоімунітету. Дослідження включало генетичні моделі та матеріал пацієнтів. Позаклітинні власні антигени мають кілька джерел, тому проблема видалення хроматину не зводиться до NETs. При ANCA-асоційованому запаленні мієлопероксидаза й протеїназа-3 можуть брати участь в автоантигенних взаємодіях, але окремий NET-маркер також не замінює клінічної діагностики.
Розщеплення ДНК не дорівнює доведеному лікуванню
DNase I гідролізує фосфодіестерні зв’язки ДНК. Двовалентні іони підтримують структуру й каталіз: кальцій та магній виконують різні функції, а активність залежить від середовища й доступності хроматину. Розщеплення каркаса не нейтралізує автоматично гістони й протеази, не усуває причину запалення та не означає відновлення судинного бар’єра. Пригнічення утворення й прискорення видалення NETs — різні втручання з різними можливими наслідками для захисту організму.
Девіс і колеги провели 40-денне рандомізоване подвійне масковане плацебо-контрольоване дослідження фази Ib у 17 пацієнтів із вовчаковим нефритом. Групи отримували рекомбінантну людську DNase I у дозах 25 мкг/кг (8 осіб), 125 мкг/кг (6) або плацебо (3): спочатку одноразово внутрішньовенно, потім десять підшкірних введень. Метою були безпека й фармакокінетика; також оцінювали маркери активності. Гідролітично активні сироваткові концентрації досягалися після внутрішньовенного, але не підшкірного введення; оцінений період напіввиведення становив 3–4 години. Антитіла до ДНК, комплемент та інші виміряні маркери істотно не змінилися. Малі групи й коротка експозиція не дозволяють упевнено оцінити клінічну ефективність, але робота не підтверджує лікування нефриту самим руйнуванням позаклітинної ДНК.
Особливо важливий негативний результат в іншій популяції. О’Доннелл і колеги рандомізували 349 дорослих зі стабільними ідіопатичними бронхоектазами у 23 центрах у подвійному сліпому плацебо-контрольованому дослідженні. Інгаляційну рекомбінантну DNase I застосовували по 2,5 мг двічі на день 24 тижні. Первинні наслідки включали частоту легеневих загострень і зміну ОФВ₁. На активному лікуванні загострення були частішими, а зниження ОФВ₁ — більшим. Середня зміна ОФВ₁ становила −3,6% проти −1,7% на плацебо (p < 0,05); автори вважали клінічне значення невеликої різниці обмеженим. У розділі обговорення збільшення загальної частоти загострень не досягало статистичної значущості. Робота не досліджувала вибіркове видалення судинних NETs, але показує, чому ефект DNase в одній хворобі не можна переносити на іншу лише через подібність молекулярної мішені. Ці режими описують дослідження, а не інструкції для самолікування.
Інгібітори PAD4 та стратегії впливу на газдерміни залишаються дослідницькими напрямами; участь пороутворювальних білків також залежить від моделі. Гепарин впливає передусім на згортання й може взаємодіяти з компонентами NETs, але це не встановлює «антинетозної» дози для самолікування. Механістичні дані про куркумін, поліфеноли, омега-3 чи вітамін D не підтверджують універсальної профілактики тромбозу через пригнічення NETs. Потрібні клінічні наслідки та оцінка шкоди в конкретній популяції.
Що насправді вимірюють маркери
Вільна ДНК відображає кілька процесів ушкодження й видалення клітинного матеріалу. Комплекси MPO–ДНК ближчі до нейтрофільного контексту, але залежать від аналітичного методу та складу зразка. Цитрулінований H3 підтримує гіпотезу певного шляху перебудови хроматину; його відсутність не виключає всіх варіантів NETs. Поєднання морфології зі спільною локалізацією ДНК та нейтрофільних білків інформативніше за одну концентрацію, однак потребує розрізнення утворення, накопичення та сповільненого кліренсу.
На інтерпретацію впливають тип матеріалу, час відносно хвороби, супутнє лікування та обробка зразків. Підвищений маркер може бути наслідком тяжкого запалення, чинником підтримання ушкодження або поєднанням обох процесів. Клінічно корисний тест має показати, що додає до звичайної оцінки ризику і чи змінює ця інформація рішення та наслідки.
Харчування стосується ширшого контексту здоров’я, але не замінює дослідження NETs. Зв’язок харчових субстратів, мікробних метаболітів та імунних реакцій розглянуто в матеріалі про клітковину й коротколанцюгові жирні кислоти. Він допомагає відрізняти системні метаболічні зв’язки від доведеного лікування конкретного ферментного шляху. Для NETs потрібна та сама дисципліна: біохімічна правдоподібність, експериментальна причинність і користь пацієнту — послідовні, але окремі рівні доказів.
Часті питання
Чи завжди утворення NETs означає смерть нейтрофіла?
Ні. Потрібні дані про цілісність мембрани та долю клітини; один знімок позаклітинної ДНК цього не встановлює.
Чи є вільна ДНК специфічним маркером NETs?
Ні. Вона може походити з різних ушкоджених клітин; потрібні інші ознаки та врахування методу.
Чи доводить руйнування ДНК NETs лікувальну користь?
Ні. Руйнування каркаса не нейтралізує автоматично білки, а негативні клінічні випробування обмежують лікувальні висновки.
Джерела
- Brinkmann V, Reichard U, Goosmann C et al. Neutrophil extracellular traps kill bacteria. Science. 2004.
- Thiam HR, Wong SL, Qiu R et al. NETosis proceeds by cytoskeleton and endomembrane disassembly and PAD4-mediated chromatin decondensation and nuclear envelope rupture. Proc Natl Acad Sci U S A. 2020.
- Kenny EF, Herzig A, Krüger R et al. Diverse stimuli engage different neutrophil extracellular trap pathways. Elife. 2017.
- Arita K, Hashimoto H, Shimizu T et al. Structural basis for Ca(2+)-induced activation of human PAD4. Nat Struct Mol Biol. 2004.
- Papayannopoulos V, Metzler KD, Hakkim A et al. Neutrophil elastase and myeloperoxidase regulate the formation of neutrophil extracellular traps. J Cell Biol. 2010.
- Martinod K, Witsch T, Farley K et al. Neutrophil elastase-deficient mice form neutrophil extracellular traps in an experimental model of deep vein thrombosis. J Thromb Haemost. 2016.
- Fuchs TA, Brill A, Duerschmied D et al. Extracellular DNA traps promote thrombosis. Proc Natl Acad Sci U S A. 2010.
- Martinod K, Demers M, Fuchs TA et al. Neutrophil histone modification by peptidylarginine deiminase 4 is critical for deep vein thrombosis in mice. Proc Natl Acad Sci U S A. 2013.
- Khandpur R, Carmona-Rivera C, Vivekanandan-Giri A et al. NETs are a source of citrullinated autoantigens and stimulate inflammatory responses in rheumatoid arthritis. Sci Transl Med. 2013.
- Hakkim A, Fürnrohr BG, Amann K et al. Impairment of neutrophil extracellular trap degradation is associated with lupus nephritis. Proc Natl Acad Sci U S A. 2010.
- Sisirak V, Sally B, D'Agati V et al. Digestion of Chromatin in Apoptotic Cell Microparticles Prevents Autoimmunity. Cell. 2016.
- Davis JC, Manzi S, Yarboro C et al. Recombinant human Dnase I (rhDNase) in patients with lupus nephritis. Lupus. 1999.
- O'Donnell AE, Barker AF, Ilowite JS et al. Treatment of idiopathic bronchiectasis with aerosolized recombinant human DNase I. rhDNase Study Group. Chest. 1998.