
NETs: PAD4, trombosis inmunitaria y riesgos autoinmunitarios
Enzimología de PAD4, NOX2, mieloperoxidasa y elastasa; NETs en trombosis y autoinmunidad, eliminación de cromatina y ensayos negativos de DNase.
Enzimología de PAD4, NOX2, mieloperoxidasa y elastasa; NETs en trombosis y autoinmunidad, eliminación de cromatina y ensayos negativos de DNase.
Un neutrófilo puede destruir material ingerido dentro de un fagosoma, liberar el contenido de sus gránulos y formar estructuras extracelulares de cromatina y proteínas. Estas últimas se llaman trampas extracelulares de neutrófilos, o NETs. En el trabajo original de Brinkmann y colaboradores de 2004, retenían microorganismos y concentraban componentes antimicrobianos. Sin embargo, esa misma organización espacial puede retener plaquetas, dañar la barrera vascular y exponer antígenos nucleares propios al sistema inmunitario. La cuestión es dónde aparecen, en qué estado inflamatorio y cuánto tiempo persisten.
Las NETs son un objeto compuesto. El ADN aporta un andamiaje, las histonas participan en el empaquetamiento de la cromatina y la elastasa neutrofílica, la mieloperoxidasa y otras proteínas granulares añaden propiedades. Medir únicamente ADN libre no determina el origen de todo el material, la integridad del complejo ni su actividad enzimática. Una asociación entre un marcador y la gravedad de una enfermedad tampoco demuestra que reducirlo mejore los resultados clínicos.
Históricamente, «NETosis» describía un programa de descondensación de cromatina, ruptura de la envoltura nuclear y salida del contenido tras dañarse la membrana plasmática. Thiam y colaboradores observaron esa secuencia, con reorganización del citoesqueleto y las membranas intracelulares, en los sistemas celulares estudiados. La actividad de PAD4 y su localización nuclear fueron importantes para la descondensación y la ruptura de la envoltura. Esto describe un mecanismo concreto, no una secuencia idéntica en todos los tejidos humanos.
También se han descrito variantes de liberación de ADN extracelular sin muerte celular inmediata. La clasificación depende de si se midieron la integridad de membrana, el destino del neutrófilo y el origen del ADN. Por ello, «formación de NETs» suele ser más preciso que inferir muerte celular a partir de una imagen. El ADN extranuclear de otras células lesionadas, la necrosis convencional y las NETs pueden coexistir en un tejido inflamado; no deben confundirse en una sola cantidad.
Kenny y colaboradores compararon en 2017 distintas vías de formación de NETs en neutrófilos humanos, incluidas células de pacientes con defectos de NADPH oxidasa y déficit de mieloperoxidasa. La dependencia de reacciones oxidativas y enzimas granulares variaba según las condiciones estudiadas. Afirmar que una enzima es necesaria exige identificar el sistema celular y el contexto, en lugar de convertir el hallazgo en un esquema universal.
PAD4 es una peptidilarginina deiminasa. Convierte por hidrólisis un residuo de arginina de una proteína en citrulina: arginina proteica + H₂O → citrulina proteica + amoníaco, presente principalmente como amonio en condiciones fisiológicas. El grupo guanidinio con carga positiva de la arginina se sustituye por un grupo neutro de citrulina. Se modifica una cadena lateral; no se elimina una histona ni se corta el ADN.
El calcio participa en la conformación activa de PAD4. La enzima utiliza una cisteína catalítica y agua; NAD⁺ no se consume como cofactor de esta reacción. En el núcleo, la citrulinación de histonas puede debilitar las interacciones electrostáticas con el ADN de carga negativa y favorecer la descondensación. El empaquetamiento también depende de proteólisis, otras modificaciones de histonas y reorganizaciones estructurales. La histona H3 citrulinada es, por tanto, un indicio útil de determinadas vías, no un equivalente de cualquier complejo NET.
Hay que diferenciar esta reacción de las transformaciones de arginina libre en el metabolismo del nitrógeno. La sintasa de óxido nítrico utiliza arginina libre y otro sistema enzimático; compartir citrulina como producto no hace intercambiables las reacciones. Del mismo modo, la citrulina alimentaria no demuestra citrulinación de histonas ni justifica intervenir sobre NETs con un suplemento de aminoácidos.
NOX2 es un complejo multicomponente de NADPH oxidasa. Una vez ensamblado, los electrones del NADPH pasan por FAD y centros hemo hasta el oxígeno y generan superóxido. Sus componentes de membrana y citosólicos organizan espacialmente el proceso; las transformaciones posteriores de especies reactivas incluyen peróxido de hidrógeno. Estas reacciones pueden participar en señalización y defensa antimicrobiana, pero aumentar un indicador global de oxidación no demuestra formación de NETs.
La mieloperoxidasa es una enzima hemo de los gránulos. Utiliza peróxido de hidrógeno y, en presencia de cloruro, contribuye a formar ácido hipocloroso: H₂O₂ + Cl⁻ + H⁺ → HOCl + H₂O. A diferencia de PAD4, aquí cambia el estado de oxidación de los sustratos. La cantidad de mieloperoxidasa, su ubicación junto al ADN y su actividad catalítica son tres mediciones distintas. El entorno químico local y la disponibilidad de sustratos determinan qué reacciones ocurren realmente en el complejo extracelular.
La elastasa neutrofílica es una serinproteasa, no una deiminasa dependiente de calcio. En algunos modelos celulares humanos, su desplazamiento desde los gránulos al núcleo y el corte de histonas ayudan a descondensar cromatina. Papayannopoulos y colaboradores demostraron participación de elastasa y mieloperoxidasa en el mecanismo estudiado. Sin embargo, Martinod y colaboradores encontraron en 2016 que ratones sin elastasa seguían formando NETs en los contextos de inflamación estéril examinados, y el déficit no impedía la trombosis venosa experimental. Esto limita su universalidad sin eliminar su función en otras condiciones.
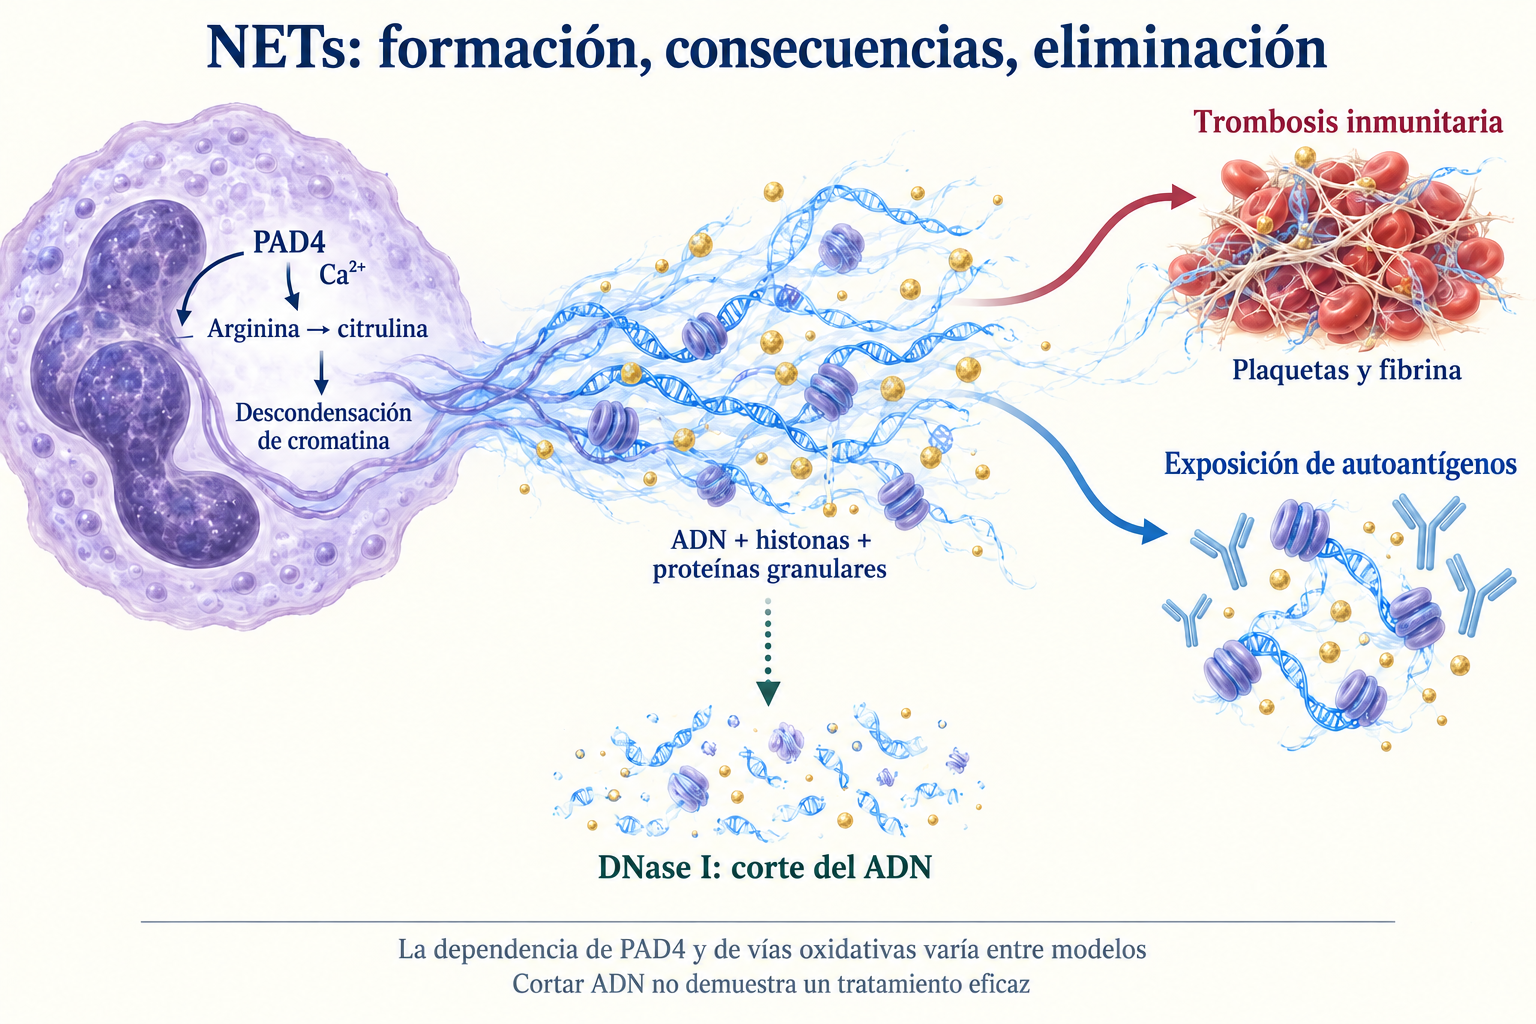
Las NETs pueden proporcionar una superficie de interacción entre plaquetas, eritrocitos, proteínas de coagulación y endotelio vascular. Fuchs y colaboradores demostraron en 2010 que estas estructuras favorecían adhesión y activación plaquetarias y depósito de fibrina en sistemas experimentales. Las histonas aisladas también ejercían efectos sobre plaquetas. Esto explica un posible vínculo entre inflamación y trombosis, pero no convierte cualquier ADN extracelular en un trombo completo.
La coagulación conserva su propia enzimología. Los factores XII y XI activados son serinproteasas; XIIa no debe describirse como una metaloproteinasa dependiente de zinc. La generación secuencial de IXa y Xa, la acción de los cofactores VIIIa y Va sobre superficies fosfolipídicas y la participación del calcio permiten generar trombina. Esta corta fibrinógeno, mientras XIIIa estabiliza fibrina mediante enlaces cruzados. El andamiaje de ADN y la red de fibrina pueden interactuar, pero son estructuras moleculares distintas.
La vía de contacto, las superficies celulares, el factor tisular y la lesión endotelial contribuyen de forma diferente según la enfermedad. La presencia de NETs no demuestra que los neutrófilos sintetizaran factor tisular ni que todos los mecanismos anticoagulantes naturales estén completamente desactivados. Algunas proteínas pueden unirse a una superficie desde el exterior; medirlas en plasma no identifica su origen celular.
En el estudio murino de Martinod de 2013, tras restringirse experimentalmente el flujo venoso, a las 48 horas se detectó trombo en menos del 10% de animales sin PAD4 frente al 90% de animales de tipo silvestre. Es un efecto importante en un modelo concreto, compatible con participación de PAD4 neutrofílico. Sin embargo, un déficit genético en ratones no equivale a inhibición farmacológica en humanos adultos, y un modelo venoso no establece una función idéntica en toda microtrombosis, evento arterial o infección.
En artritis reumatoide, Khandpur y colaboradores encontraron formación aumentada de NETs en los neutrófilos de sangre y líquido sinovial estudiados, asociada a anticuerpos contra proteínas citrulinadas. Estas estructuras pueden exponer proteínas propias modificadas y mantener respuestas inflamatorias de células sinoviales. A su vez, anticuerpos y señales inflamatorias pueden incrementar la actividad neutrofílica. Es un posible circuito de mantenimiento de la enfermedad, no una prueba de que las NETs sean la única fuente inicial de autoantígenos o de que todos los pacientes compartan el mecanismo.
En lupus eritematoso sistémico también importa la eliminación. Hakkim y colaboradores identificaron un subgrupo de sueros de pacientes que degradaban mal las NETs, asociado a afectación renal. Entre los mecanismos estaban la inhibición de DNase I y anticuerpos que restringían el acceso de la enzima. La asociación pertenece a un subgrupo: no se puede extrapolar a cada paciente ni presentar como prueba diagnóstica independiente de nefritis lúpica.
DNASE1L3 añade otra capa. En el trabajo de Sisirak y colaboradores, la eliminación defectuosa de cromatina en micropartículas de células apoptóticas contribuía a la autoinmunidad. El estudio incluyó modelos genéticos y material de pacientes. Demuestra que los antígenos propios extracelulares tienen varias fuentes; el problema de eliminar cromatina no se reduce a NETs. En inflamación asociada a ANCA, mieloperoxidasa y proteinasa-3 pueden participar en interacciones autoantigénicas, pero un marcador NET aislado tampoco sustituye el diagnóstico clínico.
DNase I hidroliza enlaces fosfodiéster del ADN. Los iones divalentes sostienen estructura y catálisis: calcio y magnesio cumplen funciones diferentes, y la actividad depende del entorno y la accesibilidad de la cromatina. Cortar el andamiaje no neutraliza automáticamente histonas y proteasas, no elimina la causa inflamatoria ni restaura necesariamente la barrera vascular. Suprimir formación y acelerar eliminación son intervenciones distintas, con consecuencias potencialmente diferentes para la defensa del organismo.
Davis y colaboradores realizaron un ensayo fase Ib de 40 días, aleatorizado, con doble enmascaramiento y placebo, en 17 pacientes con nefritis lúpica. Se administró DNase I humana recombinante a 25 µg/kg (8 pacientes), 125 µg/kg (6) o placebo (3): una dosis intravenosa inicial y diez dosis subcutáneas posteriores. Los objetivos eran seguridad y farmacocinética; también se evaluaron marcadores de actividad. Se alcanzaron concentraciones séricas con actividad hidrolítica tras administración intravenosa, pero no subcutánea; la semivida estimada fue de 3–4 horas. Anticuerpos anti-ADN, complemento y otros marcadores medidos no cambiaron apreciablemente. Los grupos pequeños y la exposición breve impiden estimar con confianza eficacia clínica, pero el ensayo no demuestra tratamiento de nefritis mediante degradación aislada de ADN extracelular.
Es especialmente importante un resultado negativo en otra población. O’Donnell y colaboradores aleatorizaron a 349 adultos con bronquiectasias idiopáticas estables en 23 centros, en un ensayo doble ciego con placebo. Se administró DNase I recombinante inhalada a 2,5 mg dos veces al día durante 24 semanas. Los desenlaces primarios incluían frecuencia de exacerbaciones pulmonares y cambio del FEV₁. Con tratamiento activo hubo más exacerbaciones y mayor disminución del FEV₁. El cambio medio fue −3,6% frente a −1,7% con placebo (p < 0,05); los autores consideraron limitada la relevancia clínica de la pequeña diferencia. En la discusión, el aumento de la frecuencia total de exacerbaciones no alcanzó significación estadística. No se evaluó eliminación selectiva de NETs vasculares, pero el resultado muestra por qué el efecto de DNase en una enfermedad no puede trasladarse a otra solo por similitud de la diana molecular. Los regímenes descritos corresponden a ensayos, no a instrucciones de automedicación.
Los inhibidores de PAD4 y las estrategias dirigidas a gasderminas siguen siendo líneas de investigación; la participación de proteínas formadoras de poros también depende del modelo. La heparina afecta principalmente a coagulación y puede interactuar con componentes NET, sin establecer por ello una dosis «anti-NETosis» para automedicación. Los datos mecanísticos sobre curcumina, polifenoles, omega-3 o vitamina D no demuestran prevención universal de trombosis mediante supresión de NETs. Esa conclusión necesita desenlaces clínicos y evaluación de daños en una población definida.
El ADN libre refleja varios procesos de lesión y eliminación de material celular. Los complejos MPO–ADN son más cercanos al contexto neutrofílico, pero dependen del método analítico y la composición de la muestra. H3 citrulinada apoya la participación de una vía concreta de reorganización de cromatina; su ausencia no excluye todas las formas NET. Combinar morfología y colocalización del ADN con proteínas neutrofílicas informa más que una concentración aislada, aunque exige distinguir formación, acumulación y eliminación retrasada.
El tipo de material, el momento respecto a la enfermedad, el tratamiento concomitante y la manipulación de muestras afectan la interpretación. Un marcador elevado puede ser consecuencia de inflamación grave, contribuir a mantener lesión o reflejar ambos fenómenos. Una prueba clínicamente útil debe demostrar qué añade a la evaluación habitual de riesgo y si esa información cambia decisiones y resultados.
La nutrición pertenece a un contexto de salud más amplio, pero no sustituye directamente el estudio de NETs. La relación entre sustratos alimentarios, metabolitos microbianos y respuesta inmunitaria se desarrolla en el artículo sobre fibra y ácidos grasos de cadena corta. Ayuda a distinguir conexiones metabólicas sistémicas del tratamiento demostrado de una vía enzimática concreta. Las NETs requieren la misma disciplina: plausibilidad bioquímica, causalidad experimental y beneficio para pacientes son niveles de evidencia sucesivos y distintos.
No. Se necesitan datos de integridad de membrana y destino celular; una imagen de ADN extracelular no lo establece.
No. Puede proceder de distintas células lesionadas; hacen falta otros indicios y considerar el método analítico.
No. Degradar el andamiaje no neutraliza automáticamente proteínas, y los ensayos negativos limitan la extrapolación terapéutica.