
NETs: PAD4, иммундық тромбоз және аутоиммундық қауіптер
PAD4, NOX2, миелопероксидаза және эластаза ферментологиясы; NETs, тромбоз, аутоиммунитет, хроматин клиренсі және DNase теріс сынақтары.
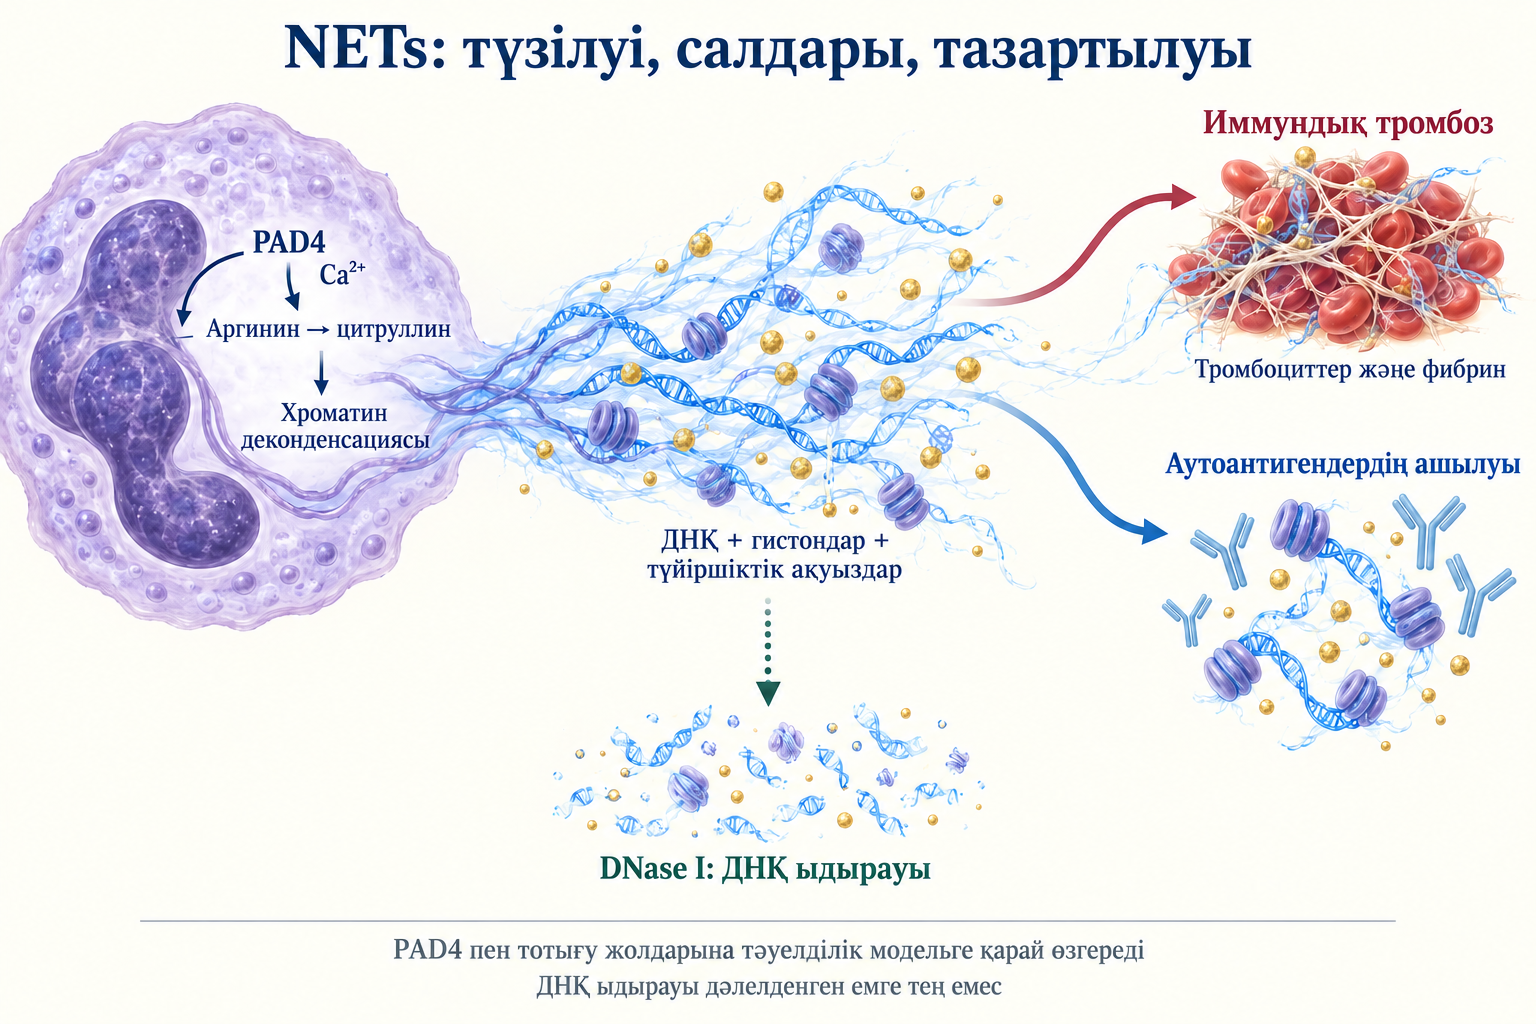
Нейтрофил жұтылған материалды фагосома ішінде жоя алады, түйіршіктерінің құрамын бөледі және хроматин мен ақуыздардан жасушадан тыс құрылымдар түзеді. Соңғылары нейтрофилдердің жасушадан тыс тұзақтары, яғни NETs деп аталады. Бринкман және әріптестерінің 2004 жылғы алғашқы жұмысында бұл құрылымдар микроорганизмдерді байланыстырып, микробқа қарсы құрамдастарды шоғырландырған. Бірақ сол кеңістіктік ұйымдасу тромбоциттерді ұстап, тамыр тосқауылын зақымдап, иммундық жүйеге ағзаның өз ядролық антигендерін көрсетуі мүмкін. Сондықтан олардың қай жерде, қандай қабыну жағдайында және қанша уақыт сақталатыны маңызды.
NETs — бірнеше құрамдастан тұратын нысан. ДНҚ қаңқа қызметін атқарады, гистондар хроматиннің қапталуына қатысады, ал нейтрофил эластазасы, миелопероксидаза және басқа түйіршіктік ақуыздар қосымша қасиет береді. Тек бос ДНҚ-ны өлшеу барлық материалдың шығу тегін, кешеннің тұтастығын немесе ферменттік белсенділігін анықтамайды. Маркер мен ауру ауырлығының байланысы да маркерді азайту клиникалық нәтижені жақсартатынын дәлелдемейді.
NETs түзілуі жасуша өлімінің бір ғана түрі емес
«Нетоз» атауы тарихи түрде хроматин деконденсацияланып, ядро қабығы ыдырайтын және плазмалық мембрана зақымданғаннан кейін жасуша құрамы сыртқа шығатын бағдарламаға қатысты қолданылған. Тиам және әріптестері зерттеген жасушалық жүйелерде цитоскелет пен жасушаішілік мембраналардың қайта құрылуымен осындай реттілікті көрсеткен. PAD4 белсенділігі мен оның ядрода орналасуы хроматин деконденсациясы және ядро қабығының бұзылуы үшін маңызды болған. Бұл нақты механизмнің сипаттамасы; адамның барлық тінінде бірдей реттілік бар деген дәлел емес.
Әдебиетте жасуша бірден өлмей-ақ жасушадан тыс ДНҚ бөлетін нұсқалар да сипатталған. Жіктеу мембрана тұтастығы, нейтрофилдің кейінгі тағдыры және ДНҚ шығу тегі өлшенгеніне байланысты. Сондықтан бір суреттен жасуша өлімін тұжырымдағаннан гөрі «NETs түзілуі» деген бейтарап атау жиі дәлірек. Қабынған тінде басқа зақымданған жасушалардың ядродан тыс ДНҚ-сы, кәдімгі некроз және NETs қатар болуы мүмкін; оларды бір шамаға біріктіруге болмайды.
Кенни және әріптестері 2017 жылы адам нейтрофилдеріндегі әртүрлі NETs түзілу жолдарын, соның ішінде NADPH-оксидаза ақауы мен миелопероксидаза тапшылығы бар пациенттердің жасушаларын салыстырған. Тотығу реакцияларына және түйіршіктік ферменттерге тәуелділік зерттелген жағдайлар арасында өзгерген. Сондықтан фермент міндетті деген тұжырым жасушалық жүйе мен жағдайды көрсетуі керек; оны әмбебап сызбаға айналдыруға болмайды.
PAD4 ақуыздағы аргининді өзгертеді, азот оксидін синтездемейді
PAD4 — пептидиларгинин деиминазасы. Ол ақуыздағы аргинин қалдығын гидролиз арқылы цитруллин қалдығына айналдырады: ақуыздық аргинин + H₂O → ақуыздық цитруллин + аммиак; физиологиялық ортада аммиак негізінен аммоний түрінде болады. Аргининнің оң зарядты гуанидиний тобы цитруллиннің бейтарап тобына ауысады. Бұл бір бүйір тізбектің өзгеруі; гистонды алып тастау немесе ДНҚ-ны үзу емес.
Кальций PAD4-тің белсенді конформациясын қалыптастыруға қатысады. Фермент катализдік цистеин мен суды пайдаланады; бұл реакцияда NAD⁺ кофактор ретінде жұмсалмайды. Ядрода гистондардың цитруллинденуі теріс зарядты ДНҚ-мен электростатикалық байланыстарды әлсіретіп, хроматин деконденсациясына көмектесуі мүмкін. Алайда қапталуға протеолиз, гистондардың басқа модификациялары және құрылымдық өзгерістер де әсер етеді. Сондықтан цитруллинденген H3 гистоны белгілі жолдардың бір белгісі, кез келген NET кешенінің баламасы емес.
Бұл реакцияны азот алмасуындағы бос аргининнің өзгерістерінен ажырату қажет. Азот оксиді синтазасы бос аргининді және басқа ферменттік жүйені қолданады; өнімдерінде цитруллиннің болуы реакцияларды өзара алмастырмайды. Сол сияқты тағамдық цитруллин гистон цитруллинденуінің дәлелі емес және NETs-ке аминқышқыл қоспасымен әсер етуді негіздемейді.
NOX2, миелопероксидаза және эластаза әртүрлі бөлімдерде әрекет етеді
NOX2 — NADPH-оксидазаның көп құрамдасты кешені. Жиналған кешенде NADPH электрондары FAD және гем орталықтары арқылы оттекке өтіп, супероксид түзеді. Мембраналық және цитозольдік құрамдастар процесті кеңістікте ұйымдастырады; оттектің белсенді түрлерінің кейінгі өзгерістеріне сутек пероксидінің түзілуі кіреді. Бұл реакциялар сигнал беруге және микробқа қарсы қызметке қатыса алады, бірақ жалпы тотығу көрсеткішінің артуы NETs түзілгенін дәлелдемейді.
Миелопероксидаза — түйіршіктердегі гем ферменті. Ол сутек пероксидін пайдаланып, хлорид болғанда гипохлорлы қышқыл түзілуіне ықпал етеді: H₂O₂ + Cl⁻ + H⁺ → HOCl + H₂O. PAD4-тен айырмашылығы, мұнда субстраттардың тотығу күйі өзгереді. Миелопероксидазаның мөлшері, оның ДНҚ жанында орналасуы және катализдік белсенділігі — үш бөлек өлшем. Жергілікті химиялық орта мен субстраттардың қолжетімділігі жасушадан тыс кешенде нақты қандай реакциялар жүретінін анықтайды.
Нейтрофил эластазасы — кальцийге тәуелді деиминаза емес, серин протеазасы. Кейбір адам жасушалық модельдерінде оның түйіршіктерден ядроға жылжуы және гистондарды ыдыратуы деконденсацияға көмектеседі. Папаяннопулос және әріптестері зерттеген механизмде эластаза мен миелопероксидазаның қатысуын көрсеткен. Бірақ Мартинод және әріптестерінің 2016 жылғы жұмысында эластазасы жоқ тышқандар зерттелген стерильді қабыну жағдайларында NETs түзген, ал фермент тапшылығы тәжірибелік веналық тромбозды тоқтатпаған. Бұл басқа жағдайлардағы рөлін жоққа шығармай, әмбебаптығын шектейді.
Хроматин тромбқа қалай қатысады
NETs тромбоциттер, эритроциттер, ұю ақуыздары және тамыр эндотелийі арасындағы өзара әрекетке беткей жасай алады. Фукс және әріптестерінің 2010 жылғы жұмысында жасушадан тыс тұзақтар тәжірибелік жүйелерде тромбоцит жабысуын, белсенуін және фибриннің жиналуын қолдаған. Жеке гистондар да тромбоциттерге әсер еткен. Бұл қабыну мен тромб түзілуінің ықтимал байланысын түсіндіреді, бірақ кез келген жасушадан тыс ДНҚ-ны толық тромбқа айналдырмайды.
Ұюдың өз ферментологиясы сақталады. Белсенген XII және XI факторлары — серин протеазалары; XIIa-ны мырышқа тәуелді металлопротеиназа деп сипаттауға болмайды. IXa мен Xa белсенді протеазаларының біртіндеп түзілуі, VIIIa және Va кофакторларының фосфолипид беткейлерінде әрекеті және кальцийдің қатысуы тромбин түзілуін қамтамасыз етеді. Тромбин фибриногенді ыдыратады, XIIIa фибринді айқас байланыстармен тұрақтандырады. ДНҚ қаңқасы мен фибрин торы өзара әрекеттескенімен, молекулалық құрылымдары бөлек.
Контакт жолының, жасушалық беткейлердің, тіндік фактордың және эндотелий зақымының үлесі ауруға қарай өзгереді. NETs бар болғанынан нейтрофилдер тіндік фактор синтездегенін немесе барлық табиғи антикоагулянт механизмдері толық өшкенін тұжырымдауға болмайды. Ақуыздардың бір бөлігі беткейге сырттан байланысуы мүмкін; плазмадағы өлшем олардың жасушалық көзін анықтамайды.
Мартинодтың 2013 жылғы тышқан зерттеуінде веналық қан ағымы тәжірибелік шектелгеннен кейін 48 сағатта тромб PAD4 жоқ жануарлардың 10%-дан азында және жабайы типтің 90%-ында табылған. Бұл нақты модельдегі айқын әсер нейтрофил PAD4-інің қатысуымен үйлеседі. Алайда тышқандағы генетикалық тапшылық ересек адамда дәрімен тежеуге тең емес; веналық модель барлық микротромбозда, артериялық оқиғада және инфекцияда бірдей рөлді анықтамайды.
Аутоиммунитет: антигендердің ашылуы және жеткіліксіз тазарту
Ревматоидты артритте Кхандпур және әріптестері зерттеген қан мен синовиальды сұйықтық нейтрофилдерінде NETs түзілуінің артуын және цитруллинденген ақуыздарға антиденелермен байланысын тапқан. Бұл құрылымдар иммундық жүйеге өзгерген өзіндік ақуыздарды көрсетіп, синовиальды жасушалардың қабыну жауабын қолдауы мүмкін. Кері бағытта антиденелер мен қабыну сигналдары нейтрофил белсенділігін арттыра алады. Бұл ауруды қолдайтын ықтимал цикл, NETs аутоантигендердің жалғыз бастапқы көзі немесе барлық пациенттің механизмі бірдей деген дәлел емес.
Жүйелі қызыл жегіде клиренс те маңызды. Хакким және әріптестері NETs-ті нашар ыдырататын пациент сарысуларының кіші тобын анықтаған; бұл бүйрек зақымымен байланысты болған. Механизмдерге DNase I тежелуі және ферменттің құрылымға жетуін шектейтін антиденелер кірген. Байланыс кіші топқа қатысты, сондықтан оны әр пациентке таратуға немесе жегілік нефриттің дербес диагностикалық тесті ретінде көрсетуге болмайды.
DNASE1L3 тағы бір деңгейді қосады. Сисирик және әріптестерінің жұмысында апоптоздық жасушалар микробөлшектеріндегі хроматинді тазарту бұзылуы аутоиммунитетке ықпал еткен. Жұмыста генетикалық модельдер мен пациент материалы қолданылған. Өзіндік жасушадан тыс антигендердің бірнеше көзі бар; хроматинді тазарту мәселесі түгелдей NETs-пен шектелмейді. ANCA-мен байланысты қабынуда миелопероксидаза және протеиназа-3 аутоантигендік әрекеттерге қатыса алады, бірақ жеке NET маркері клиникалық диагнозды алмастырмайды.
ДНҚ ыдырауы аурудың дәлелденген еміне тең емес
DNase I ДНҚ-ның фосфодиэфир байланыстарын гидролиздейді. Екі валентті иондар құрылым мен катализді қолдайды: кальций мен магнийдің қызметтері әртүрлі, ал нақты белсенділік орта мен хроматиннің қолжетімділігіне тәуелді. Қаңқаны үзу гистондар мен протеазаларды автоматты түрде бейтараптандырмайды, қабыну себебін жоймайды және тамыр тосқауылы қалпына келді дегенді білдірмейді. NETs түзілуін тежеу мен тазартуды жеделдету — ағза қорғанысына ықтимал салдары әртүрлі араласулар.
Дэвис және әріптестері жегілік нефриті бар 17 пациентте 40 күндік рандомизацияланған, қосарлы маскаланған, плацебомен бақыланатын Ib фазалы сынақ жүргізген. Топтар рекомбинантты адам DNase I препаратын 25 мкг/кг (8 адам), 125 мкг/кг (6 адам) немесе плацебо (3 адам) алған: алдымен бір рет көктамырға, кейін тері астына он рет енгізілген. Мақсат қауіпсіздік пен фармакокинетика болған, белсенділік маркерлері де бағаланған. Сарысуда гидролизге қабілетті концентрациялар көктамырлық енгізуден кейін жеткен, тері астына енгізгенде жетпеген; жартылай шығарылу кезеңі 3–4 сағат деп бағаланған. ДНҚ-ға антиденелер, комплемент және басқа өлшенген маркерлер елеулі өзгермеген. Шағын топтар мен қысқа экспозиция клиникалық тиімділікті сенімді бағалатпайды, бірақ жұмыс жасушадан тыс ДНҚ-ны ғана бұзу нефритті емдейтінін растамайды.
Басқа популяциядағы теріс нәтиже ерекше маңызды. О’Доннелл және әріптестері 23 орталықта тұрақты идиопатиялық бронхоэктазы бар 349 ересекті қосарлы соқыр, плацебомен бақыланатын сынақта рандомизациялаған. Ингаляциялық рекомбинантты DNase I 24 апта бойы күніне екі рет 2,5 мг қолданылған. Бастапқы нәтижелерге өкпе өршуінің жиілігі және FEV₁ өзгерісі кірген. Белсенді емде өршу жиірек, FEV₁ төмендеуі көбірек болған. FEV₁ орташа өзгерісі плацебодағы −1,7%-бен салыстырғанда −3,6% болған (p < 0,05); авторлар шағын айырманың клиникалық маңызы шектеулі екенін атап өткен. Талқылауда жалпы өршу жиілігінің артуы статистикалық мәнділікке жетпеген. Жұмыс тамырлық NETs-ті селективті тазартуды тексермеген, бірақ молекулалық нысана ұқсастығының өзі DNase әсерін бір аурудан екіншісіне көшіруге жеткіліксіз екенін көрсетеді. Бұл режимдер сынақтарды сипаттайды, өздігінен емделу нұсқауы емес.
PAD4 тежегіштері және газдерминдерге бағытталған стратегиялар зерттеу бағыттары болып қалады; кеуек түзетін ақуыздардың қатысуы да модельге байланысты. Гепарин алдымен ұю жүйесіне әсер етеді әрі NET құрамдастарымен әрекеттесе алады, бірақ бұл өздігінен емделуге арналған «антинетоздық» дозаны анықтамайды. Куркумин, полифенолдар, омега-3 немесе D дәрумені туралы механизмдік деректер NETs тежеу арқылы тромбоздың әмбебап алдын алуын дәлелдемейді. Нақты популяцияда клиникалық нәтижелер мен зиянды бағалау қажет.
Маркерлер нақты нені өлшейді
Бос ДНҚ жасушалық материалдың зақымдануы мен тазартылуының бірнеше процесін көрсетеді. MPO–ДНҚ кешендері нейтрофил контексіне жақынырақ, бірақ аналитикалық әдіс пен үлгі құрамына тәуелді. Цитруллинденген H3 хроматин қайта құрылуының белгілі жолына сәйкес келеді; оның болмауы барлық NET нұсқаларын жоққа шығармайды. Морфологияны ДНҚ мен нейтрофил ақуыздарының бірге орналасуымен салыстыру бір концентрациядан ақпараттырақ, бірақ түзілу, жиналу және баяу клиренсті ажыратуды талап етеді.
Материал түрі, ауруға қатысты уақыт, қатар қолданылған ем және үлгіні өңдеу түсіндіруге әсер етеді. Жоғары маркер ауыр қабынудың салдары, зақымды қолдайтын фактор немесе екеуінің қосындысы болуы мүмкін. Клиникалық пайдалы тест әдеттегі қауіп бағасына қандай ақпарат қосатынын және сол ақпарат шешім мен нәтижені өзгерте ме, соны көрсетуі тиіс.
Тамақтану денсаулықтың кеңірек контексіне қатысты, бірақ NETs зерттеуін тікелей алмастырмайды. Тағамдық субстраттар, микроб метаболиттері және иммундық реакциялар байланысы талшық пен қысқа тізбекті май қышқылдары туралы мақалада қаралған. Ол жүйелік метаболизм байланысын нақты фермент жолының дәлелденген емінен ажыратуға көмектеседі. NETs үшін де сол тәртіп керек: биохимиялық қисындылық, тәжірибелік себептілік және пациент пайдасы — ретімен келетін, бірақ бөлек дәлел деңгейлері.
Жиі қойылатын сұрақтар
NETs түзілуі әрдайым нейтрофил өлімін білдіре ме?
Жоқ. Мембрана тұтастығы мен жасуша тағдыры туралы дерек қажет; жасушадан тыс ДНҚ-ның бір суреті мұны анықтамайды.
Бос ДНҚ NETs-тің арнайы маркері ме?
Жоқ. Ол әртүрлі зақымданған жасушадан шығуы мүмкін; басқа белгілер мен әдісті ескеру керек.
NET ДНҚ ыдырауы ем пайдасын дәлелдей ме?
Жоқ. Қаңқа ыдырауы ақуыздарды автоматты бейтараптандырмайды; теріс клиникалық сынақтар емге көшіруді шектейді.
Дереккөздер
- Brinkmann V, Reichard U, Goosmann C et al. Neutrophil extracellular traps kill bacteria. Science. 2004.
- Thiam HR, Wong SL, Qiu R et al. NETosis proceeds by cytoskeleton and endomembrane disassembly and PAD4-mediated chromatin decondensation and nuclear envelope rupture. Proc Natl Acad Sci U S A. 2020.
- Kenny EF, Herzig A, Krüger R et al. Diverse stimuli engage different neutrophil extracellular trap pathways. Elife. 2017.
- Arita K, Hashimoto H, Shimizu T et al. Structural basis for Ca(2+)-induced activation of human PAD4. Nat Struct Mol Biol. 2004.
- Papayannopoulos V, Metzler KD, Hakkim A et al. Neutrophil elastase and myeloperoxidase regulate the formation of neutrophil extracellular traps. J Cell Biol. 2010.
- Martinod K, Witsch T, Farley K et al. Neutrophil elastase-deficient mice form neutrophil extracellular traps in an experimental model of deep vein thrombosis. J Thromb Haemost. 2016.
- Fuchs TA, Brill A, Duerschmied D et al. Extracellular DNA traps promote thrombosis. Proc Natl Acad Sci U S A. 2010.
- Martinod K, Demers M, Fuchs TA et al. Neutrophil histone modification by peptidylarginine deiminase 4 is critical for deep vein thrombosis in mice. Proc Natl Acad Sci U S A. 2013.
- Khandpur R, Carmona-Rivera C, Vivekanandan-Giri A et al. NETs are a source of citrullinated autoantigens and stimulate inflammatory responses in rheumatoid arthritis. Sci Transl Med. 2013.
- Hakkim A, Fürnrohr BG, Amann K et al. Impairment of neutrophil extracellular trap degradation is associated with lupus nephritis. Proc Natl Acad Sci U S A. 2010.
- Sisirak V, Sally B, D'Agati V et al. Digestion of Chromatin in Apoptotic Cell Microparticles Prevents Autoimmunity. Cell. 2016.
- Davis JC, Manzi S, Yarboro C et al. Recombinant human Dnase I (rhDNase) in patients with lupus nephritis. Lupus. 1999.
- O'Donnell AE, Barker AF, Ilowite JS et al. Treatment of idiopathic bronchiectasis with aerosolized recombinant human DNase I. rhDNase Study Group. Chest. 1998.