
Каталаза й пероксисоми: гемовий каталіз, кінетика H₂O₂ та межі клінічного застосування
Структура каталази й NADPH, імпорт PEX5, ACOX1 та H₂O₂, два каталітичні маршрути, мережа GPx/Prx, акаталаземія, rs1001179 і межі висновків із mCAT-мишей.
Структура каталази й NADPH, імпорт PEX5, ACOX1 та H₂O₂, два каталітичні маршрути, мережа GPx/Prx, акаталаземія, rs1001179 і межі висновків із mCAT-мишей.
Каталаза розв’язує незвичайне редокс-завдання: використовує дві молекули пероксиду водню для утворення води й кисню без стехіометричної витрати глутатіону або тіоредоксину. Проте швидкість очищеного ферменту сама по собі не визначає захист клітини. Важливі місце утворення H₂O₂, доступ субстрату, розподіл каталази та стан паралельних пероксидаз. Поєднання хімічного механізму з компартменталізацією пояснює роль пероксисом і результати мишей із мітохондріально спрямованою каталазою.
H₂O₂ — активна форма кисню, але не вільний радикал. Він утворюється безпосередньо в оксидазних реакціях і після дисмутації супероксиду супероксиддисмутазами. Нейтральна молекула переміщується між компартментами; деякі аквапорини полегшують мембранне перенесення. Тривалість існування та концентрація залежать від місцевих джерел і поглиначів, тому єдиного клітинного періоду напівжиття немає.
Зворотне окиснення чутливих цистеїнів регулює фосфатази, кінази й транскрипцію. Нерідко сигнал передають пероксиредоксинові редокс-реле, а не пряме зіткнення H₂O₂ з кожним білком-мішенню. Еустрес і дистрес описують фізіологічний результат, а не універсальні інтервали «1–10 нМ» і «понад 100 нМ». Значення виміряної величини залежить від сенсора, калібрування, компартмента й тривалості експозиції.
За наявності лабільного заліза H₂O₂ може утворювати надзвичайно реакційноздатні продукти реакції Фентона:
Пошкодження визначають також доступність металу та відстань до ліпідів, білків або ДНК. Натомість пероксинітрит утворюється переважно з NO та супероксиду; приписувати його прямій реакції NO з H₂O₂ неправильно. Це важливо для порівняння з гіпотезами про селективну дію молекулярного водню: різні ROS не є взаємозамінними субстратами.
Каталаза людини, EC 1.11.1.6, зазвичай утворює гомотетрамер із симетрією D₂ і масою близько 240 кДа. Канонічна послідовність містить 527 амінокислот. N-кінцевий рукав бере участь у контактах субодиниць, центральний β-бочонковий домен формує основне укладання, обгортальна ділянка підтримує гемову область, а C-кінцевий спіральний домен бере участь у поверхневій організації та зв’язуванні нуклеотиду. Домени описують структуру, а не окремі автономні ферменти.
Putnam і співавтори досліджували активні та інгібовані структури. Запис PDB 1DGB має роздільну здатність 2,20 Å; згадка в статті структури 1,5 Å не надає такої роздільної здатності 1DGB. Довжина депонованого кристалічного ланцюга й кількість видимих залишків також можуть відрізнятися від повної послідовності. Відсутність ділянки в координатах не доводить її відсутності в живому білку.
Кожна функціональна субодиниця містить гем b — протопорфірин IX із залізом. У стані спокою залізо переважно є Fe(III). Проксимальний ліганд Tyr357, стабілізований оточенням за участю Arg353, відрізняє каталазу від багатьох гемопротеїнів із гістидиновим лігандом. На дистальному боці His74 бере участь у кислотно-основному каталізі, а Asn147 допомагає орієнтувати пероксид і водневі зв’язки.
Гем розташований глибоко в білку. Канал завдовжки приблизно 25–30 Å та організовані молекули води обмежують доступ і розпізнавання субстрату. Це складніше за фільтр діаметра: мутація, яка збільшує отвір, може знизити ефективність каталізу. Каталаза працює передусім із H₂O₂ та деякими малими донорами; вона не замінює GPx4 у відновленні гідропероксидів фосфоліпідів усередині мембран.
Класичні роботи Kirkman і Gaetani показали міцне зв’язування NADPH із каталазою ссавців, до однієї молекули на субодиницю. Кишеня лежить поза основним гемовим центром, на відстані близько двох нанометрів. Зв’язаний нуклеотид має незвичайне укладання порівняно з типовими дегідрогеназами.
NADPH не є обов’язковим донором кожного каталазного обороту. Захисна функція пов’язана з обмеженням накопичення малоактивної Сполуки II та інших побічних станів. Експериментальна кінетика допускає складніші маршрути, ніж обов’язкове пряме відновлення вже утвореної Сполуки II. Тож схема «NADPH віддає електрон, а G6PD регенерує радикал NADP» не є встановленим універсальним циклом: G6PD відновлює NADP⁺ у пентозофосфатному шляху. Відсутність стехіометричної витрати NADPH в основній реакції не означає повної незалежності білка від редокс-стану клітини.
Пероксисоми мають одну мембрану й не містять власного геному. Матриксні білки синтезуються на цитозольних рибосомах; доставка мембранних білків відрізняється й не повинна автоматично описуватися тим самим шляхом. Канонічний C-кінцевий PTS1 — SKL. У людської каталази сигнал слабший і включає термінальний KANL. Його розпізнає PEX5, однак доступність сигналу, інші ділянки білка й стан рецептора також впливають на імпорт. PTS2 використовує PEX7 та відповідні корецептори.
PEX5 взаємодіє із системою докінгу PEX14/PEX13. Після доставки вантажу моноубіквітинування пов’язане з вилученням рецептора ААА-АТФазами PEX1/PEX6 і поверненням до цитозолю; беруть участь PEX2/PEX10/PEX12 та мембранні якорі. Здатність імпортувати згорнуті білки й деякі олігомери не доводить, що каталаза завжди входить готовим тетрамером. Freitas показав зв’язування PEX5 із мономерною каталазою, гальмування тетрамеризації та вивільнення за взаємодії з PEX14. Інші системи допускають імпорт тетрамера; шлях залежить від експериментальних умов. Дріжджовий PEX17 також не є обов’язковою частиною людського докінгу.
Дефекти PEX спричиняють спектр порушень біогенезу пероксисом, зокрема синдром Цельвегера. Помилковий розподіл каталази — одна з ознак, але тяжкість зумовлена численними порушеннями ліпідного обміну, а не лише втратою «каталазного бар’єра».
Пероксисомальне β-окиснення особливо важливе для дуже довгих жирних кислот, зокрема C₂₄–C₂₆. Білки ABCD беруть участь у доставці субстратів; ABCD1 пов’язаний з X-зчепленою адренолейкодистрофією. ACOX1 містить FAD і передає електрони кисню з утворенням H₂O₂, на відміну від мітохондріальних ацил-КоА-дегідрогеназ, пов’язаних із ETF та дихальним ланцюгом.
Одна молекула H₂O₂ відповідає одному оксидазному кроку, а не повному розщепленню жирної кислоти. Подальші гідратація, NAD⁺-залежне окиснення й тіоліз укорочують ланцюг; продукти можуть продовжити метаболізм у мітохондріях. Розгалужені кислоти потребують інших шляхів: фітанова кислота спочатку проходить α-окиснення, а PHYH — Fe(II)/2-оксоглутарат-залежна гідроксилаза, не просто ще одна H₂O₂-продукувальна флавіноксидаза. Оксидаза D-амінокислот може утворювати H₂O₂, тоді як активної уратоксидази в людини немає.
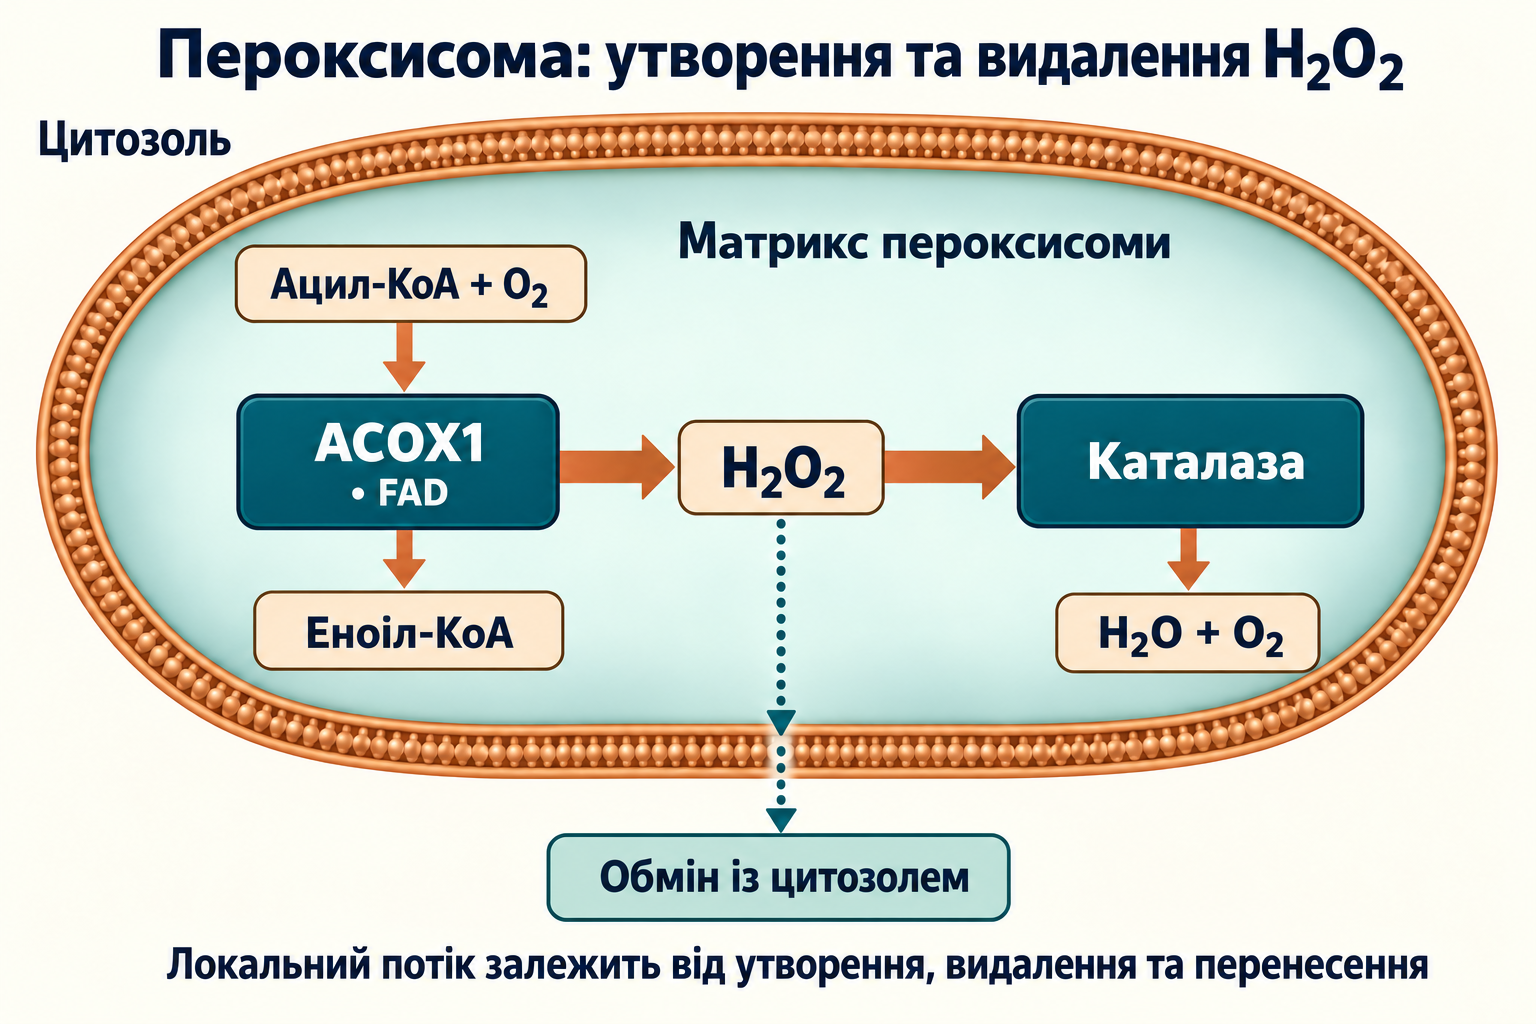
Каталаза зменшує місцеве пероксидне навантаження, але мембрана не ізолює H₂O₂ повністю. Зміни імпорту, кількості оксидаз і транспорту впливають на цитозольну сигналізацію та взаємодію з мітохондріями. З досліду на гризунах не можна вивести універсальні відсотки споживання кисню чи вмісту каталази в людській печінці. Реалістичнішим є баланс потоків:
Це якісна модель; чисельне застосування потребує однакового об’єму віднесення та узгоджених одиниць усіх потоків.
Перша молекула H₂O₂ окиснює гемовий центр на два еквіваленти, утворюючи ферильне залізо Fe(IV)=O та порфіриновий катіон-радикал: Сполуку I. Дистальне оточення полегшує гетеролітичний розрив O–O і перенесення протонів. Друга молекула H₂O₂ відновлює Сполуку I до Fe(III), сама окиснюючись до O₂. Отже, субстрат є і окисником, і відновником. Сумарний двоелектронний баланс не доводить одночасного перенесення пари електронів: QM/MM-моделі Alfonso-Prieto для каталаз Helicobacter pylori та Penicillium vitale запропонували два послідовні одноелектронні перенесення через стан, подібний до Сполуки II, за участю His або прямого перенесення атома водню. Це моделі певних ферментів, а не безпосереднє спостереження атомного маршруту людської CAT.
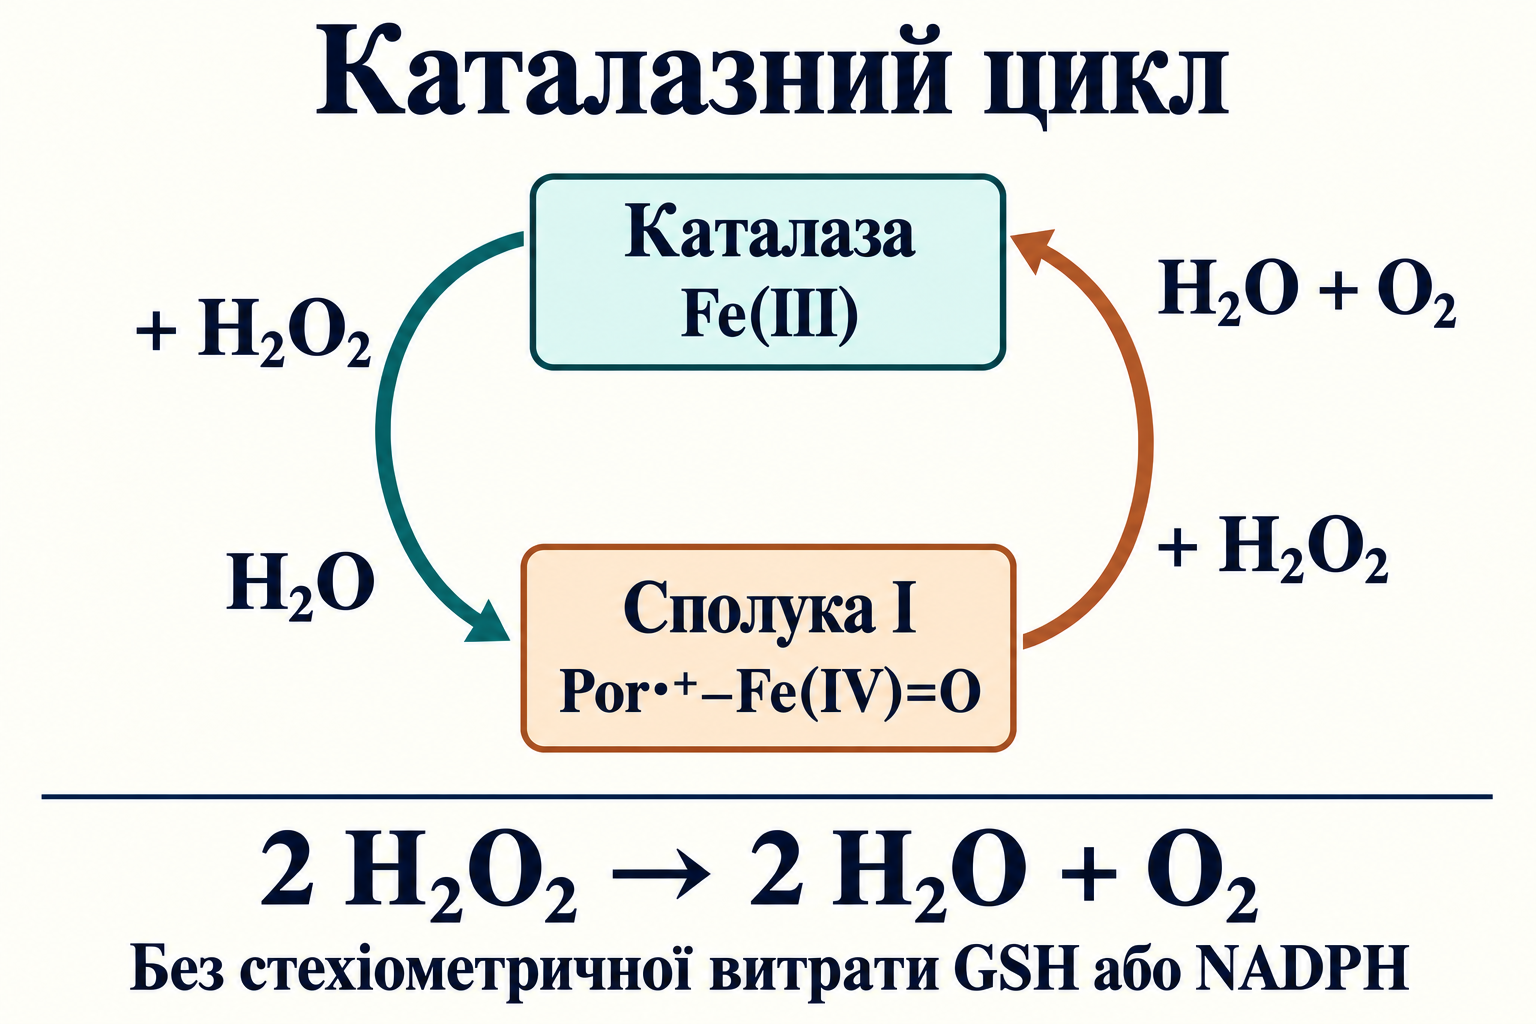
Одноелектронне відновлення Сполуки I може утворити Сполуку II, ферильний стан без порфіринового радикала, менш ефективний у звичайному циклі. Сполука III — інший кисень-зв’язаний стан; її утворення не означає обов’язкового негайного незворотного руйнування гема. Накопичення, пошкодження білка й відновлення активності залежать від субстрату, донорів, NADPH і тривалості впливу. Назва інтермедіата не визначає незмінної незворотності.
Бімолекулярні константи мають одиниці М⁻¹·с⁻¹, число оборотів — с⁻¹. Числова схожість не робить їх взаємозамінними. Сорок–п’ятдесят мільйонів молекул за хвилину — приблизно 0,67–0,83 мільйона за секунду за тієї самої нормалізації на центр або тетрамер. Це не дає без іншої експериментальної основи.
Для ідеалізованого двостадійного циклу зі сталою концентрацією субстрату та без побічних шляхів:
Множник два відображає дві молекули пероксиду на цикл; швидкість виділення O₂ удвічі нижча. Модель дає лінійну залежність у відповідному режимі, а не універсальну квадратичну за низьких концентрацій. Її застосовність обмежують стаціонарність інтермедіата, доступність субстрату й відсутність інактивації.
Уявний залежить від моделі. Abe отримав близько 0,025 М для очищеної каталази бичачої печінки за pH 7,0; вимірювання проводили за 2 °C. Це характеристика препарату й методу, не поріг увімкнення людської каталази. Високий пероксид може спричиняти відхилення кінетики, побічні стани та інактивацію: твердження про «необмежену ємність без насичення до 1 М» надмірне.
Сполука I може окиснювати малий придатний донор замість другої молекули H₂O₂. Для первинного спирту сумарна реакція:
Відносні потоки визначають швидкості конкурентних реакцій і концентрації обох субстратів; жорсткого перемикача за 1 мкМ немає. Етанол дає ацетальдегід, метанол — формальдегід. Окиснення форміату й нітриту у ферментних системах також не встановлює їхнього фізіологічного внеску в усіх тканинах.
У печінці людини основними шляхами метаболізму етанолу залишаються алкогольдегідрогеназа та, залежно від умов, CYP2E1; стала частка каталази 10–20% цією базою не обґрунтована. Досліди з мозком гризунів і 3-аміно-1,2,4-триазолом підтримують роль каталази в місцевому утворенні ацетальдегіду та деяких поведінкових ефектах, але не вимірюють універсальні «60–70%» у людини. Окиснення токсичного спирту не обов’язково є детоксикацією: формальдегід і форміат самі токсичні, а міжвидові відмінності особливо важливі для метанолу.
| Властивість | Каталаза | Глутатіонпероксидази | Пероксиредоксини |
|---|---|---|---|
| Каталітична група | Гем b | Селеноцистеїн у GPx1/GPx4 | Реактивний цистеїн |
| Основна хімія | Диспропорціювання H₂O₂ | Відновлення пероксиду донором | Окиснення каталітичного тіолу |
| Сумарний відновник | Другий H₂O₂ | Зазвичай 2 GSH | Часто тіоредоксин; залежить від ізоформи |
| Регенерація | Основний цикл без витрат GSH/NADPH | Глутатіонредуктаза відновлює GSSG із NADPH | Тіоредоксинредуктаза використовує NADPH |
| Компартменти | Переважно пероксисоми; є інші пули | Залежно від ізоформи; цитозоль, мітохондрії, ліпіди | Цитозоль, ядро, мітохондрії та інші області |
| Особлива роль | Великі локальні пероксидні потоки | GPx4 захищає фосфоліпіди й обмежує фероптоз | Перехоплення H₂O₂, редокс-реле й сигнали |
| Обмеження | Доставка субстрату, кількість активного ферменту, інактивація | Доступність донорів та їхня регенерація | Відновлення, розв’язання дисульфіду, гіперокиснення |
Останнє рівняння позначає сумарну тіоредоксин-залежну систему, а не пряму реакцію H₂O₂ з тіоредоксином. Prx6 та інші контексти використовують інші донори. Звичайна регенерація GSSG потребує NADPH: це метаболічна ціна підтримання пулу, не витрата АТФ на кожному пероксидазному кроці.
Швидка реакція Prx із H₂O₂ не суперечить повільнішому повному обороту: відновлення може обмежувати цикл. Гіперокиснення деяких 2-Cys Prx до сульфінових форм тимчасово змінює перехоплення пероксиду та сигнали; сульфіредоксин здатний АТФ-залежно відновлювати певні форми. «Floodgate» корисна модель деяких умов, не універсальний поріг для всіх Prx. Внесок кожного поглинача залежить від концентрації, локалізації та регенерації. CAT може впливати на низькі потоки у власному компартменті, а розміщення GPx4 у середньому «ешелоні H₂O₂» ігнорує ліпідні субстрати.
Людський CAT розташований у 11p13 і містить 13 екзонів. Багатий на GC промотор взаємодіє з різними регуляторами; кількість білка, включення гема й розподіл спільно визначають активність. За делецій області WAGR залучення CAT залежить від конкретних меж; фіксоване зниження на 50% не є обов’язковим для кожного випадку.
Акаталаземія — рідкісний, зазвичай аутосомно-рецесивний стан через патогенні варіанти CAT. Історичні спостереження Такахари пов’язали слабке виділення кисню з крові під дією пероксиду з некротичними ураженнями рота. Окиснення гемоглобіну й бактеріальний H₂O₂ можуть сприяти пошкодженню. Проте багато людей із вираженим дефіцитом не мають таких уражень: гігієна, інфекційне навантаження й інші захисні системи змінюють фенотип.
Описані дефекти сплайсингу, зсуви рамки зчитування й зміни стабільності білка в різних популяціях. Тлумачення потребує точного варіанта й транскрипту; географічна назва не замінює молекулярного діагнозу. Спостереження щодо діабету цікаві, але малі відібрані групи не встановлюють універсального ризику «в 4,5–5,2 раза» чи одного механізму загибелі β-клітин. Вимірювання еритроцитарної активності потребує методу, нормалізації на гемоглобін або білок і контексту зразка; це не самостійний тест «швидкості старіння».
−262C>T, rs1001179, відрізняється від рідкісних причин акаталаземії. Forsberg досліджував зв’язування факторів, репортерну транскрипцію й рівні каталази в крові, а не доведену гіпертензію. T-варіант дав приблизно в 1,5 раза вищу транскрипцію в HepG2 і K562; серед 29 донорів носії T мали вищі рівні еритроцитарної каталази, ніж CC (p < 0,03). Напрям і величину не можна автоматично переносити на кожну тканину чи хворобу. Асоціації з вітиліго, пухлинами й гіпертензією залежать від популяції та дизайну; генотип не обґрунтовує вибір «активаторів каталази» і не доводить причинний шлях кожного результату.
У 2005 році Schriner порівняв трансгенні варіанти людської каталази, спрямовані в пероксисоми, ядро чи мітохондрії мишей. Найвиразніше подовження життя отримали за мітохондріальної адресації; повідомлялося про збільшення медіанної та максимальної тривалості приблизно на п’ять місяців. Це генетичне втручання у тварин, не випробування добавки. Воно підтримує причинний ефект конкретного втручання в моделі та значення локалізації, але не робить усі ROS єдиною причиною старіння.
Dai описав ослаблення вікової гіпертрофії й фіброзу серця, збереження діастолічної функції та зменшення певних мітохондріальних пошкоджень у mCAT-мишей. Це точніше за повне запобігання дилатаційній кардіоміопатії та всім випадкам серцевої недостатності. Окиснювальний стрес може впливати на пору перехідної проникності mPTP, але захисний фенотип не доводить обов’язкового прямого окиснення циклофіліну D. Зміни мтДНК, катаракти, м’язів і чутливості до інсуліну стосуються конкретних моделей та кінцевих точок; без окремих доказів їх не можна об’єднувати в один числовий ефект.
| Рівень даних | Підтримуваний висновок | Чого дані не показують |
|---|---|---|
| Очищений фермент | Механізм, кінетика й інгібування за визначених умов | Клітинний розподіл або клінічна користь |
| Клітинні системи імпорту | Взаємодія CAT–PEX5 і залежність від збирання | Єдиний шлях для всіх тканин |
| mCAT-миші | Вплив генетичної адресації на життя й окремі фенотипи | Подовження життя людини пероральною каталазою |
| Акаталаземія та rs1001179 | Генетичні механізми й обмежені асоціації | Універсальні ризики чи профілактичні протоколи |
FoxO пов’язує захист від стресу із сигналами Akt, енергетичним станом і модифікаціями білків; SIRT1 може змінювати транскрипційну відповідь. Nrf2/Keap1 координує цитопротективну мережу, але зміна активності CAT після стимуляції не доводить прямого зв’язування Nrf2 з її промотором у кожній тканині. PPARα регулює ліпідний обмін і пероксисомальні ферменти; індукція оксидаз і систем очищення може відрізнятися, тому посилення β-окиснення не гарантує пропорційного зростання каталази.
Ресвератрол, сульфорафан, EGCG, кверцетин і омега-3 досліджували в клітинах і тваринах. Це не задає доведеної схеми лікування дефіциту каталази чи старіння людини. Навіть зростання активності в крові лишається сурогатною точкою без доведеної тканинної адресації та клінічного ефекту. Деталі ресвератролу, SIRT1 і біодоступності особливо важливі: лабораторний ефект не гарантує прямої активації за досяжної експозиції.
Залізо й синтез гема потрібні для гемопротеїну; ALAS і ферохелатаза беруть участь у цьому шляху. Додаткове залізо без підтвердженого дефіциту з цього не випливає. Надлишок лабільного заліза посилює реакції Фентона. Селен потрібен деяким GPx, але не є простетичною групою CAT. Один антиоксидантний показник не характеризує всю мережу.
3-аміно-1,2,4-триазол використовують як механізм-залежний інгібітор каталази, пов’язаний із пероксидним циклом; структури показують взаємодію в активній області. Азид і ціанід зв’язують гемові центри та впливають на інші ферменти. Їхні ефекти, особливо поведінка після системного введення, не є цілком специфічним доказом ролі CAT без додаткового контролю.
Доставку великого білка обмежують розподіл, протеоліз, імунні реакції й досягнення потрібного компартмента. Вивчають ПЕГілювання, ліпосоми, позаклітинні везикули й клітинні носії. Робота Batrakova 2007 року стосується макрофагальної доставки, а не клінічного випробування інтраназальних екзосом. У моделях ішемії-реперфузії, нейрозапалення та ран важливі носій, експозиція, час і тканинні показники; один відсоток зменшення інфаркту не переноситься на всі формуляції.
CeO₂, MnO₂ і Fe₃O₄ вивчають як матеріали з ферментоподібною активністю. Вони відрізняються від білкової каталази: активність, вивільнення іонів, розподіл і можливий прооксидантний ефект залежать від поверхні, pH та середовища. Стійкість до протеолізу не означає абсолютної безпеки чи однакової кінетики. Ця база не містить рандомізованого дослідження в людей, що дозволяло б призначати їх для подовження життя, заміщення CAT або лікування діабетичної стопи.
Це наративний огляд наданого оригіналу та його літературної бази з адресною перевіркою спірних структурних, бібліографічних і механістичних тверджень 8 жовтня 2026 року. Збережених дослідницьких нотаток попереднього редактора в робочому пакеті не було; використано передані підтверджені виправлення. Систематичного пошуку, формальної оцінки GRADE й зовнішнього рецензування не проводили. Повнота нових публікацій не гарантована; точні величини без належної основи не перенесені з оригіналу.
Каталаза захищає завдяки гемовій хімії, доступу до пероксиду та правильній локалізації. Вона заощаджує відновні еквіваленти в основному циклі, але працює в мережі з GPx і Prx, не має нескінченної автономної ємності. Генетичні моделі й доставка ферменту дозволяють перевіряти роль компартментів; клінічні рішення потребують також людських даних про експозицію, ефективність і небажані ефекти.
Друга молекула H₂O₂ відновлює Сполуку I. Дві молекули пероксиду утворюють дві води та O₂ без обов’язкового GSH на оборот.
Ні. Є дані зв’язування PEX5 із мономерами та систем імпорту тетрамерів; стан вантажу залежить від умов.
Ці дані такого вибору не обґрунтовують. Функціональні ефекти й асоціації залежать від системи та популяції.
Ні. Це генетичне втручання в мишей. Потрібні окремі людські дані щодо доставки, ефективності й небажаних ефектів.