Ресвератрол і птеростильбен: хімія стильбенів, SIRT1 та межі біодоступності
Хімія двох стильбенів, кон’югація й вільний аглікон, умовна алостерія SIRT1, непрямий шлях PDE–AMPK, клінічні маркери та межі безпеки.
Хімія двох стильбенів, кон’югація й вільний аглікон, умовна алостерія SIRT1, непрямий шлях PDE–AMPK, клінічні маркери та межі безпеки.
Два близькі рослинні стильбени часто порівнюють так, ніби заміна двох гідроксильних груп на метоксигрупи автоматично забезпечує сильнішу «активацію довголіття». Хімічна зміна впливає на полярність, кон’югацію та розподіл, але одна цифра біодоступності не встановлює її фармакологічного значення. Для ресвератролу особливо важлива відстань між всмоктуванням усієї міченої дози та концентрацією вільного аглікону; для птеростильбену — між результатами у гризунів, вимірюваннями в людини й поки обмеженими клінічними наслідками. На рівні ферменту слід окремо з’ясувати умови активації SIRT1, а в пацієнта — які зміни були заздалегідь визначеними кінцевими точками дослідження.
Ресвератрол і птеростильбен належать до спеціалізованих фенольних метаболітів рослин. Їхнє утворення може посилюватися за інфекції, ультрафіолетового опромінення й ушкодження тканин; слово «фітоалексин» описує екологічну функцію в рослині, а не механізм захисту людини після споживання ягоди. Ресвератрол трапляється, зокрема, у винограді, арахісі й японському гірчаку, птеростильбен — у деяких видах Pterocarpus і Vaccinium. Концентрація залежить від сорту, частини рослини та умов вирощування, тому наявність у їжі не визначає фармакологічної експозиції.
У фенілпропаноїдному шляху фенілаланін-аміак-ліаза (PAL) перетворює L-фенілаланін на транс-коричну кислоту. Цинамат-4-гідроксилаза (C4H/CYP73A) утворює p-кумарову кислоту, а 4-кумарат–CoA-лігаза (4CL) активує її до p-кумароїл-CoA. Стильбенсинтаза (STS), полікетидсинтаза типу III, використовує цю початкову одиницю й три малоніл-CoA для послідовних конденсацій із декарбоксилюванням та замиканням другого ароматичного кільця. Споріднена халконсинтаза спрямовує подібний полікетидний проміжний продукт до іншої циклізації та флавоноїдної гілки. Каталітична тріада Cys–His–Asn характерна для родини, проте нумерація залишків і геометрія активного центру належать конкретній структурі STS, а не всім рослинам. Фермент і умови реакції визначають профіль продуктів.
Далі ресвератрол-O-метилтрансфераза (ROMT) переносить метильні групи, а не «метильні радикали», із S-аденозилметіоніну на фенольні атоми кисню в положеннях 3 і 5. Шлях можна подати так:
Це схема рослинного біосинтезу, а не перетворення ресвератролу на птеростильбен у тканинах людини після приймання.
Два ароматичні кільця сполучені центральним етиленовим зв’язком. Транс-ресвератрол — -3,5,4′-тригідроксистильбен із формулою ; транс-птеростильбен — -3,5-диметокси-4′-гідроксистильбен із формулою . Перший має три фенольні донори водневого зв’язку, другий — один, тоді як метоксильні атоми кисню залишаються потенційними акцепторами. Ці дескриптори допомагають передбачати сольватацію та взаємодії, але самі не визначають швидкості всмоктування, вільної концентрації в мозку чи спорідненості до SIRT1. Значення і топологічної полярної площі залежать від розрахунку або вимірювання; їх слід порівнювати лише в межах однакової методики. Точні ван-дер-ваальсові об’єми без зазначеного алгоритму не дають причинного висновку.
Етиленовий місток допускає ізомери і . Світло може спричиняти фотохімічний перехід транс-форми в цис-форму та інші процеси деградації; склад залежить від довжини хвилі, розчинника, кисню й часу. У дослідженнях експозиції необхідно вказувати ізомер, умови зберігання й аналітичного розділення. Твердження, що цис-ізомер завжди неактивний щодо SIRT1 або PDE та рівно у 10–100 разів слабший, не випливає з геометричної моделі: кожен білок і субстрат потребують власного досліду. Вища ліпофільність птеростильбену може полегшувати окремі етапи розподілу в мембрану, проте ані мембрана ентероцита, ані гематоенцефалічний бар’єр не зводяться до порога TPSA. Зв’язування з білками, ефлюкс, метаболізм і вільна частка в плазмі визначають остаточний доступ до тканини.
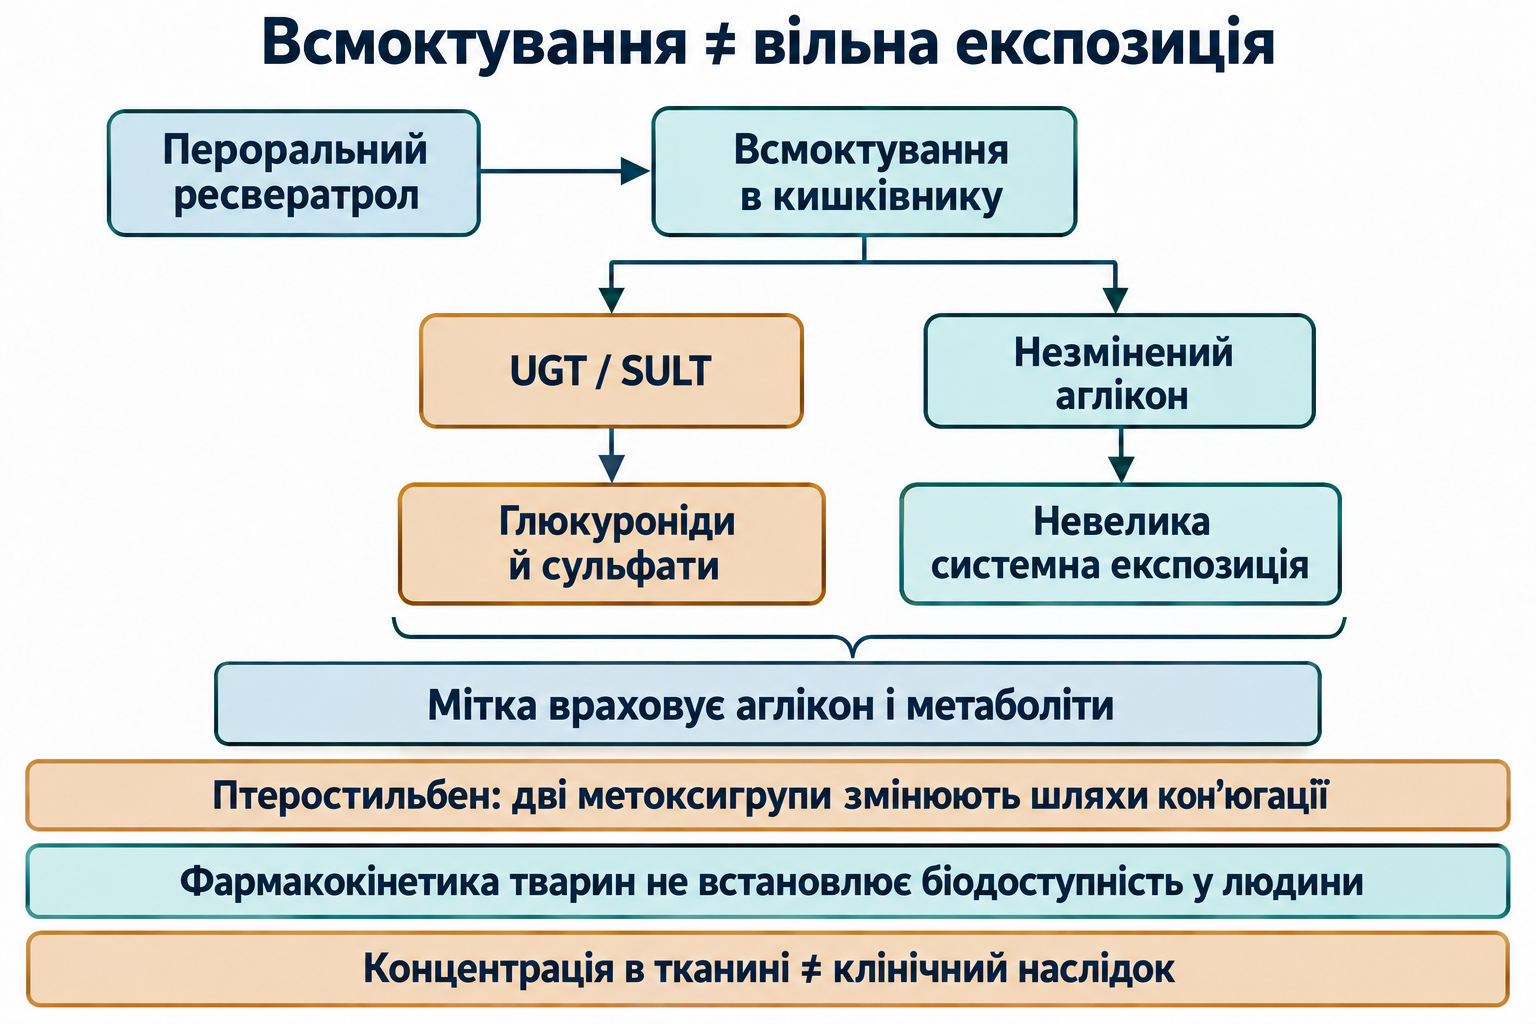
У дослідженні міченого ресвератролу в людини Walle та співавтори показали значне всмоктування пероральної дози за низької системної експозиції незміненого аглікону. Це різні знаменники: радіоактивна мітка враховує початкову молекулу та метаболіти, тоді як аналіз вільного ресвератролу вимірює одну хімічну форму. «Ресвератрол майже не всмоктується» — неточно; так само неточно робити висновок, що високе всмоктування забезпечує вільну мікромолярну концентрацію біля мішені. Абсолютні відсотки, і період напіввиведення потребують зазначення дози, форми, їжі, матриці й аналітичного методу. Ланцюжок «70–75% всмоктування → 0,3–0,8% вільної частки → 10–50 нМ у всіх людей» змішує різні протоколи.
Основна пресистемна трансформація використовує фенольні групи. UDP-глюкуронозилтрансферази (UGT) переносять глюкуронову кислоту з UDP-глюкуронату на кисень аглікону, утворюючи, серед іншого, ресвератрол-3-O- і 4′-O-глюкуроніди. Сульфотрансферази (SULT) за участю 3′-фосфоаденозин-5′-фосфосульфату (PAPS) утворюють відповідні сульфати, зокрема 3-O-сульфат. Ентероцити та печінка відрізняються набором ізоферментів і доступністю донорів; UGT1A1, UGT1A9 та SULT1A1 — можливі учасники, але таблиця із різних ферментних систем не встановлює внеску in vivo. Потоки конкурують залежно від спорідненості, , концентрації вільного аглікону, локалізації та експресії ферментів. Кон’югати не слід автоматично вважати неактивними: вони мають власний розподіл, а локальна декон’югація за певних умов може відновлювати аглікон, хоча це ще не доводить клінічної користі.
Після утворення полярних метаболітів ABC-транспортери, зокрема ABCC2/MRP2 та ABCG2/BCRP на апікальній поверхні ентероцита, можуть повертати продукти до просвіту кишки. Базолатеральний ABCC3/MRP3 переносить частину кон’югатів у портальну кров; печінкове захоплення й каналікулярна секреція залежать від субстрату та експресії транспортерів. Мікробні β-глюкуронідази можуть розщеплювати екскретовані кишкові кон’югати й забезпечувати повторне всмоктування, але другий плазмовий пік не доводить достатньої вільної експозиції біля мішені. Припущення, що ресвератрол обов’язково використовує SGLT1/GLUT1, «імітуючи моносахарид» фенольними гідроксилами, потребує прямого транспортного доказу й не замінює аналізу дифузії та ефлюксу.
Дві метоксигрупи птеростильбену закривають положення 3 і 5 для прямої кон’югації, але фенольний 4′-OH залишається доступним. Окисне O-деметилювання може створювати нові фенольні позиції й додаткові метаболіти; вислів «єдиний шлях — 4′-моноглюкуронід» надмірний. У доклінічних порівняннях із ресвератролом птеростильбен та його кон’югати мали інший фармакокінетичний профіль. Проте повторювані цифри «80% біодоступності», «у 15–20 разів більше в мозку» та «період напіввиведення у 7–10 разів довший» походять із конкретних тваринних моделей або непорівнюваних умов. Вони не є порівнянням у людини без урахування виду, дози, матриці та вільної частки. Виявлення молекули в гомогенаті мозку також не визначає вільної нейрональної концентрації, потрібної для прямої активації SIRT1.
Окисний метаболізм потребує хімічної точності: піцеатанол — гідроксильований родич ресвератролу, а піносильвін має інше розташування гідроксильних груп, ніж просто моно-O-деметильований птеростильбен. Отже, рівність «3-O-деметилптеростильбен = піносильвін» хибна. Навіть якщо метаболіт виявлений у мікросомах, його частку в плазмі та внесок у біологічну дію слід вимірювати окремо. Наступне питання — чи змінює реально досягнута концентрація аглікону або метаболіту конкретну клітинну реакцію SIRT1 і чи передбачає наслідок у людини; ці рівні не зводяться до рекламної формули «системної переваги».
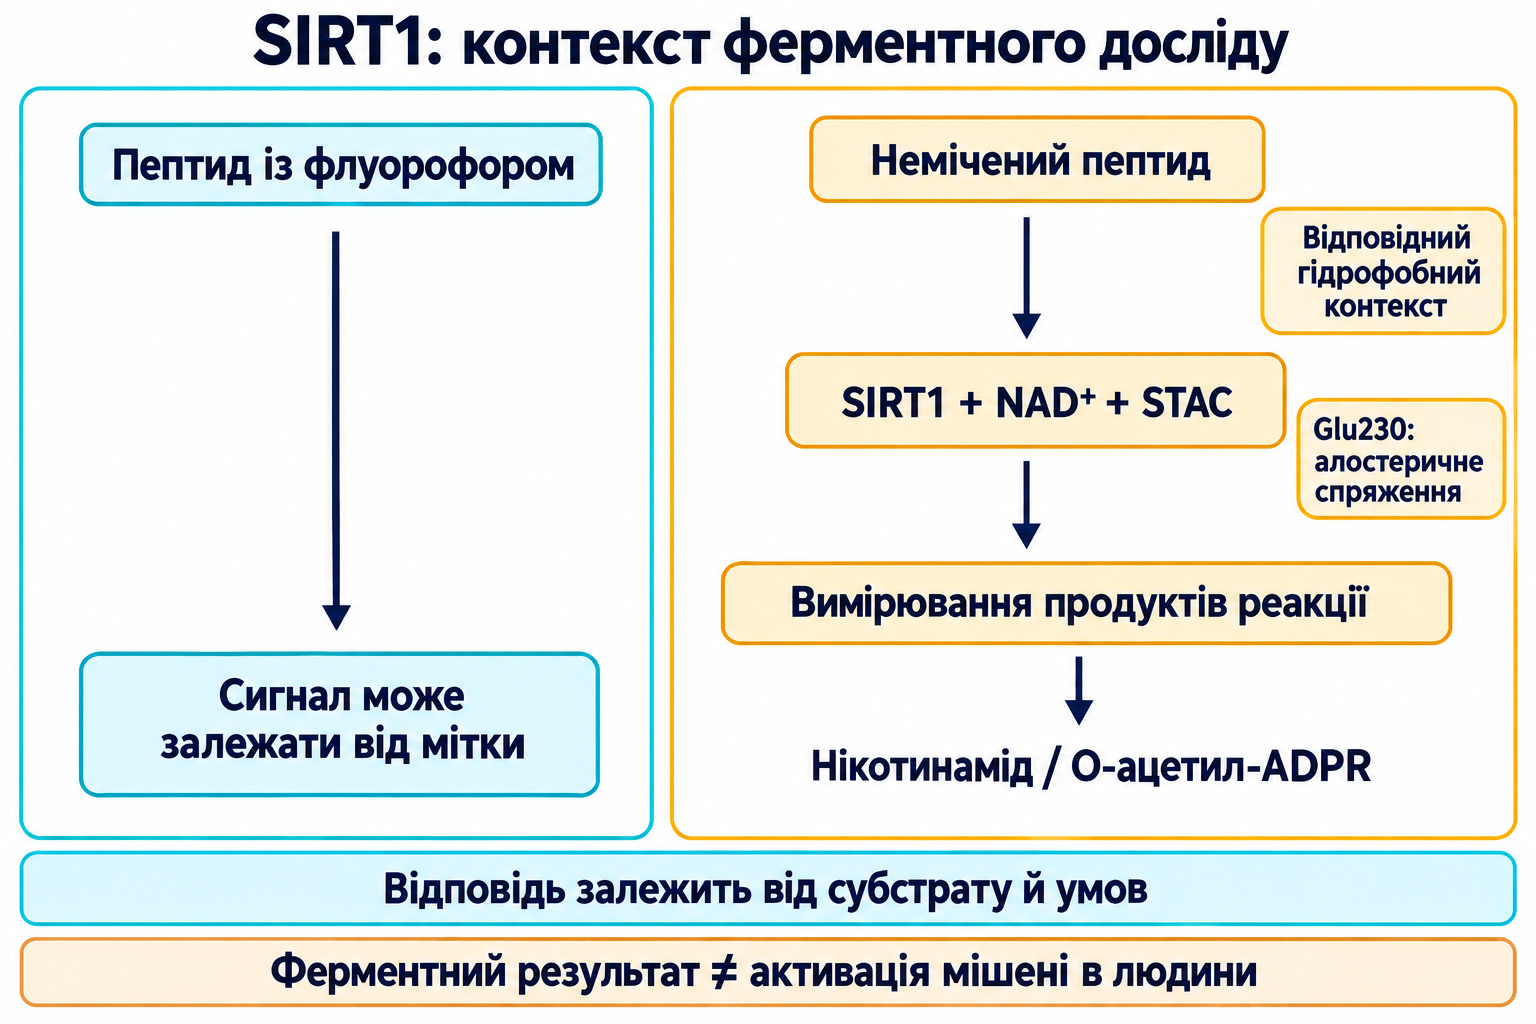
SIRT1 — NAD⁺-залежна деацетилаза, каталітичне ядро якої містить складку зв’язування нікотинамідного кофактора та ділянку зв’язування цинку й працює разом із регуляторними сегментами по обидва боки. N-кінцева ділянка поблизу Glu230 бере участь у відповіді на низку малих молекул, а C-кінцева послідовність ESA допомагає підтримувати каталітичну активність. В елементарній реакції фермент зв’язує ацетильований лізин білка та NAD⁺ і вивільняє нікотинамід, деацетильований лізин і 2′-O-ацетил-ADP-рибозу: . Витрата NAD⁺ стехіометрична, але загальний клітинний NAD⁺ не дорівнює локальній активності SIRT1: важливі компартмент, доступність конкретного білкового субстрату, гальмування нікотинамідом і конкурувальні ферменти.
Активатори сиртуїнів (STAC) походять із дослідів із ресвератролом та флуоресцентним модельним пептидом. Заперечення було суттєвим: видалення об’ємного флуорофора усувало активацію в частині тестів. Hubbard та співавтори не скасували цей артефакт, а пояснили умовність алостерії: гідрофобні амінокислоти біля ацетильованого лізину допускають відповідь окремих немічених субстратів, тоді як інший пептид без належного локального контексту не активується. Позиція +1 була важливою, проте одного Trp у +1 без відповідного сусіднього залишку виявилося недостатньо. «Кожен природний субстрат із Trp/Phe/Tyr/Leu в +1 або +6 активується» — надто широке твердження. Результат стосується використаних пептидів, концентрацій STAC і способів вимірювання нікотинаміду або O-ацетил-ADP-рибози.
Заміна Glu230 на Lys або Ala послаблювала відповідь SIRT1 на багато активаторів у Hubbard, зберігаючи базальну активність у цих тестах. Це підтримує роль N-кінця в алостеричному спряженні, але не доводить універсального контакту ресвератролу чи птеростильбену з кожним запропонованим залишком кишені. Структури з певними активаторами визначають геометрію конкретного комплексу; перенесення координат на інший стильбен потребує власного досліду зв’язування. Зокрема, точна іонна пара Glu230–Arg446, незмінне зменшення у 3–8 разів та перевага птеростильбену ккал/моль не встановлені для кожного білкового субстрату людини. — операційний параметр тесту, а не ядерна концентрація PGC-1α; порівняння пептидів за різних умов не передбачає деацетилювання in vivo.
Для ресвератролу в клітинах і тваринах також вивчали непрямий шлях: гальмування фосфодіестераз циклічних нуклеотидів може підвищувати cAMP, активувати Epac1, змінювати кальцієвий сигнал і CaMKKβ, а далі фосфорилювати AMPK у Thr172. Не слід вставляти обов’язковий крок «CaMKKβ фосфорилює LKB1, яка потім активує AMPK»: CaMKKβ та LKB1 — окремі верхні кінази AMPK у відповідних умовах. Активність AMPK може супроводжуватися змінами NAD⁺ та взаємодіяти із SIRT1, але позитивний зворотний зв’язок не є автономним двигуном незалежно від енергетичного стану. NAMPT бере участь у реутилізації нікотинаміду; її експресія й потік залежать від тканини та часу. Спільні зміни p-AMPK, NAD⁺ і ацетилювання білків не визначають причиною пряму алостерію, PDE-сигнал або вторинний енергетичний стрес.
У Hubbard ефекти вибраних STAC на клітинні мітохондріальні показники зникали після заміни відповідного залишку мишачої SIRT1; за використаних концентрацій автори не знайшли пояснення через PDE або SIRT1-незалежне фосфорилювання AMPK. Це підтримує прямий механізм у цій системі, але не спростовує PDE-шлях Park з іншою сполукою, дозою чи клітиною. Розмежування забезпечує правильне читання: позитивний ферментний дослід не встановлює активації SIRT1 птеростильбеном у людському мозку, а артефакт старого флуоресцентного тесту не встановлює неможливості алостерії взагалі.
PGC-1α — транскрипційний коактиватор адаптації енергетичного метаболізму. Ацетилювання, фосфорилювання, наявність партнерів і тканинний контекст регулюють його функцію; GCN5 та SIRT1 можуть зміщувати баланс ацетилювання в протилежні боки. Деацетилювання PGC-1α в моделі здатне посилювати коактивацію PPARα/ERRα та генів окиснення жирних кислот. Проте схема, у якій стильбен завжди деацетилює «13 лізинів» і миттєво перемикає гліколіз на β-окиснення, поєднує несумісні системи та невизначені сайти. Експресія CPT1A й ацил-CoA-дегідрогеназ — лише частина програми; реальний потік залежить від транспорту ацилів, надходження субстрату й дихального ланцюга. Карнітиновий човник CPT1 пояснює, чому більша кількість транскрипту CPT1A не вимірює безпосередньо окиснення жиру.
PGC-1α взаємодіє з ядерними респіраторними факторами NRF1 та GABP/«NRF2» в історичній номенклатурі. Останній не слід плутати з NFE2L2, фактором антиоксидантної відповіді, який теж називають NRF2. Посилена транскрипція TFAM та ядерних респіраторних генів може супроводжувати імпорт TFAM через TOM/TIM, організацію нуклеоїдів і підтримання мітохондріальної ДНК. Геном мітохондрій людини кодує 13 білків OXPHOS, 22 тРНК та дві рРНК, але складання функціональних комплексів потребує багатьох ядерних білків, транспорту, згортання й достатньої енергії. Більше TFAM, копій мтДНК або забарвленої «мітохондріальної маси» саме по собі не доводить утворення нових зрілих крист, кращого дихального контролю чи більшого ATP у людини. Огляд ацетил-L-карнітину дає корисне зіставлення: і там метаболічні показники не дорівнюють клінічній нейропротекції.
FOXO1 та FOXO3a перерозподіляють клітинну відповідь між захистом, метаболізмом і апоптозом. Деацетилювання SIRT1 може експериментально змінювати їхню транскрипційну вибірковість; SOD2, каталаза, Sesn3, ATG5/ATG7, LC3, BNIP3 та GADD45 — можливі подальші програми, проте вони не обов’язково індукуються разом і в одному напрямку. SOD2 перетворює супероксид на пероксид водню, який усувають пероксидазні системи й каталаза у відповідних компартментах; висновок про «повне запобігання пероксидації кардіоліпіну» з транскрипційного маркера надмірний. Для оцінки мітофагії потрібні не лише LC3 або BNIP3, а потік доставлення мітохондрій до лізосом і кінцеве функціональне відновлення.
NF-κB пов’язує запалення з експресією цитокінів і ферментів, але його регулюють утримання IκB, ядерна транслокація, модифікація RelA/p65 та доступність хроматину. У біохімічних дослідах SIRT1 деацетилювала p65 у Lys310 та змінювала його транскрипційну активність. Це не встановлює, що пероральні ресвератрол або птеростильбен завжди одночасно пригнічують TNF-α, IL-1β, IL-6, ICAM-1/VCAM-1, iNOS і COX-2 у пацієнтів, тим більше — усувають інсулінорезистентність. Експозицію, ацетилювання мішені, запальні біомаркери й клінічний наслідок слід вимірювати окремо.
Ендотеліальна eNOS/NOS3 утворює NO за участю L-аргініну, O₂, BH4, кальмодуліну та спряженого перенесення електронів. Деацетилювання SIRT1 і фосфорилювання AMPK — два досліджені механізми; їхня взаємодія залежить від стану клітини. Більше фосфорилювання Ser1177 або зміна ацетилювання Lys496/Lys506 не гарантують доступного NO: дефіцит BH4 чи окисний стрес можуть порушувати спряження. Клітинна схема не передбачає обов’язкового зниження тиску, артеріальної жорсткості чи тромбозу обома стильбенами. Клінічні судинні дані потребують окремого аналізу.
У подвійному сліпому перехресному дослідженні Timmers 11 чоловіків з ожирінням отримували ресвератрол 150 мг/добу або плацебо протягом 30 днів. Автори вимірювали енерговитрати, метаболічні показники, печінкові ліпіди й м’язові маркери та спостерігали зміни, подібні до окремих адаптацій до обмеження калорій. Мала вибірка й короткий термін не доводять уповільнення старіння, профілактики діабету або мітохондріального біогенезу в кожному органі. До того ж зміни білка SIRT1 і фосфорилювання AMPK у біоптаті не показують прямого зайняття алостеричної кишені ресвератролом за досягнутої вільної концентрації. Відсотки багатьох біомаркерів слід читати з урахуванням наперед визначеної кінцевої точки та корекції множинних порівнянь, а не підсумовувати як «терапевтичний бал».
Дослідження діабету типу 2 використовували різні форми, дози, тривалість і супутню цукрознижувальну терапію. Brasnyó повідомив про поліпшення чутливості до інсуліну в невеликому дослідженні; Bhatt оцінював HbA1c та інші показники на тлі стандартного лікування. Це не дає змоги приписати кожну зміну SIRT1 чи замінити доведене лікування ресвератролом. Потрібні рандомізована різниця між групами, початкова HbA1c, тривалість, зміни маси та заздалегідь визначена головна кінцева точка; порівняння HbA1c лише «до/після» у лікуваній групі може перебільшувати ефект. Chen повідомив про ультразвукові та біохімічні зміни за стеатотичної хвороби печінки, але УЗД і трансамінази не вимірюють безпосередньо фіброз або віддалені печінкові події. MASLD — сучасна термінологія; історичні дослідження могли включати пацієнтів за іншими критеріями NAFLD.
Судинні дослідження разової дози, зокрема Wong, вимірювали потік-залежну дилатацію (FMD) плечової артерії. FMD залежить від ультразвукової методики, початкового діаметра, гемодинаміки й часу після приймання. Гостре поліпшення за конкретних доз не доводить сталого зниження тиску, жорсткості або частоти інфаркту. Kennedy вимірював мозковий кровотік під час завдання; регіональна перфузія й когнітивна ефективність — різні кінцеві точки. Ланцюг «стильбен → деацетилювання eNOS у людини → більше NO → клінічна профілактика тромбозу» потребує вимірювань на кожному рівні, яких самі ці досліди не надають.
Для птеростильбену важливе невелике подвійне сліпе чотиригрупове дослідження Riche: 80 дорослих із підвищеним загальним холестерином та/або LDL отримували 125 мг двічі на добу, 50 мг двічі на добу, 50 мг разом зі 100 мг виноградного екстракту двічі на добу або плацебо протягом 6–8 тижнів. У моделі з поправкою на початковий рівень LDL зріс на 17,1 мг/дл за монотерапії, без такого зростання в комбінованій групі; систолічний і діастолічний тиск у групі високої дози був нижчим на 7,8 та 7,3 мм рт. ст. Дослідження невелике й коротке, використання гіполіпідемічних ліків відрізнялося, а комбіноване порівняння не доводить надійного запобігання зростанню LDL виноградним екстрактом в інших пацієнтів. PPARα не встановлено причиною ліпідної зміни. Це не вимагає обов’язково поєднувати птеростильбен із ресвератролом або виноградом та не є призначенням проти гіпертензії.
Досліди на старих мишах і в амілоїдних моделях дають сигнали щодо пам’яті, tau, Aβ та запалення. Навіть якщо птеростильбен перевершує еквімолярний ресвератрол в одній моделі, вид, дієта, час експозиції й аналіз мозку обмежують перенесення. Доплерівське спостереження у добровольців не вимірює профілактики деменції. Жодна сполука не дає підстав заявляти доведену нейропротекцію в людини або клінічну когнітивну перевагу птеростильбену. «Більш біодоступний» не означає «ефективніший»: більша вільна експозиція може посилювати як корисні, так і небажані дії.
Регуляторні варіанти SIRT1, зокрема rs7895833 та rs12778366, вивчали в метаболічних асоціаціях. Асоціація з базальною експресією чи хворобою не доводить взаємодії «генотип×стильбен» у рандомізованому випробуванні. Фармакогенетична рекомендація потребує наперед визначеної гіпотези, достатніх генотипних підгруп, вимірювання активного аглікону, клінічної кінцевої точки та відтворення. Не можна призначати більшу дозу чи обіцяти зменшення вісцерального жиру за алелем rs7895833. HIC1/CtBP, miR-34a та miR-217 — важливі клітинні регулятори, але зміна культури не створює діагностичного тесту відповіді на добавку.
UGT1A1*28 пов’язаний із нижчою транскрипцією UGT1A1 і синдромом Жильбера за відповідного генотипу та контексту. Доля ресвератролу розподіляється між UGT, SULT, транспортерами й виведенням; 28/28 не гарантує вдвічі або втричі більшої вільної експозиції чи клінічного ефекту. UGT1A93 та SULT1A12 можуть змінювати біохімічну активність ферменту, але системний внесок за певної дози й форми потребує спеціального PK-дослідження. Слово «мутація» без розмежування функціонального варіанта та патогенного стану перебільшує значення поширених поліморфізмів.
PRKAA2 кодує каталітичну субодиницю AMPKα2, а не регуляторну. Без функціонального та клінічного підтвердження її варіанти не передбачають відповіді PDE–cAMP–AMPK і не добирають «комбінованих активаторів». rs2796498 не придатний для призначення альфа-ліпоєвої кислоти, берберину або двох стильбенів. Генотип може бути змінною майбутньої стратифікації, але не готовим алгоритмом персоналізації.
Розчинення кристалічного ресвератролу в кишковій рідині може обмежувати надходження молекул до епітелію. У дифузійному наближенні рівняння Нойєса–Вітні має вигляд , де — розчинена маса, — коефіцієнт дифузії, — площа поверхні частинок, — товщина дифузійного шару, — насичення біля частинки, — концентрація в об’ємі. Для зміни концентрації за сталого об’єму слід додатково ділити на об’єм середовища; без цього змішуються розмірності. Мікронізація збільшує загальну поверхню за однакової маси й може прискорити розчинення, але не усуває кон’югації. Онкологічне пілотне дослідження SRT501 вимірювало власну експозицію; відмінність від іншої форми не встановлює незмінної переваги «у 3–5 разів» кожного мікронізованого продукту.
Фосфоліпідні комплекси, самоемульгувальні системи (SEDDS) і ліпосоми змінюють дисперсію, розчинену частку, стабільність та контакт із мембраною різними способами. Кожна форма потребує вимірювання розміру й розподілу частинок, вмісту ізомеру, розчинення, взаємодії з їжею, а далі — PK вільного та кон’югованого аглікону. Нанокрапля не гарантує лімфатичного транспорту: він залежить від включення до складання хіломікронів, ліпідів та фізіології всмоктування. Часткове уникнення першого проходження через печінку також не усуває кишкових UGT/SULT. Не можна обіцяти, що кожна ліпосомальна або «фітосомальна» доза потрапить незміненою до артеріальної крові чи мозку.
Піперин і кверцетин досліджували як модифікатори кон’югації та транспорту. У Johnson посилення плазмового сигналу ресвератролу з піперином залежить від виду, співвідношення доз і методу та не встановлює режиму для людини. Конкуренція за SULT1A1 і витрата PAPS можливі у відповідній системі, але кверцетин також метаболізується, а селективне «вимкнення» клінічної сульфатації не доведене. Неспецифічне втручання у ферменти й транспортери здатне змінювати експозицію ліків; «вища біодоступність» потребує паралельної оцінки безпеки.
150 мг/добу в Timmers і 100 або 250 мг/добу в Riche — режими, досліджені в конкретних популяціях, а не затверджені терапевтичні діапазони для профілактики старіння. Коротка переносимість не робить 250–500 мг ресвератролу або 50–150 мг птеростильбену «оптимальною» добовою дозою. Вимоги ранкового приймання, жиру, мікронізації або фіксованого співвідношення потребують прямих порівнянь, яких ця література не містить. Їжа й форма можуть змінювати розчинення та експозицію, але напрямок і величина залежать від дослідженої форми.
SIRT1 використовує NAD⁺ як косубстрат, а ацетильований білок — як другий субстрат; універсальна формула Міхаеліса–Ментен без порядку зв’язування, гальмування продуктами та експериментальних констант непридатна. Якщо — пептид, а — NAD⁺, швидкість може залежати від обох, проте більше загального NAD⁺ після NMN/NR не обов’язково збільшує його ядерну вільну частку біля SIRT1, а зміна одного пептиду не поширюється на всі білки. CD38 та PARP споживають NAD⁺ за певних умов; асоціація з віком не означає «критичного виснаження» в кожній тканині. «STAC+NR/NMN» — перевірювана гіпотеза з тканинними питаннями, біомаркерами й кінцевою точкою, а не доведений синергічний протокол. Додавання піперину або кверцетину створює взаємодії, не розв’язуючи цього питання.
CLOCK:BMAL1 і NAMPT пов’язують добові ритми з метаболізмом NAD⁺, але фаза залежить від тканини, сну, харчування та індивідуального графіка. Ритм NAMPT не встановлює універсального вікна SIRT1 07:30–09:30 чи шкоди вечірнього приймання. Хронофармакологія потребує однакових доз у різний час із вимірюванням експозиції та клінічного наслідку; ця база не надає таких даних.
Рослинне походження не робить високі дози нешкідливими. За мікронізованого SRT501 із бортезомібом при рецидивній/рефрактерній множинній мієломі спостерігали серйозні події, зокрема ураження нирок; хвороба й супутня терапія не дозволяють автоматично приписати весь ризик ресвератролу в здорових, але й не дозволяють назвати грамові дози безпечними. Дані птеростильбену в людини обмежені розміром вибірки й тривалістю; підвищення LDL у Riche заслуговує на увагу, а відсутність події за кілька тижнів не виключає віддаленого ризику.
Ресвератрол вивчали як модифікатор CYP1A2, CYP2C9 та CYP3A4; Chow оцінював ферментну активність у людини після приймання. Для конкретного препарату важливі вільна концентрація біля ферменту, тривалість, форма, ізофермент, активні метаболіти й терапевтичний індекс. Біохімічне гальмування CYP2C9 не доводить, що кожна доза підвищує INR із варфарином, проте поєднання з препаратом вузького терапевтичного діапазону потребує індивідуальної оцінки та звичного моніторингу. Автоматична заміна варфарину прямим антикоагулянтом або профілактичне зменшення статину за константою in vitro небезпечні. Взаємодії птеростильбену з CYP у людини ще менш визначені.
| Питання | Транс-ресвератрол | Транс-птеростильбен | Межа висновку |
|---|---|---|---|
| Хімічна форма | ; фенольні OH у 3, 5, 4′ | ; OCH₃ у 3, 5 та OH у 4′ | Зміна полярності не доводить ефективності |
| Кон’югація | Можливі кілька глюкуронідів і сульфатів | 4′-OH доступний; деметилювання створює нові субстрати | «Не метаболізується» — хибно |
| Експозиція | Значне загальне всмоктування й низька вільна системна частка | Вища вільна експозиція в окремих тварин | Тваринні цифри не є біодоступністю людини |
| SIRT1 | Алостерична відповідь за належних пептидів і умов | Прямої кількісної переваги в людини не встановлено | Потрібні вільна тканинна концентрація й субстратний тест |
| Наслідки в людини | Невеликі дослідження метаболічних і судинних маркерів | Нижчий тиск у Riche та вищий LDL за монотерапії | Не доведено менше подій, деменції чи смертей |
| Безпека | Високодозний SRT501 дав серйозні сигнали в хворій популяції | Короткі обмежені дані; можливе зростання LDL | Універсального профілактичного режиму немає |
Подібний хімічний каркас не робить молекули взаємозамінними, а більша експозиція не визначає напрямку клінічної дії. Майбутні порівняння мають використовувати еквімолярні дози, аналітично розділяти ізомери /, вільний аглікон і кон’югати, підтверджувати мішень у доступній тканині та наперед визначати кінцеві точки. Наразі ресвератрол має досліджену, але контекстну алостерію SIRT1 й обмежені клінічні сигнали; птеростильбен відрізняється хімічно та фармакокінетично, а невелике дослідження в людини показало можливий судинний ефект разом із несприятливою ліпідною зміною. Жоден етап не обґрунтовує готового режиму «активації SIRT1» у здорових людей.
Це наративний огляд збереженої літературної бази з хімії стильбенів, фармакокінетики та SIRT1; добірка містить 30 публікацій. Редакційний комплект відновлено 8 жовтня 2026 року з раніше підготовленого російського тексту та вихідної бібліографії. Бібліографічні невідповідності Hubbard і Howells адресно виправлено за записами PubMed; це не повторна звірка всіх результатів і повних текстів. Систематичний пошук, метааналіз, формальну оцінку ризику зміщення та GRADE не виконували.
Ферментну алостерію, клітинний сигнал, концентрацію в тканині та клінічний наслідок розглянуто як різні рівні доказів. Числа належать дослідженій формі, дозі, популяції, тривалості та методу вимірювання. Фармакокінетика тварин не встановлює біодоступності в людини; позитивний сурогатний показник не доводить зниження частоти хвороб або подовження життя. Перенесення між молекулами, ізомерами й лікарськими формами потребує власних порівняльних даних.
Мітка враховує також метаболіти, тоді як вільний аглікон швидко кон’югується. Показники слід порівнювати за однакових дози, форми та аналітичного методу.
Ні. Хімічна відмінність і висока експозиція в окремих тваринних моделях не встановлюють прямої кількісної переваги щодо тканинної активації SIRT1 або клінічного наслідку.
Ні. Мітка може впливати на результат; алостерична відповідь немічених пептидів залежить від сусідніх амінокислот та умов досліду.
Готовий генотипний алгоритм дозування не підтверджено клінічними даними. Біохімічна правдоподібність не замінює дослідження взаємодії генотипу та втручання.
Ні. Досліджені дози належать конкретним коротким випробуванням; комбінації, ранкові вікна й еквівалентність форм не доведені як універсальні протоколи.